本文介绍了一种对成年斑马鱼(Danio rerio)进行基于DNA疫苗免疫接种的实验方案,并展示了成功接种疫苗事件的验证方法。该方法适用于在多种感染模型中对候选疫苗进行临床前筛选。
本文内容
摘要
摘要
近二十年来,人们对基于DNA的疫苗接种兴趣日益增加。DNA疫苗接种基于将选定抗原或多种抗原序列克隆至质粒中,从而实现定制化且安全的设计。将DNA疫苗导入宿主细胞后,可表达抗原,进而激发体液免疫和细胞介导的免疫应答。本报告描述了一种将抗原序列克隆至pCMV-EGFP质粒的实验方案,通过肌肉内微注射对成年斑马鱼进行免疫接种,并随后进行电穿孔以提高摄取效率。疫苗抗原以绿色荧光蛋白(GFP)融合蛋白形式表达,可通过活体鱼在紫外光下观察荧光来确认抗原表达,并利用ELISA定量融合蛋白的表达水平,同时可通过Western印迹分析检测其存在。疫苗候选物的保护效果通过在免疫接种后五周用Mycobacterium marinum感染斑马鱼进行评估,并在四周后采用qPCR定量细菌载量。与哺乳动物的临床前筛选模型相比,该方法为针对分枝杆菌感染的新型DNA疫苗候选物的初步筛选提供了一种经济高效的技术手段。该方法还可进一步应用于针对多种细菌性和病毒性疾病的DNA疫苗的筛选。
引言
最早的DNA疫苗研究始于20世纪90年代1,自那时以来,DNA疫苗已被用于针对多种传染病、癌症、自身免疫性疾病和过敏的试验2。在哺乳动物中,已有针对马匹西尼罗河病毒的DNA疫苗以及用于犬口腔黑色素瘤的治疗性癌症疫苗获得批准,但目前这些疫苗尚未进入临床应用2。除了哺乳动物研究引发的关注外,DNA疫苗还被证明是防控养殖鱼类病毒性疾病的一种便捷免疫手段。自2005年起,针对鱼类传染性造血器官坏死病毒(IHNV)的疫苗已投入商业使用,而针对传染性胰腺坏死病毒(IPNV)的疫苗也已获得许可3。此外,目前还有多种针对鱼类病原体的DNA疫苗正在研发中。
由于传统疫苗通常含有灭活或减毒的病原体,因此存在传播疾病的风险2。而DNA疫苗则避免了这一风险,因为其基于质粒递送细菌或病毒抗原的编码序列,而非完整的病原体本身2,4。DNA疫苗利用DNA重组技术制备,可精确设计疫苗抗原,并在一个疫苗构建体中灵活组合抗原与佐剂5。此外,与基于蛋白质的重组疫苗相比,DNA疫苗的生产速度更快、操作更简便且成本更低,这不仅在疫苗候选物的筛选中具有显著优势,也在例如大流行暴发等紧急情况下尤为重要2。
在鱼类中,DNA疫苗最常见的给药途径是腹腔注射、肌肉注射和口服3,6,7,而在哺乳动物中,皮下注射和皮内注射也是可选途径2。肌肉注射后,所给予的DNA质粒进入给药部位的细胞(e.g.,主要是肌细胞,也包括常驻的抗原呈递细胞[APCs])。通过电穿孔可显著提高转染细胞的比例2,8。进入细胞后,部分质粒DNA进入细胞核,在其中质粒编码的基因被转录2。在本方案中,我们使用pCMV-EGFP质粒,该质粒含有一个经过优化的强组成型启动子,适用于真核生物表达9。在此构建体中,抗原被翻译为与GFP融合的蛋白。通过荧光显微镜对活鱼中的抗原表达进行简单观察,GFP可实现对疫苗接种成功与否以及抗原产物正确性的验证。
在哺乳动物中,DNA疫苗已被证明能够根据转染的细胞类型刺激不同类型的免疫反应2,5。转染的肌细胞将抗原分泌到细胞外空间,或在细胞死亡时释放抗原,这些被抗原呈递细胞(APC)吞噬的抗原随后在主要组织相容性复合体II类分子上呈递2。这会触发CD4和CD8 T细胞反应,以及B细胞反应2,5,10。在鱼类中,T细胞和B细胞以及树突状细胞(DCs)已被鉴定,但它们在抗原呈递中的分工尚不明确11。然而,斑马鱼的树突状细胞已被证明在表型和功能特征上与其哺乳动物对应物具有保守性12。此外,DNA疫苗在鱼类和哺乳动物中均能诱导类似的免疫反应,包括T细胞和B细胞反应6,13,14,15,16。
斑马鱼的幼虫和成体均被广泛用于模拟多种传染病,例如本方案中使用的鱼类M. marinum感染结核病模型17,18,19,20,21,22。与哺乳动物模型生物相比,斑马鱼具有体型小、繁殖速度快和饲养成本低等优势23。这些特点使斑马鱼成为进行大规模临床前新疫苗和药物化合物筛选研究的理想动物模型23,24,25。
在本实验方案中,我们描述了如何通过基于DNA的成年斑马鱼疫苗接种来评估针对分枝杆菌病的新型疫苗抗原候选物。首先,我们介绍了如何将抗原克隆至pCMV-EGFP表达质粒中,随后详细说明了疫苗质粒的肌肉注射以及后续电穿孔导入肌肉组织的操作步骤。免疫后一周,通过荧光显微镜检测确认每种抗原的表达情况。然后,通过用M. marinum人工感染已接种疫苗的鱼类,评估抗原候选物的有效性。
方案
包含成年斑马鱼的实验需要获得动物实验许可,该许可需涵盖疫苗接种以及后续感染模型相关研究。此处描述的所有方法和实验均已获得芬兰动物实验委员会(ESAVI)批准,并严格按照欧盟指令2010/63/EU执行。
1. DNA 疫苗抗原的克隆
- 选择一种表达质粒,该质粒已优化用于在强组成型启动子(如巨细胞病毒(CMV)即刻早期启动子)驱动下于真核细胞中表达目标抗原。为便于后续检测与纯化,可考虑包含适当标签序列的质粒构建体。 体内 验证抗原表达时,选择编码荧光标签的疫苗质粒,例如 pCMV-EGFP 质粒9 本方案中使用。
- 使用适当的基于网络的生物信息学工具,筛选出一段(或若干段)长度约为90–600 nt(30–200个氨基酸)的潜在免疫保护性抗原序列26 来自将在后续感染模型中使用的病原体的感兴趣基因。
- 使用可用的软件或手动设计引物,以从病原体基因组中扩增抗原基因,并将抗原序列克隆至表达质粒的多克隆位点。在选择抗原时,务必确保保持正确的读码框。
- 包含 Kozak 序列(CCACC)27 并在5’引物中包含起始密码子(ATG)。为保留C末端EGFP标签,抗原序列及3’引物中应避免出现中间终止密码子(TAG、TAA、TGA)。同时,确保GFP标签与目标抗原保持在同一读码框内。
- 使用从病原体中提取的RNA或DNA作为模板,利用克隆引物扩增出足量的PCR产物。建议使用具有校对功能的DNA聚合酶,以确保抗原序列的准确性。
- 纯化PCR产物,并通过凝胶电泳检测产物的正确大小。将PCR产物与经消化的疫苗质粒进行消化和连接。
- 将连接产物转化至感受态细菌细胞中,按照合适的实验方案进行操作。使用适当的抗生素筛选阳性菌落,并用于质粒的扩增生产 E. coli例如,pCMV-EGFP 质粒就含有一个氨苄青霉素抗性基因用于此目的。
- 使用Sanger测序法确认正确抗原序列的插入。以下引物可用于pCMV-EGFP质粒中抗原的测序:CMV正向引物 5’- CGCAAATGGGCGGTAGGCGTG-3’ 和 EGFP-N反向引物 5’- CGTCGCCGTCCAGCTCGACCAG-3’。
- 生产并纯化足量的疫苗构建体。将质粒溶解或洗脱于无菌水中。确保所获得的质粒DNA质量高,浓度至少为0.72 µM或2,000 ng/µL。
2. 拉制显微注射针
- 提前制备显微注射针。使用10厘米长的铝硅酸盐玻璃毛细管。注意,硼硅酸盐玻璃毛细管对于成年鱼的注射而言过于脆性。
- 使用微移液针制备装置拉制针头。
注意:针头应与图1所示的针头相似。使用本实验方案中的设备(材料表),以下设置可获得所需类型的针头:- 将玻璃毛细管置于拉针仪V型槽内的拉杆中,并轻轻拧紧夹紧旋钮。
- 移动夹持器靠近灯丝,轻轻将毛细管穿过灯丝,插入灯丝另一侧的拉杆中。避免毛细管接触灯丝。
- 拧紧夹紧旋钮,放下安全玻璃,然后按下拉制按钮。
警告:灯丝处于高温状态。
- 将针头放置于15厘米培养皿内一块可重复使用的粘性材料上,以保护针尖。保持培养皿加盖,以确保针头清洁。
3. 填充微量移液针
- 制备疫苗混合液。每剂使用 0.5–12 µg 质粒。若将多种不同的质粒组合于同一疫苗混合液中,每尾鱼的最大总DNA浓度不得超过 12 µg。
- 根据每组鱼的数量计算疫苗“主混合液”的体积(见下文)。每剂注射液中加入 1 µl 经无菌过滤的酚红,以方便毛细管针头的填充及注射过程的观察。用无菌 1x PBS 补充至每剂注射体积最大为 5–7 µl8。
注意:注射体积超过 7 µL 可能导致注射液偶尔泄漏,因此应避免。 - 将一段胶带粘贴面朝上固定在合适的支架上,例如空移液枪头盒的侧面。轻轻地将毛细管针头固定在胶带上。
- 将最多 7 µL 疫苗混合液滴加到一片实验室覆膜上。使用上样枪头将疫苗从覆膜转移至针头中。移液时应缓慢且小心,避免将气泡吸入针头内。
- 让针头静置 15–30 分钟,以排除可能残留的微小气泡。
4. 设置显微注射仪和电穿孔仪用于免疫接种
- 将显微操作仪和光源调整至正确位置。将气压开关旋至打开位置。
- 按以下方式调整气动泵的参数(另见图2):
- 将吹出端口上的排气旋钮设为保持,以防止毛细作用导致移液管回吸液体。将吹出端口的管路连接至微移液管。本实验方案中不使用真空端口。
- 调节脉冲时长:使用定时模式,由电子计时器控制压力电磁阀开启的持续时间。当压力电磁阀开启(通电)时,检查吹出压力表旁的绿色指示灯是否亮起。
- 将脉冲范围设为10秒;在此设置下,脉冲时长可在100毫秒至10.1秒之间进一步调节。使用十圈周期旋钮精细调节脉冲时长——旋钮每转动一圈对应1.0秒。如有需要,可在注射过程中进行调节。
- 使用气动泵前面板上的脉冲启动器(“启动按钮”),或使用远程脚踏开关(推荐)。该开关连接至气动泵前面板。
- 将针头安装到显微操作仪的微移液管支架上。用镊子剪断针头尖端,以便液体能够推出,并通过显微镜观察确认位置正确。踩下一次脚踏开关,观察1秒脉冲是否能从针头推出一小滴液体。
- 对电穿孔仪使用以下设置:电压 = 40 V;脉冲时长 = 50 ms;脉冲次数 = 6。将电穿孔镊子连接至电穿孔仪。确认监视器上显示的实际电压和脉冲时长与设定值无明显差异。
5. DNA疫苗注射与电穿孔
- 根据本方案进行免疫接种时,使用健康、6 至12月龄的成年斑马鱼。将鱼饲养在循环水系统中,光照周期为14小时光照/10小时黑暗,每升水中最多饲养七条鱼。
- 用养殖用水配制0.02%的三卡因(3-氨基苯甲酸乙酯)溶液(pH 7),用于麻醉鱼类28。使用直径10 cm的培养皿或类似容器。
- 准备一个恢复用鱼缸,向5 L烧杯中加入3 L清洁的系统用水。
- 准备一个疫苗接种垫,用于在接种过程中固定鱼体位置。取一块5 × 7 cm2、厚度为2 至3 cm的海绵,用手术刀片或锋利的剪刀在海绵上切出一条沟槽。
注意:同一块疫苗接种垫可用于多次实验。实验间可通过将海绵浸泡于70%乙醇中进行消毒,并晾干备用。 - 将海绵充分浸入系统用水中润湿,然后将其放置于培养皿上。
- 在接种前24小时停止喂食。
- 将一条斑马鱼放入含有0.02%三卡因的培养皿中以进行麻醉。等待至鱼体对触碰刺激无反应且鳃部无运动为止。每次仅麻醉一条鱼。
- 使用塑料勺将麻醉后的斑马鱼转移至湿润的海绵上,并使其腹面朝下置于沟槽内。正确位置应确保鱼的头部及大部分身体位于沟槽内,而背鳍和尾部则从沟槽中伸出。
- 在显微镜下,使用显微操作仪的X轴和Y轴微调旋钮,将针头以约45°角小心插入斑马鱼背肌附近。
- 寻找背鳍前方无鳞片的小区域,此处进针无需施加过多力量。若感到阻力,应尝试邻近位置。避免损伤脊柱、背鳍或鳞片。
注意:若针头在推进过程中发生弯曲,可将其略微剪短。 - 使用脚踏开关逐步将疫苗溶液注入肌肉。通过显微镜观察注射过程:酚红进入肌肉组织时可见。根据需要调整脉冲持续时间。
注意:也可使用气动泵前面板上的脉冲启动按钮进行注射。但使用远程脚踏开关可腾出另一只手通过十圈调节旋钮控制脉冲长度。避免注射过快,以免造成过度组织损伤。确保不注入任何空气。 - 注射后立即对鱼进行电穿孔。确保鱼仍处于麻醉状态。保持鱼体位于海绵上,并将其置于镊形电极之间,使电极位于注射部位两侧。不要过度夹紧电极镊子,但需确保两个电极均与鱼体接触。
- 按下电穿孔仪上的启动按钮,施加六个40 V、50 ms的脉冲。
- 轻柔地将鱼转移至恢复鱼缸中。
- 每次电穿孔后,用70%乙醇擦拭电极进行清洁。
注意:接种后应密切监测鱼的健康状况。若鱼出现不适症状(麻醉恢复缓慢、游动异常、喘息等),应使用0.04%三卡因实施安乐死。恢复后,将鱼转移至循环水系统并正常喂食。
6. 抗原表达的可视化与成像
- 在免疫后2–7天,用含0.02 % 三卡因的溶液麻醉斑马鱼,并使用紫外光观察注射部位附近的EGFP表达。
注:在紫外光下进行肉眼观察是一种简便且无创的操作,适用于常规验证疫苗接种是否成功,也适用于大规模实验。如果不需要拍摄鱼类图像,此步骤也可直接在常规鱼缸中进行,无需麻醉或移动鱼类。 - 为获取图像,使用荧光显微镜观察注射部位的EGFP表达8。采用2倍物镜,并选择合适的滤光片以观察荧光或明场图像。
- 用镊子轻轻按压麻醉后鱼类的腹鳍,使其紧贴培养皿底部以保持静止。对同一区域同时拍摄明场显微图像和荧光图像。
- 使用适当的软件合并明场与荧光图像29,并添加比例尺。
7. 抗原表达水平和大小的定量分析
- 用0.04%三卡因处死鱼类。在紫外光下使用解剖刀和镊子分离背肌的荧光部分。从样品中提取蛋白质8.
- 验证正确大小 体内-通过蛋白质印迹分析检测表达的蛋白质,使用辣根过氧化物酶(HRP)标记的GFP抗体(或类似物)8包括一个阴性对照(未免疫的鱼),以排除背景信号和非特异性结合,同时设置一个表达EGFP但不融合抗原的对照。
注意:对于蛋白质印迹分析,可通过以下公式计算抗原融合蛋白的预期大小(单位为 kDa):
双链DNA的分子量(MW)=(核苷酸数目 × 607.4)+ 157.9;或使用基于网络的工具计算。 - 使用GFP-ELISA定量每种抗原的表达水平8 (可选)
8. 将疫苗接种方案与M. marinum感染模型相结合
- 确定在感染模型和所用检测方法中可靠评估新型候选疫苗有效性的所需分组规模(例如,参见 Myllymäki et al.24 和 Charan 与 Kantharia30)。在实验设计阶段进行相应的功效计算。
- 为评估候选疫苗的有效性,在免疫后第5周对鱼类进行感染。采用腹腔注射方式接种约30个菌落形成单位(cfu)的 M. marinum,这将在大多数鱼类中引起潜伏性感染8,20,31。
注意:使用 M. marinum 时,应遵循BSL2级生物安全操作规程。细菌或病毒的制备取决于具体病原体。 - 定量每条鱼体内的病原体数量。在感染后第4周处死鱼类,并利用针对 M. marinum 的特异性引物,通过qPCR检测从提取的DNA中测定每条鱼的细菌负荷量20,24。
注意:务必设置适当的对照组,并采用正确的统计学方法分析结果。通常,以空载体pCMV-EGFP质粒免疫的鱼类组可作为合适的阴性对照。 - 使用不含GFP标签的抗原验证阳性结果。按照步骤1所述方法克隆抗原,并重复疫苗接种实验。
结果
成年斑马鱼DNA疫苗接种方案所涉及的步骤如图3所示。首先,将选定的抗原序列克隆至pCMV-EGFP质粒中,并进行质粒DNA的制备与纯化24(图3)。随后,使用微量注射器将候选疫苗进行肌肉注射,并对注射部位实施电穿孔处理,以提高质粒进入细胞的效率(图3)。通过注射不同剂量的pCMV-EGFP质粒并采用ELISA检测GFP表达水平,对所用疫苗剂量进行了优化(补充图1)。接种疫苗后2至7天,可在紫外光下检测融合蛋白的表达,并通过荧光显微镜进行观察(图3和图4)。不同抗原的表达水平可能存在较大差异,从强表达(抗原1)到微弱表达不等(图4)。此外,GFP表达可分布于背肌广泛区域(抗原1),也可局限于较小范围(抗原2)(图4)。然而,若在10天内未检测到荧光信号,建议核查抗原克隆或引物设计是否存在错误。为确认表达的融合蛋白大小正确,可从注射部位周围的肌肉组织中提取蛋白,并用于Western印迹分析。
通过以低剂量的病原体攻毒来评估候选疫苗的效果 M. marinum 通过腹腔注射(图5感染后4至5周,通过qPCR测定细菌数量,并与对照组的细菌载量进行比较(图5)。此外,可通过监测高剂量感染后的存活情况,来评估最有希望的疫苗候选物的有效性。 M. marinum 感染(图5)。然而,与仅提供存活或死亡状态的检测相比,基于qPCR的cfu定量不仅能对感染进展提供定量结果,而且所需时间更短、动物组群更小,因此在初筛中更具伦理优势。总体而言,本方案可在12周内完成对新型疫苗抗原有效性的筛选。图5).
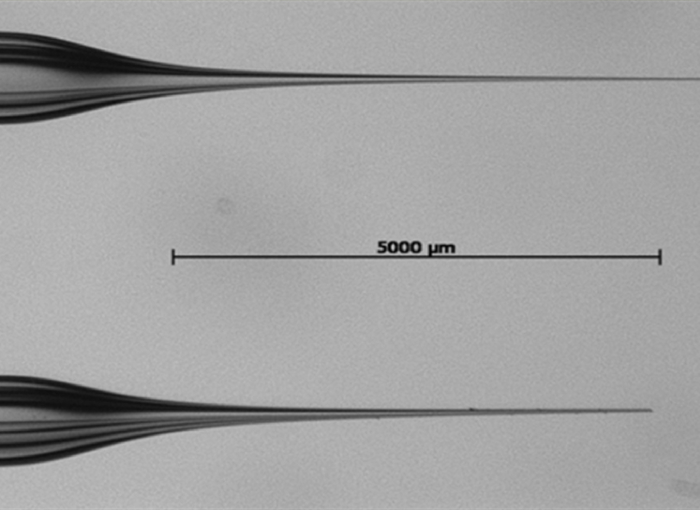
图1:成年斑马鱼中使用的铝硅酸盐针的特写(12倍放大) 肌内 注射 下方的移液尖已用镊子剪断,可直接用于显微注射。该图改编自 Oksanen35. 请点击此处以查看此图的放大版本。
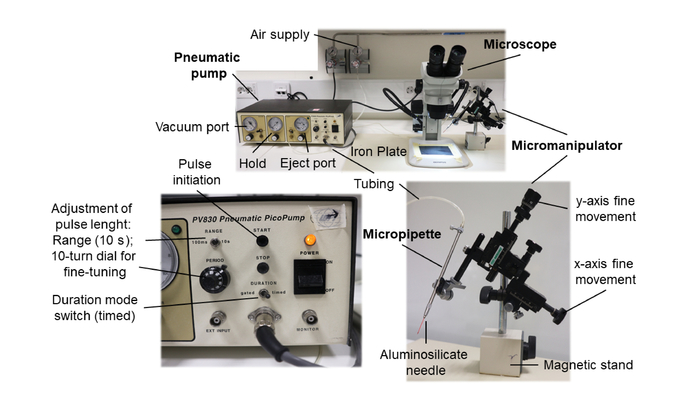
图2:显微注射设备及装置设置。 进行成年斑马鱼DNA疫苗接种所需设备的主要组件以粗体标出。关键调节部位已作指示。请点击此处查看该图的放大版本。
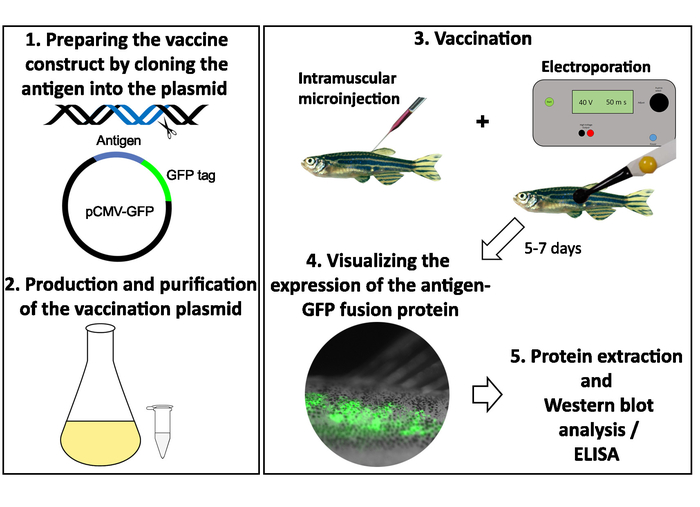
图3:DNA疫苗质粒的制备及免疫程序。 (1)将选定的抗原克隆至pCMV-EGFP质粒中GFP标签的邻近位置。(2)通过微生物方法生产疫苗构建体,并进行浓缩与纯化。(3)使用显微注射仪将12 µg质粒注射至麻醉后的成年斑马鱼背肌中,随后在注射部位施加六次40 V、50 ms的电脉冲进行电穿孔。(4)接种后2至7天,通过荧光显微镜观察抗原-GFP融合蛋白的GFP表达。(5)可解剖出背肌中具有荧光的部分用于蛋白提取,通过Western印迹分析确认融合蛋白的大小,并通过GFP-ELISA检测其表达水平。请点击此处查看本图的放大版本。
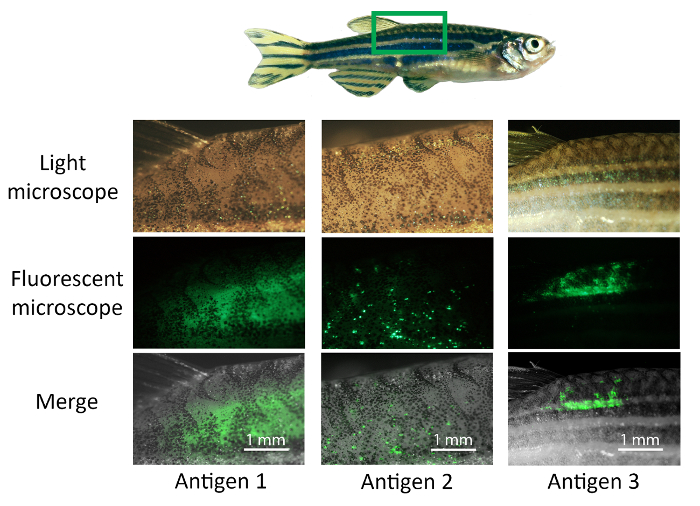
图 4:抗原-EGFP 融合蛋白表达的可视化。 将实验性疫苗抗原(抗原 1–3)以 12 µg 剂量注射至麻醉的成年斑马鱼体内,并在注射部位施加六次 40 V、50 ms 的电脉冲进行电穿孔。接种疫苗后 2 至 7 天,使用显微镜对注射部位进行成像。首先在荧光显微镜下检测 GFP 的表达,采用 2X 物镜观察该区域,并以 .tiff 格式采集并保存图像。利用 ImageJ 软件将同一区域的明场显微图像与荧光图像进行合并。抗原表达的数量和位置可能因不同抗原及个体斑马鱼而异。例如,抗原 1 的表达分布于背部肌肉,抗原 2 的表达呈小斑点状,而抗原 3 则在较小区域内强烈表达。请点击此处查看该图的放大版本。
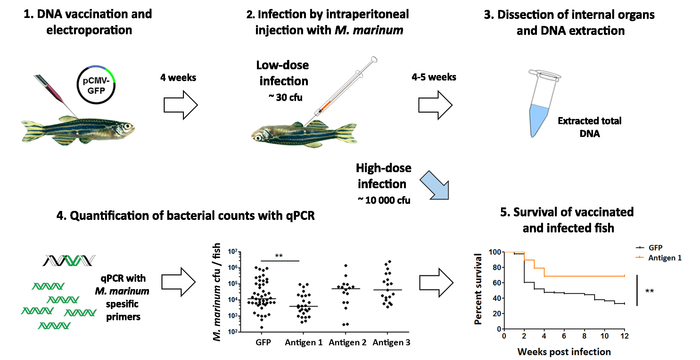
图5:测试疫苗候选物对分枝杆菌感染的防护效果。(1)成年斑马鱼接种针对分枝杆菌病的实验性DNA疫苗。(2)接种后五周,用低剂量的Mycobacterium marinum(约30 cfu)感染鱼类。(3)四周后,解剖内脏器官并用于DNA提取。(4)使用针对M. marinum的特异性引物,通过qPCR定量每条鱼体内的细菌数量。抗原1的免疫接种显著降低了细菌载量(p < 0.01,双因素方差分析),而抗原2和抗原3则无此效果。(5)对最具前景的疫苗候选物(抗原1)进一步开展生存实验,即用高剂量(约10,000 cfu)细菌感染鱼类,并持续监测其12周内的存活情况。与图4中观察到的细菌负荷降低结果一致,接种抗原1亦显著提高了鱼类在M. marinum感染后的存活率(p < 0.01),提示该抗原可能成为新型结核病疫苗的有力候选者。请点击此处查看该图的放大版本。
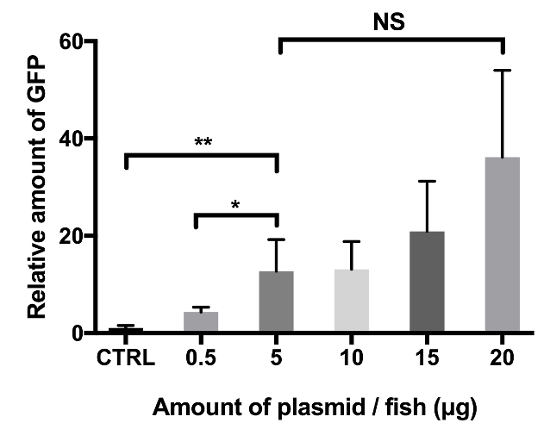
补充图1:质粒DNA用量影响成年斑马鱼中质粒来源的EGFP表达。 每组鱼类(n = 5)注射0.5–20 μg的pCMV-EGFP,并通过电穿孔(6次50 V脉冲)增强转染效率。对照组鱼类(CTRL)注射2 μg不含EGFP基因的空载体pCMV质粒。注射后3天进行GFP-ELISA,以测定鱼体匀浆中EGFP的相对表达水平。P值:*p <0.03,**p <0.004。误差线表示标准差。NS = 无显著差异。本图改编自Oksanen35。 请点击此处查看该图的高清版本。
讨论
使用基于DNA的疫苗对成年斑马鱼进行免疫接种需要一定的技术专长。即使对于经验丰富的研究人员而言,不包括准备工作,对单条鱼进行疫苗接种也大约需要3分钟。因此,每天最多可对约100条鱼进行免疫接种。如果实验需要超过100条鱼,可将免疫接种工作分至最多3天完成。除了实验质量外,研究人员充分掌握鱼类操作和免疫接种技术对于保障鱼类福利至关重要。在鱼类饲养、实验设计以及实验操作人员资质等方面,务必遵守当地的法律法规和动物福利相关准则。
总之,为避免免疫程序中出现并发症,有几个关键步骤需要注意。为确保免疫成功,需做到以下几点:1)待免疫的鱼类健康且年龄与体型足够大(对更幼小的鱼类进行免疫时,可能需要减少疫苗用量和调整电穿孔参数);2)使用 浓度不超过0.02%的3-氨基苯甲酸乙酯进行适当麻醉,并确保整个操作过程中鱼类持续处于麻醉状态(应尽可能缩短麻醉时间,以保证鱼类顺利恢复);3)海绵垫 需充分浸湿;4)每次气动泵脉冲均应有液体注入,若无,则需调整脉冲时长(可沿y轴方向将针头略微向后拉动以辅助);5)疫苗溶液中无气泡;6)电穿孔参数以及实际的脉冲电压和脉冲时长设置正确;7)电极不会对电穿孔部位的皮肤造成损伤(电穿孔过程中应使电极轻柔接触鱼体,电穿孔完成后立即将鱼放入恢复水箱中)。
电穿孔后,需在恢复水箱中密切观察鱼类,并对出现不适症状的个体实施安乐死。此外,在开展大规模实验之前,必须先练习该操作流程,以确保实验流程顺畅。如有可能,请接受过充分培训的同事协助完成针头填充和电穿孔操作。
DNA疫苗接种方法能够实现疫苗抗原的定制化设计。可以克隆整个抗原,或者更优地,根据细胞定位和免疫原性选择抗原的特定部分24。此外,该方法还允许将多种抗原或佐剂组合到一个疫苗构建体中,或同时注射多个独立的质粒2。通过在抗原序列后加入终止密码子,或从质粒中切除EGFP基因,可以利用相同的质粒载体表达不带C端GFP标签的抗原。在验证阳性筛选结果时,这种做法可能是合理的,因为GFP相对较大的分子量可能影响抗原的折叠,从而限制疫苗可能诱导的体液免疫反应。
较高的抗原表达与DNA疫苗的免疫原性相关2。因此,本方案中包含了注射后的电穿孔步骤,因其已被证明可在斑马鱼中使抗原或报告基因的表达提高四至十倍32。此外,电穿孔作为一种技术手段会引起轻度组织损伤,从而诱导局部炎症反应,进一步促进疫苗引发的免疫应答2。另一方面,电穿孔通常具有良好的耐受性。使用本实验所用设备,几乎所有成年斑马鱼均能良好耐受本方案中使用的6次40 V脉冲刺激35。
除了使用电穿孔技术增强疫苗质粒进入细胞的效率外,我们还在疫苗质粒中采用了一个强的组成型启动子,并在抗原基因的3'端添加了polyA尾,以提高转染后鱼类细胞中抗原的表达水平。在某些情况下,如果目标病原体的密码子使用偏好与被接种物种存在显著差异,密码子优化已被证明有助于进一步提高目的基因的表达2。然而,在本研究的斑马鱼-M. marinum 模型中,密码子优化对两种分枝杆菌模型基因ESAT-6和CFP-10的表达水平并无显著影响,因此在该模型中被认为没有必要35。
目的基因的表达谱在不同抗原之间可能存在一定的时间差异,这取决于抗原本身的大小和结构等因素。然而,使用相同疫苗免疫的鱼类群体内,抗原表达通常较为一致。通常在免疫后第4天至一周左右可观察到最强的EGFP表达,但表达时间范围也可能为2–10天。建议在将某一抗原用于大规模实验前,先在少量鱼类(2–3尾)中验证该抗原-EGFP融合蛋白的表达情况。若在免疫后2–10天内始终未观察到GFP表达,请确认以下两点:1) 免疫操作流程是否严格遵循;每次实验均应设置以空载体pCMV-EGFP质粒免疫的阳性对照组,并确保2) 抗原设计与分子克隆操作正确无误(引物设计合理;抗原与EGFP标签处于同一阅读框,且中间无提前终止密码子)。在某些情况下,即使抗原设计正确,仍可能无法检测到GFP信号,这可能是由于融合蛋白错误折叠或迅速降解所致。此时,可能需要重新设计抗原。
在用于养殖鱼类免疫的疫苗中,所使用的质粒剂量通常为1 µg或更低7,33,34在斑马鱼中,电穿孔后注射至少0.5 µg质粒也可检测到报告基因表达;然而,每尾鱼注射的质粒量增加时,目的基因的相对表达水平显著升高补充图1)。在注射了pCMV-EGFP报告质粒的鱼类中,注射5–20 µg质粒的EGFP水平比注射0.5 µg的鱼类高出四到八倍。因此,为了确保目标基因表达水平足够高,同时注射体积足够小(≤7 µL),以避免造成过多的组织损伤或疫苗泄漏,我们选择在初步筛选中每尾鱼使用5至12 µg质粒。除了疫苗免疫原性外,检测报告基因表达还需足够高的目标基因表达水平,以便通过荧光显微镜和Western blot进行检测,这对于筛选过程中确认正确的体内表达至关重要 体内 目标抗原的翻译。然而,较低的质粒剂量(0.5–1 µg)可能适用于其他类型的实验用途。
综上所述,这种针对成年斑马鱼的DNA质粒免疫方案可用于多种细菌或病毒感染的新型候选疫苗的临床前测试。通过将疫苗抗原表达为GFP融合蛋白,可以直观地观察免疫成功事件及抗原的表达情况。我们应用该方法对结核病新型候选疫苗抗原进行临床前筛选。为此,在接种疫苗五周后对斑马鱼进行感染,并通过qPCR20,24测定每条鱼体内的细菌数量。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢实验免疫学研究组的各位成员,特别是 Leena Mäkinen 和 Hannaleena Piippo,在疫苗接种方案的开发与优化过程中所付出的大量工作,以及在实际实验中使用该方案时所提供的帮助。
本工作由 Jane ja Aatos Erkon Säätiö(Jane 和 Aatos Erkko 基金会;资助 M.R.)、Sigrid Juséliuksen Säätiö(Sigrid Juselius 基金会;资助 M.R.)、坦佩雷大学医院专家责任领域的竞争性国家研究资助(资助 M.R.)、Tampereen Tuberkuloosisäätiö(坦佩雷结核病基金会;资助 M.R.、H.M. 和 M.N.)、Suomen Kulttuurirahasto(芬兰文化基金会;资助 H.M.)、Suomen Tuberkuloosin Vastustamisyhdistyksen Säätiö(芬兰抗结核病基金会;资助 H.M.)、Väinö ja Laina Kiven säätiö(Väinö 和 Laina Kivi 基金会;资助 M.N.)以及坦佩雷市科学基金会(资助 M.N.)提供支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| pCMV-GFP 质粒 | Addgene | #11153 | |
| 2-丙醇 | Sigma-Aldrich | 278475-2L | DNA 提取 |
| 氨苄青霉素钠盐 | Sigma-Aldrich | A0166-5G | |
| 氯仿 | Merck | 1.02445.2500 | DNA 提取 |
| ECM 电穿孔仪 | BTX Harvard apparatus | BTX ECM 830 | |
| FastPrep-24 5G | MP Biomedicals | 116005500 | 匀浆器 |
| Flaming/brown 微量移液器拉制仪 | Sutter Instrument Co. | P-97 | 针头拉制 |
| GeneJet PCR 纯化试剂盒 | ThermoFischer Scientific | K0701 | |
| GFP ELISA 试剂盒 | Cell Biolabs, Inc. | AKR-121 | |
| 硫氰酸胍(分子量 118.2) | Sigma-Aldrich | G9277-500G | DNA 提取 |
| ImageJ2 | imagej.net/Downloads | 免费软件 | |
| LB 琼脂 | Sigma | L2897-1kg | |
| LB 肉汤(Miller) | Sigma | L3522-1kg | |
| 显微操作仪 | Narishige | MA-153 | |
| 显微镜 | Nikon | AZ100 | 荧光显微镜 |
| 显微镜 | Olympus | ZS61 | |
| Nightsea 全适配系统配皇家蓝光源头 | Electron Microscopy Sciences | SFA-RB | |
| PBS 片剂 | VWR Chemicals | E404-200TABL. | |
| 酚红钠盐 | Sigma-Aldrich | 114537-5G | |
| PV830 气动皮升泵 | WPI | SYS-PV830 | |
| QIAGEN 质粒大提试剂盒 | Qiagen | ID:12163 | 质粒提取 |
| 柠檬酸钠(分子量 294.1) | VWR Chemicals | 27833.294 | DNA 提取 |
| Tri Reagent | Molecular Research Center, Inc. | TR 118 | DNA 提取 |
| 三卡因(3-氨基苯甲酸乙酯甲磺酸盐) | Sigma | A5040-100g | 麻醉与安乐死溶液 |
| Tris(游离碱)(分子量 121.14) | VWR Life Science | 0497-500G | DNA 提取 |
| Tweezertrodes 电极(7 mm)套件 | BTX Harvard apparatus | BTX 450165 | 镊子型电极 |
| 2.8 mm 陶瓷珠 | Omni International | 19-646-3 | DNA 提取 |
| 2 mL 带盖坚固管 | Omni International | 19-649 | DNA 提取 |
| 铝硅酸盐毛细管 | Harvard apparatus | 30-0108 | |
| Microloader 20 µL | eppendorf | 5242956.003 | 加样吸头 |
| 培养皿,16 mm | Sarsted | 82.1473 | |
| 手术刀 | Swan Morton | 0501 | |
| Parafilm 封口膜 | Bemis | 实验室封口膜 | |
| 针 | |||
| 塑料勺 | |||
| 刮刀 | |||
| 海绵 | |||
| 泡沫塑料工作台 | |||
| 镊子 |
参考文献
- Tang, D. C., DeVit, M., Johnston, S. A. Genetic immunization is a simple method for eliciting an immune response. Nature. 356 (6365), 152-154 (1992).
- Tregoning, J. S., Kinnear, E. Using Plasmids as DNA Vaccines for Infectious Diseases. Microbiology Spectrum. 2 (6), (2014).
- Evensen, O., Leong, J. A. DNA vaccines against viral diseases of farmed fish. Fish Shellfish Immunology. 35 (6), 1751-1758 (2013).
- Sommerset, I., Lorenzen, E., Lorenzen, N., Bleie, H., Nerland, A. H. A DNA vaccine directed against a rainbow trout rhabdovirus induces early protection against a nodavirus challenge in turbot. Vaccine. 21 (32), 4661-4667 (2003).
- Li, L., Petrovsky, N. Molecular mechanisms for enhanced DNA vaccine immunogenicity. Expert Review of Vaccines. 15 (3), 313-329 (2016).
- Embregts, C. W. E., et al. Intramuscular DNA Vaccination of Juvenile Carp against Spring Viremia of Carp Virus Induces Full Protection and Establishes a Virus-Specific B and T Cell Response. Frontiers in Immunology. 8, 1340(2017).
- Lorenzen, N., LaPatra, S. E. DNA vaccines for aquacultured fish. Revue scientifique et technique (International Office of Epizootics). 24 (1), 201-213 (2005).
- Oksanen, K. E., et al. An adult zebrafish model for preclinical tuberculosis vaccine development. Vaccine. 31 (45), 5202-5209 (2013).
- Matsuda, T., Cepko, C. L. Electroporation and RNA interference in the rodent retina in vivo and in vitro. Proceedings of the National Academy of Sciences of the United States of America. 101 (1), (2004).
- Cho, J. H., Youn, J. W., Sung, Y. C. Cross-priming as a predominant mechanism for inducing CD8(+) T cell responses in gene gun DNA immunization. The Journal of Immunology. 167 (10), 5549-5557 (2001).
- Lewis, K. L., Del Cid, N., Traver, D. Perspectives on antigen presenting cells in zebrafish. Developmental & Comparative Immunology. 46 (1), 63-73 (2014).
- Shao, T., et al. Characterization of surface phenotypic molecules of teleost dendritic cells. Developmental & Comparative Immunology. 49 (1), 38-43 (2015).
- Utke, K., et al. Cell-mediated immune responses in rainbow trout after DNA immunization against the viral hemorrhagic septicemia virus. Developmental & Comparative Immunology. 32 (3), 239-252 (2008).
- Cuesta, A., et al. An active DNA vaccine against infectious pancreatic necrosis virus (IPNV) with a different mode of action than fish rhabdovirus DNA vaccines. Vaccine. 28 (19), 3291-3300 (2010).
- Castro, R., et al. DNA vaccination against a fish rhabdovirus promotes an early chemokine-related recruitment of B cells to the muscle. Vaccine. 32 (10), (2014).
- Iwanami, N. Zebrafish as a model for understanding the evolution of the vertebrate immune system and human primary immunodeficiency. Experimental Hematology. 42 (8), 697-706 (2014).
- Patterson, H., et al. Adult zebrafish model of bacterial meningitis in Streptococcus agalactiae infection. Developmental & Comparative Immunology. 38 (3), 447-455 (2012).
- Cronan, M. R., Tobin, D. M. Fit for consumption: zebrafish as a model for tuberculosis. Disease Model & Mechanisms. 7 (7), 777-784 (2014).
- Tobin, D. M., Ramakrishnan, L. Comparative pathogenesis of Mycobacterium marinum and Mycobacterium tuberculosis. Cellular Microbiology. 10 (5), 1027-1039 (2008).
- Parikka, M., et al. Mycobacterium marinum causes a latent infection that can be reactivated by gamma irradiation in adult zebrafish. PLoS Pathogens. 8 (9), e1002944(2012).
- Rounioja, S., et al. Defense of zebrafish embryos against Streptococcus pneumoniae infection is dependent on the phagocytic activity of leukocytes. Developmental & Comparative Immunology. 36 (2), 342-348 (2012).
- Myllymaki, H., Bauerlein, C. A., Ramet, M. The Zebrafish Breathes New Life into the Study of Tuberculosis. Frontiers in Immunology. 7, 196(2016).
- Myllymaki, H., Niskanen, M., Oksanen, K. E., Ramet, M. Animal models in tuberculosis research - where is the beef? Expert Opinion on Drug Discovery. 10 (8), 871-883 (2015).
- Myllymaki, H., et al. Identification of novel antigen candidates for a tuberculosis vaccine in the adult zebrafish (Danio rerio). PLoS One. 12 (7), e0181942(2017).
- Myllymaki, H., Niskanen, M., Luukinen, H., Parikka, M., Ramet, M. Identification of protective postexposure mycobacterial vaccine antigens using an immunosuppression-based reactivation model in the zebrafish. Disease Model & Mechanisms. 11 (3), (2018).
- Ingolotti, M., Kawalekar, O., Shedlock, D. J., Muthumani, K., Weiner, D. B. DNA vaccines for targeting bacterial infections. Expert Review of Vaccines. 9 (7), 747-763 (2010).
- Kozak, M. Recognition of AUG and alternative initiator codons is augmented by G in position +4 but is not generally affected by the nucleotides in positions +5 and +6. The EMBO Journal. 16 (9), 2482-2492 (1997).
- Matthews, M., Varga, Z. M. Anesthesia and euthanasia in zebrafish. ILAR Journal. 53 (2), 192-204 (2012).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nature Methods. 9 (7), 671-675 (2012).
- Charan, J., Kantharia, N. D. How to calculate sample size in animal studies? Journal of Pharmacology and Pharmacotherapeutics. 4 (4), 303-306 (2013).
- Hammaren, M. M., et al. Adequate Th2-type response associates with restricted bacterial growth in latent mycobacterial infection of zebrafish. PLoS Pathogens. 10 (6), e1004190(2014).
- Rao, N. M., Rambabu, K. M., Rao, S. H. Electroporation of adult zebrafish. Methods in Molecular Biology. 423, 289-298 (2008).
- McCaffrey, J., Donnelly, R. F., McCarthy, H. O. Microneedles: an innovative platform for gene delivery. Drug Delivery and Translational Research. 5 (4), 424-437 (2015).
- Lorenzen, E., Lorenzen, N., Einer-Jensen, K., Brudeseth, B., Evensen, O. Time course study of in situ expression of antigens following DNA-vaccination against VHS in rainbow trout (Oncorhynchus mykiss Walbaum) fry. Fish and Shellfish Immunology. 19 (1), 27-41 (2005).
- Oksanen, K. Adult Zebrafish Model for Studying DNA-based Vaccination against Mycobacterial Disease. Tampereen yliopisto. , Tampere, Finland. (2011).
重印与许可
