我们提出了一种实时光学检测单个未标记蛋白质从活细胞分泌过程的实验方案。该方法基于干涉散射(iSCAT)显微技术,可应用于多种不同的生物系统和实验构型。
本文内容
摘要
摘要
我们演示了干涉散射(iSCAT)显微技术,该方法能够实时检测单个活细胞分泌的未标记单个蛋白质。在本方案中,我们涵盖了构建iSCAT显微镜所需的基本步骤,并增加了额外的成像通道,以监测受研究细胞的活力。随后,我们利用该方法实时检测活细胞分泌的单个蛋白质,并以永生化B细胞系(Laz388)为例进行展示。文中还讨论了显微镜与样品制备以及记录数据的分析所涉及的必要步骤。视频方案表明,iSCAT显微技术为在单分子水平上研究分泌过程提供了一种简便的方法。
引言
分泌蛋白在多种生理过程中发挥着重要作用1因此,它们通常被作为整体组分(蛋白质组学)或作为单个实体进行研究2,3蛋白质组学传统上通过研究特定生物系统中存在的全套蛋白质来开展工作 例如, 酶联免疫吸附试验(ELISA)、流式细胞术或质谱分析4,5,6单个蛋白质的检测通常采用基于荧光的各种技术7,8,等离激元学9,10,或低温电子显微镜11 显微技术。所有这些技术都使用复杂的仪器、标记物或二者兼有,且通常缺乏动态信息,因为它们仅能提供关于所研究系统的长期信息。
此处我们使用 iSCAT12,13 利用显微镜以亚秒级时间分辨率检测单个分泌蛋白14重要的是,该技术能够检测到每种蛋白质固有的微弱散射信号12,14小生物颗粒散射的光量与其极化率成正比。假设蛋白质的形状可近似为一个有效散射球体14,15,16,且不同蛋白质的折射率非常相似,因此测得的信号可直接与蛋白质的分子量(MW)相关联。iSCAT对比度的经验校准 与 通过参照测量分子量,可以区分不同大小的蛋白质。iSCAT实验可 easily 与荧光显微镜技术结合使用。17,18免疫吸附试剂,以及荧光或散射标记,以实现对任何目标蛋白的特异性检测14,17,19.
原则上,iSCAT 通过将蛋白质微弱的散射光与一个二次参考光波进行干涉混合来实现信号放大。iSCAT 显微镜中检测到的强度( )可由以下公式描述:
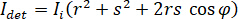
其中, 为入射光强,
 为参考波贡献的系数,
 表示所研究纳米物体的散射强度,
 为散射波与参考波之间的相位差14。通常使用透射光或后向反射的入射光作为参考波,在这两种情况下,
 分别表示样品室的透射率或反射率。项
 与蛋白质的散射截面成正比,相较于交叉项可忽略不计。因此,令
 实现完全相消干涉,探测到的光强为
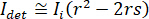 ,其中
 为参考光强,
 为干涉光强。
iSCAT 显微镜技术为在单分子水平上研究生物过程提供了一种极为优秀的方法。例如,我们研究了 Laz388 细胞——一种 Epstein-Barr 病毒(EBV)转化的 B 淋巴细胞系20,21——在分泌 IgG 抗体等蛋白质时的动态过程16。然而,该方法具有普适性,可应用于多种其他生物系统。iSCAT 本质上不具有特异性,能够检测任何蛋白质或纳米颗粒,也可通过常见的表面功能化方法进行扩展,以实现特异性或多重检测。其操作简便,并可与其他光学技术(如荧光显微镜)联用,使 iSCAT 成为细胞生物学中一种有价值的互补工具。
方案
警告:使用任何化学品前,请务必阅读所有相关的化学品安全技术说明书(MSDS),遵守所有适当的安全操作规程,并根据需要佩戴个人防护装备(激光防护眼镜、护目镜、手套、实验服)。
1. 构建iSCAT显微镜16,18
注意:干涉散射显微镜(iSCAT)通常由一个改进的倒置显微镜系统构成。简而言之,将一束激光聚焦于高数值孔径(NA)物镜的后焦平面,并利用成像透镜将粒子的后向散射光聚焦到相机芯片上。通常情况下,这种宽场显微镜可以完全从零搭建,也可基于现有的倒置显微镜进行改造。本方案涵盖了实现该系统搭建的关键步骤,所用硬件可根据实际情况进行调整。关于iSCAT显微镜组装更详细的描述,可参见Arroyo et al.18 的研究工作。
警告:iSCAT 显微镜使用 3B 类至 4 类激光光源。在组装和调试显微镜光学系统时,必须佩戴适当的眼部防护装备。在显微镜组装过程中,务必确保激光光路保持直线,且在添加新的光学元件时不会发生偏转。
- 设置显微镜的照明光路。
- 使用阻尼光学平台和刚性金属块,构建一个显微镜样品台18,该样品台配备高数值孔径(NA)物镜(100倍/1.46 NA)以及平移装置,后者可实现样品的横向移动,并调节物镜的焦平面位置。
注意:iSCAT显微镜在单蛋白检测极限下运行时对外部振动极为敏感。建议使用一种从各个方向支撑样品的中心对称压电平移台,以限制样品因声学激励而产生的扰动,否则将影响焦平面和横向位置的稳定性。图1展示了一个合适的样品台,包括压电平移装置和物镜。此外,建议在以下步骤中讨论的所有光学元件均使用质量大且稳定的安装支架。此类组件可从商业光学供应商处方便地获得。 - 使用焦距为50 cm的单透镜(宽场透镜)和一个45°(垂直)耦合反射镜,将波长为445 nm的半导体激光器的光聚焦到物镜的后焦平面上。这将在物镜的前焦面形成一束准直光束,并作为iSCAT的照明光源。如有必要,在光进入50 cm透镜之前,可通过30 µm针孔或单模光纤对激光进行空间滤波。
- 在物镜上滴加一滴浸油,并将玻璃盖玻片放置于显微镜样品台的样品平面上。这将导致光束从盖玻片反射并沿成像物镜向下返回。
注意:该反射来自样品盖玻片上表面的空气-玻璃界面,将作为iSCAT的参考光束。盖玻片表面残留的灰尘或污物会产生散射点光源,有助于在后续步骤中正确调节成像物镜的焦点。
警告:大部分激光光会透过盖玻片并从物镜正上方射出。请在盖玻片上方放置一块不透明的镜面漫射器(例如,一张纸板),以最大限度降低激光造成伤害的风险。
- 使用阻尼光学平台和刚性金属块,构建一个显微镜样品台18,该样品台配备高数值孔径(NA)物镜(100倍/1.46 NA)以及平移装置,后者可实现样品的横向移动,并调节物镜的焦平面位置。

图1:iSCAT样品台。 照片显示了一个厚重的铝制基座,压电平移装置(黑色)安装在其上,中央位置安装有100倍物镜。三轴压电平台可在物镜焦平面内对样品进行精确定位。粗调焦通过旋转承载物镜的螺纹管实现(图中未显示)。该基座通过四个钢制支脚置于光学平台上,位于45°耦合镜上方。 请点击此处查看此图的放大版本。
- 设置显微镜的成像光路。
- 在宽场透镜后约10 cm处,将一个镀有增透膜(AR)的分光镜(70%反射,30%透射)以45°角置于入射光束路径中,使增透膜一侧朝向激光光源。该分光镜可使入射光束透射,同时将参考光束和散射光束以90°角反射。
注意:建议使用镀增透膜和/或楔形分光镜,因为使用分光立方体或未镀膜的平面分光镜时可能会产生明显的重影和条纹干扰。详见讨论部分。如有需要,可通过使用虹膜光阑阻挡分光镜背面产生的不需要的反射光束。 - 较厚的分光镜会引入显著的光束位移,可能导致激光无法再直线进入物镜。必要时,在分光镜前重新调整激光光路,以确保光束能正确通过物镜。
注意:分光镜也可在宽场透镜之前加入,并在步骤1.1.2中定位显微镜载物台,从而避免后续光束位移。 - 在此阶段,调节干涉仪成像臂,确保样品平面与相机处于齐焦状态。在入射光路中,于宽场透镜后5 cm处放置一个焦距 f = -45 cm 的凹透镜。这将使进入物镜后孔径的光束变为准直光束。
- 在干涉仪的反射光臂中放置一屏幕,沿垂直方向移动物镜以找到粗略焦平面。当照射到屏幕上的光束呈准直状态时,即表示物镜已聚焦。
注意:图2展示了该过程的示意图。 - 完成粗调焦后,移除 f = -45 cm 的透镜和屏幕。
注意:除使用负焦距透镜外,也可将宽场透镜本身安装在可移动支架上,并在此步骤中将其移出光路。但为获得最稳定的显微镜配置,建议将宽场透镜固定在固定位置。 - 添加第二个焦距 f = 50 cm 的单片透镜,用于聚焦散射光并将反射光准直至CMOS相机的传感器上。确保该透镜与物镜的后焦平面相距50 cm,以重新准直参考光束并聚焦散射光。
- 将CMOS芯片置于 f = 50 cm 透镜后50 cm处,并使光束直接照射到芯片中央。
注意:以下参数通常用于成像。激光器(波长445 nm)输出功率设为100 mW。针孔和分光镜对透射光进行衰减,使进入物镜的有效功率约为9 mW。样品位置处的光束直径为6 µm。使用该成像透镜时,系统的有效放大倍数约为300倍。CMOS芯片上成像区域设为128 × 128像素,对应视场面积约为5 × 5 µm2。图3展示了完整组装的iSCAT显微镜的示意图。
- 在宽场透镜后约10 cm处,将一个镀有增透膜(AR)的分光镜(70%反射,30%透射)以45°角置于入射光束路径中,使增透膜一侧朝向激光光源。该分光镜可使入射光束透射,同时将参考光束和散射光束以90°角反射。

图2:iSCAT显微镜的粗调焦。 该示意图展示了光学元件的排列方式,以帮助系统实现初步聚焦。分束器(70/30 BS)背面的抗反射涂层以红色标出。关键距离以绿色标注。图中注明了所用透镜的焦距(f)。蓝色虚线框内的组件在步骤1.2.6至1.2.7中添加。之后将移除用于重新准直会聚iSCAT光束的凹透镜及屏幕。请点击此处查看该图的放大版本。

图3:iSCAT 显微镜。 示意图显示了完全组装好的 iSCAT 显微镜。分束器(70/30 BS)的背面带有抗反射涂层,以红色标示。重要的距离以绿色标出。图中还标注了所用透镜的焦距(f)。请点击此处查看此图的放大版本。
- 设置额外的成像通道。
注:本节增加了一条显微镜成像光路,可用于通过明场显微镜观察iSCAT激光周围的大范围区域,并通过荧光显微镜监测细胞活力。- 将一个LED光源(波长范围约为500 nm < λ < 580 nm)的输出端耦合至一个长工作距离的20倍/0.4数值孔径(NA)物镜,并在样品腔上方安装机械组件,以实现对LED输出光在样品上的聚焦和横向定位。
- 确保LED的输出光谱覆盖细胞死亡标记物(碘化丙啶(PI))的激发范围,且不干扰其荧光信号(λ > 600 nm)。必要时使用光学滤光片。
- 横向移动上方物镜,使上部(宽场)和下部(iSCAT)物镜共轴。可通过在下部物镜下方放置屏幕并最大化屏幕上透射的LED光强度来判断对准情况。放置一个波长为550 nm的短通二向色镜(SPDM),以分离透射的LED光与iSCAT激光光路。
- 使用一个8%反射/92%透射的分束镜(BS)将该光束分为两个通道。其中92%的透射光路用于荧光通道,8%的反射光路用于明场成像。
- 使用焦距f = 5 cm的消色差双合透镜,将明场通道成像至一个CMOS相机上。
- 使用焦距f = 5 cm的消色差双合透镜和波长λ = 600 nm的长通滤光片,将荧光通道成像至另一个CMOS相机上,以阻断激发光。 图4a 展示了包含所有成像通道的完整组装显微镜的示意图。
- 将一个LED光源(波长范围约为500 nm < λ < 580 nm)的输出端耦合至一个长工作距离的20倍/0.4数值孔径(NA)物镜,并在样品腔上方安装机械组件,以实现对LED输出光在样品上的聚焦和横向定位。
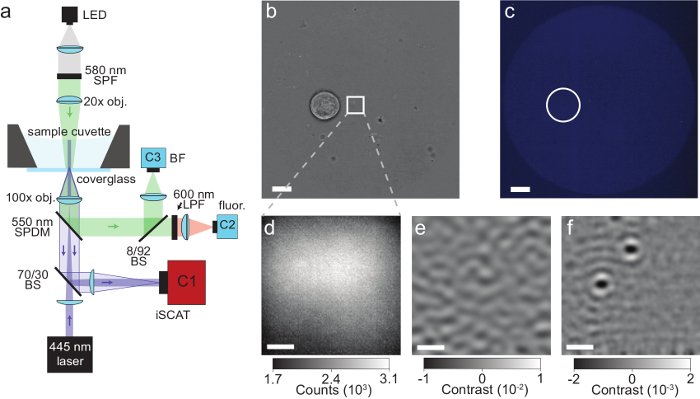
图4:单个细胞分泌蛋白的iSCAT显微成像。(a) 本方案中所述显微镜的示意图。详见第1节。缩写:LED,发光二极管;SPF,短通滤光片;obj,物镜;SPDM,短通二向色镜;BS,分束器;LPF,长通滤光片;BF,明场;fluor,荧光;C1-C3,相机1-3。(b) 一个Laz388单细胞的明场图像,该细胞位于iSCAT视场(以白色方框表示)约4 µm处。图像由相机C3拍摄,比例尺:10 µm。(c) 与(b)相同区域的荧光图像,细胞位置以白色圆圈标出。无荧光信号表明该细胞具有活性。图像由相机C2拍摄,比例尺:10 µm。(d) 曝光时间为80 µs的原始iSCAT相机图像快照。图像由相机C1拍摄。(e) 经如讨论部分所述的时空背景扣除后,同一区域的iSCAT图像。该图像是通过对1000帧连续原始图像(d)积分获得,最终帧时间为400 ms,显示了玻璃盖玻片的表面粗糙度。(f) 对应的差分iSCAT图像,显示了两种蛋白质在盖玻片上的结合事件。该图像是通过减去两个连续的滤波图像(e)构建而成。(d)、(e)和(f)中的比例尺:1 µm。本图改编自McDonald, M.P. et al.16。版权所有 2018 美国化学学会。请点击此处查看此图的放大版本。
- 设置计算机和软件。
- 将所有相机连接到计算机。安装相应的驱动程序包,并获取或编写用于控制相机的软件。
注意:高速采集需要合适的硬件。最低配置建议使用多核处理器、16 GB 内存、图像采集卡以及用于数据存储的固态硬盘。 - 在 CMOS 相机上观察 iSCAT 图像,并通过查找盖玻片上残留的灰尘或污物颗粒来确保图像处于焦点。验证该颗粒的图像为圆对称的点扩散函数(PSF)。
注意:导致点扩散函数非圆对称的主要原因是激光束未沿光轴直线进入物镜,而是以微小角度入射。可通过调节45°耦合镜的入射光束角度和位置来校正。 - 比较明场和荧光通道的相机图像。确保两者均处于焦点并显示相同区域。验证iSCAT激光的位置大致位于图像中心,并记录其位置以供后续参考。典型的相机图像参见图4b – 4f。
注意:使用细胞样本或荧光微珠来调节两个通道的焦点。可暂时移除荧光长通滤光片以调整系统。细胞常规成像的焦点应略高于iSCAT的焦平面。为在不移动物镜的情况下补偿此差异,可将相机从其在两个f = 5 cm透镜焦平面上的原始位置进行适当位移。 - 设置必要的相机参数。使用固定的帧率,并禁用软件增益和校正工具。
注意:以下参数被采用:iSCAT相机设置为5000帧每秒(fps),曝光时间为80 µs。如上所述,图像尺寸为128 × 128像素。明场和荧光相机均以全帧尺寸(1280 × 1024像素)运行。明场成像使用20 ms的曝光时间。荧光相机设置为750 ms曝光时间,连续采集5帧并累加形成一幅最终图像。明场和荧光图像以固定的20秒时间间隔采集。
- 将所有相机连接到计算机。安装相应的驱动程序包,并获取或编写用于控制相机的软件。
2. 实验准备
- 配制显微镜观察用储备培养基.
- 向975 mL RPMI 1640培养基中加入25 mL HEPES缓冲液(1 mol/L),得到终体积为1 L、浓度为25 mmol/L的HEPES溶液。或者,使用已含有HEPES的缓冲培养基。
注意:HEPES 用于在常温条件下测量时维持培养基的 pH 值(例如, 在培养箱外且无持续 CO2 供应)。 - 取实验所需量的溶液 aliquot,使其升温至室温。2 mL 培养基已足够。将剩余的储备液保存于 4 °C.
- 向975 mL RPMI 1640培养基中加入25 mL HEPES缓冲液(1 mol/L),得到终体积为1 L、浓度为25 mmol/L的HEPES溶液。或者,使用已含有HEPES的缓冲培养基。
- 准备显微镜比色皿。
注意:以下步骤描述的是用于一种自制样品 holder 的操作流程,该 holder 由一个铝制基板和一个丙烯酸比色皿组成,可固定盖玻片并将其与压电三维定位器耦合。也可使用市售的带玻璃底的无菌培养皿。
注意: 图5 展示了自制样品 holder 的照片。- 取一片新的显微镜盖玻片,用去离子水(DI-water)和乙醇冲洗,然后用氮气或加压空气吹干。
- 在氧气等离子体环境中(0.3 mbar 气压)以 500 W 射频功率清洗盖玻片 10 分钟。此步骤可去除表面所有有机杂质。
- 将丙烯酸比色皿浸入0.2 mol/L NaOH溶液中约10分钟进行清洗,然后用去离子水冲洗。
- 组装样品支架,并用塑料培养皿盖住,待实验需要时再使用。
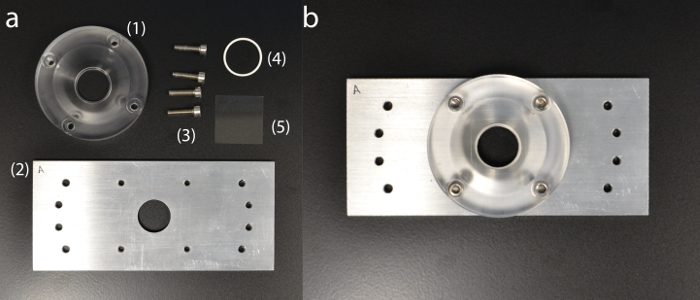
图5:自制样品支架。 (a) 样品支架组件:(1) 丙烯酸比色皿皿体;(2) 铝制底板;(3) 固定螺丝;(4) 硅胶O型圈;(5) 盖玻片。 (b) 完全组装好的样品支架。 请点击此处查看本图的放大版本。
- 准备显微镜。
- 打开iSCAT照明激光器、明场/荧光照明LED、相机以及采集计算机/软件。在物镜前的某个位置阻断激光束。
- 确保100X/1.46 NA物镜清洁。若不洁净,按照制造商指南使用镜头清洁纸和乙醇清洁物镜。
- 在显微镜物镜上滴加一滴浸油。
- 取样品支架(在第2.2节中组装完成),小心地将其安装在iSCAT显微镜的压电载物台上,使样品盖玻片位于物镜正下方中心位置。操作时需格外注意,避免损坏物镜镜头。使用拇指螺丝将装置固定在压电定位器上,同时确保不超过制造商规定的最大扭矩。
- 向比色皿中加入1 mL显微镜工作液原液(在第2.1节中制备)。
- 向介质中加入2滴碘化丙啶染料作为细胞死亡标记物16,22。
- 解除激光阻断,调节系统至对焦状态。首先,通过重复步骤1.2.3.–1.2.5.来确认物镜与盖玻片之间的距离正确(图2)。然后,使用压电载物台的z轴微调对焦。
- 确认光源、相机和软件的所有设置均正确无误。包括激光功率、LED亮度、相机帧率、相机曝光时间或软件保存路径等参数。
注意:以高帧率保存视频可能产生较大的文件。请确保计算机有足够的磁盘可用空间。 - 再次阻断激光束。显微镜现已准备就绪,可进行实验。
- 准备细胞。
注意:Laz388细胞20在含10%胎牛血清(FCS)、氨基酸、丙酮酸盐和抗生素的RPMI 1640培养基中培养。细胞在37 °C和5% CO2条件下孵育,并每2–3天传代并更换新鲜培养基23。- 从培养箱中取出细胞培养瓶,吸出含有约1 × 10⁶个细胞的培养基。为确定准确体积,使用血细胞计数板定量细胞培养浓度。
- 将细胞悬液与10 mL室温RPMI 1640培养基混合,以300 × g离心7分钟。
- 小心吸出并弃去上清液,确保浓缩的细胞沉淀不受扰动。
- 对浓缩的细胞沉淀重复步骤2.4.2.–2.4.3.。
- 将细胞重悬于0.5 mL显微镜工作液原液(在第2.1节中制备)中,并立即用于实验。
3. 分泌细胞的iSCAT显微成像
- 确保阻挡激光束,以防止细胞直接暴露于iSCAT激光光线下。
- 将细胞注入样品比色皿中。
- 将约3 µL细胞样品(按2.4节制备)略微偏离中心地注入样品比色皿中。轻轻将移液器吸头接触盖玻片,并缓慢注入细胞溶液。让细胞在盖玻片上自然沉降。
注意:使用小体积移液器吸头(10 µL)或长而柔韧的加样吸头。 - 确保细胞密度低于约每500 µm²一个细胞,以避免iSCAT激光视野周围区域中多个细胞的存在影响单细胞测量结果。
- 若细胞数量过少,重复步骤3.2.1,直至获得足够数量的细胞。
- 若细胞覆盖过于密集,可注入约20 µL额外的显微镜成像培养基,以使细胞在盖玻片上分散。
- 将约3 µL细胞样品(按2.4节制备)略微偏离中心地注入样品比色皿中。轻轻将移液器吸头接触盖玻片,并缓慢注入细胞溶液。让细胞在盖玻片上自然沉降。
- 使用压电位移器横向移动样品,使一个细胞靠近(约10 µm)iSCAT视场。注意细胞不得进入iSCAT视场,因为直接暴露于445 nm激光可能对细胞造成损伤。
- 利用明场和荧光图像定位细胞并验证其活性25。
注意:活细胞在明场图像中呈圆形且无荧光信号;而细胞死亡则表现为细胞内存在碘化丙啶,产生强荧光信号22。 - 解除iSCAT激光束的阻挡,并确保盖玻片表面仍处于焦点位置。封闭隔振光学平台,以最小化环境引起的漂移和声学耦合。
注意:可通过围绕光学平台设置厚重的光学帘或丙烯酸板实现上述隔离。 - 开始测量,同步采集iSCAT、明场和荧光相机的图像。通过软件自动化控制整个过程,以提高实验效率。定期检查细胞活性及系统的聚焦状态。
注意:根据激光强度、光学元件及相机曝光时间设置的不同,iSCAT激光可能对荧光相机造成干扰。若观察到此类现象,可在采集荧光图像期间暂时关闭iSCAT激光快门。
4. 数据分析
注意:实验数据本质上具有噪声,干涉散射成像(iSCAT)图像也不例外。典型的iSCAT测量中存在多种噪声来源,包括入射光源的波前畸变、盖玻片表面粗糙度以及相机噪声。下文介绍了一些通过后期处理来消除这些噪声来源的方法。此外,实验装置的横向机械不稳定性也会导致数据噪声,需在下文的讨论部分中加以说明和处理。所描述的分析均通过定制的MATLAB脚本完成。
- 通过使用二维傅里叶滤波器对原始数据进行滤波,排除高空间频率成分,以最小化相机噪声。滤波器的尺寸需要根据具体的实验配置进行调整(主要由系统的数值孔径决定)。
注意:图像中空间频率高于光学系统的特征来源于外部因素(例如相机读出噪声),可以忽略。 - 将图像从原始相机计数转换为iSCAT对比度。
注意:相机检测到的信号为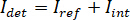 。iSCAT对比度定义为
 ,其中
 是参考光的强度,在本例中为盖玻片反射的部分,而
 是 与散射光强度(
 )之间的干涉信号。
- 通过计算不含目标粒子的特定帧的时间平均值,将信号分离为 和 。所得图像提供参考信号 。
注意:也可如后文讨论中所述,执行主动背景减除步骤。 - 根据
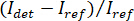 12,14,16 计算对比度。
- 通过计算不含目标粒子的特定帧的时间平均值,将信号分离为
- 通过将每一连续帧与其后续帧相减,生成滚动差分图像。
注意:由于盖玻片表面粗糙度和波前畸变产生的残余信号在连续帧中是恒定的,因此在此步骤中被有效去除。滚动差分消除了这些残余信号,仅保留相邻帧之间发生的蛋白质结合事件。这种动态背景减除方法具有优势,因为它对样品的长期漂移不敏感。 - 应用峰值搜索算法,检测并索引每一帧中的单个粒子,并确定其特定的对比度和位置。
- 利用步骤4.4中收集的信息,构建蛋白质结合事件的直方图,并通过已知蛋白质样品建立的校准曲线,将提取的对比度与蛋白质质量相关联14,24。
结果
iSCAT 显微镜的示意图如图4a所示。图4b、4c和4d分别为典型的明场、荧光和原始iSCAT图像16。图4e和4f展示了背景去除和差分后处理的结果;在图4f中,两个吸附的蛋白质以衍射极限的光斑形式可见。图6显示了在125秒内检测到的蛋白质数量分布直方图。这些数据通过对采集的图像应用峰值搜索算法,统计结合事件并记录其对比度而获得16。共检测到503个蛋白质。
接下来,通过与纯化蛋白质溶液的参考测量结果进行比较,或通过在功能化玻璃表面进行额外测量,来鉴定分泌的物质。14,16因此,iSCAT 数据能够在亚秒尺度上直接可视化细胞分泌动力学16例如,我们先前发现,IgG 抗体是 Laz388 分泌组的主要成分,其释放速率为每秒约 100 个分子。16此外,细胞还会分泌其他分子量范围在100 kDa - 1000 kDa的颗粒16所述方法可进一步应用 例如, 研究细胞周围分泌物的空间浓度梯度16,或确定细胞裂解的时间动力学16.
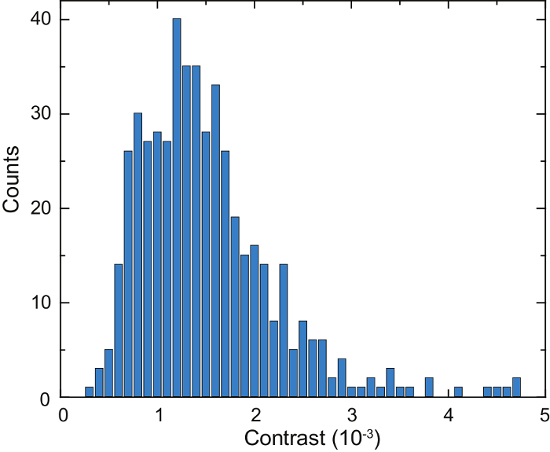
图6:单个Laz388细胞分泌蛋白的定量分析。 该直方图显示了在125秒时间范围内检测到的蛋白质。对比度值被累积在宽度为1 × 10⁻⁴ 的对比度区间内(蓝色柱状图)。在此项测量中,共计数到503个单独的蛋白质分子。该实验重复了10次,结果相似。本图改编自McDonald, M.P. et al.16。版权所有 2018 美国化学会。 请点击此处查看此图的放大版本。
讨论
获得有用iSCAT数据最关键的方面之一,是能够找到盖玻片表面的正确焦平面,并且在长时间内保持该位置。若无法做到这一点,将导致点扩散函数(PSF)变宽、iSCAT信号减弱,以及在动力学分析中出现与漂移相关的伪影。事实上,在洁净、裸露的盖玻片表面上确定焦平面并非易事,因为表面特征在强参考光束背景之下无法被观察到(见图4d)。
原始的iSCAT图像常受到来自激发光源波前畸变的背景信号干扰,这可能会妨碍确定正确的成像平面。主动波前扣除是一种有效解决此问题并在测量过程中持续监控iSCAT焦点的方法16。其中一种实现方式是通过空间样品调制。简而言之,函数发生器向压电载物台的外部控制端口施加一个50 Hz的方波信号,从而在样品上产生相应频率的空间调制(振幅为290 nm)。相机同步触发采集,并利用锁相原理对采集到的图像进行组合,最终获得经波前补偿的图像14,16。所得图像通常显示盖玻片的表面粗糙度(图4e)。玻璃表面清洁后残留的微小结构可用于辅助显微镜聚焦。该主动背景扣除步骤所使用的参数可根据帧率、曝光时间或硬件条件进行调整。
如上所述,建议在iSCAT装置(步骤1.2.1)中使用高质量的分束器,因为由薄平面分束器引起的成像伪影(如重影或干涉)会影响图像并干扰测量。图7展示了高质量与低质量分束器之间的对比。两张原始iSCAT图像均显示盖玻片上含有少量残留颗粒的相同区域。两幅图像使用相同的iSCAT装置采集,仅更换了分束器。图7a显示的是使用较厚(5 mm)、带抗反射涂层且呈楔形设计的分束器时,相机所捕获的图像。由于楔形结构,分束器背面反射的光束与前表面反射光束呈反平行,不会进入物镜,因此不会产生干涉伪影。图7b显示的是样品相同视野,但此次使用的是较薄(1 mm)的平面分束器。来自分束器前表面和后表面的两束反射光相互平行,并共同传播至相机,干涉伪影清晰可见。

图7:使用高质量与低质量分束器所获得的iSCAT图像的比较。 (a) 使用5 mm厚、带抗反射涂层且具有楔形设计的分束器所获得的原始iSCAT图像。 (b) 使用1 mm厚平面分束器对同一区域获得的原始iSCAT图像。两种分束器具有相同的分光比(50%反射,50%透射)。在使用1 mm厚平面分束器所获得的图像中,可明显观察到由菲涅尔反射引起的干涉伪影。比例尺:2 µm。 请点击此处查看该图的放大版本。
在本方案中,我们描述了一种用于iSCAT的宽场照明方案,因其速度快、易于实现,并可在大面积上实现并行检测14。另一种常用方法是使用声光偏转器(AODs),将共焦光束扫描穿过样品12,17。该方法无需高质量的波前,但实验复杂度高于传统的宽场成像。此外,共焦照明的速度受限于AODs的响应速度。根据所需的实验参数,原则上可采用共焦或宽场照明方案来检测活细胞分泌的单个蛋白质。
如本方案所述,必须尽量减少显微镜样品台的横向机械波动。即使样品位置发生纳米级的偏移,也可能导致连续相机帧之间的变化,并在差分图像中引入显著的额外噪声。因此,建议使用机械稳定性良好的显微镜载物台和带阻尼的光学平台(步骤 1.1.1),并在实验过程中用光学遮光帘或遮光板覆盖整个装置(步骤 3.5)。
对于长期测量,也可考虑采用主动聚焦稳定方案。该方案将第二束激光以全内反射(TIR)方式引入显微镜,并成像至一个四象限光电二极管上。系统焦距的变化会转化为TIR激光光斑在四象限二极管上的横向位移,该位移信号可用于主动反馈回路,以控制压电载物台的z轴位置26。由此可消除长期的垂直漂移效应。
可根据特定的实验需求,对上述技术进行多种修改和扩展。例如,可采用商用的显微镜载物台培养箱,并将其轻松整合到iSCAT显微镜中,以实现对细胞的长期成像。此外,还可结合其他技术以补充iSCAT成像,如共聚焦显微镜或全内反射荧光显微镜17。为适应所研究的体系,iSCAT分泌测量可在其他细胞培养基中进行,例如DMEM或DPBS,但应避免使用酚红pH指示剂,因其可能因吸收激光而干扰实验。此外,诸如胎牛血清(FCS)或人血小板裂解物(hPL)等添加剂含有可干扰iSCAT检测的蛋白质。根据实验所需的灵敏度,这些添加剂应从显微成像介质中去除。
iSCAT 依赖于分析物散射光的能力——这是所有蛋白质固有的特性,因此本质上是非特异性的。然而,由于 iSCAT 信号与蛋白质质量呈线性关系,仍可在一定程度上实现特异性14,27,28。这使得可以使用标准蛋白质样品(如牛血清白蛋白(BSA)和纤维蛋白原)对 iSCAT 系统进行校准14,27,28。事实上,最近 Young et al.28 在 Piliarik 与 Sandoghdar14 的工作基础上进一步证明,iSCAT 可用于测定小至链霉亲和素(53 kDa)的蛋白质的分子量,质量分辨率达 19 kDa,准确度约为 5 kDa。若干常规方法可通过提供额外的特异性来进一步补充 iSCAT。例如,酶联免疫吸附测定(ELISA)和/或其他表面修饰可限制蛋白质结合事件,从而仅检测目标蛋白质16。
在本实验方案中,我们描述了如何利用干涉散射显微镜(iSCAT)以亚秒级时间分辨率在单蛋白水平上研究细胞分泌物16。该技术具有普适性,可在任何商用或自行搭建的显微镜系统上实现。与单分子荧光方法相比,该方法不受光漂白或闪烁效应的影响,同时仍具备单蛋白检测灵敏度。这些特性使iSCAT成为生物传感与显微成像领域中一种强大的工具。未来的研究应用将聚焦于揭示复杂的细胞相互作用,例如细胞对刺激的免疫应答或细胞间通讯过程。
披露
作者无任何利益冲突需要披露。
致谢
本工作由马克斯·普朗克学会、亚历山大·冯·洪堡讲席教授职位以及德国研究基金会(CRC 1181)资助。我们感谢埃尔朗根大学医院的Stefanie Schaffer提供Laz388细胞并进行有益的讨论。我们感谢马克斯·普朗克研究所的Simone Ihloff和Maksim Schwab提供技术支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 物品/设备 | |||
| 100x / 1.46 NA 物镜 | Zeiss | 420792-9800-000 | alpha Plan Apochromat 油浸 |
| 20x / 0.4 NA 物镜 | Leica | 566049 | N Plan |
| 压电载物台 | PI | P-517k020 | 三轴载物台,行程范围为 100×100×10µm |
| 二极管激光器(445 nm) | Lasertack | PD-01236 | |
| 光学元件/光机械元件 | Thorlabs/Newport | - | 透镜、反射镜、支架、安装座 |
| 针孔 | Thorlabs | P30H | |
| LED 光源 | Thorlabs | MCWHL5 | |
| 短通滤光片(580 nm) | Omega Optical | 580SP | 用于调节 LED 光谱以实现荧光激发 |
| 长通滤光片(500 nm) | Thorlabs | FEL0500 | 用于调节 LED 光谱以实现荧光激发 |
| 70R/30T 分束器 | Newport | 20Q20BS.1 | |
| 经济型分束器 | Thorlabs | EBS1 | 用于条纹效应的比较 |
| 楔形板分束器 | Thorlabs | BSW26 | 用于条纹效应的比较 |
| 短通二向色镜(550 nm) | Edmund Optics | 66249 | |
| 8R/92T 分束器 | Thorlabs | BP108 | |
| CMOS 相机 | Photonfocus | MV1-D1024E-160-CL | 用于 iSCAT 采集 |
| CMOS 相机 | Mightex | SCE-B013-U | 用于明场/荧光采集 |
| 长通滤光片(600 nm) | Thorlabs | FELH0600 | |
| 计算机 | Fujitsu Siemens | - | Core i7 处理器,16 GB 内存,固态硬盘 |
| 采集软件 | LabVIEW | - | LabVIEW 2016 套件 |
| 分析软件 | Matlab | - | Matlab 2014 套件 |
| 等离子清洗机 | Diener | Diener pico | |
| 培养箱 | Binder | Model CB | |
| 离心机 | Eppendorf | 5810R | |
| 试剂/材料 | |||
| RPMI 1640 培养基 | Gibco | 11835063 | 不含酚红 |
| HEPES 缓冲液(1M) | Sigma Aldrich | 59205C | |
| 盖玻片 | Marienfeld | 107052 | |
| 玻璃底培养皿 | ibidi | 81158 | |
| 荧光微球 | Invitrogen | F8821 | 用于校准 |
| Immersol 浸油 | Zeiss | 444960 | |
| 碘化丙啶染色剂 | Invitrogen | R37108 | |
| 小型移液器吸头 | Eppendorf | 30075005 | |
| 柔性移液器吸头 | Eppendorf | 5242956003 | |
| 乙醇,99.8% | Fisher Scientific | E/0650DF/15 | |
| 氢氧化钠颗粒 | Sigma Aldrich | 221465 | 用于配制 0.2M NaOH 溶液 |
参考文献
- Hathout, Y. Approaches to the study of the cell secretome. Expert Review of Proteomics. 4 (2), 239-248 (2007).
- Pandey, A., Mann, M. Proteomics to study genes and genomes. Nature. 405 (6788), 837-846 (2000).
- Makridakis, M., Vlahou, A. Secretome proteomics for discovery of cancer biomarkers. Journal of Proteomics. 73 (12), 2291-2305 (2010).
- Bantscheff, M., Schirle, M., Sweetman, G., Rick, J., Kuster, B. Quantitative mass spectrometry in proteomics: a critical review. Analytical and Bioanalytical Chemistry. 389 (4), 1017-1031 (2007).
- MacBeath, G. Protein microarrays and proteomics. Nature Genetics. 32, 526-532 (2002).
- Seder, R. A., Darrah, P. A., Roederer, M. T-cell quality in memory and protection: implications for vaccine design. Nature Reviews Immunology. 8 (4), 247-258 (2008).
- Moerner, W. E., Fromm, D. P. Methods of single-molecule fluorescence spectroscopy and microscopy. Review of Scientific Instruments. 74 (8), 3597-3619 (2003).
- Borisov, S. M., Wolfbeis, O. S. Optical biosensors. Chemical Reviews. 108 (2), 423-461 (2008).
- Dantham, V. R., Holler, S., Barbre, C., Keng, D., Kolchenko, V., Arnold, S. Label-Free Detection of Single Protein Using a Nanoplasmonic-Photonic Hybrid Microcavity. Nano Letters. 13 (7), 3347-3351 (2013).
- Zijlstra, P., Paulo, P. M. R., Orrit, M. Optical detection of single non-absorbing molecules using the surface plasmon resonance of a gold nanorod. Nature Nanotechnology. 7 (6), 379-382 (2012).
- Rickgauer, J. P., Grigorieff, N., Denk, W. Single-protein detection in crowded molecular environments in cryo-EM images. eLife. 6, e25648(2017).
- Lindfors, K., Kalkbrenner, T., Stoller, P., Sandoghdar, V. Detection and Spectroscopy of Gold Nanoparticles Using Supercontinuum White Light Confocal Microscopy. Physical Review Letters. 93 (3), 037401(2004).
- Jacobsen, V., Stoller, P., Brunner, C., Vogel, V., Sandoghdar, V. Interferometric optical detection and tracking of very small gold nanoparticles at a water-glass interface. Optics Express. 14 (1), 405(2006).
- Piliarik, M., Sandoghdar, V. Direct optical sensing of single unlabelled proteins and super-resolution imaging of their binding sites. Nature Communications. 5, 4495(2014).
- Roux, K. H. Immunoglobulin Structure and Function as Revealed by Electron Microscopy. International Archives of Allergy and Immunology. 120 (2), 85-99 (1999).
- McDonald, M. P., et al. Visualizing Single-Cell Secretion Dynamics with Single-Protein Sensitivity. Nano Letters. 18 (1), 513-519 (2018).
- Kukura, P., Ewers, H., Müller, C., Renn, A., Helenius, A., Sandoghdar, V. High-speed nanoscopic tracking of the position and orientation of a single virus. Nature Methods. 6 (12), 923-927 (2009).
- Ortega Arroyo, J., Cole, D., Kukura, P. Interferometric scattering microscopy and its combination with single-molecule fluorescence imaging. Nature Protocols. 11 (4), 617-633 (2016).
- Spindler, S., et al. Visualization of lipids and proteins at high spatial and temporal resolution via interferometric scattering (iSCAT) microscopy. Journal of Physics D: Applied Physics. 49 (27), 274002(2016).
- Lazarus, H., et al. Characterization of a unique cell line (LAZ 221) from human acute lymphocytic ("null" cell) leukemia. Cancer Research. 38 (5), 1362-1367 (1978).
- Mackensen, A., et al. Evidence for in situ amplification of cytotoxic T-lymphocytes with antitumor activity in a human regressive melanoma. Cancer Research. 53 (15), 3569-3573 (1993).
- Crowley, L. C., Scott, A. P., Marfell, B. J., Boughaba, J. A., Chojnowski, G., Waterhouse, N. J. Measuring cell death by propidium iodide uptake and flow cytometry. Cold Spring Harbor Protocols. 2016 (7), 647-651 (2016).
- Freshney, R. I. Primary Culture. Culture of Animal Cells. , (2005).
- Dahmardeh, M., et al. Unpublished data. , (2018).
- Majno, G., Joris, I. Apoptosis, oncosis, and necrosis. An overview of cell death. American Journal of Pathology. 146 (1), 3-15 (1995).
- Bellve, K., Standley, C., Lifshitz, L., Fogarty, K. Design and Implementation of 3D Focus Stabilization for Fluorescence Microscopy. Biophysical Journal. 106 (2), 606a(2014).
- Liebel, M., Hugall, J. T., Van Hulst, N. F. Ultrasensitive Label-Free Nanosensing and High-Speed Tracking of Single Proteins. Nano Letters. 17 (2), 1277-1281 (2017).
- Young, G., et al. Quantitative mass imaging of single biological macromolecules. Science. 360 (6387), 423-427 (2018).
重印与许可
