本文介绍了从法氏囊中分离鸡原代囊细胞、用传染性法氏囊病病毒对细胞进行培养和感染,以及病毒复制的定量分析。
方法文章
一个 离体 研究传染性法氏囊病毒致病机制的鸡原代法氏囊细胞培养模型
* These authors contributed equally
本文内容
摘要
摘要
传染性法氏囊病病毒(IBDV)是一种对家禽业具有重要经济影响的双RNA病毒。该病毒感染B细胞,导致感染禽类出现发病率、死亡率升高以及免疫抑制。本研究描述了从法氏囊中分离鸡原代法氏囊细胞的方法,以及这些细胞的培养、IBDV感染和病毒复制的定量检测。添加鸡CD40配体后,在六天的培养期间细胞增殖显著增加了四倍,并显著提高了细胞活力。两种IBDV毒株——一种适应细胞培养的D78毒株和一种高致病性毒株UK661——均能在离体(ex vivo)细胞培养体系中有效复制。该模型将有助于阐明细胞对IBDV感染的应答机制,并可减少IBDV致病机制研究中所需感染禽只的数量。此外,该模型还可拓展用于研究其他病毒,并适用于不同鸟类物种。
引言
全球家禽产业对于保障不断增长的人口获得充足食物至关重要。然而,免疫抑制威胁着食品安全和受感染禽类的福利,并对产业构成关键的经济挑战。鸡群中大多数免疫抑制病例由免疫抑制性病毒感染引起,其中主要损害获得性免疫的病毒对T淋巴细胞和B淋巴细胞具有趋向性1。在鸟类中,大多数B细胞位于一个称为法氏囊(bursa of Fabricius, BF)的器官内。B细胞易受多种免疫抑制病毒的感染,包括引起细胞裂解的病毒,如传染性法氏囊病病毒(IBDV)和马立克氏病病毒(MDV);以及引起细胞转化的病毒,如禽白血病病毒(ALV)和网状内皮组织增生病病毒(REV)。
为了制定更有效的感染防控策略,必须明确病毒与鸡B细胞之间的相互作用。然而,当B细胞从禽类体内分离后,在体外难以良好存活 离体 培养2,使得对传染性法氏囊病病毒(IBDV)与鸡B细胞相互作用或禽白血病病毒(ALV)及网状内皮增生症病毒(REV)感染后早期事件的深入分析变得困难。因此,许多宿主细胞与病毒之间的相互作用已被研究 体内3,4,5,6,7,8,9,10尽管这些研究具有启发性,但涉及使用感染后可能患上严重疾病的鸟类。
CD40配体是一种能够诱导B细胞增殖的分子11。在鉴定出编码鸡CD40L(chCD40L)的基因后,研究人员构建了一种可溶性融合蛋白,将其加入培养基中可诱导鸡原代B细胞在体外(ex vivo)发生增殖12。2015年,研究发现以这种方式培养的B细胞能够支持马立克氏病病毒(MDV)的复制2;2017年,我们及其他研究者发现,经chCD40L刺激的原代法氏囊细胞可用于研究传染性法氏囊病病毒(IBDV)的复制过程13,14。本文描述了鸡原代法氏囊细胞的分离与培养、IBDV感染细胞的方法以及病毒复制的定量检测。尽管本文以法氏囊(BF)为背景介绍该方法,但该技术也可用于分离和培养其他淋巴器官的细胞。
方案
所有涉及动物的操作必须事先获得伦理批准。在我们机构,所有操作均在内部动物福利与伦理审查委员会(AWERB)批准后,依照英国《1986年动物(科学程序)法》以及内政部机构许可、个人许可和项目许可的规定进行。
1. chCD40L的制备
- 在含有10%热灭活胎牛血清(FCS)和1 µg/mL嘌呤霉素的1×罗斯威尔公园纪念研究所(RPMI)培养基中,于37 °C、5% CO2条件下培养稳定表达可溶性chCD40L构建体的HEK 293-msCD8-CD40L细胞。
注意:签署适当的材料转移协议后,可从Pirbright研究所获得这些细胞。 - 当细胞融合时以1:5的比例传代。每次传代时收集上清液(含可溶性chCD40L构建体),在400 × g下离心5分钟以去除细胞碎片,并将上清液储存在4 °C。
- 当收集到500 mL上清液后,合并液体并通过0.2 µm滤器进行过滤除菌。
- 使用截留分子量为10 K的离心式蛋白浓缩器,按照制造商说明书浓缩上清液。从每根浓缩柱中提取浓缩后的上清液,合并后通过0.22 µm注射器滤器再次过滤除菌。
- 通过将chCD40L溶液在1×Iscove改良Dulbecco培养基(IMDM)(见步骤2.4)中进行系列稀释,并在不同稀释度条件下培养原代腔上囊细胞,连续一周每日检测细胞数量及存活率,以确定实验中使用的最终浓度。
注意:能够维持细胞增殖和存活率处于适当水平的最低浓度即为该检测中应使用的浓度,通常在1:20至1:50之间。
2. 鸡原代法氏囊细胞分离用溶液的制备
- 通过将10 mL含钙(Ca)的10x Hanks’平衡盐溶液(HBBS)加入90 mL无菌H2O和0.47 µL 7.5% NaHCO3中,制备1x HBBS含钙溶液。
- 用1x HBBS含钙溶液将胶原酶D配制成8 mg/mL的储存液。使用0.2 µM滤器过滤除菌。
注意:建议分装成5 mL每份,于-20 °C冷冻保存。 - 制备添加5%热灭活胎牛血清(hi FCS)的1x RPMI培养基。将培养基储存在4 °C。
- 制备500 mL 1x IMDM培养基,添加8%热灭活胎牛血清(hi FCS)、2%热灭活鸡血清、50 mM β-巯基乙醇、50 µL胰岛素-转铁蛋白-亚硒酸钠溶液以及1%青霉素/链霉素。将培养基储存在4 °C。
注意:上述所有溶液应提前配制。 - 制备1x HBBS含钙溶液。将溶液置于冰上保存。
- 通过将10 mL不含钙的10x HBBS加入90 mL无菌H2O、0.47 µL 7.5% NaHCO3以及EDTA(终浓度为10 mM),制备1x HBBS不含钙溶液。将溶液置于冰上保存。
- 将5 mL胶原酶D储存液加入13 mL含钙的HBBS中,总体积为18 mL,制备1x胶原酶D工作液。将溶液置于冰上保存。
注意:步骤2.5–2.7中提到的溶液需在实验当天配制。
3. 法氏囊(BF)的切除
- 在适当且经批准的设施中饲养并孵化鸡,并在2–3周龄时以人道方式处死。
注意:使用机构批准的处死方法。 - 采用无菌技术从每只鸡中采集法氏囊(BF)。
注意:使用机构现有的操作规程。- 将尸体置于仰卧位,用70%乙醇水溶液对覆盖腹部和胸部的皮肤及羽毛进行消毒。
- 使用灭菌的手术刀或剪刀,在下腹部做腹侧正中切口。
- 找到法氏囊,其连接于结肠尾段,位于泄殖腔的头侧。
- 使用灭菌的镊子和剪刀,将法氏囊从结肠上剪下。注意避免刺破肠道。
- 将器官置于冷PBS中,并冰上运输至实验室。
注意:器官收获后应尽快分离原代细胞。
4. 鸡原代腔上囊细胞的分离
- 在生物安全柜中操作,用30 mL冷PBS至少清洗胸腺组织3次。
- 将组织转移至培养皿(直径92 mm,高21 mm),加入5 mL 1×胶原酶D溶液。
- 使用无菌剪刀或手术刀片,将胸腺组织切成直径小于5 mm的小块。
- 在37 °C下孵育组织,期间定期轻柔振荡,持续30分钟。
注意:胶原酶溶液将开始消化组织。 - 使用无菌巴斯德吸管反复吸取混合液,以促进组织解离。如有必要,将组织进一步切碎。
- 向组织中再加入5 mL 1×胶原酶D溶液,并在37 °C下继续孵育,期间定期轻柔振荡,持续30分钟。
- 重复步骤4.6和4.7,直至组织完全消化。
注意:会残留一些无法进一步溶解的小颗粒。 - 将细胞悬液通过100 µm细胞滤网,收集至20 mL不含钙离子的1×HBBS中。
- 以400 × g 离心5分钟,收集细胞。
- 弃去上清液,将沉淀重悬于10 mL含5%胎牛血清的1×RPMI培养基中。
- 将10 mL细胞悬液小心铺在5 mL含多蔗糖和泛影酸钠的密度梯度介质上方,或在10 mL细胞悬液下方小心加入5 mL密度梯度介质,确保两层之间形成清晰界面。
- 在4 °C下以900 × g 离心20分钟。离心时调低或关闭刹车功能。
注意:细胞应在细胞悬液与密度梯度介质之间的界面处形成条带。 - 使用无菌巴斯德吸管小心吸取细胞条带,转移至冷PBS中。通过以400 × g 离心5分钟并重悬于冷PBS中,重复洗涤细胞3次。
5. 鸡原代法氏囊细胞的培养
- 将细胞悬液在400 × g 条件下离心5分钟,并重悬于1×完全IMDM培养基中。
- 取部分细胞悬液,加入台盼蓝溶液,计数拒染台盼蓝的活细胞数量,确定细胞总数及活率百分比。
- 将细胞悬液在400 × g 条件下离心5分钟,然后重悬于完全IMDM培养基中,该培养基需添加1:20稀释的鸡CD40L,细胞密度为1 × 10⁷ 个细胞/mL。对含有chCD40L的浓缩上清液进行滴定,以确定最佳稀释比例,通常在1:10至1:50范围内。
- 将细胞置于37 °C条件下,在96孔或24孔板中培养48–72小时。建议使用圆底96孔板,优于平底板。
注意:细胞也可在40 °C条件下培养
6. 传染鸡原代法氏囊细胞与传染性法氏囊病病毒(IBDV)
- 分离后48–72小时,解冻一份病毒样品,涡旋混匀,并置于冰上保存。
- 重悬原代法氏囊细胞,取10 µL细胞悬液,加入10 µL台盼蓝溶液,测定细胞数量及活率百分比。
- 用1×完全IMDM培养基将病毒稀释至适当的感染复数(MOI),制备病毒接种液,并涡旋混匀。
- 将细胞悬液在400 × g 条件下离心5分钟。
- 弃去上清液,将细胞重悬于病毒接种液中。
- 将细胞悬液在37 °C孵育1小时,期间定期轻轻振荡。
- 将细胞悬液在400 × g 条件下离心5分钟,弃去病毒接种液,并用1×完全IMDM培养基洗涤细胞。
- 将细胞悬液在400 × g 条件下离心5分钟,弃去上清液,然后将细胞重悬于补充有鸡CD40L的完全IMDM培养基中,细胞密度为1 × 10⁷ 个细胞/mL。
- 将细胞在96孔或24孔板中于37 °C培养。
注意:细胞也可在40 °C培养。
7. 鸡原代法氏囊细胞中传染性法氏囊病病毒复制的定量分析
- 在感染后预定的时间点,重悬细胞,转移至适当的离心管中,在400 × g 条件下离心5分钟,收集上清液,采用空斑实验或根据Reed-Muench方法的TCID50实验进行病毒滴度测定15。
- 用1 mL PBS洗涤细胞,随后可选择使用针对IBDV的特异性抗体进行免疫染色,或使用适当的试剂盒提取RNA(遵循制造商说明书),并使用针对IBDV基因的特异性引物进行逆转录定量聚合酶链式反应(RT-qPCR)(正向引物:GAGGTGGCCGACCTCAACT;反向引物:GCCCGGATTATGTCTTTGAAG)。应以模拟感染的细胞培养物作为对照。
结果
鸡原代法氏囊细胞可在鸡 CD40L 存在下进行培养
当在可溶性 chCD40L 存在下培养鸡原代腔上囊细胞时,细胞数量在 6 天内从 9.02 × 10⁵ 增加到 3.63 × 10⁶ 个/mL,增长了四倍,显著高于无 chCD40L 时的情况(p <0.05)(图 1A)。细胞活力也显著提高,例如在培养第 3 天,无 chCD40L 时细胞活力为 25%,而在 chCD40L 存在时提高至 48%(p <0.05)(图 1B)13。
鸡原代法氏囊细胞可支持细胞培养适应株和高致病毒株 IBDV 的复制
假感染和感染的细胞培养物在感染后18小时进行固定,用针对IBDV VP2的单克隆抗体及偶联Alexa Fluor 488的二抗进行标记,并用DAPI复染。感染细胞在细胞核周围显示出绿色荧光信号(图2A),符合IBDV存在于细胞质中的特征。该现象在两种IBDV毒株中均可见,分别为适应细胞培养的D78毒株和高致病性UK661毒株(图2A)。在感染后5、18、24和48小时,从感染的培养物中提取RNA,并使用针对IBDV VP4基因保守区域的特异性引物进行RT-qPCR分析。VP4的表达水平首先归一化至持家基因TBP,再通过ΔΔCt法计算相对于假感染样本的倍数变化。结果显示,D78毒株感染48小时后VP4表达量达到16,603拷贝,UK661毒株感染48小时后达到38,632拷贝。综上所述,这些数据表明鸡原代法氏囊细胞能够支持适应细胞培养的和高致病性IBDV毒株的复制13。
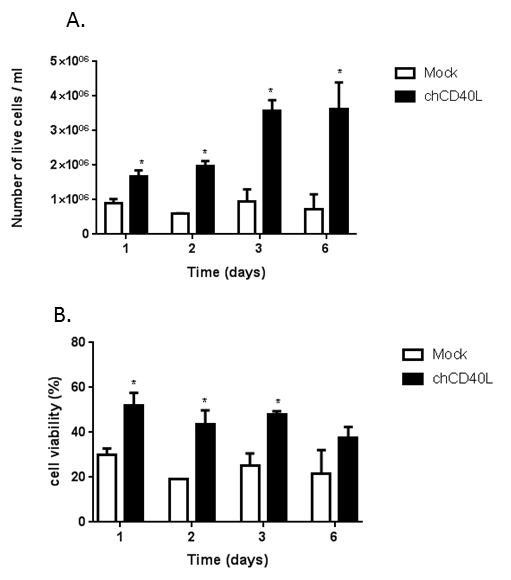
图1:鸡原代腔上囊细胞可在鸡CD40L存在条件下进行培养。 鸡原代腔上囊细胞在有(黑色柱)或无(白色柱)chCD40L的条件下进行培养。(A) 感染后指定时间点的活细胞数量,以及(B) 可行细胞所占百分比。所示数据代表至少三次重复实验的结果,误差线表示均值的标准差,统计学显著性通过配对Student t-检验在每个时间点进行分析,* p <0.05。本图经Dulwich et al.13许可修改。
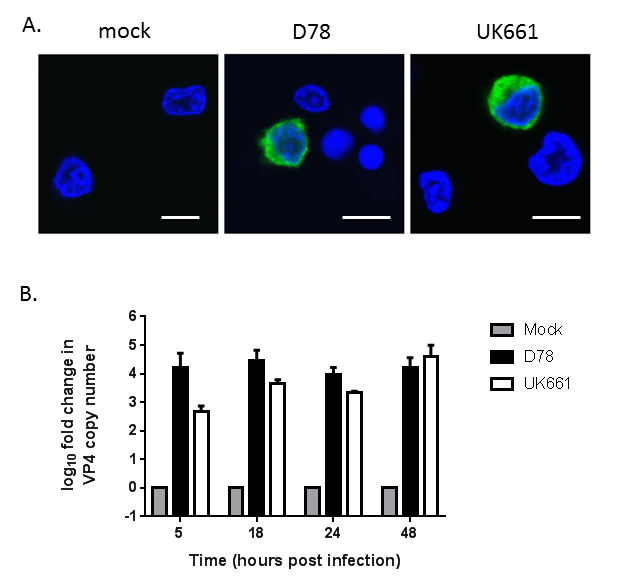
图 2:鸡原代法氏囊细胞能够支持细胞培养适应株和高致病性毒株传染性法氏囊病病毒(IBDV)的复制。 (A)鸡原代法氏囊细胞进行模拟感染或分别感染 D78 或 UK661 毒株,取各培养样本固定后标记并成像:IBDV VP2 蛋白显示为绿色,细胞核为蓝色。比例尺 = 7 µm。(B)在指定时间点提取感染后 RNA,经逆转录后,通过定量 PCR 扩增 IBDV VP4 基因的保守区域。VP4 拷贝数的 log10 倍数变化经 TBP 看家基因归一化处理,并依据 2-ΔΔCT 方法相对于模拟感染样本进行表达。所示数据来自至少三次重复实验的代表性结果,误差线表示均值的标准差。本图经 Dulwich et al.13 许可修改。
讨论
本研究中,我们描述了鸡原代法氏囊细胞的成功培养 离体 在可溶性 chCD40L 存在的条件下,证明这些细胞能够支持减毒株和高致病毒株 IBDV 的复制。这 离体 该模型可用于确定细胞对传染性法氏囊病病毒(IBDV)感染的反应方式13,相较于后者具有明显优势 体内 和 体外 研究。
在采集法氏囊(BF)时,关键是要避免刺破肠道,以防细菌污染分离的法氏囊细胞。此外,器官采集后应尽快分离原代细胞,以减少细胞死亡。该技术的一个局限性是需要使用chCD40L;然而,Soubies 等人的研究表明,使用佛波醇12-十四烷酸酯13-乙酸酯(PMA)替代chCD40L以延长法氏囊细胞的存活时间14,可能使该模型被更多实验室采用。上述方案通过将原代B细胞在该分子的系列稀释浓度中培养,并观察细胞增殖和存活情况,从而经验性地确定chCD40L的最佳浓度。对该方案的一个可能改进是纯化chCD40L分子,并将其以特定浓度添加至细胞培养基中,以避免批次间的差异。
体内研究表明,感染传染性法氏囊病毒(IBDV)后,法氏囊(BF)中参与促炎性细胞因子反应、I型干扰素(IFN)反应以及细胞凋亡相关基因的表达水平会上调5,9,10。然而,感染后会有大量炎性细胞和效应T细胞浸润进入BF,这些细胞所表达的基因与被感染的B细胞群体存在差异9。因此,难以准确解析被感染细胞对IBDV的具体反应。为解决这一问题,一些研究团队已对体外培养条件下感染IBDV的细胞转录响应进行了表征16,17,18,19,20。这些体外研究具有感染复数(MOI)明确、感染后时间点可控的优势。然而,目前的体外研究通常仅在成纤维细胞16,17,20或树突状细胞18中开展。尽管这些研究在一定程度上揭示了宿主细胞与IBDV之间的相互作用,但目前普遍认为B细胞的感染在IBDV致病机制中起关键作用,因此不能过度解读上述模型所得数据的适用性。在我们建立离体法氏囊细胞培养模型之前,仅有一项研究报道了B细胞对IBDV感染的细胞反应19;但该研究使用的是因感染禽白血病病毒(ALV)而永生化的B细胞系,限制了其结论的可靠性。相比之下,本文所描述的IBDV离体感染模型使研究人员能够在保留体外研究优势(如明确的MOI和感染后时间点)的同时,研究病毒与其靶向宿主细胞之间的相互作用。由于原代法氏囊细胞来源于未感染的BF组织,培养体系中不存在炎性细胞或T细胞。我们已在标准条件下通过流式细胞术证实,经chCD40L刺激后,97%的细胞群体表达B细胞标志物Bu-1(数据未显示)。鉴于仍有3%的细胞为Bu-1阴性,未来值得探究这些细胞是否可被IBDV感染,并进一步分析其基因表达特征及其在致病过程中的潜在作用。
我们预计 离体 鸡原代腔上囊细胞培养模型还可拓展用于研究感染鸡的其他嗜B细胞病毒(如ALV或REV)的宿主细胞-病毒相互作用,也可进一步推广至其他禽类物种。例如,鸭或火鸡)。培养原代法氏囊细胞的能力 离体 也使得在无需感染鸟类的情况下研究这些病毒引起的发病机制和免疫抑制成为可能。 体内 研究导致显著的发病率,这将对科研中动物使用的替代、优化和减少产生重大影响。
总之, 离体 此处描述的鸡原代法氏囊细胞培养模型有望深化对禽类B细胞嗜性病毒与其宿主细胞相互作用机制的理解,同时减少实验所用禽类的数量。 体内 感染研究。该技术可应用于多种淋巴器官、多种病毒,以及潜在的多种鸟类物种,使其成为一种有吸引力的模型,有助于禽类病毒学和免疫学领域的研究。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢皮尔布赖特研究所动物服务团队在鸟类孵化、饲养和处死方面提供的专业技术,以及Caroline Holt在无菌摘除法氏囊方面的专业技能。A.B. 的研究由生物技术和生物科学研究理事会(BBSRC)资助。 通过 资助编号 BBS/E/I/00001845,K.D. 由英国生物技术和生物科学研究生理事会(BBSRC)资助 通过 学生奖学金BBS/E/I/00002115,A.A.由国家替代、优化与完善动物实验中心(National Centre for the Replacement, Refinement)资助 & 动物研究中的动物数量减少(NC3Rs) 通过 资助编号 NC/R001138/1。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| RPMI-1640 培养基 | Merck | R8758-500ML | |
| FBS | gibco by Life Technologies | 10099-141 | 56 °C 加热灭活 1 小时 |
| 嘌呤霉素二盐酸盐 | Thermo Fisher Scientific | A1113802 | |
| 带 PES 膜的 Nalgene 快速流动一次性无菌过滤器 | Thermo Fisher Scientific | 168-0045 | |
| Pierce 蛋白浓缩器 PES(10K MWCO,20 mL) | Thermo Fisher Scientific | 88528 | |
| 0.22 µm Millex-GP 注射器滤器 | Merck | F7648 | |
| 含 CaCl2 和 MgCl2 的 Hank's 平衡盐溶液(HBBS) | gibco by Life Technologies | 14060-040 | |
| 不含 CaCl2 和 MgCl2 的 Hank's 平衡盐溶液(HBBS) | gibco by Life Technologies | 14180-046 | |
| 乙二胺四乙酸溶液(EDTA) | Merck | 03690-100ML | |
| Isocove 改良 Dulbecco 培养基(IMDM)(1 X)+ GlutaMAX | gibco by Life Technologies | 31980-030 | |
| 鸡血清 | Merck | C5405-100ML | |
| 50 mM 2-巯基乙醇 | gibco by Life Technologies | 31350-010 | |
| 胰岛素-转铁蛋白-硒酸钠 | gibco by Life Technologies | 41400-045 | |
| 胶原酶 D | Roche Diagnostics GmbH | 11088882001 | |
| 100 µm 细胞筛 | Corning | 431752 | |
| Histopaque-1083 | Merck | 10831-100ML | |
| 台盼蓝溶液 | Merck | T8154-20ML | |
| Nunc 96 孔聚苯乙烯圆底微量培养板 | Thermo Fisher Scientific | 163320 | |
| Falcon 24 孔透明平底 TC 处理多孔细胞培养板,带盖,无菌 | Corning | 353047 | |
| RNeasy Mini 试剂盒 | Qiagen | 74104 |
参考文献
- Hoerr, F. J. Clinical aspects of immunosuppression in poultry. Avian Diseases. 54 (1), 2-15 (2010).
- Schermuly, J., et al. In vitro model for lytic replication, latency, and transformation of an oncogenic alphaherpesvirus. Proceedings of the National Academy of Sciences of the United States of America. 112 (23), 7279-7284 (2015).
- Farhanah, M. I., et al. Bursal immunopathology responses of specific-pathogen-free chickens and red jungle fowl infected with very virulent infectious bursal disease virus. Archives of Virology. , (2018).
- Farhanah, M. I., et al. Bursal transcriptome profiling of different inbred chicken lines reveals key differentially expressed genes at 3 days post-infection with very virulent infectious bursal disease virus. Journal of General Virology. 99 (1), 21-35 (2018).
- Guo, X., et al. Differential expression of the Toll-like receptor pathway and related genes of chicken bursa after experimental infection with infectious bursa disease virus. Archives of Virology. 157 (11), 2189-2199 (2012).
- He, X., et al. Differential Regulation of chTLR3 by Infectious Bursal Disease Viruses with Different Virulence. In Vitro and In Vivo. Viral Immunology. 30 (7), 490-499 (2017).
- Ou, C., et al. Transcription profiles of the responses of chicken bursae of Fabricius to IBDV in different timing phases. Virology Journal. 14 (1), 93(2017).
- Rasoli, M., et al. Differential modulation of immune response and cytokine profiles in the bursae and spleen of chickens infected with very virulent infectious bursal disease virus. BMC Veterinary Research. 11, 75(2015).
- Ruby, T., et al. Transcriptional profiling reveals a possible role for the timing of the inflammatory response in determining susceptibility to a viral infection. Journal of Virology. 80 (18), 9207-9216 (2006).
- Smith, J., et al. Analysis of the early immune response to infection by infectious bursal disease virus in chickens differing in their resistance to the disease. Journal of Virology. 89 (5), 2469-2482 (2015).
- Tregaskes, C. A., et al. Conservation of biological properties of the CD40 ligand, CD154 in a non-mammalian vertebrate. Developmental & Comparative Immunology. 29 (4), 361-374 (2005).
- Kothlow, S., et al. CD40 ligand supports the long-term maintenance and differentiation of chicken B cells in culture. Developmental & Comparative Immunology. 32 (9), 1015-1026 (2008).
- Dulwich, K. L., et al. Differential gene expression in chicken primary B cells infected ex vivo with attenuated and very virulent strains of infectious bursal disease virus (IBDV). Journal of General Virology. 98 (12), 2918-2930 (2017).
- Soubies, S. M., et al. Propagation and titration of infectious bursal disease virus, including non-cell-culture-adapted strains, using ex vivo-stimulated chicken bursal cells. Avian Pathology. 47 (2), 179-188 (2018).
- Reed, L., Muench, H. A simple method of estimating fifty percent endpoints. American Journal of Hygiene. 27, 494-497 (1938).
- Hui, R. K., Leung, F. C. Differential Expression Profile of Chicken Embryo Fibroblast DF-1 Cells Infected with Cell-Adapted Infectious Bursal Disease Virus. PLoS One. 10 (6), e0111771(2015).
- Li, Y. P., et al. Transcriptional profiles of chicken embryo cell cultures following infection with infectious bursal disease virus. Archives of Virology. 152 (3), 463-478 (2007).
- Lin, J., et al. Genome-wide profiling of chicken dendritic cell response to infectious bursal disease. BMC Genomics. 17 (1), 878(2016).
- Quan, R., et al. Transcriptional profiles in bursal B-lymphoid DT40 cells infected with very virulent infectious bursal disease virus. Virology Journal. 14 (1), 7(2017).
- Wong, R. T., et al. Screening of differentially expressed transcripts in infectious bursal disease virus-induced apoptotic chicken embryonic fibroblasts by using cDNA microarrays. Journal of General Virology. 88 (Pt 6), 1785-1796 (2007).
重印与许可
