本文介绍了一种经过验证的纯化叶绿体蛋白导入复合物(TOC-TIC复合物)的实验方案,该方法利用TAP标签进行一步亲和纯化。该一步亲和分离方案原则上可适用于任何蛋白,并可用于通过质谱技术鉴定新的相互作用蛋白伙伴。
本文内容
摘要
摘要
叶绿体的生物发生需要将数千种由细胞核编码的蛋白质导入质体中。这些蛋白质的导入依赖于叶绿体外膜(TOC)和内膜(TIC)上的转运复合体。TOC和TIC复合体为多聚体结构,可能还包含尚未发现的组分。该领域的核心目标之一是明确TOC和TIC复合体的全部组成成分。为了分离TOC-TIC复合体并鉴定新的组分,研究人员对前体蛋白受体TOC159的N端进行了改造,添加了串联亲和纯化(TAP)标签,从而获得TAP-TOC159。TAP标签的设计适用于两步连续的亲和纯化过程(因此称为“串联亲和”)。本研究中使用的TAP标签由来源于金黄色葡萄球菌(Staphylococcus aureus)蛋白A(ProtA)的N端IgG结合域,以及其后的钙调蛋白结合肽(CBP)组成。在这两个亲和标签之间插入了烟草蚀纹病毒(TEV)蛋白酶的切割位点。因此,在TAP-TOC159复合物与IgG磁珠结合后,可利用TEV蛋白酶进行温和洗脱。在本方案中,省略了第二步钙调蛋白亲和纯化步骤。该纯化流程首先制备并溶解全细胞膜。经去垢剂处理后,将溶解的膜蛋白与IgG磁珠孵育,以免疫分离含有TAP-TOC159的复合物。在充分结合并多次洗涤后,使用TEV蛋白酶切割,使含有TAP-TOC159的复合物从IgG磁珠上释放,同时去除金黄色葡萄球菌(S. aureus)的IgG结合域。通过蛋白质印迹(Western blotting)可检测分离得到的TOC159复合物中是否存在已知或推测的TOC和TIC蛋白。更重要的是,含有TOC159的复合物已成功用于通过质谱技术鉴定TOC和TIC复合体中的新组分。我们所介绍的这一方案有望高效地分离任何膜结合蛋白复合物,进而通过质谱分析鉴定其中尚未明确的组分。
引言
植物依赖叶绿体进行光合作用和光能自养生长1。绝大多数叶绿体蛋白由细胞核基因组编码,在细胞质中合成,并通过被膜上的TIC和TOC复合物导入叶绿体2。TOC复合物的核心包括Toc75蛋白转运通道以及两个受体GTP酶Toc33和Toc1593,4,5。TOC159对叶绿体的生物发生至关重要,并介导大量光合作用相关蛋白的积累6。TIC复合物由TIC20蛋白转运通道以及TIC110和TIC40组成7,8。最近,研究人员分离出位于内被膜上的一个1 MDa的蛋白质转运复合物,其中包含先前未被鉴定的组分9,其中之一即为TIC56。我们最近利用TAP-TOC159亲和纯化方法共分离得到了该1 MDa复合物中的TIC56。这些数据表明,"经典"的TOC/TIC复合物与1 MDa复合物之间存在结构上的重叠10。此外,利用本文所述的TAP方法,还鉴定出KOC1等先前未知的组分,作为TOC和TIC复合物新的相互作用伙伴10,11。
因此,TAP标签纯化是一种通过后续质谱分析有效分离蛋白质复合物并鉴定其相互作用蛋白的高效方法12。TAP标签由两个IgG结合重复序列组成,这两个序列通过烟草蚀刻病毒(TEV)蛋白酶切割位点与钙调蛋白结合肽(CBP)分隔开。原始方法包括先进行IgG亲和纯化,随后经TEV切割,再进行钙调蛋白亲和层析,可实现大分子量且高纯度蛋白质复合物的天然状态纯化13,14。我们对该流程进行了简化,并证明仅通过IgG亲和纯化步骤结合TEV切割洗脱,也可高效纯化含有TOC159的蛋白质复合物15。根据我们的经验,省略钙调蛋白亲和步骤可获得更高的产量,因此可能更适用于丰度较低的蛋白质。
简而言之,我们构建了在 ppi2(toc159 基因敲除突变体)背景下稳定表达 TAP-TOC159 的转基因 A. thaliana 品系,并将其确立为纯化 TOC-TIC 复合物的可靠来源。TOC-TIC 复合物的分离方案首先将植物材料在无去垢剂缓冲液中进行匀浆处理。离心后弃去上清液,将含有总膜组分的沉淀用含去垢剂的缓冲液溶解。经过超速离心后,将含有可溶性 TOC-TIC 复合物的上清液上样至 IgG 树脂进行亲和纯化。经过多次洗涤步骤后,使用含有 TEV 蛋白酶的缓冲液进行洗脱,以特异性切割 IgG 结合结构域下游序列,温和释放含有天然 TOC159 的复合物。TEV 洗脱液可直接用于 Western 印迹或质谱分析,以鉴定 TOC159 的相互作用蛋白10,11,15。该方法也已被用于鉴定 TOC159 的翻译后修饰15。未来,含有天然 TOC159 的复合物可用于冷冻电子显微镜的结构研究。
方案
1. 拟南芥植株的准备
- 配制1 L含维生素的半倍浓度Murashige和Skoog(MS)培养基,添加1%蔗糖,并用氢氧化钾(KOH)调节pH至5.7。加入0.8%植物凝胶,于120 °C下高压灭菌20分钟。
- 将75 mL MS培养基倒入每个培养皿中(直径14.5 cm,高3 cm),静置1小时使其凝固。
- 取30 mg Arabidopsis thaliana 种子加入1.5 mL离心管中,先用含0.05%(v/v)Triton X-100的70%(v/v)乙醇表面消毒5分钟,再用100%(v/v)乙醇处理10分钟,随后去除乙醇。
- 将种子转移至无菌滤纸上晾干。将灭菌后的种子均匀撒播于MS培养基平板上(每种基因型至少需要8–10个平板),并用外科胶带密封每个平板。
- 将平板置于4 °C黑暗条件下孵育两天,以同步种子萌发。随后转移至生长室,光照条件为:120 µmol m−2 s−1 光照8小时,黑暗16小时,温度保持在22–20 °C。
2. 人IgG琼脂糖珠的制备
- 将溴化氰活化的琼脂糖珠(4 g)悬浮于 100 mL 的 1 mM HCl 中,室温孵育 30 分钟。
- 将琼脂糖珠转移至烧结玻璃滤器中,用 100 mL 的 100 mM HCl 在减压条件下洗涤,重复 2–3 次。
注意:预冷洗涤液至 4 °C。 - 将琼脂糖珠重悬于 1 mL 冷的 100 mM HCl 中,并转移至 50 mL 圆锥形离心管中。用 3 mL 的 100 mM HCl 洗涤烧结玻璃滤器,并将洗涤液转移至同一离心管中。
- 在 4 °C 下以 400 × g 离心 5 分钟,用移液器移除上清液。
注意:不要倾倒离心管。 - 将琼脂糖珠重悬于 50 mL 偶联缓冲液(表 1)中,短暂混匀,然后在 4 °C 下以 400 × g 离心 5 分钟。
- 将 50 mg 冻干的 Homo sapiens IgG(Hs-IgG)溶解于 10 mL 偶联缓冲液中,轻轻混匀琼脂糖珠,并在 4 °C 下于旋转摇床中孵育过夜。
- 在 4 °C 下以 400 × g 离心 5 分钟,用移液器移除上清液。
- 用 50 mL 偶联缓冲液洗涤 IgG-琼脂糖珠,并在 4 °C 下以 400 × g 离心 5 分钟。
- 用 50 mL 封闭缓冲液(表 1)重悬 IgG-琼脂糖珠,并在 4 °C 下以 400 × g 离心 5 分钟。重复一次。
- 将 IgG-琼脂糖珠重悬于 50 mL 封闭缓冲液中,在室温下旋转混合 2 小时,然后在 4 °C 下以 400 × g 离心 5 分钟。
- 移除上清液,并将 IgG-琼脂糖珠重悬于 200 mL 的 NaCl 偶联缓冲液(表 1)中。
- 为封闭任何残留的交联溴化氰基团,用 100 mL 的 0.1 M 甘氨酸-HCl(pH 2.8)洗涤 IgG-琼脂糖珠。在 4 °C 下以 400 × g 离心 5 分钟,移除上清液。再用 0.2 M 甘氨酸-HCl(pH 2.8)洗涤,4 °C 下以 400 × g 离心 5 分钟,移除上清液。最后,用 200 mL 超纯水洗涤 IgG-琼脂糖珠。
- 用 200 mL 超纯水洗涤 IgG-琼脂糖珠,然后用 200 mL PBS 缓冲液(表 1)洗涤。
- 将 IgG-琼脂糖珠重悬于 20 mL 含 0.01% NaN3(叠氮化钠)的 PBS 缓冲液中,4 °C 保存。
3. 膜组分的分离与溶解
- 取10 g生长三周的 A. thaliana 幼苗,在液氮中使用预冷的研钵和研杵加入砂子进行研磨。
- 向10 g研磨后的组织中加入20 mL预冷的研磨缓冲液(表1),充分混匀,并在冰上解冻。
- 将匀浆液通过两层快速过滤材料过滤至50 mL锥形离心管中。过滤前需用研磨缓冲液润湿快速过滤材料。
- 将滤液在4 °C条件下以1,500 × g 离心10分钟,将上清液转移至预冷的50 mL锥形离心管中,重复此步骤一次,并收集上清液。保留200 µL "总组分"样品,于-80 °C保存以备后续分析。
- 将上清液转移至预冷的38.50 mL超速离心管中,并用预冷的研磨缓冲液定容至35 mL。在超速离心机中于4 °C、100,000 × g 条件下离心1小时。
- 将上清液转移至50 mL锥形离心管中。保留200 µL "可溶性组分"样品,于-80 °C保存以备后续分析。
- 使用玻璃特氟龙匀浆器将绿色沉淀重新悬浮于研磨缓冲液中,在超速离心机中于4 °C、100,000 × g 条件下离心1小时,弃去上清液。
- 使用玻璃特氟龙匀浆器将绿色沉淀重悬于18.75 mL 1×研磨缓冲液中,再加入9.375 mL 1×研磨缓冲液。
- 加入9.375 mL 4×溶解液(表1)(含TX-100去垢剂),总体积为37.5 mL,在4 °C条件下于"旋转摇床"上孵育30分钟。
- 在超速离心机中于4 °C、100,000 × g 条件下离心1小时。将上清液转移至50 mL锥形离心管中。保留200 µL上清液样品(未来的"上样组分"),于-80 °C保存以备后续分析。
- 将沉淀用37.5 mL研磨缓冲液重悬。保留不溶性部分样品,于-80 °C保存。
4. 免疫沉淀
- 用 Buffer A 平衡 100 µL 压实的 IgG-agarose 树脂(表1)并在 100 × g 4 °C下离心5分钟。
- 去除上清液,并将IgG-琼脂糖树脂在4 °C下用100 µL缓冲液A重悬。
- 将洗涤后的IgG-琼脂糖树脂转移至37.5 mL溶解的膜中,在4 °C下于50 mL锥形离心管中于旋转摇床上孵育过夜。
- 离心沉淀IgG-agarose树脂,100 × g g 4 °C下离心5分钟,用移液器吸除上清液。保留200 µL样品 "流过" 并于 -80 °C 保存以备后续分析。
- 用37.5 mL缓冲液A洗涤IgG-琼脂糖树脂,并在旋转摇床上孵育10分钟。
- 离心沉淀IgG-琼脂糖树脂,100 × g g 在4 °C下以100 × g离心5分钟,用移液器弃去上清液,向15 mL离心管中加入5 mL研磨缓冲液A,于4 °C、100 × g离心5分钟。保留200 µL样品 "洗涤 1" 并于 -80 °C 保存,用于后续分析。
- 用缓冲液A重复5 mL洗涤步骤三次。
- 在最后两个洗涤步骤中不使用抑制剂(NaF、蛋白酶抑制剂和PMSF)
注意:此阶段不再需要抑制剂,为降低成本而省略。保留最后一次洗涤步骤的 200 µL 样品 "最终洗涤(W6)" 并于 -80 °C 保存以备后续分析。 - 将IgG-琼脂糖树脂转移至带有35 µm滤膜的500 µL离心柱中,用300 µL TEV洗脱缓冲液洗涤树脂珠两次表1)(不含 AcTEV)进行平衡。关闭离心柱。
- 加入含有50单位(10 µL)AcTEV的300 µL TEV洗脱缓冲液。在加至树脂前,先在离心管中配制该混合液。
- 在16 °C、350 rpm条件下,将带有磁珠的离心柱置于恒温混匀仪中孵育2小时。每30分钟轻轻倒置柱子数次。
- 打开离心柱,将其放入一个新的洁净1.5 mL离心管中,以100 × g离心 g 4 °C下离心5分钟以收集洗脱液。
- 干燥(例如)10%(v/v)的洗脱样品(约25 µL),使用离心蒸发仪,用于质谱分析或其他后续分析。
- 将剩余洗脱液(约275 µL)分装至11个1.5 mL离心管中(每管25 µL),在离心浓缩仪中干燥后,于-80 °C保存。
- 通过标准的SDS-PAGE电泳及随后的免疫印迹分析整个实验过程中保留的样品以及洗脱组分。样品制备时,采用氯仿/甲醇抽提法沉淀50 µg总蛋白(T)、上样组分(L)、穿流组分(FT)、洗涤1组分(W1)以及200 µL洗涤6组分(W6)。16.
- 加入10 µL的2x SDS-PAGE上样缓冲液(表1) 加入沉淀样品和25 µL洗脱并干燥后的样品中。涡旋混匀后,在95 °C金属浴中加热10分钟。
- 使用抗TOC159抗体通过免疫印迹分析总组分(T)、上样组分(L)、流穿组分(FT)、洗涤1组分(W1)、洗涤6组分(W6)和洗脱组分(E),以评估分离步骤的效率。
结果
本文描述了一种从转基因拟南芥(A. thaliana)植株中纯化TAP标签化叶绿体包膜蛋白复合物的方案。如图1A所示,使用表达35S:NTAP-TOC159构建体的植株来分离该复合物,而表达35S:NTAP构建体的植株则作为对照。 图1B展示了TAP-TOC159蛋白复合物纯化的详细步骤,随后进行质谱分析以鉴定相互作用的蛋白。免疫印迹分析(图2,右侧)证实,所分离的TAP-TOC159与TOC复合物中的TOC75和TOC33发生相互作用。已知可磷酸化TOC159的叶绿体外膜激酶KOC1也与TAP-TOC159复合物共纯化(图2B,右侧)。TIC110的存在表明,所分离的TAP-TOC159复合物还包含TIC复合物的组分。针对与蛋白导入无关的质体小球蛋白FBN1A制备的抗体未识别出TAP-TOC159复合物,表明无污染。在阴性对照中,免疫沉淀的NTAP蛋白未与任何TOC-TIC蛋白共纯化(图2,左侧),进一步验证了TAP-TOC159纯化的特异性。
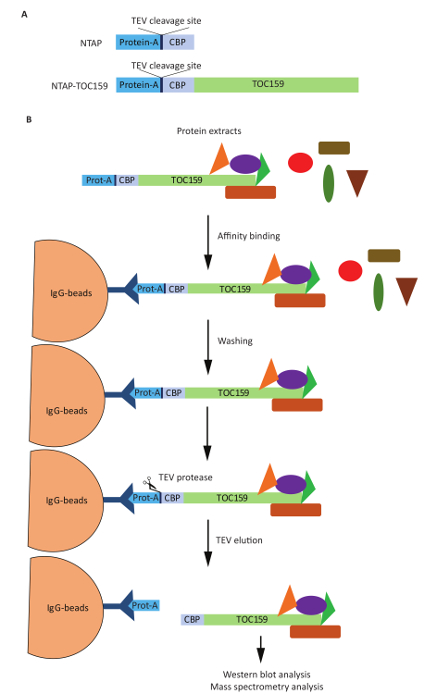
图 1。构建体及亲和纯化流程示意图。 (A)35S:NTAP-TOC159 构建体编码 NTAP-TOC159,并在拟南芥(Arabidopsis thaliana)中稳定表达。阴性对照植株表达 35S:NTAP 构建体,仅编码TAP标签。 (B)分步亲和纯化流程包括膜分离与溶解、IgG琼脂糖免疫纯化、洗涤、TEV蛋白酶切割及洗脱。请点击此处查看该图的放大版本。
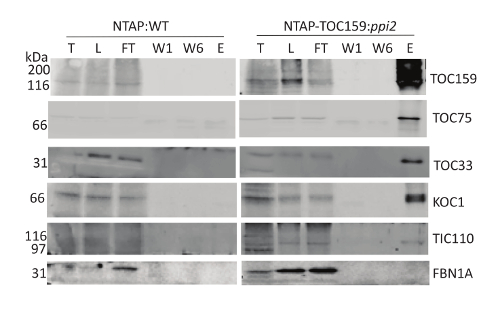
图 2.TOC159蛋白的串联亲和纯化。 从NTAP-TOC15:ppi2 拟南芥植株中纯化N端TAP标签标记的TOC159蛋白,并以从TAP:WT植株中纯化的TAP蛋白作为阴性对照。通过Western印迹分析总蛋白提取物(T)、溶解的膜蛋白(上样组分,L)、穿流组分(FT)、第一次和最后一次洗涤组分(W1和W6)以及TEV洗脱液的10%。使用针对TOC159(AT4G02510)、TOC75(AT3G46740)、TOC33(AT1G02280)、KOC1(AT4G32250)、TIC110(AT1G06950)和FBN1A(AT4G04020)的抗体对膜进行杂交检测。请点击此处查看该图的放大版本。
| 缓冲液列表 | ||
| 偶联缓冲液 | NaHCO₃3 调节至 pH 8.5,使用 0.1 M NaOH 调节 pH2一氧化碳3 | 100 mM |
| 封闭缓冲液 | Tris–HCl 用 HCl 调节 pH 至 8。 | 100 mM |
| PBS缓冲液 | Na2HPO4 KH2PO4 NaCl KCl 用 HCl 调节 pH 至 7.3。 | 4.3 mM 1.4 mM 137 2.7 |
| NaCl 偶联缓冲液 | 偶联缓冲液 NaCl | 1 M |
| 2X 研磨缓冲液 | Tris-HCl,用 HCl 调节 pH 至 7.5 NaCl NaF PMSF 植物蛋白酶抑制剂混合物 | 100 mM 200 mM 5 mM 1 mM 0.20% |
| 4X 溶解液 | 甘油 Triton-X100 | 40% 3% |
| 缓冲液A | 2X 研磨缓冲液 1X 研磨缓冲液 4X 溶解液 | 100 ml 50 ml 25 ml 25% |
| TEV 洗脱缓冲液 | Tris-HCl,用 HCl 调节 pH 至 8 EDTA,用 HCl 调至 pH 8 NaCl 甘油 Triton-X100 DTT | 50 mM 0.5 mM 100 mM 10% 0.75% 1 mM |
| 2x SDS-PAGE上样缓冲液 | Tris-HCl pH 6.8(用 HCl 调节) SDS 甘油 溴酚蓝 DTT | 0.1 M 4% 20% 0.20% 0.2 M |
表1. 缓冲液配方。
讨论
我们证明了单步TAP标签纯化是一种用于纯化目标蛋白复合物的特异且高效的方法 拟南芥 TOC-TIC复合物。尽管TAP标签允许进行两步连续纯化(先IgG亲和纯化,再经TEV蛋白酶切割后进行钙调蛋白亲和纯化),但我们认为,在许多情况下,仅进行第一步亲和纯化后接TEV蛋白酶切割已足够。我们的目标蛋白TOC159丰度较低,加入第二步钙调蛋白亲和纯化会显著降低蛋白得率,这正是我们在当前方案中省略该步骤的主要原因。TEV洗脱本身是一种高度特异且温和的纯化步骤,仅释放TAP标签的目标蛋白及其相互作用伙伴,而那些非特异性结合在IgG树脂上的污染蛋白则仍保留在树脂上。因此,结合IgG亲和纯化步骤,TEV洗脱已能实现足够高效的纯化效果,不仅满足我们的需求,也可能适用于许多其他类似研究。
必须确保TAP标签融合构建体完全具有功能活性 体内TAP标签可能会对蛋白质的活性、稳定性或定位产生潜在的不利影响。TOC159由三个结构域组成:N端酸性结构域、中央GTP结合结构域以及位于C端的膜结构域,后者将TOC159锚定在叶绿体外膜上2为避免对膜插入造成潜在干扰,我们将TAP标签融合至TOC159的N末端。然而,N末端融合属于较为少见的情况。许多蛋白质的N末端含有定位信号序列,因此通常应在C末端进行标签融合。我们已确认TOC159在融合后仍具有功能 体内 通过互补作用 ppi2 突变体(一种缺乏TOC159的白化突变体)与TAP-TOC159进行回补。绿色野生型表型的恢复表明TAP-TOC159具有功能活性。15.
该纯化方案用于鉴定TOC159新的相互作用蛋白,其中包括KOC1和TIC5610,11。总体而言,约有30种蛋白质与该复合物相关,表明在不久的将来将有更多新的相互作用蛋白被分离和表征。尽管我们强烈推荐使用TAP标签进行复合物纯化,但仍需指出,除本文所述版本外,还存在其他变体形式,可能在某些应用中非常有用。
披露
作者声明无竞争利益。
致谢
本工作由瑞士国家科学基金会(31003A_156998 和 31003A_176191)以及纳沙泰尔大学资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| NaHCO3 | PanReac AppliChem | A0384 | |
| Tris | Biosolve | 0020092391BS | |
| Na2HPO4 | Sigma | S7909 | |
| KH2PO4 | PanReac AppliChem | A2946 | |
| NaCl | PanReac AppliChem | A2942 | |
| NaF | Sigma | S1509 | 有毒 |
| PMSF | PanReac AppliChem | A0999 | 有毒 |
| 植物蛋白酶抑制剂混合物 | Sigma | P9599 | |
| 甘油 | PanReac AppliChem | A0970 | |
| 吐温X-100 | Roche | 10789704001 | |
| 甘氨酸 | PanReac AppliChem | A1067 | |
| EDTA | Carl Roth | 8043 | |
| 二硫苏糖醇(DTT) | PanReac AppliChem | A1101 | |
| SDS | PanReac AppliChem | A0675 | |
| 溴酚蓝 | Sigma | B0126 | |
| HCl | VWR | 20252-290 | 腐蚀性 |
| 蔗糖 | PanReac AppliChem | A3935 | |
| 含维生素的MS培养基(Murashige和Skoog培养基) | Duchefa Biochemie | M0222 | |
| 植物凝胶(Phytoagar) | Duchefa Biochemie | P1003 | |
| 培养皿 | Greiner Bio-one | 639102 | |
| 1.5 mL 微量离心管 | Sarstedt | 72.706 | |
| 乙醇 | Fisher chemical | E/0600DF/15 | |
| 滤纸 | Whatman | 10311804 | |
| 外科胶带 | 3M | 1530-1 | |
| CNBr活化琼脂糖珠(Sepharose 4B) | GE Healthcare | 17-0430-01 | |
| 烧结玻璃滤器 | DURAN | 2515703 | |
| 50 mL 离心管 | TPP | 91050 | |
| 纯化的免疫球蛋白G(HsIgG) | MP Biomedicals | 855908 | |
| 旋转摇床 | IKA | 4016000 | |
| NaN3 (叠氮化钠) | Sigma | 71290 | 有毒 |
| 快速过滤材料(Miracloth) | Merk-Millipore | 475855 | |
| 超速离心管 XNP-80 | Beckman Coulter | A99839 | |
| SW 32 Ti 转子 | Beckman Coulter | 369650 | |
| 超速离心管 | Beckman Coulter | 326823 | |
| 玻璃-聚四氟乙烯匀浆器(Potter) | Wheaton | 357426 | |
| 离心柱(Mobicol) | Mo Bi Tec | M1003 | |
| 用于离心柱(Mobicol)的35µm滤膜 | Mo Bi Tec | M513515 | |
| AcTEV | Invitrogen | 12575-015 | |
| 离心浓缩仪(Speed Vac) | Eppendorf | 5305000100 | |
| FBN1A(PGL35)抗体 | AgriSera | AS06 116 | RRID:AB_2247012 |
| 方丹白露砂 | VWR | 27460.295 |
参考文献
- Jarvis, P., López-Juez, E. Biogenesis and homeostasis of chloroplasts and other plastids. Nature Reviews Molecular Cell Biology. 14 (12), 787-802 (2013).
- Kessler, F., Schnell, D. Chloroplast biogenesis: diversity and regulation of the protein import apparatus. Current opinion in cell biology. 21 (4), 494-500 (2009).
- Schnell, D. J., Kessler, F., Blobel, G. Isolation of components of the chloroplast protein import machinery. Science. 266 (5187), 1007-1012 (1994).
- Kessler, F., Blobel, G., Patel, H. A., Schnell, D. J. Identification of two GTP-binding proteins in the chloroplast protein import machinery. Science. 266 (5187), 1035-1039 (1994).
- Jarvis, P., et al. An Arabidopsis mutant defective in the plastid general protein import apparatus. Science. 282 (5386), 100-103 (1998).
- Bauer, J., et al. Essential role of the G-domain in targeting of the protein import receptor atToc159 to the chloroplast outer membrane. The Journal of cell biology. 159 (5), 845-854 (2002).
- Kovacs-Bogdan, E., Soll, J., Bolter, B. Protein import into chloroplasts: the Tic complex and its regulation. Biochimica et biophysica acta. 1803 (6), 740-747 (2010).
- Nakai, M. The TIC complex uncovered: The alternative view on the molecular mechanism of protein translocation across the inner envelope membrane of chloroplasts. Biochimica et biophysica acta. 1847 (9), 957-967 (2015).
- Kikuchi, S., et al. Uncovering the protein translocon at the chloroplast inner envelope membrane. Science. 339 (6119), 571-574 (2013).
- Kohler, D., et al. Characterization of chloroplast protein import without Tic56, a component of the 1-megadalton translocon at the inner envelope membrane of chloroplasts. Plant physiology. 167 (3), 972-990 (2015).
- Zufferey, M., et al. The novel chloroplast outer membrane kinase KOC1 is a required component of the plastid protein import machinery. The Journal of biological chemistry. 292 (17), 6952-6964 (2017).
- Rigaut, G., et al. A generic protein purification method for protein complex characterization and proteome exploration. Nature biotechnology. 17 (10), 1030-1032 (1999).
- Rohila, J. S., Chen, M., Cerny, R., Fromm, M. E. Improved tandem affinity purification tag and methods for isolation of protein heterocomplexes from plants. The Plant journal. 38 (1), 172-181 (2004).
- Rohila, J. S., et al. Protein-protein interactions of tandem affinity purified protein kinases from rice. PloS one. 4 (8), 6685(2009).
- Agne, B., et al. The acidic A-domain of Arabidopsis TOC159 occurs as a hyperphosphorylated protein. Plant physiology. 153 (3), 1016-1030 (2010).
- Wessel, D., Flugge, U. I. A method for the quantitative recovery of protein in dilute solution in the presence of detergents and lipids. Analytical biochemistry. 138 (1), 141-143 (1984).
重印与许可
