本方法首次描述了在Pichia pastoris (Komagataella phaffii)中利用碳源调控型启动子PDC和PDF进行高效、可诱导且无甲醇的重组蛋白生产的可靠实验流程,适用于小规模实验,同时可在线监测培养参数,并采用恒定的甘油流加方式。
本文内容
摘要
摘要
甲醇是一种成熟的碳源和诱导剂,可用于以Pichia pastoris(P. pastoris)为宿主的高效蛋白质生产,适用于微规模、实验室规模及工业规模。然而,由于甲醇具有毒性和易燃性,人们希望在保持P. pastoris高生产效率的同时避免使用甲醇。小规模生物反应器培养(工作体积0.5–5 L)通常用于评估菌株及其蛋白质生产特性,因为在深孔板中进行的微尺度培养难以控制,或依赖昂贵设备。此外,传统的P. pastoris培养与诱导方案主要针对组成型表达或甲醇诱导而建立,迄今为止尚无可靠的方法可用于在(受控且可监测的)平行培养中筛选带有去阻遏型启动子的P. pastoris表达菌株。为了简化对新型蛋白质生产菌株的初步培养、表征与比较,我们建立了一种简单的摇瓶培养系统,用于无甲醇表达,该系统模拟生物反应器条件,包括持续缓慢流加甘油以及在线监测,从而比普遍采用的小规模分批培养更接近生物反应器中的真实情况。为驱动P. pastoris中重组蛋白的表达,采用了碳源阻遏型启动子PDC和PDF。含有嵌入式碳源并能持续释放定量甘油的聚合物圆盘,确保了稳定的流加速率,既提供维持启动子活性所需的能量,又保持较低的生物量生成。
引言
提高细菌或酵母等微生物大规模重组蛋白生产的产量和培养条件的可靠性,是当今生物技术的主要需求之一1 以及工业应用的商业成功。由于培养程序和培养基简单、产量高且工具经过充分表征2 毕赤酵母(Komagataella phaffii) 是一种广泛用于重组蛋白生产的非常规酵母。针对该物种,人们不断开发出新的创新工具,例如包含新型启动子的表达载体,以替代目前广泛使用的启动子 PAOX1,醇氧化酶1基因的启动子区3,4,5. 起始密码子上游500 bp的DNA序列 CAT1 (CTA1)基因被鉴定为启动子区域,从而在甲醇-free且多功能的表达策略中实现了新的突破 P. pastoris。该 CAT1 基因是唯一的过氧化氢酶基因 P. pastoris 且该蛋白质定位于过氧化物酶体中。过氧化氢酶在清除活性氧物种中发挥重要作用,这些活性氧物种的产生源于 例如,来自过氧化物酶体MUT途径中甲醇的氧化或脂肪酸β-氧化过程6,7表达水平 CAT1 基因在培养基中含有葡萄糖或甘油时受到抑制,当这些碳源耗尽时则发生去抑制8此外,过氧化氢酶基因的表达可由甲醇诱导,值得注意的是,油酸也能诱导其表达,该基因似乎是唯一具有此特性的基因 P. pastoris 即使使用油酸诱导,也能达到与甲醇诱导相似表达水平的MUT途径9.
该 P. pastoris CAT1 启动子的 500 bp 片段被称为 PDC (有时也简称为 PCAT1-500),已被用于测试胞内表达和分泌蛋白的生产,结果表明其是两种经典 P. pastoris 启动子——即强组成型启动子 PGAP 和甲醇诱导型启动子 PAOX1(二者均在 20 多年前开发)——的一种颇具吸引力的替代选择。在富含糖的培养基中,PDC 所驱动的酶活可达到 PGAP 的 21%(CalB)和 35%(HRP)。在甲醇诱导条件下,PDC 不仅比 PAOX1 响应更快,且最终 CalB 的产量显著高出 2.8 倍9。
除了P直流,一个正交启动子(PDF) 已被发现表现出类似的调控模式。然而,其强度显著高于 P直流 在去阻遏条件以及甲醇诱导条件下(稿件正在准备中)3.
当强组成型启动子PGAP因表达生理上具有挑战性或具有细胞毒性的蛋白而失效时10,11,PDC和PDF是理想的替代选择。在微尺度实验中,由这些启动子驱动的表达在初始碳源(例如,葡萄糖或甘油)耗尽后开始,从而在不从初始阶段即因外源蛋白过表达而加重细胞负担的情况下促进生物量的积累。尽管这两个启动子仍可由甲醇诱导,但其通过去阻遏机制激活的方式相较于使用PAOX1的表达系统更能充分利用预诱导阶段。此外,PDC和PDF可用于无甲醇的蛋白生产,这在大规模工业生产中是一个理想目标12。
为了开发适用的生产菌株和表达载体,必须经过多个研发步骤,才能从大量转化子中筛选出适合放大的理想候选菌株。通常在多孔板中进行高通量筛选(微尺度:小于0.5 mL),以尽可能覆盖大量克隆。随后进行复筛和再复筛,接着进行摇瓶(小规模:50–250 mL)或(微)生物反应器筛选12。然而,理想的方法应能在不同规模之间保持最大程度的一致性,从深孔板中的数百微升,到摇瓶中的数毫升,直至后期在严格控制的生物反应器中进行无甲醇生产。尽管摇瓶已能提供与小型生物反应器相近的体积,但在大规模蛋白生产中仍存在若干重要限制因素,例如持续补料、通气以及对生长和氧气供给的在线监测13。利用经过改进的摇瓶和摇床设备进行光学监测,可作为并行培养中复杂设备的一种经济有效的替代方案,同时仍能持续提供关于菌体生物量和溶解氧浓度等关键培养参数的在线信息。通过聚合物载体缓释碳源,可在无需依赖复杂技术方案和设备的情况下实现稳定且可控的补料,相较于以往简单的碳源一次性耗尽方式9,10,更接近生物反应器中的培养条件,避免因能量供应不足而限制持续的蛋白表达。
以下方法描述了一种小到中等规模、无甲醇、可控的蛋白质表达系统 P. pastoris 基于新启动子P直流电 和 PDF. 通过去阻遏诱导包含两个阶段。第一阶段为短暂的生物量积累期,此阶段使用抑制启动子的碳源,不产生目标蛋白;第二阶段为目标蛋白生产期,通过持续供给少量且恒定浓度的碳源,使启动子保持去阻遏状态。在整个培养过程中,对最关键的培养参数进行在线监测。本研究旨在提供一种无甲醇、可靠且可放大的培养系统 P. pastoris.
方案
1. 培养基制备
- 缓冲基础培养基(含甘油的 BMG,或以葡萄糖为碳源的 BMD)的配制(1 L)
- 将 650 mL 去离子水加入 1 L 螺口玻璃瓶中并进行高压灭菌。冷却后,加入 100 mL 已高压灭菌的 10 倍 YNB 溶液(134 g/L,不含氨基酸的酵母氮源基础)、200 mL 磷酸钾缓冲液(1 M,pH 6)、30–100 mL 10% w/v 葡萄糖或甘油溶液(根据分批培养阶段所需的生物量确定用量)、2 mL 无菌的 500 倍生物素溶液(10 mg/mL),最后用无菌去离子水定容至 1 L。
注意:所有组分必须分别在不同的容器中进行高压灭菌。生物素在高压灭菌条件下会被破坏,因此必须使用 0.2 µm 滤膜过滤除菌。
- 将 650 mL 去离子水加入 1 L 螺口玻璃瓶中并进行高压灭菌。冷却后,加入 100 mL 已高压灭菌的 10 倍 YNB 溶液(134 g/L,不含氨基酸的酵母氮源基础)、200 mL 磷酸钾缓冲液(1 M,pH 6)、30–100 mL 10% w/v 葡萄糖或甘油溶液(根据分批培养阶段所需的生物量确定用量)、2 mL 无菌的 500 倍生物素溶液(10 mg/mL),最后用无菌去离子水定容至 1 L。
- 缓冲丰富培养基(BYPG)(1 L)
- 在 1 L 螺口瓶中,将 700 mL 去离子水与 1% w/v 酵母提取物和 2% w/v 蛋白胨一起进行高压灭菌。冷却后,加入 30–100 mL 单独高压灭菌的 10% w/v 甘油溶液、200 mL 磷酸钾缓冲液(1 M,pH 6),最后用无菌去离子水定容至 1 L。
2. 摇瓶准备
- 在250 mL带挡板的摇瓶中加入5 mL蒸馏水,用两层纱布覆盖瓶口,并用橡皮筋固定。再用一层铝箔覆盖纱布。
- 将摇瓶在121 °C条件下高压灭菌20分钟,以实现完全灭菌。
- 去除瓶内残留水分,向每个摇瓶中分装50 mL预先配制好的培养基。
3. 过夜培养接种
- 用50 mL离心管取5 mL YPD培养基(1% w/v酵母提取物,2% w/v蛋白胨,2% w/v葡萄糖),接入目标表达菌株的一个新鲜单菌落,制备过夜培养物(ONC),管盖略微打开以保证充分通气。
- 于28 °C、80%湿度条件下,在摇床中以100–130 rpm(2.5 cm振荡直径)振荡培养过夜。
4. 测量装置设置与主培养物培养
- 设置在线监测系统时,请按照制造商的说明对设备进行适当的校准。
- 将安装有相应监测软件的计算机放置在测量站蓝牙连接范围内,并启动软件以通过蓝牙连接设备。
- 按下生物量测量设备前面的银色按钮,打开蓝牙连接。
- 在软件中,点击 设备,然后点击 查找设备。
注意:设备应作为列表出现在任务栏下方的窗口中。如果未出现,建议检查电池是否已充电,以及计算机是否在蓝牙连接范围内。 - 将找到的设备拖放到屏幕右侧的 测量托盘 方框中。
- 点击 连接。
注意:连接成功后,将出现一个控制界面。 - 要开始蓝牙连接的测试运行,请点击 测量。
- 设置实验。
- 点击 开始测量,为实验命名,并启用所有需要监测的参数。
注意:每个可能的测量参数都需要相应的许可证。 - 将 间隔 设置为 3 分钟。
注意:该间隔决定测量点的采集频率,每个测量点将生成一个后续数值。每分钟测量一次非常精确,但会产生大量数据,使分析更加繁琐。 - 将 平均测量点数 设置为 11。
注意:此设置决定每 3 分钟实际采集的测量点数量。因此,输出结果为 11 个测量点在 11 秒内的平均值。 - 输入样品名称。
- 跳过下一个界面,因为角度已在之前完成校准(步骤 4.1)。
注意:建议在接种主培养物之前进行蓝牙连接的测试运行,以确保连接稳定且计算机位置合适。此外,电池必须已充电。
- 点击 开始测量,为实验命名,并启用所有需要监测的参数。
- 将过夜培养物(ONC,步骤 3.1)用培养基稀释(1:20),在分光光度计中于 600 nm 波长下测定细胞密度。根据以下计算公式,将 50 mL 培养基(推荐碳源浓度为 0.3–1%,也可使用步骤 1 中描述的不同培养基)接种 ONC,使 OD600 达到 0.05。
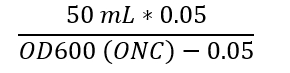
- 将锥形瓶放入检测器中,在 28 °C、130 rpm 和 80% 湿度条件下振荡培养。
注意:在开始测量前,必须让培养物振荡 5 分钟,以避免细胞粘附在瓶底导致测量值错误。 - 在软件中点击 开始测量。
- 在接种后 4 小时以及碳源耗尽时(碳源耗尽的判断方法见步骤 4.7),分别取 0.2 mL 样品,进行三份平行测定以测量细胞密度。将样品用培养基适当稀释(第一次测量稀释 1:5,第二次测量稀释 1:20),并在分光光度计中测定 600 nm 波长下的吸光度。在取出锥形瓶甚至停止摇床前,务必先在软件中暂停测量。
注意:检测器已针对特定振荡条件下的参数记录进行校准,若记录静止培养物将导致无意义的测量结果。此外,每次重新开始测量前,务必等待 5 分钟的振荡时间。细胞密度测量至关重要,因为检测器仅提供生物量数值,而非真实的细胞密度。通过在多个时间点进行分光光度法测量,可建立 OD600 值(x 值)与在线测量系统所得值(y 值)之间的校准函数。两者之间并非线性关系,而是对数关系,校准函数如下:
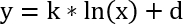
y:分光光度计测得的 OD600 值
x:在线测量系统获得的值
k:斜率
d:截距
斜率和截距可用于将任意值转换为对应的 OD600 值。在 Excel 中,可将分光光度法测得的 OD600 值与同一时间点在线系统获得的值进行作图,并添加对数趋势线及其对应方程,即可得到上述校准函数。 - 培养至碳源几乎耗尽(约 12–20 小时)。为此,让培养物生长,直至软件图表显示氧气浓度接近零,且细胞处于指数生长期。
注意:此现象适用于本方案中使用的碳源浓度。碳源耗尽的时间点可通过在线监测系统确定,如“代表性结果”部分的 图 1 所示,当氧气水平接近零且细胞处于指数生长期时即为碳源耗尽。
5. 通过去阻遏进行蛋白质表达
- 当达到步骤 4.6 中描述的时间点时,在无菌条件下,向每瓶培养物中加入四个补料片开始补料。
注意:在所述条件下,四个甘油补料片根据制造商说明每小时释放 2 mg 甘油。 - 继续培养 60–90 小时,每隔 24 小时取样一次,通过选择适当的检测方法(例如,Bradford 法15、SDS-PAGE16 或活性检测)监测蛋白表达,并进行细胞密度测定。
6. 培养物收获
- 培养60-90小时后,将培养物转移至50 mL离心管中,在4,000 × g、4 °C条件下离心10分钟以收获细胞。
注意:上清液(用于分泌蛋白)或细胞沉淀(用于胞内蛋白表达)可通过在4,000 × g、4 °C条件下离心10分钟进行收集,并用于后续分析。 - 从软件中将在线测量数据导出为电子表格文件,以便进一步分析。
- 向所有锥形瓶中加入5-10 mL蒸馏水,并进行高压灭菌,以灭活残留的细胞。
结果
如方案部分所述,该软件会记录整个培养过程中的重要培养参数。图1展示了在分批培养阶段起始碳源浓度分别为0.5%(图1A)或0.3%(图1B)时,添加甘油补料片前后生物量变化和溶氧浓度的可视化结果。在线监测系统在去阻遏培养中尤为有用,因为它可以精确确定分批阶段结束后碳源耗尽的时间点。如图1所示,培养基中的溶氧浓度迅速下降并趋近于零,尤其是在分批阶段使用0.5%甘油的情况下(图1A),而此时生物量呈指数增长。此阶段细胞处于对数生长期,为了充分利用碳源的释放,应在培养接近稳定期之前按方案所述及时添加补料片。在溶氧浓度降至零之前添加补料片,对于实现去阻遏蛋白表达至关重要,可避免细胞遭遇氧限制。较低的甘油浓度可减轻短期氧限制的影响,如图1B所示,因此更推荐用于去阻遏蛋白表达。
下文描述了两项不同培养实验的结果——这两项实验采用了所述方案以及如图1所示的监测系统。第一项实验展示了一株在PDC启动子控制下表达来自Aspergillus niger(A. niger)的葡萄糖氧化酶的P. pastoris菌株;第二项实验展示了一株在PDF启动子控制下表达人生长激素的P. pastoris菌株。
本实验研究了在PDC 调控下葡萄糖氧化酶的生产。因此,比较了不同的培养策略:甘油脉冲补料、通过添加补料片进行恒定甘油流加,以及不进行任何补料或脉冲的培养。培养在250 mL摇瓶中进行,使用50 mL缓冲基础培养基,含0.5%葡萄糖作为唯一碳源(表1)。
经过160小时培养后,采用分批补料策略(先使用葡萄糖分批培养进行生物量积累(38小时),随后在培养38小时、61小时和86小时时脉冲式添加甘油(0.25% w/v))可获得最高的生物量浓度(分泌蛋白总量为0.21 g/L,酶活为8.4 U/mL)。尽管在葡萄糖分批培养38小时后添加饲料片时,生物量浓度和分泌蛋白总量均下降了2倍,但其体积活性反而比采用甘油脉冲策略的培养高出1 U/mL。这表明大量分泌的蛋白质并未对上清液中的体积活性产生贡献,可能以无活性形式被分泌。因此,甘油脉冲带来的较高甘油浓度似乎更有利于生物量的积累而非目标蛋白的生产,而持续低浓度的甘油释放则使比生产率提高了两倍以上。
另一项采用去阻遏表达方法的实验是在PDF启动子控制下表达人类生长激素(hGH)。该表达载体被稳定整合到毕赤酵母(P. pastoris)菌株BSYBG11的基因组中。实验使用250 mL带挡板的摇瓶,装入50 mL BYPG缓冲富集培养基,并以0.3%(w/v)甘油作为分批培养阶段的碳源。当甘油耗尽后,通过每瓶添加4片甘油缓释片,实现恒定甘油流加以维持蛋白表达,并与不添加甘油的对照组进行比较(图2)。
图2展示了相同菌株在有无恒定甘油流加条件下培养时,人生长激素(hGH)表达水平与生物量发育的比较。检测采用夹心ELISA法,二抗与辣根过氧化物酶(HRP)融合,以3,3′,5,5′-四甲基联苯胺(TMB)作为底物进行显色检测。对于该蛋白而言,似乎在无补料情况下,细胞在培养约30小时后开始降解已产生的蛋白(浅蓝色方块);而通过补料则可防止这种降解(深蓝色三角形),甚至在培养150小时后,单位生物量的蛋白浓度仍持续上升。这一结果与先前在Hansenula polymorpha14中观察到的现象一致,表明从分批培养(通常用于摇瓶规模)转向补料分批培养模式,可显著优化P. pastoris的培养过程。
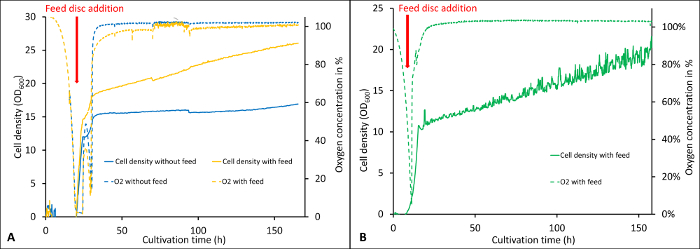
图1:分批培养中不同甘油浓度条件下两次培养过程中在线记录参数的可视化结果。 分批培养起始时分别添加0.5% w/v(A)和0.3% w/v(B)甘油,随后进入解除阻遏阶段,此阶段通过每瓶加入4个喂料片(根据生产商提供的数据,释放速率为0.5 mg/h/片)对细胞进行补料。虚线表示培养基中的氧气浓度,实线表示细胞密度(OD600)。误差棒表示六次重复实验的标准偏差(两次生物学重复,每次三个技术重复)。请点击此处查看该图的放大版本。
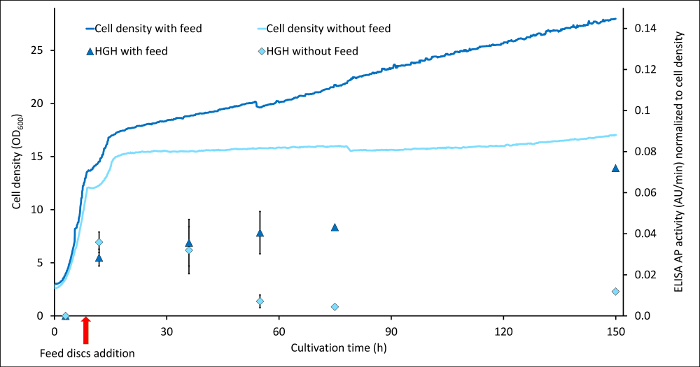
图2:批式培养与补料批式培养中人生长激素(hGH)表达的比较 hGH 含量通过 ELISA 在 405 nm 处的吸光值表示,其中 2nd 抗体为HRP融合蛋白,检测时以TMB作为底物。图中显示了两种不同培养条件下的结果:浅蓝色线条和方块表示批次培养后未添加任何补料的培养物,其细胞密度及按细胞密度归一化的hGH浓度;深蓝色线条和三角形表示应用了甘油补料片的培养物。误差线表示六次重复实验(两次生物学重复,每次三个技术重复)的标准偏差。 请点击此处以查看此图的放大版本。
| PDC-GOX 在 160 小时培养时间下的表现 | OD600 | 体积活性 [U/mL] | 分泌蛋白总量 [mg/mL] | 单位细胞密度的体积活性 | |||
| 平均值 | 标准差 | 平均值 | 标准差 | 平均值 | 标准差 | 平均值 | |
| BMD1% 分批培养 + 甘油脉冲补料 | 74.6 | 2 | 8.4 | 2.4 | 0.21 | 0.01 | 0.11 |
| BMD1% 分批培养 + 恒速甘油流加 | 32.5 | 0.3 | 9.4 | 0.7 | 0.09 | 0.01 | 0.29 |
| BMD1% 分批培养 | 18.8 | 0.6 | 3.7 | 0.7 | 0.01 | 0 | 0.2 |
表1:在去阻遏启动子 PDC调控下甲醇非依赖型GOX表达的结果。
讨论
该方法提供了一种可靠的、无需甲醇的高效诱导表达方案 P. pastoris 作为经典甲醇诱导蛋白表达的替代方法,由 PAOX112. 可去阻遏的启动子,例如 P直流,PDF 或先前描述的突变体 PAOX1 变异体17,构建了这一新型蛋白质生产概念的分子基础。所示的代表性结果凸显了重组蛋白表达在 P. pastoris 通过去阻遏型启动子和简易在线监测的小规模筛选。一方面,通常用于诱导的有害且有毒的甲醇 AOX1 启动子可在培养过程中被消除。另一方面,细胞生长与蛋白生产阶段是解偶联的9 与组成型蛋白表达相比 例如,与常用的 PGAP这一点在细胞需要表达对其具有毒性和有害作用的蛋白质时尤为有利。
以不同碳源浓度起始培养的可能性,使得研究者可以决定在蛋白表达阶段开始前希望获得多少生物量。在分批培养中选择较低的碳源浓度,可减少因细胞密度过高导致的氧传质限制;而另一方面,较高的细胞密度也可能带来更高的蛋白滴度。通过监测培养过程中生物量的生成和氧气浓度的变化,可以轻松确定流加补料培养的最佳起始时间点,如图1所示。
为了在线监测这些培养参数,应使用合适的测量系统。生物量测量装置(例如,SFR Vario)是一种用于摇瓶培养监测的简单且经济的在线测量系统。该光学电子读取器通过散射光检测法测定瓶内细胞生长情况,并读取集成在摇瓶内的氧气传感器信号。用于生物量测量的光学系统包含一个发射光信号的发光二极管,该光信号被培养液中的颗粒(细胞)散射后,由光电二极管检测。光学传感器在特定波长的光激发下会发出荧光。根据待测分析物分子的数量不同,荧光信号随之变化,读取器的光学系统检测该变化并将其转换为浓度值。然而,由于该测量系统并不直接测定实际的OD600 值,因此必须事先建立细胞密度测量的校准曲线。通过读取器软件,可根据氧气变化曲线的斜率计算出氧消耗速率,同时温度和转速也与其他参数一起被持续记录。为实现该系统的监测功能,摇瓶必须预先安装适用于目标参数的相应传感器。
通过添加四个缓释聚合物圆片,向培养基中持续提供甘油,几乎可以完全抑制生物量的积累,同时持续进行重组蛋白的生产。在本实验中,添加喂养圆片的时间点并非关键步骤,但需注意:若在对数生长期之前过早开始喂养,可能会抑制启动子的激活,因为表达是在碳源耗尽时才开始的。此外,由于聚合物容量的限制,总喂养时间可能会缩短;而在细胞进入稳定期后延迟喂养,则可能导致细胞饥饿以及已产生蛋白的降解。本方案中所使用的喂养圆片数量是通过实验确定的,旨在实现最佳的碳源释放,既保持启动子处于去阻遏状态,又使生物量生成维持在较低水平(数据未显示)。通过这种方式,培养过程可轻松持续160至180小时,无需任何干预。
该新方案的主要应用包括表达克隆筛选、酶的进化,以及在严格监控条件下采用无甲醇培养方案对新启动子进行发现、表征和改造。原则上,该方案同样适用于混合补料策略,即同时使用甲醇和有限的可发酵碳源进行补料,如Panula-Perälä et al. 于2014年所述18。
披露
尽管本方案通常适用于去阻遏条件下的培养和诱导,但bisy e.U. 宣布其对本研究中使用的新型去阻遏启动子的商业化拥有利益关系。
致谢
ROBOX 已获得欧盟(EU)项目 ROBOX(资助协议编号 n° 635734)在欧盟“地平线 2020”计划研究与创新行动 H2020-LEIT BIO-2014-1 项下的资金支持。本文所表达的观点和意见仅为作者(们)的观点,不一定反映欧盟研究机构的观点。欧盟对本文所含信息的任何使用不承担任何责任。
J. Fischer 的博士论文由一项资助共同资助 "贴近工业的博士论文" 奥地利资助机构 FFG。
我们感谢 Gernot John(PreSens GmbH)对本文初稿提供的有益讨论和宝贵意见。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 酵母提取物(Bacto Yeast Extract) | BD Biosciences | 212720 | |
| 带挡板锥形瓶,250 mL | DWK Life Science | 212833655 | |
| 植物蛋白胨(BBL Phytone Peptone) | BD Biosciences | 298147 | |
| 生物分光光度计(BioPhotometer) | Eppendorf AG | 5500-200-10 | |
| Certoclav-EL | CertoClav GmbH | 9.842 014 | |
| 不含氨基酸的酵母氮源基础培养基(Difco Yeast nitrogen base w/o amino acids) | BD Biosciences | 291920 | |
| 甘油进料盘(Feed discs glycerol) | Adolf Kuhner AG | 315060 | |
| 一水葡萄糖 | Carl Roth GmbH + Co. KG | 6887 | |
| 甘油 ≥98 % | Carl Roth GmbH + Co. KG | 3783 | |
| K2HPO4 | Carl Roth GmbH + Co. KG | 6875 | |
| KH2PO4 | Carl Roth GmbH + Co. KG | 3904 | |
| Multitron Standard | Infors AG | 444-4226 | |
| SFR Vario v2 | PreSens GmbH | 200001689 |
参考文献
- Bill, R. M. Playing catch-up with escherichia coli: Using yeast to increase success rates in recombinant protein production experiments. Frontiers in Microbiology. 5 (MAR), 1-5 (2005).
- Cregg, J. M., Cereghino, J. L., Shi, J., Higgins, D. R. Recombinant Protein Expression in Pichia pastoris). Molecular Biotechnology. 16, 23-52 (2000).
- Weinhandl, K., Winkler, M., Glieder, A., Camattari, A. Carbon source dependent promoters in yeasts. Microbial Cell Factories. 13, 5(2014).
- Vogl, T., Kickenweiz, T., Sturmberger, L., Glieder, A. Bidirectional Promoter. US patent. , 20150011407 (2005).
- Vogl, T., Glieder, A. Regulation of Pichia pastoris promoters and its consequences for protein production. New Biotechnology. 30 (4), 385-404 (2013).
- Rußmayer, H., et al. Systems-level organization of yeast methylotrophic lifestyle. BMC Biology. 13 (1), 80(2015).
- Sakai, Y., Yurimoto, H., Matsuo, H., Kato, N. Regulation of peroxisomal proteins and organelle proliferation by multiple carbon sources in the methylotrophic yeast, Candida boidinii. Yeast. 14 (13), 1175-1187 (1998).
- Hartner, F. S., Glieder, A. Regulation of methanol utilisation pathway genes in yeasts. Microbial Cell Factories. 5, 39(2006).
- Vogl, T., et al. A Toolbox of Diverse Promoters Related to Methanol Utilization: Functionally Verified Parts for Heterologous Pathway Expression in Pichia pastoris. ACS Synthetic Biology. 5 (2), 172-186 (2016).
- Mellitzer, A., Weis, R., Glieder, A., Flicker, K. Expression of lignocellulolytic enzymes in Pichia pastoris. Microbial Cell Factories. 11 (1), 61(2012).
- Macauley-Patrick, S., Fazenda, M. L., McNeil, B., Harvey, L. M. Heterologous protein production using the Pichia pastoris expression system. Yeast. 22 (4), 249-270 (2005).
- Weis, R., Luiten, R., Skranc, W., Schwab, H., Wubbolts, M., Glieder, A. Reliable high-throughput screening with Pichia pastoris by limiting yeast cell death phenomena. FEMS Yeast Research. 5 (2), 179-189 (2004).
- Ukkonen, K. Improvement of Recombinant Protein Production in Shaken Cultures. , Acta University Oulu C 480 (2014).
- Jeude, M., et al. Fed-batch mode in shake flasks by slow-release technique. Biotechnology and Bioengineering. 95, 433-445 (2006).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Analytical Biochemistry. 72, 248-254 (1976).
- Smith, B. J. SDS Polyacrylamide Gel Electrophoresis of Proteins. Methods in molecular biology. 1, 41-55 (1984).
- Hartner, F. S., et al. Promoter Library Designed for Fine-Tuned Gene Expression in Pichia Pastoris. Nucleic Acids Research. 36 (12), e76(2008).
- Panula-Perälä, J., Vasala, A., Karhunen, J., Ojamo, H., Neubauer, P., Mursula, A. Small-scale slow glucose feed cultivation of Pichia pastoris without repression of AOX1 promoter: towards high throughput cultivations. Bioprocess and Biosystems Engineering. 37 (7), 1261-1269 (2014).
重印与许可
标签
