本文介绍了一种用于体外定性检测抗原特异性CD8+ T细胞的实验方案。该方法可利用器官来源的单细胞悬液或少量血液进行分析。多种研究均需对细胞毒性T细胞应答进行分析,例如疫苗接种研究和癌症免疫治疗研究。
本文内容
摘要
摘要
病毒感染后,抗原特异性的CD8+ 细胞毒性T细胞(CTLs)产生并参与清除被感染的细胞,以防止病原体扩散。因此,抗原特异性CTL的频率可反映T细胞针对特定抗原应答的强度。此类分析在基础免疫学、疫苗研发、肿瘤免疫生物学及适应性免疫学中具有重要意义。在疫苗领域,针对病毒载体组分的CTL应答共同决定了针对目标抗原(即感兴趣抗原)的抗原特异性细胞生成的有效性, 转基因)是什么。抗原特异性CTL可通过特异性肽段刺激后进行细胞内细胞因子染色,或通过直接染色抗原特异性T细胞受体(TCRs)并结合流式细胞术分析来检测。第一种方法较为耗时,因其需要处死动物以从器官中分离细胞,同时还需要从小型动物中采集血液,操作难度较大。后一种方法则更为快速,仅需少量血液即可完成,且不依赖于特定的效应功能(如细胞溶解活性)。MHC四聚体是检测抗原特异性TCRs的理想工具。
本文介绍一种通过MHC I类四聚体染色和流式细胞术,同时检测针对病毒载体VSV-GP(LCMV-GP、VSV-NP)和外源基因(OVA、HPV 16 E7、eGFP)免疫优势肽的抗原特异性细胞毒性T淋巴细胞(CTL)的实验方案。该染色方法可直接用于全血样本,也可用于脾脏等器官制备的单细胞悬液。将血液或器官单细胞悬液与四聚体共同孵育后,再使用抗CD3和抗CD8抗体进行染色,通过流式细胞术定量抗原特异性CTL。此外,可选择性地加入抗CD43、CD44、CD62L或其他抗体,以评估抗原特异性CD8+T细胞的活化状态,并区分初始T细胞与效应T细胞。
引言
本方法旨在通过流式细胞术分析,无需耗时的肽段刺激,即可评估小鼠体内细胞毒性T淋巴细胞(CTL)对(多种)抗原反应的频率。该方法可在单次染色中同时分析CTL亚群的表型及其抗原特异性。我们优化了主要组织相容性复合体I类(MHC I)四聚体染色方案,用于评估新型疫苗策略(如VSV-GP)的有效性。VSV-GP是水疱性口炎病毒(VSV)的一种新变体,其VSV糖蛋白G已被淋巴脉络丛脑膜炎病毒(LCMV)的糖蛋白GP所取代1,2。除体液免疫反应外,疫苗有效性的一个重要评价指标是诱导针对一种或多种抗原的CTL反应。鉴于细胞免疫反应的一致性和持久性在此背景下至关重要,因此最好能对同一只动物进行CTL反应动力学的连续监测。这也将减少实验动物的使用数量,符合“3Rs”原则中的重要要求"3Rs"3。因此,仅需20 µL血液即可实现这一目的,是最优选择。
四聚体于20世纪90年代末期被开发出来4 并成为T细胞免疫学领域的重要工具。四聚体是由四个荧光标记的MHC I/肽分子组成的复合物,可结合针对单一肽段的T细胞受体(TCR)。如今,这些四聚体可直接购买现成产品5,可免费在埃默里大学国家卫生研究院四聚体核心实验室定制订购6 或在实验室中制备7MHC I 和 II 四聚体可提供, 即 CD8+ 和 CD4+ T细胞。四聚体染色的优势在于节省时间,且操作相对简单,易于标准化8 方案,以及灵敏度9此外,若使用血液样本,则无需处死动物,且所需样本量极少。一次检测不仅限于单一抗原,通过结合不同荧光素标记的四聚体,可在一次染色中同时分析多种抗原。新发现的抗原(例如来自多肽筛选的抗原)可轻松整合到四聚体中,用于T细胞亚群的定量分析。
四聚体染色无法提供关于CTL功能性的信息(即.,细胞因子产生,效应功能),但仅限特异性。要获得关于T细胞功能的信息,需要进行胞内细胞因子染色(ICS)或酶联免疫斑点(ELISpot)检测8,10四聚体染色与胞内细胞因子染色/酶联免疫斑点法(ICS/ELISpot)并非重复,而是互为补充。ICS/ELISpot所需的体外刺激以诱导细胞因子产生,会改变T细胞原有的表型;而四聚体染色则不会对T细胞造成干扰,其原始表型得以保留并可用于分析。此外,四聚体的另一大优势在于染色后可与磁珠分选技术结合,实现对抗原特异性T细胞的富集。11这使得稀有细胞群体的分析成为可能,同时也可对分选后具有明确抗原特异性的细胞进行培养——这一特点为其他方法所不具备。
根据本方案所述,可从同一器官同时进行四聚体染色以及胞内细胞因子染色(ICS)/酶联免疫斑点(ELISpot)实验,因为四聚体染色仅需极少量样本(血液:20 µL;脾脏:1 × 10⁶ 个细胞)。然而,具体所需细胞数量可能需根据目标抗原特异性细胞的频率、相应T细胞受体(TCR)的亲和力以及实验条件进行调整,必要时可增加细胞用量或采用磁珠富集方法。
四聚体被广泛应用,例如用于评估(抗肿瘤)疫苗12,13,14,15 或免疫治疗16,17 的有效性,以及抗原特异性T细胞亚群的表型分析和空间定位18,19,20,21,22,23。本文所述方法适用于需要快速、便捷地在分析中纳入小鼠抗原特异性CD8+ T细胞定量和表型分析的研究。
方案
所描述的所有方法均遵循奥地利国家动物实验法(“Tierversuchsgesetz”),并已获得奥地利国家主管部门的动物实验许可。
1. 缓冲液配制与样品采集
注意: 所使用的小鼠品系取决于所分析的表位。选择能够结合小鼠体内表达的MHC类型的合适四聚体,例如, H-2Kb 用于 C57BL/6 小鼠。动物的性别和年龄将取决于具体的科学问题。对于此处描述的大多数实验,在实验开始时使用 6–8 周龄的雌性小鼠,即, 初次免疫。
- 配制FACS缓冲液(磷酸盐缓冲液(PBS)+ 1% 胎牛血清(FCS)+ 0.1% 叠氮化钠 + 2 mM 乙二胺四乙酸(EDTA))和FACS固定缓冲液(PBS中含1.5%(v/v)甲醛)。
注意: 建议提前配制两种缓冲液,4 °C 保存备用。 - 血液:按照先前所述方法,使用经EDTA包被的试管从小鼠尾静脉采集每只小鼠20 µL血液24.
注意: 血液也可通过其他途径采集,例如, 面静脉或眶后窦。然而,采血方法必须符合国家动物实验法规和动物试验申请要求。尾静脉采血适用于需要反复采集少量血液的研究。此外,还需准备用于补偿对照和未染色对照的额外材料。 - 脾脏:分离器官后,借助注射器活塞将组织通过70 nm和40 µm细胞筛网过滤。按步骤6所述进行红细胞裂解,并计数。调整细胞浓度至1 × 10⁷ 细胞/mL(PBS中)。每个样本1 × 106 需要细胞。
注意: 始终将一些模拟免疫或对照载体免疫的动物作为阴性对照。对于卵清蛋白(OVA)四聚体检测,可使用OT-1小鼠的样本作为阳性对照。在分析时切勿遗漏未染色对照和补偿对照。如有需要,可合并实验中不同动物的样本用于此目的。 - 样本采集后,立即进行染色。
2. 染色设置
- 为每个样本准备一个流式管。正确标记试管,并将100 μL器官悬液(1 × 10⁶ 个细胞)或20 μL血液转移至各试管中。
- 脾脏:在4–8 °C条件下以600 × g 离心5分钟,弃去上清液。涡旋振荡以重悬细胞沉淀。
注意:此步骤后残留体积约为20 µL,与血液样本的体积相近。 - 对于每个拟使用的检测通道,还需准备一个用于补偿调节的流式管。另准备一个额外样本作为未染色对照。
3. 四聚体染色
- 每个样本使用 50 μL 四聚体稀释液。有关推荐的四聚体及优化稀释比例,请参见表 1。
注意: 处理四聚体或抗体时,关闭生物安全柜的照明灯,并避免样品暴露于光线下。- 准备一管FACS缓冲液(体积 = 50 μL × 样本数量,另加总体积的10%以补偿移液误差)。
- 加入四聚体(按所列的最佳稀释比例) 表1涡旋混匀溶液。
注意: 使用完整的抗体组合(CD3、CD8、CD43、CD44、CD62L)及所列荧光素时,可同时包含两种四聚体(PE 和 APC 标记)。两种四聚体可在一次染色中联合使用。 即, 可同时使用两种四聚体对细胞进行染色。
| 四聚体 | 肽序列 | 等位基因 | 荧光素 | 稀释比例 |
| MHC I/OVA | SIINFEKL | H-2Kb | APC | 1:25 |
| MHC I/VSV-NP | RGYVYQGL | H-2Kb | PE | 1:25 |
| MHC I/EGFP | HYLSTQSAL | H-2Kd | PE | 1:25 |
| MHC I/LCMV-GP | KAVYNFATC | H-2Db | APC | 1:25 |
| MHC I/HPV 16 E7 | RAHYNIVTF | H-2Db | APC | 1:10 |
表1:推荐的四聚体及最佳稀释度。 针对某些模型抗原(卵清蛋白(OVA)和增强型绿色荧光蛋白(eGFP))或病原体成分(水疱性口炎病毒(VSV)核蛋白(NP)、淋巴细胞性脉络丛脑膜炎病毒(LCMV)糖蛋白(GP)和人乳头瘤病毒(HPV)E7癌蛋白(E7))的免疫优势肽段,推荐使用的四聚体。每种四聚体均列出了相应的肽段序列和等位基因,以及推荐的荧光染料和优化后的稀释比例。
- 向每个样本中加入 50 μL 四聚体稀释液,并轻轻涡旋混匀。向补偿对照样本和未染色样本中仅加入 FACS 缓冲液(不含四聚体)。
- 将样本在 37 °C 避光孵育 20 分钟。为确保从四聚体染色到抗体染色的顺利过渡,在孵育期间按照步骤 4 所述方法配制抗体混合液。
注意:对于每种单独的四聚体,需优化其最佳条件(稀释比例、孵育时间和温度)。
4. 抗体的制备
- 每个样本准备 50 µL 抗体混合液。
- 准备一个含有 FACS 缓冲液的离心管(体积 = 50 μL × 样本数量,另额外加入总体积的 10% 以补偿移液误差)。
- 按照 表 2 中列出的稀释比例加入抗体。
注意: 根据具体科学问题,可使用不同于本文所述的其他标志物组合。请确保抗体组合中始终包含针对 CD3 和 CD8 的抗体。 - 涡旋振荡溶液。
| 抗体 | 荧光染料 | 稀释比例 | µg/样本 | 标记物 |
| CD3 | PE-Cy7 | 1:200 | 0.05 | CTLs (CD3+CD8+) |
| CD8 | Pacific Blue | 1:750 | 0.013 | |
| V450 | 1:100 | 0.1 | ||
| CD43 | FITC | 1:100 | 0.25 | 活化标志 (CD43+) |
| CD44 | PE-Cy5 | 1:250 | 0.04 | 初始型 (CD44-CD62L+) & 效应型 (CD44+CD62L-) |
| CD62L | APC-Cy7 | 1:500 | 0.02 |
表2:本方案中使用的抗体及其最佳稀释比例。 第一列列出了推荐的表面标志物(CD3、CD8、CD43、CD44 和 CD62L)。针对每种标志物,列出了推荐的荧光素、优化的稀释比例以及每样本所用的抗体用量。最后一列指明了各标志物所识别的细胞类型。
- 准备用于补偿对照的抗体。针对每个补偿对照,使用相应荧光标记的抗CD8抗体。
- 针对每个通道,准备一支含有200 μL FACS缓冲液的离心管,并加入1 μL相应荧光标记的抗CD8抗体(按1:200稀释)。
- 涡旋振荡各管。
- 立即进行染色操作。
5. 样品染色
- 加入约 1 mL FACS 缓冲液洗涤样本,于 4–8 °C 条件下以 600 × g 离心 5 分钟。离心后弃去上清液,并将残留液体在纸巾上吸干。
注意:处理血液样本时,在去除残留液体过程中需格外小心。在红细胞裂解前,血液不会牢固附着于 FACS 管底部。也可采用移液器吸取上清液的方式去除液体。 - 向每份细胞沉淀中加入 50 μL 抗体混合液,轻轻涡旋混匀。
- 向相应补偿对照的细胞沉淀中各加入 50 μL 对应的补偿微球混合液,轻轻涡旋混匀。
- 向未染色对照的细胞沉淀中加入 50 μL FACS 缓冲液,轻轻涡旋混匀。
- 将所有样本在 4 °C 避光孵育 30 分钟。
- 当处理组织样本时:跳过步骤 6。加入约 1–2 mL FACS 缓冲液洗涤一次,于 4–8 °C 条件下以 600 × g 离心 5 分钟。离心后弃去上清液,并将残留液体在纸巾上吸干。
- 当处理血液样本时:继续进行步骤 6(红细胞裂解)。
6. 红细胞裂解
- 向每个样品中加入 500 μL ACK(氯化铵-氯化钾)缓冲液25,并轻轻涡旋混匀。
注意:ACK 缓冲液会引起渗透性膨胀和裂解,特异性地裂解红细胞。 - 在室温避光条件下孵育 5 分钟。
- 加入 1 mL FACS 缓冲液,于 4–8 °C 以 600 × g 离心 5 分钟。离心后弃去上清液,并将残留液体在纸巾上吸干。
注意:若沉淀呈较明显的红色,需重复红细胞裂解步骤。 - 加入约 1–2 mL FACS 缓冲液洗涤一次,于 4–8 °C 以 600 × g 离心 5 分钟。离心后弃去上清液,并将残留液体在纸巾上吸干。
7. 流式细胞术检测与分析
- 向每支试管中加入 150–300 μL FACS 固定缓冲液,并通过涡旋混合。对于 20 µL 血液,150 µL 缓冲液已足够。
注意:固定前,请确保细胞充分重悬,以防止形成团块。应尽快进行流式细胞术检测。 - 检测补偿对照,并校正任何光谱重叠。
- 设置连续门控,如 图 1 所示,以筛选 CD3+/CD8+ 细胞。
- 使用前向散射和侧向散射(面积)(非对数尺度)对淋巴细胞进行门控。
- 在淋巴细胞群体内,使用前向散射宽度与面积(非对数尺度)对单细胞进行门控。
- 使用 CD3 和 CD8 通道(对数尺度)绘制单细胞淋巴细胞图,并通过门控 CD3+/CD8+ 细胞来鉴定 CD8+ T 细胞。
- 绘制 CD8+ 与 Tetramer+ 细胞图,并对 CD8+ Tetramer+ 细胞进行门控,如 图 2 所示。
- 如有可能,每个样本在 CD3+/CD8+ 门控中记录 20,000 个细胞(血液样本至少记录 5,000 个细胞),并保存为 FCS 文件。
注意:记录的细胞数量可能需要根据目标抗原特异性细胞的频率进行调整。 - 使用适当的分析软件分析 FCS 文件。采用上述(第 7.3 节)所述的门控策略,定量 CD8+ Tetramer+ 细胞。
结果
图1 演示如何正确圈选本方案中的目标细胞,即 CD3+/CD8+ 细胞。需要注意的是,活化的细胞通常会下调T细胞受体26,27 因此,CD3低 细胞也应包含在门控范围内。在门控 CD3 后+/CD8+ 细胞,可鉴定出四聚体阳性细胞(图2)。图中显示了阴性对照(未免疫)小鼠以及分别接种了分泌OVA的腺病毒5型(Adeno-OVA)或表达OVA的VSV-GP(VSV-GP-OVA)的小鼠的代表性印迹。如下方印迹图所示,两种不同的四聚体可在同一管中联合用于染色,从而可同时定量两种不同特异性的细胞毒性T淋巴细胞(CTL):病毒特异性(VSV N)和转基因特异性(OVA)CTL。我们已证实,单个或双四聚体染色对每种四聚体检测出的阳性细胞比例相似。利用本方案,还可检测其他病毒特异性(如.,LCMV GP,HPV 16 E7)或转基因特异性(例如., GFP标记的T细胞群体可以进行分析(补充图1)。在 补充表1,显示了五只动物在免疫VSV-GP-OVA后的结果——表明四聚体染色具有良好的稳健性。
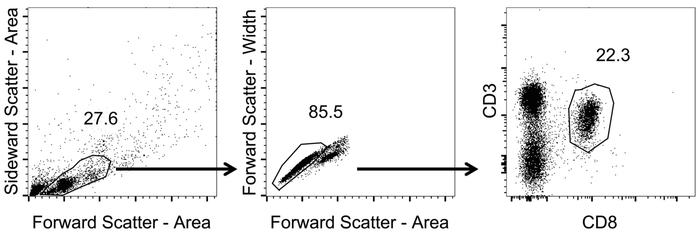
图1:血液中CD8+ T细胞分析的代表性设门策略。 用于流式细胞术分析的设门策略示意图。在四聚体染色并完成流式细胞术检测后,对数据进行分析。首先通过前向散射和侧向散射(面积)(非对数刻度)圈定淋巴细胞群体;在此基础上,通过前向散射宽度对面积(非对数刻度)区分单细胞。CD8+ T细胞通过CD3+/CD8+细胞设门确定(对数刻度)。请点击此处查看该图的放大版本。
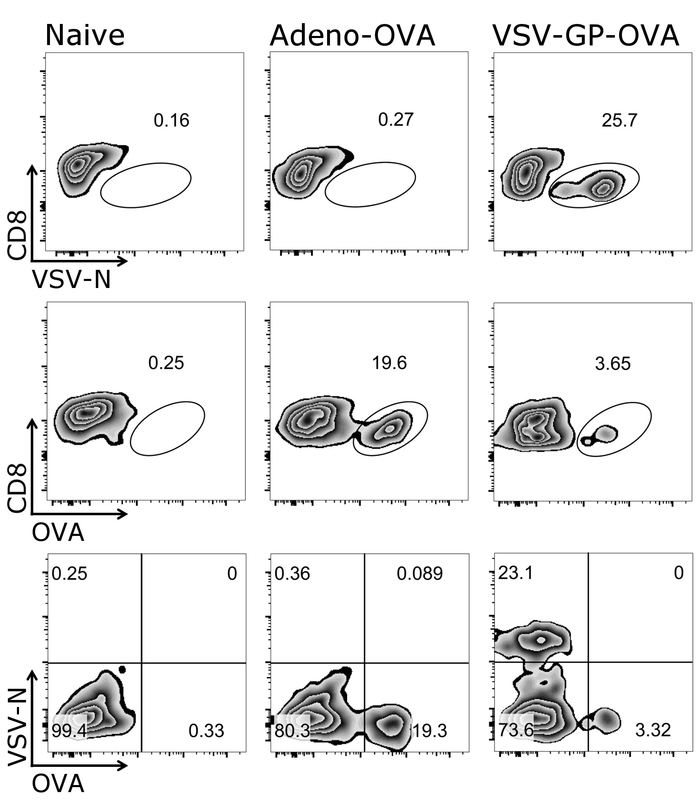
图2:血液中OVA特异性和N特异性CD8+ T细胞定量的代表性设门策略。 用于流式细胞术定量四聚体+细胞的设门策略示意图。使用CD3+/CD8+细胞进行四聚体分析。上图和中图:CD8标记物与相应四聚体(对数尺度)的关系图。下图:两种四聚体相互对照绘制(对数尺度)。左图:对照(未免疫)小鼠;中图:小鼠接种分泌OVA的5型腺病毒(Adeno-OVA);右图:小鼠接种表达卵清蛋白(OVA)的VSV-GP(VSV-GP-OVA)。免疫后第7天从小鼠尾静脉采集血液。请点击此处查看该图的放大版本。

补充图1:疫苗接种后CD3+/CD8+ 四聚体+ 细胞的代表性结果。 四聚体+ 细胞流式细胞术定量分析的示意图。使用CD3+/CD8+ 细胞进行四聚体分析,CD8标记物与相应的四聚体(对数刻度)进行对照作图。左侧:小鼠为未免疫状态;右侧:小鼠接种了VSV-GP(上图)、表达增强型绿色荧光蛋白(eGFP)的VSV-GP(中图)或表达人乳头瘤病毒(HPV)E7癌蛋白(E7)的VSV-GP(下图)。免疫后第7天从小鼠尾静脉采血,并用四聚体(LCMV-GP、eGFP和HPV E7)进行染色。请点击此处查看该图的放大版本。
本方案的一个显著优势是,由于每次检测仅需少量血液,因此可以对同一只小鼠的T细胞反应进行长期动态追踪。图3展示了T细胞反应随时间变化的代表性结果。除了检测抗原特异性CTL的数量外,还可利用本方案分析其表型(图4)。
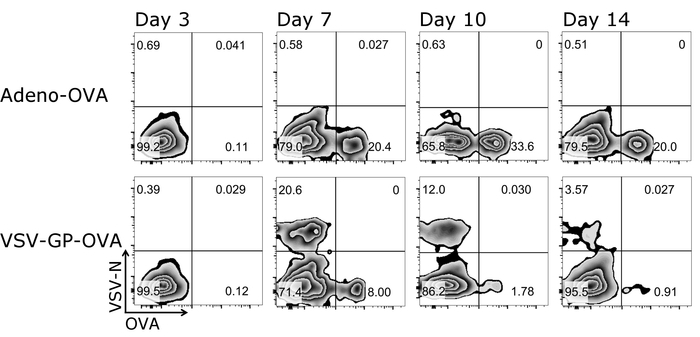
图 3:疫苗接种后血液中 CD8+ T 细胞动力学的代表性结果。 用于流式细胞术定量四聚体+ 细胞的设门策略示意图。采用 CD3+/CD8+ 细胞进行四聚体分析,并将两种四聚体相互对照作图(对数刻度)。上图:小鼠接种分泌卵清蛋白(OVA)的 5 型腺病毒(Adeno-OVA);下图:小鼠接种表达卵清蛋白(OVA)的 VSV-GP(VSV-GP-OVA)。免疫后第 3、7、10 和 14 天从小鼠尾静脉采血。请点击此处查看该图的放大版本。

图4:疫苗接种后CD8+ T细胞活化并分化为初始细胞和效应细胞的代表性结果。 流式细胞术定量分析活化(CD43+)、初始(CD44-/CD62L+)和效应(CD44+/CD62L-)CD3+/CD8+细胞所用设门策略的示意图(对数尺度)。左:对照(初始)小鼠;中:小鼠接种分泌卵清蛋白(OVA)的5型腺病毒(Adeno-OVA);右:小鼠接种表达卵清蛋白(OVA)的VSV-GP(VSV-GP-OVA)。免疫后第7天从小鼠尾静脉采血。请点击此处查看该图的放大版本。
| 小鼠编号 | % CD43+ | % VSV-N 四聚体+ | % OVA 四聚体+ | |
| 对照 | 1 | 1.7 | 0.45 | 0.41 |
| 2 | 0.77 | 0.69 | 0.15 | |
| 3 | 1.34 | 0.35 | 0.31 | |
| 4 | 1.68 | 0.83 | 0.26 | |
| 5 | 0.84 | 0.47 | 0.23 | |
| VSV-GP-OVA | 1 | 23 | 13.2 | 3.69 |
| 2 | 32.6 | 15.9 | 3.54 | |
| 3 | 22.1 | 11.7 | 2.43 | |
| 4 | 15.1 | 8.89 | 1.79 | |
| 5 | 29.1 | 14.7 | 5.64 |
补充表 1:疫苗接种后活化的及抗原特异性 CD3+/CD8+ 细胞的百分比。小鼠为未免疫状态或经表达卵清蛋白(OVA)的 VSV-GP(VSV-GP-OVA)免疫(n = 5)。免疫后第 7 天从小鼠尾静脉采集血液,并用四聚体(VSV-N 和 OVA)进行染色。通过流式细胞术定量分析活化(CD43+)和抗原特异性(四聚体+)的 CD3+/CD8+ 细胞。
讨论
四聚体染色是一种相当直接且简单的方案,用于分析T淋巴细胞的表型及其对肽段的特异性。如本文所述,使用血液进行分析具有最小侵入性,可实现连续监测,例如在疫苗研究中。在疫苗领域,定量分析载体特异性和抗原特异性免疫应答具有重要意义,因为针对载体的免疫应答可能会阻碍对疫苗抗原的有效免疫反应28。值得注意的是,通过本方案所述的方法,可在一次四聚体染色实验中同时定量检测这两类细胞群体,从而减少染色变异性和样本用量。然而,为确保准确测量和获得可靠数据,有几个步骤需要特别注意。若使用尾静脉采血进行分析,应预先对动物进行保温处理以诱导血管扩张24,这样可在短时间内采集到足够血液,减少动物应激,并显著提高分析质量,相较于缓慢采血更为优越。此外,在样本采集(无论是血液还是组织器官)后,建议立即进行染色,以避免因T细胞受体(TCR)下调而导致假阴性结果。此原则同样适用于后续所有操作步骤:实验流程不应中断,所有洗涤步骤应减少至协议中规定的最低次数。为确保染色效果,在孵育前后应对所有溶液和样本进行充分涡旋振荡,尤其是在固定样本前,此操作尤为关键,可防止细胞结团。
在修改实验方案时,可根据分析目的选用其他表面标志物和四聚体。然而,所有试剂均需进行滴定,最好与完整的染色方案组合进行优化。对于此处列出的某些四聚体,优化结果表明,我们可将制造商推荐的稀释比例进一步提高(制造商推荐1:10,优化后为1:25)(表1)。为补偿光谱重叠,可使用补偿微珠替代染色细胞。关于四聚体偶联荧光染料的选择,建议使用亮度较高的荧光染料,这有助于提高检测灵敏度——尤其是在信号较弱的情况下。与Dolton及其同事29类似,我们更倾向于使用PE或APC偶联的四聚体,它们可在单次染色中完美组合,并能清晰检测出具有单一抗原特异性的CD8+ T细胞(图2)。关于温度和孵育时间,目前存在多种四聚体染色条件。在我们的优化过程中,针对该问题在不同条件下(例如4 °C、室温或37 °C)进行了四聚体染色实验。根据所得结果,我们推荐在37 °C下孵育20分钟,该条件与文献报道一致30,31。应避免延长孵育时间,因为这可能导致四聚体被细胞内化30,从而产生假阴性结果。
选择合适的抗体用于检测CD8+细胞是另一个需要仔细考虑(并可能进行调整)的重要问题。这是因为某些抗CD8抗体克隆会阻断四聚体与TCR的结合,这一现象在人32和小鼠33样本中均存在。在我们的四聚体染色方案中,我们选用克隆53–6.7来标记小鼠CD8+细胞——该克隆不会造成阻断,反而能够增强四聚体染色效果。
四聚体染色在分析T细胞应答高峰期的显著免疫反应时相对简单。然而,可能存在一些较为“棘手”的细胞群体。此类例子包括特异性识别低亲和力抗原(如肿瘤抗原、自身抗原)的细胞、近期被激活后继而下调其受体表达的细胞,或稀有细胞亚群(例如. 初始前体细胞或记忆细胞群体)。在这些情况下,传统的四聚体染色方案可能需要优化或与其他方法联用。例如,蛋白激酶抑制剂(PKI)达沙替尼可抑制TCR内化,可在四聚体染色前加入。四聚体染色后,还可通过加入未偶联的抗荧光素一抗来稳定四聚体信号。此外,通过添加荧光素偶联的二抗可增强荧光强度。29,34,35,36我们针对本方案中指定的四聚体优化了条件,未包含PKI或额外的抗体。然而,对于其他任何四聚体,必须单独调整最佳条件。针对稀有细胞群体,四聚体染色可能需要与磁珠富集结合使用。11.
为促进并验证四聚体染色的流式细胞术分析,应包括阴性对照和阳性对照。作为阴性对照,我们始终使用相同品系的未免疫小鼠细胞,并以目标四聚体进行染色。或者,也可使用携带无关肽段但带有与目标四聚体相同荧光染料的四聚体对样本进行染色。此类对照对于排除假阳性信号至关重要,例如., 来自死亡细胞。此外,建议使用活/死细胞染色剂(如碘化丙啶,PI)进行染色,尤其在细胞分离后未立即染色的情况下更为重要。另一种降低自发荧光背景的策略是在一个检测通道中同时加入多个非T细胞标记物,通过排除该通道中呈阳性的细胞,可有效去除非T细胞群体。作为阳性对照,例如可使用OT-1小鼠的样本用于OVA四聚体检测;对于其他四聚体,则需根据具体情况单独选择相应的阳性对照(如., 来自一只经过多次免疫的小鼠的样本)。与其他方法类似37,我们还观察到效应T细胞反应第7天细胞毒性T淋巴细胞(CTL)活化过程中CD8受体的表达下调。因此,为避免活化四聚体的丢失+ 效应T细胞,我们建议包含CD8低 分析中的细胞(至少在效应阶段测量时)。
从本实验方案中能够获取的信息质量和数量取决于对所研究抗原的了解程度、四聚体试剂的可获得性及其特异性,以及流式细胞仪的质量(激光器数量和可用检测器)。若使用动物样本,免疫应答的个体差异是自然且不可避免的。因此,为了获得有意义的四聚体染色结果,至少应分析3–5只动物。若满足此条件,本文所述方案将产生可靠且可重复的结果(一个实验的示例结果见补充表1)。如前所述,该方法非常适合用于定量分析CD8+ T细胞的表型及抗原特异性(图3、4;补充图1),不仅适用于小鼠,也适用于人类。然而,若要分析CD8+ T细胞的效应功能(如颗粒酶介导的细胞死亡),则需进行胞内细胞因子染色(ICS)和/或ELISpot实验。但需要注意的是,通过体外刺激所测得的T细胞功能可能无法完全反映体内真实情况。在体内,抑制性微环境可能会抑制T细胞功能,而这些功能在体外实验中却可能被检测到。
单凭四聚体染色法并不能提供全部信息,但该技术已发展成为一种极为敏感的体外分析T细胞应答及定量T细胞亚群的关键方法38。四聚体不仅可用于定量特定T细胞亚群,还可用于分离这些细胞39,通过原位杂交对其进行定位19,20,以及研究低亲和力抗原,例如肿瘤相关抗原40,41。自四聚体技术被发现以来4,四聚体染色已成为T细胞分析及多种应用中不可或缺的工具。
披露
Dorothee von Laer 是 VSV-GP 的发明人之一,并持有生物技术公司 ViraTherapeutics GmbH 的少数股份,该公司拥有 VSV-GP 的知识产权。其他作者不存在竞争性经济利益。
致谢
本项目由奥地利科学基金FWF(项目编号P 25499-B13)以及欧盟“地平线2020”研究与创新计划(资助协议编号681032)资助。以下试剂由美国国立卫生研究院(NIH)四聚体核心实验室提供:针对水疱性口炎病毒核蛋白(RGYVYQGL)的MHC I类四聚体试剂。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| II 级生物安全柜 | VWR | LBCP302411030 | |
| 流式细胞仪(例如 FACSCanto II) | BD | 338962 | |
| 流式细胞术分析平台(例如 FlowJo) | Fisher Scientific Co. L.L.C. | NC0887833 | |
| 双目显微镜,VisiScope 100 | VWR | 630-1553 | |
| 涡旋混合器 | Phoenix Instrument | RS-VA 10 | |
| 适用于 FACS 管的离心机(例如 Rotanta 460R) | Hettich | 5660 | |
| 无菌手术刀片 10 号 | Braun | BB510 | |
| 细胞筛网 40 µm | Sigma | CLS431750 | |
| 细胞筛网 70 µm | Sigma | CLS431751 | |
| 血细胞计数板(Neubauer 计数室) | VWR | 630-1506 | |
| 移液器(20 μL、200 µL 和 1000 μL) | Eppendorf | 4924000037, 4924000061, 4924000088 | |
| 无菌移液器吸头(20 µL、200 µL、1,000 µL) | Biozym | 770050, 770200, 770400 | |
| Pipet Boy 手持式移液控制器 | Integra | 155 000 | |
| 无菌移液管(5 mL、10 mL、25 mL) | Sarstedt | 86.1253.001, 86.1254.001, 86.1685.001 | |
| 多通道移液器,HandyStep S | BRAND | 705110 | |
| 12.5 mL Combitips 多通道移液器专用吸头 | BrandTech Scientific | 702378 | |
| Microvette CB 300 K2E 血液采集管 | Sarstedt | 16.444 | |
| 无菌离心管(1.5 mL、50 mL) | Sarstedt | 72.692.005, 62.547.254 | |
| FACS 管(非无菌) | Szabo Scandic | BDL352008 | |
| PBS | Lonza | LONBE17-516F | |
| 热灭活胎牛血清(FCS) | ThermoFisher Scientific | 10500064 | |
| 甲醛 | Roth | 4979.1 | |
| 叠氮化钠 | Roth | K305.1 | |
| PE-Cy7 标记大鼠抗小鼠 CD3 分子复合物抗体 | BD | 560591 | 克隆号 17A2;批号 #7235504 |
| Pacific Blue 标记大鼠抗小鼠 CD8a 抗体 | BD | 558106 | 克隆号 53-6.7;批号 #5058904 |
| V450 标记大鼠抗小鼠 CD8a 抗体 | BD | 560469 | 克隆号 53-6.7;批号 #5205945 |
| FITC 标记抗小鼠 CD43 抗体 | BioLegend | 121206 | 克隆号 1B11;批号 #B233778 |
| PE-Cy5 标记大鼠抗小鼠 CD44 抗体 | BD | 553135 | 克隆号 IM7;批号 #85660 |
| APC-Cy7 标记大鼠抗小鼠 CD62L 抗体 | BD | 560514 | 克隆号 MEL-14;批号 #7215801 |
| OVA 四聚体/APC | MBL | TB-5001-2 | SIINFEKL,H-2Kb;批号 #T1702008 |
| VSV NP 四聚体/PE | MBL | TS-M529-1 | RGYVYQGL,H-2Kb;批号 #007 |
| EGFP 四聚体/PE | MBL | TS-M525-1 | HYLSTQSAL,H-2Kd;批号 #004 |
| LCMV-GP 四聚体/APC | MBL | TB-5002-2 | KAVYNFATC,H-2Db;批号 #T1412006 |
| HPV 16 E7 四聚体/APC | MBL | TB-5008-2 | RAHYNIVTF,H-2Db;批号 #T1804003 |
参考文献
- Tober, R., et al. VSV-GP: a potent viral vaccine vector that boosts the immune response upon repeated applications. Journal of virology. 88 (9), 4897-4907 (2014).
- Muik, A., et al. Re-engineering vesicular stomatitis virus to abrogate neurotoxicity, circumvent humoral immunity, and enhance oncolytic potency. Cancer Reseaerch. 74 (13), 3567-3578 (2014).
- Eales, L. J., Farrant, J., Helbert, M., Pinching, A. J. Peripheral blood dendritic cells in persons with AIDS and AIDS related complex: loss of high intensity class II antigen expression and function. Clinical and Experimental Immunology. 71, 423-427 (1988).
- Altman, J. D., et al. Phenotypic analysis of antigen-specific T lymphocytes. Science. 274 (5284), 94-96 (1996).
- Tetramers and Monomers. , Available from: https://www.mblintl.com/products/research/monomer-tetramers/filter/product_type/monomer,peptide,tetramer (2016).
- NIH Tetramer Core Facility. , Available from: http://tetramer.yerkes.emory.edu/ (2010).
- Class I MHC Tetramer Preparation: Overview. , Available from: http://tetramer.yerkes.emory.edu/support/protocols (2010).
- Wolfl, M., et al. Quantitation of MHC tetramer-positive cells from whole blood: evaluation of a single-platform, six-parameter flow cytometric method. Cytometry A. 57 (2), 120-130 (2004).
- Burrows, S. R., et al. Peptide-MHC class I tetrameric complexes display exquisite ligand specificity. The Journal of Immunology. 165 (11), 6229-6234 (2000).
- Sims, S., Willberg, C., Klenerman, P. MHC-peptide tetramers for the analysis of antigen-specific T cells. Expert Review of Vaccines. 9 (7), 765-774 (2010).
- Legoux, F. P., Moon, J. J. Peptide:MHC tetramer-based enrichment of epitope-specific T cells. The Journal of Visualized Experiments. (68), (2012).
- Xie, Y., et al. A novel T cell-based vaccine capable of stimulating long-term functional CTL memory against B16 melanoma via CD40L signaling. Cellular & Molecular Immunology. 10 (1), 72-77 (2013).
- Nanjundappa, R. H., Wang, R., Xie, Y., Umeshappa, C. S., Xiang, J. Novel CD8+ T cell-based vaccine stimulates Gp120-specific CTL responses leading to therapeutic and long-term immunity in transgenic HLA-A2 mice. Vaccine. 30 (24), 3519-3525 (2012).
- Bowers, E. V., Horvath, J. J., Bond, J. E., Cianciolo, G. J., Pizzo, S. V. Antigen delivery by alpha(2)-macroglobulin enhances the cytotoxic T lymphocyte response. Journal of Leukocyte Biology. 86 (2), 1259-1268 (2009).
- Guo, H., Baker, S. F., Martinez-Sobrido, L., Topham, D. J. Induction of CD8 T cell heterologous protection by a single dose of single-cycle infectious influenza virus. The Journal of Immunology. 88 (20), 12006-12016 (2014).
- Sakai, K., et al. Dendritic cell-based immunotherapy targeting Wilms' tumor 1 in patients with recurrent malignant glioma. Journal of Neurosurgery. 123 (4), 989-997 (2015).
- Rosaely, C. G., et al. Immune responses to WT1 in patients with AML or MDS after chemotherapy and allogeneic stem cell transplantation. International Journal of Cancer. 138 (7), 1792-1801 (2016).
- Shane, H. L., Reagin, K. L., Klonowski, K. D. The Respiratory Environment Diverts the Development of Antiviral Memory CD8 T Cells. The Journal of Immunology. , (2018).
- Li, S., Mwakalundwa, G., Skinner, P. J. In Situ MHC-tetramer Staining and Quantitative Analysis to Determine the Location, Abundance, and Phenotype of Antigen-specific CD8 T Cells in Tissues. The Journal of Visualized Experiments. (127), e56130(2017).
- De Vries, I. J. M., et al. In situ detection of antigen-specific T cells in cryo-sections using MHC class I tetramers after dendritic cell vaccination of melanoma patients. Cancer Immunology Immunotherapy. 56 (10), 1667-1676 (2007).
- Tan, H. X., et al. Induction of vaginal-resident HIV-specific CD8 T cells with mucosal prime-boost immunization. Mucosal Immunology. , (2017).
- Huang, H., et al. CD8(+) T Cell Immune Response in Immunocompetent Mice during Zika Virus Infection. Journal of Virology. 91 (22), (2017).
- Hensel, M. T., et al. Selective Expression of CCR10 and CXCR3 by Circulating Human Herpes Simplex Virus-Specific CD8 T Cells. Journal of Virology. 91 (19), (2017).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. Journal of Applied Toxicology. 21 (1), 15-23 (2001).
- ACK Lysis Buffer. , Available from: http://www.cshprotocols.cshlp.org/content/2014/11/pdb.rec083295.short (2014).
- San Jose, E., Borroto, A., Niedergang, F., Alcover, A., Alarcon, B. Triggering the TCR complex causes the downregulation of nonengaged receptors by a signal transduction-dependent mechanism. Immunity. 12 (2), 161-170 (2000).
- Dietrich, J., Hou, X., Wegener, A. M., Geisler, C. CD3 gamma contains a phosphoserine-dependent di-leucine motif involved in down-regulation of the T cell receptor. EMBO Journal. 13 (9), 2156-2166 (1994).
- Schone, D., et al. Immunodominance of Adenovirus-Derived CD8(+) T Cell Epitopes Interferes with the Induction of Transgene-Specific Immunity in Adenovirus-Based Immunization. Journal of Virology. 91 (20), (2017).
- Dolton, G., et al. More tricks with tetramers: a practical guide to staining T cells with peptide–MHC multimers. Immunology. 146 (1), 11-22 (2015).
- Whelan, J. A., et al. Specificity of CTL Interactions with Peptide-MHC Class I Tetrameric Complexes Is Temperature Dependent. The Journal of Immunology. 163 (8), 4342-4348 (1999).
- Wooldridge, L., et al. Tricks with tetramers: how to get the most from multimeric peptide–MHC. Immunology. 126 (2), 147-164 (2009).
- Denkberg, G., Cohen, C. J., Reiter, Y. Critical role for CD8 in binding of MHC tetramers to TCR: CD8 antibodies block specific binding of human tumor-specific MHC-peptide tetramers to TCR. The Journal of Immunology. 167 (1), 270-276 (2001).
- Daniels, M. A., Jameson, S. C. Critical role for CD8 in T cell receptor binding and activation by peptide/major histocompatibility complex multimers. The Journal of Experimental Medicine. 191 (2), 335-346 (2000).
- Tungatt, K., et al. Antibody stabilization of peptide-MHC multimers reveals functional T cells bearing extremely low-affinity TCRs. The Journal of Immunology. 194 (1), 463-474 (2015).
- Lissina, A., et al. Protein kinase inhibitors substantially improve the physical detection of T-cells with peptide-MHC tetramers. Journal of Immunological Methods. 340 (1), 11-24 (2009).
- Rius, C., et al. Peptide-MHC Class I Tetramers Can Fail To Detect Relevant Functional T Cell Clonotypes and Underestimate Antigen-Reactive T Cell Populations. The Journal of Immunology. 200 (7), 2263-2279 (2018).
- Xiao, Z., Mescher, M. F., Jameson, S. C. Detuning CD8 T cells: down-regulation of CD8 expression, tetramer binding, and response during CTL activation. The Journal of Experimental Medicine. 204 (11), 2667-2677 (2007).
- McMichael, A. J., O'Callaghan, C. A. A New Look at T Cells. The Journal of Experimental Medicine. 187 (9), 1367-1371 (1998).
- Hunsucker, S. A., et al. Peptide/MHC tetramer-based sorting of CD8(+) T cells to a leukemia antigen yields clonotypes drawn nonspecifically from an underlying restricted repertoire. Cancer Immunology Research. 3 (3), 228-235 (2015).
- Pittet, M. J., et al. Ex vivo analysis of tumor antigen specific CD8+ T cell responses using MHC/peptide tetramers in cancer patients. International Immunopharmacology. 1 (7), 1235-1247 (2001).
- Cohen, C. J., et al. Isolation of neoantigen-specific T cells from tumor and peripheral lymphocytes. The Journal of Clinical Investigation. 125 (10), 3981-3991 (2015).
重印与许可
