我们介绍一种用于脑组织电子显微镜研究的新型工作流程。该方法可使用户以无偏倚的方式观察神经元特征。对于元素分析,我们还提供了一个脚本,可自动完成随机取样工作流程的大部分步骤。
本文内容
摘要
摘要
只有通过电子显微镜才能研究神经元及其突触的超微结构特征。特别是对于此类特征密度和分布变化的比较研究,无偏倚的取样方案对获得可靠结果至关重要。本文介绍了一种脑组织样本成像的工作流程。该流程可在特定脑区内实现系统性均匀随机取样,所获得的图像可采用体视学 disector 方法进行分析。与全面检查连续切片相比,该技术速度快得多,但仍能有效估算超微结构特征的密度与分布。在包埋前,使用染色的振动切片作为参考,以确定目标脑区,从而加快整体样本制备过程。该方法已成功应用于比较研究,探讨丰富化饲养环境对小鼠脑内多种超微结构参数的影响。基于该工作流程的成功应用,我们进一步将其改进用于脑组织样本的元素分析。我们优化了实验方案,以减少操作人员的介入时间。通过编写适用于开源软件 SerialEM 的脚本,将所有耗时步骤自动化,使操作者能够专注于获取元素分布图这一核心任务。与原始工作流程一样,我们特别注重无偏倚取样策略,以确保结果的可靠性。
引言
在电子显微镜观察中,常常难以对切片内的代表性区域进行取样。作为观察者,我们往往倾向于关注因样本某些显著特征而引起注意的特定区域,从而导致取样分布不均,产生偏差。只有当感兴趣区域的每一部分都有均等机会出现在电子显微照片中时,才能避免取样偏差1。无需借助软件也可避免取样偏差,例如,在不看图像的情况下手动推动显微镜的轨迹球,使载物台停止在任意位置,从而选择取样区域。但严格来说,这种方法并非真正的随机过程,因为用户无论有意识还是无意识地都可能影响载物台的移动,此外,这种方法在选取取样区域时也不够精确。当使用成对切片评估特定体积内结构数量时(例如用于体视学1,该方法要求成对切片之间具有已知距离),随机取样尤为重要。也可以仅观察单一切片并估算特定结构的数量2,但这种方法容易高估较大结构的数值密度,除非这些结构相对于切片厚度非常小。另一种方法是通过连续切片重建组织的三维体积,从而获得所需数据3,但该方法耗时极长,难以适用于(较大规模的)比较研究。
为解决这些问题,我们开发了一种工作流程,使研究人员能够自动选择超薄切片中以规则间距获取电子显微图像的样本区域。电子显微图像的位置是随机的,从而实现无偏倚的取样。该方法既适用于确定结构的数量密度(例如,特定神经 Neuropil 体积内的突触数量4,5),也适用于测量结构特征的尺寸(例如,突触间隙的宽度或突触后密度的直径4,5)。
该工作流程使用一种自制的随机点采样(RPS)软件(采用Java脚本编写,基于显微镜配套的脚本软件),可自动计算超薄切片中预定义感兴趣区域内的网格位置。RPS软件将电子显微镜的载物台移动至这些预设位置,从而在每个位置拍摄电子显微照片。首先,用户在薄切片内定义一个感兴趣区域。随后,RPS软件计算该区域内的网格位置。第一个位置的x/y坐标为随机生成,其余位置则相对于第一个位置按规则的网格间距排列。由于感兴趣区域的每一部分被检测的概率均等,因此可实现最小化的数据采集。这种采样方法也称为系统性均匀随机采样(详见参考文献6,7中的详细说明)。
为确定结构的数值密度,我们采用一对已知间距的切片进行工作。在从预设位置中的第一个切片获得一张透射电子显微照片后,透射电镜连续切片软件(随我们的电子显微镜配套提供的软件包的一部分)会移动到第二个切片的对应位置,以获取相应区域的电子显微照片。此过程在预设网格的每个位置重复进行。在我们的方法中,使用“体视学无偏计数器”(disector)对每对电子显微照片中的颗粒数量进行计数8,9。一个disector由一对计数框组成,每个切片各对应一个计数框8,9。对象的数值密度通过仅计数在第一张切片(即参考切片)上可见但在第二张切片(即查找切片)上不可见的对象来确定。这种方法能够快速而高效地估算对象的数值密度8,9。此外,在单个切片上还可测量二维结构特征。
我们已成功应用该工作流程,评估在丰富环境(EE)饲养条件下与标准环境(SE)饲养条件下小鼠海马区突触数量的差异4,5,同时也用于评估在SE和EE条件下饲养的野生型(WT)小鼠与神经肽Y(NPY)基因敲除(KO)小鼠之间的超微结构差异5。我们的目标是专门观察神经元的结构特征,例如突触的数值密度、横切面中活性区和突触后密度的长度、突触间隙的宽度以及突触小泡的数量,以评估不同实验条件下神经元连接性和激活状态的变化。此外,我们还关注神经元中致密核心小泡(DCV)的数值密度,以确定特定脑区内储存的神经肽含量。
基于上述研究中我们方法的成功经验,在下一步工作中,我们调整了工作流程,以在人脑样本中选择用于无偏元素分析的区域。此举旨在对铁元素进行成像,因为铁以铁蛋白分子的形式储存在神经元和胶质细胞中。为此,我们编写了一个脚本,以实现对特定区域内脑切片进行随机筛查的大部分操作自动化。
方案
所有实验均经奥地利共和国联邦科学与研究部伦理委员会(BMWF-80.104/2-BrGT/2007 和 BMWF-66.010/0037-II/3b/2013)或格拉茨医科大学伦理委员会(编号:28-549 ex 15/16)批准,并依照1986年11月24日欧洲共同体理事会指令(86/609/EEC)以及2010年9月22日欧洲议会与理事会指令(2010/63/EU)进行。动物实验的设计与实施均以尽量减少使用动物数量为原则。
1. 组织的解剖与固定
- 通过腹腔注射 150 mg/kg 戊巴比妥,处死小鼠(21 周龄,雌性 C57BL/6J 小鼠和 C57BL/6N 小鼠;雄性野生型和 NPY 基因敲除小鼠,分别处于 C57BL/6:129/SvJ(1:1)混合遗传背景上)。
- 从颅骨中取出脑组织,并立即使用解剖刀沿中线切成两半(分离左半球和右半球)。
- 立即将脑组织两半放入玻璃容器中,容器内含有 2% 甲醛和 2.5% 戊二醛的 0.1 M 卡可基酸盐缓冲液((CH3)2AsO2Na·3H2O),用 1 M NaCl 将 pH 值调节至 7.4,4 °C 条件下保存。
注意:固定液具有毒性,操作时须格外小心。必须佩戴防护手套,并在通风橱内操作。 - 在 4 °C 条件下固定脑组织两半 2 天,随后用相同缓冲液在 4 °C 下冲洗至少 24 小时。缓冲液体积应约为样本体积的十倍。
2. 通过将振动切片机切片与小鼠脑图谱的参考切片进行比较,确定脑内的感兴趣区域10
- 将脑组织样本放置于振动切片机上。确保脑组织的方向正确(本实验中选择冠状面方向以切取海马)。
- 修剪至脑部目标区域(ROI)为止。以较大厚度切片例如., 100 µm直至到达包含目标脑区的部位,期间所有切片均丢弃。
- 开始用振动切片机切片 20 µm 在脑区ROI起始位置处切取一定厚度,将振动切片机切下的脑片置于载玻片上。将切片放入含0.05%醋酸硫堇的醋酸钠缓冲液(pH 4.2)中染色1分钟(尼氏染色)。图1Ai).
- 使用光学显微镜将染色切片与小鼠脑图谱进行比对,并持续切片和染色,直至达到目标脑区坐标。
3. 获取用于包埋的样本区域
- 一旦确定正确区域,立即使用振动切片机以 150 µm 厚度开始切割一个切片。
- 在体视显微镜下用剃刀刀片对该振动切片进行显微解剖,切除 ROI 周围的部分。切片应具有适合后续透射电子显微镜(TEM)制样的合适尺寸(不大于 1 × 1 mm2)。
4. 透射电镜样品制备——包埋、超薄切片与染色
- 包埋
- 在室温下用 2% 四氧化锇后固定 2 小时。使用足以覆盖样品的固定剂体积,至少为样品体积的 10 倍,但避免过量使用固定剂以减少不必要的有毒废物。
注意:四氧化锇具有高毒性,操作时必须格外小心。仅可在佩戴防护手套并在通风橱内操作。 - 使用电子显微镜级酒精逐步脱水,每步 20 分钟(50%、70%、80%、96% 和 100% 乙醇)。
- 在室温下将样品置于环氧丙烷中 40 分钟;随后在环氧丙烷与包埋树脂的混合液(1:2)中室温放置 2 小时,再于 4 °C 下在 1:3 混合液中过夜。
注意:环氧丙烷具有高毒性,操作时必须格外小心。仅可在佩戴防护手套并在通风橱内操作。 - 将样品置于 100% 树脂中包埋,在 45 °C 下,60 分钟后换树脂两次,90 分钟后换一次。
- 最后,将样品放入合适的模具中,在 90 °C 下使树脂聚合 3 天(图 1Aii)。
- 在室温下用 2% 四氧化锇后固定 2 小时。使用足以覆盖样品的固定剂体积,至少为样品体积的 10 倍,但避免过量使用固定剂以减少不必要的有毒废物。
- 在超薄切片机上进行修块与切片。
- 修整包埋块,确保侧面尽可能平整,以便切片能够彼此贴合(图 1Aiii)。
- 使用超薄切片机切出 55 nm 的连续超薄切片(应呈银灰色)。使用涂有火棉胶的狭缝载网(狭缝尺寸 1 × 2 mm)(图 1Aiv)。
- 在狭缝载网上用 2% 醋酸铀于室温染色 30 分钟,再用柠檬酸铅于室温染色 30 秒(此为标准的透射电镜染色方法11)。
注意:醋酸铀具有高毒性,应避免任何直接接触。仅可在佩戴防护手套的情况下操作。硝酸铅若被吞咽或吸入则有毒,操作时必须格外小心。
5. 使用软件包在透射电子显微镜上对参考切片和查找切片的相应 ROI 进行成像
- 使用透射电子显微镜(TEM)在低倍率下(根据切片大小而定)检查载网上的切片,以确定切片方位并评估其质量。
- 启动软件(随显微镜提供的透射电镜图像分析软件包,即 TIA),通过记录切片的角点来生成切片的虚拟图像。该功能使软件能够找到每个切片上感兴趣区域(ROI)的对应位置。
- 进入 切片 菜单,选择 插入,以添加参考切片和查找切片的角点。按照弹出窗口中的提示操作。先从参考切片开始,然后继续处理查找切片。确保输入与相邻切片平行的切片边缘作为点 1 和点 2(图 1Bi)。
- 在低倍率下观察参考切片,识别感兴趣区域,并使用 TIA 在参考切片上移动显微镜载物台至 ROI 的多个角点,从而绘制出 ROI 的轮廓。
- 使用 RPS 软件记录所生成多边形的坐标。为此,在 RPS 软件的对话框中,对构成 ROI 轮廓所需的每个多边形顶点,依次点击 添加坐标(图 1Bii)。
- 在 RPS 软件中定义并输入合适的采样区域大小及区域间距(在本研究中,采样区域大小为 7 µm,区域间距为 20 µm,从而在 ROI 内获得至少 20 个采样区域)。点击 计算栅格,软件将自动生成多边形内显微图像位置的系统性均匀随机分布的采样区域坐标(图 1Biii)。
注:为便于定位,RPS 软件可显示多边形及其内部的采样区域(图 1Biv)。
- 使用 RPS 软件和 TEM Serial Section 软件在参考切片和查找切片上存储采样点。这些坐标将用于后续记录拼接图像11。
- 在 RPS 软件中,点击 转至下一位置,将显微镜载物台移至参考切片中每个采样区域的 x/y 坐标。进入 位置 菜单,选择 插入,将这些坐标导入参考切片的软件中。对所有坐标重复此操作。
- 为将参考切片的坐标映射到查找切片,进入 切片 菜单并点击 转至切片。在弹出窗口中输入查找切片的编号(通常为“2”)。
- 在记录拼接图像时(见下一步),按照前述方法在参考切片和查找切片之间切换,并通过 位置 和 转至编号 更改参考切片上的位置。在对话框中选择下一个坐标。
- 对于每个采样坐标的 SerialEM 拼接图像,进入 文件 菜单,从下拉菜单中选择 新建拼接。在对话框中选择合适的图像块数量和重叠百分比。在本研究中,5000X 的放大倍率足以识别所研究的突触特征,但由于 CCD 相机视野有限,需制作 2 × 2 图像的拼接图。拼接图通过 SerialEM 完成。
- 在每次记录拼接图前,重新调整焦距(或如有可能,启用记录软件中的自动对焦功能)。选择保存拼接文件的文件夹,然后在 SerialEM 左侧的拼接子菜单中点击 开始,启动拼接图的记录。
6. 使用透射电子显微镜图像进行分析 ImageJ 记录超微结构特征
注意:为此,必须从参考部分和查找部分创建一个对齐的图像堆栈。
- 转换图像对 ImageJ 图像堆叠 合并为堆栈文件并使用图像对齐 StackReg (需从 BIG-EPFL http://sites.imagej.net/BIG-EPFL/ 安装;在本实验中,该算法) 仿射 用于获取细胞结构特征的数值密度,使用了定制的 ImageJ 宏 体视学计数法 生成一个大小为 5.5 x 的计数框 5.5 µm 以随机角度随机放置在图像上。
- 启动宏 体视学计数法 (位于 ImageJ 菜单取决于其保存的目录),并根据需要定义参数(计数框大小、片段数量)图1Cii).
- 计数突触数量/µm2 使用 disector 法。计数参考切片中可见但在查找切片中不可见的计数框内的每一个突触。忽略那些与两个“禁线‘非重叠区’的突触;但要计数对侧‘接受线。为此,使用 多点工具 位于 工具栏 在 ImageJ (图2A, 图2B).
- 为测量突触参数,仅选择突触间隙呈横断面取向的突触(位于参考切片上;使用体视学无偏采样框中的同一图像帧)。
- 启动插件 ObjectJ 在 ImageJ 中,从下拉菜单中图2A)通过 插件 | 分析. 从 ObjectJ 下拉对话框中打开一个新项目。这将打开一个窗口,允许用户勾画并标记结构 标记工具 (图2B,红色圆圈)。本实验所用的突触参数将在以下步骤中描述。
- 沿结构画一条线,测量突触前膜和突触后密度的长度 标记工具 (图2B,红色圆圈。
- 通过绘制一个多边形覆盖突触前和突触后膜,该多边形具有平行的直线侧边以及一条位于两膜中间且与两者等距的分段线,从而获得突触间隙的平均宽度。
- 为确定锚定囊泡的数量,需计数所有与突触前膜距离不超过一个囊泡直径的囊泡。
- 为确定未锚定囊泡的数量,需计数同一突触处与已锚定或其他未锚定囊泡的最大距离不超过一个囊泡直径的囊泡。
7. 制备半薄切片用于光学显微镜观察,以记录与透射电镜观察所选相同ROI内的宏观特征(在本例中为细胞数量)。
- 在完成透射电镜超薄切片后,立即切取两片半薄切片, 0.5 µm 厚且彼此紧邻。将切片置于载玻片上,用0.5%甲苯胺蓝溶液染色。用盖玻片封片(封片介质为DPX,包含二乙烯、增塑剂(三甲苯基磷酸酯)和二甲苯)。上述两片切片用于细胞计数。
- 使用光学显微镜在低倍镜下拍摄半薄切片。
注意:所研究的结构必须能够在图像中被识别。在本研究中,使用20倍放大倍率来识别细胞体。如有必要,可使用图像处理软件将多张图像拼接在一起。 - 使用图像处理软件对连续两张半薄切片进行配准例如., ImageJ).
注意:由于切片过程可能引入压缩伪影,导致旋转和尺寸存在差异,因此应进行调整,以实现两张切片的完美重叠。 - 在光学显微镜图像上标记出感兴趣区域(ROI)的边界。该ROI必须与用于透射电子显微镜(TEM)图像的ROI相对应。为此,将图像载入 ImageJ 并从多边形选择工具中进行选择 工具栏 (图2A).
- 使用 ImageJ 打开图像,在整幅图像上生成网格 分析 | 工具 | 网格 并根据需要设置参数。
- 根据感兴趣区域内的网格点数量和切片厚度,计算多边形的面积和体积体积 = NCS * AGS * hST ;NCS 计数横截面;AGS = 网格大小;hST = 切片厚度)
- 如果神经元细胞体内的细胞核仅存在于一个切片中,则计数该 ROI 内的细胞核数量。选择 多点工具 在 ImageJ 从工具栏中选择并标记细胞。计数每个切片上的细胞后,计算单位体积内的细胞数量(
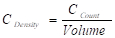 ;C密度 细胞密度;C计数 = 细胞计数)。
- 记录所有测量数据 ObjectJ 结果 窗口图2C)。导出并保存以供后续使用。
8. 使用 SerialEM 脚本结合数字显微镜(DM,配备成像滤波器)优化脑组织样本的元素分析
- 成像滤镜(GIF)的调谐。
- 将样品装入透射电子显微镜(TEM),使用显微镜的轨迹球或操纵杆移动至样品上的一个孔洞处,用于GIF调谐。
- 在DM软件(或DM)中切换至能量过滤透射电子显微术(EFTEM)模式,并在DM中选择CCD相机。
- 选择用于元素分析的放大倍数(放大倍数取决于结构/感兴趣区域;本例中,放大倍数设定为76 k至125 k之间)。将曝光时间设为0.001 s,并开始VIEW(预览)。
- 仔细调节电子束聚焦,直至可见边缘,并将电子束居中于图像中央。减小C2/物镜光阑,直至可见光阑边缘,并使用轨迹球将电子束居中。
- 使电子束离焦(C2约46.2%,调谐时曝光时间应约为0.05 s),通过按下ZLP按钮找到零损失峰(ZLP)。点击Full tune按钮开始完整的调谐程序。
- 获取随机采集点。
- 切换回TEM成像模式,选择Camera(相机),并在10 k放大倍数下检查聚焦情况(调节z轴并将离焦量设为零)。
- 选择LM 75X放大倍数,并检查相机是否未插入(否则无法由SerialEM软件控制)。
- 启动SerialEM并新建一个项目。
- 打开导航器。在Camera & Script Controls(相机与脚本控制)中检查相机设置(用于VIEW和RECORD),然后开始VIEW(相机会自动插入)。
- 为超薄切片制作角点图,在导航器窗口中选择Add points(添加点)。
- 在超薄切片边缘设置角点。按住鼠标右键将样品台移至某一角点位置,当到达切片一角时,用鼠标左键单击添加角点。重复此操作,共添加另外三个角点。确保在导航器窗口中,已存储的点对应的C(角点)框已勾选。
- 开始角点拼图(建议在LM 75放大倍数下进行),进入SerialEM菜单栏的Navigator(导航器),从下拉菜单中选择Montaging & Grids(拼图与网格)和Setup Corner Montage(设置角点拼图)。
注:系统将显示所选记录参数的最佳匹配设置。可根据需要进行修改;本例中仅将重叠率调整为20%。
- 在拼图图像上勾勒出切片/感兴趣区域(ROI)。在导航器窗口中选择Add Polygon(添加多边形),通过多次鼠标右键单击勾勒出区域轮廓。在导航器下拉菜单中选择Add grid of points(添加点阵),并定义点之间的间距(间距取决于实验需求;例如,10 µm,图3)。
- 按照脚本指令操作。输入导航器中显示的网格点数量,并输入采集点数量(例如,20)。
- 设置照明阈值,以便脚本能避开网格条。按照脚本指令,手动移动样品台,使网格条覆盖视野的四分之一。根据显示的数值,输入一个高于该值的照明阈值。
- 等待采集点选择完成且“烹饪”程序结束。
注:此过程耗时较长,可过夜运行;脚本在完成“烹饪”程序后会将显微镜转入待机状态;“烹饪”程序对于稳定样品在电子束下的状态至关重要。
- 能量过滤透射电子显微术(EFTEM)元素分析
- 在TIA/DM中选择EFTEM模式,并在DM中选择CCD camera(CCD相机)。
- 将电子束居中,并按照脚本指令将样品台移至各个采样坐标。
注:系统将提示用户是否将样品台移至下一个坐标。 - 对齐零损失峰(ZLP),并将C2设为约46.2%。
- 设定能量为60 eV(本例中该值用于检测Fe M边),能量窗口宽度为10 eV,曝光时间为0.4 s。插入能量窗口狭缝,并将C2设为约43.9%。
- 开始预览并聚焦图像。
- 将C2设为46.2%,对齐ZLP,再将C2恢复至43.9%。
- 使用元素特异性参数采集元素分布图。
注:可在采集对话框中使用默认设置,但建议事先进行测试;示例过滤图像见图4。 - 将C2设为46.2%,采集厚度分布图。
- 对所有确定的采集点重复上述步骤(第8.3.2–8.3.12步)。
- 按照脚本提示,获取各采集点的单张电子显微图像或拼图图像。选择合适的放大倍数,确保所有(超)微结构信息均清晰可见/可识别。
- 保存日志(LOG)文件、导航器及结果窗口,并移除狭缝。
- 关闭阀门,取出样品,并关闭透射电子显微镜(TEM)。
结果
本文介绍一种自动且无偏倚地选择透射电镜(TEM)成像区域的工作流程。用户在TEM下选定超薄切片中的感兴趣区域,并利用多种软件工具(包括我们开发的RPS软件)进行后续操作,该软件可自动计算出感兴趣区域内20个采样区域的坐标。随后,TEM载物台将依次移动至各采样区域进行拍照。该方法既适用于单张切片的分析,也适用于间距已知的成对切片分析,从而实现无需研究者主观干预的成像区域选择。
在记录小鼠脑切片中的超微结构特征时,该工作流程被证明具有重要价值4,5。在这些研究中,齿状回的多形细胞层(DGpl)被选为感兴趣区域。我们的方法适用于检测齿状回(DG),因为背侧齿状回的冠状切片(Bregma −1.3)可完整容纳于超薄切片中,并且在低倍镜下其轮廓易于识别。若需检测其他脑区,则在实验设计前需先确认其大小及特征性结构。
应用此处描述的工作流程显示,与标准饲养条件相比,丰富环境(EE)饲养显著增加了齿状回颗粒细胞层(DGpl)4突触间隙的宽度。此外,EE饲养动物的致密核心囊泡数量显著减少4,提示神经肽的储存发生了改变。当野生型(WT)和NPY基因敲除小鼠在EE条件下饲养时,DGpl中每µm³的神经元数量增加,而致密核心囊泡(DCV)的密度较标准环境(SE)饲养条件下降5。相比之下,NPY基因敲除导致突触囊泡储备池(未锚定的突触囊泡)数量显著增加,且该效应与饲养条件无关5。在NPY基因敲除组中,EE对突触间隙宽度的影响被逆转,导致EE饲养的野生型小鼠与NPY基因敲除小鼠之间突触间隙宽度存在显著差异5。结合在两种饲养条件下对野生型和NPY基因敲除动物的行为学研究,上述结果表明NPY在丰富环境的神经生物学效应中发挥关键作用5。
为可视化人脑中储存的铁元素,编写了一个用于 SerialEM 软件的脚本,以从整张超薄切片中随机选取成像位点,旨在在每个选定位置获取一幅能量过滤电子显微图像。将切片装入电子显微镜后,该脚本执行切片的稳定化操作(即,即“标本加热”程序)过夜。随后,脚本从标记有光栅的位置中随机选取用户预先定义数量的点 图3通过生成测试显微照片并检查其灰度值,该脚本可判断所选点是否位于切片的可见区域,并排除落在网格条上的点。大部分工作流程由脚本自动完成,用户仅需极少干预。然而,由于光线过弱,SerialEM 的自动对焦程序无法正常工作,因此无法自动采集能量过滤显微照片(在此实验设置下)。为此,每当脚本将载台移动至指定位置后,我们立即切换至 DM 软件,手动调节焦距,随后采集铁元素的 EFTEM 图像。图中展示了一例来自死后人脑组织的铁元素 EFTEM 图像示例。 图4.
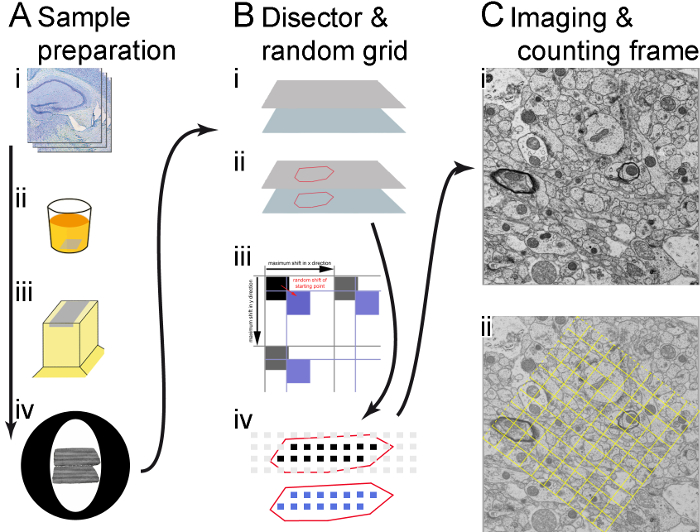
图1. 工作流程示意图。 (A) 样品制备的主要步骤如图所示(按箭头方向):振动切片机切片(i),包埋(ii),切取半薄切片和超薄切片(iii),以及在铜网上收集成对的超薄切片(iv)。 (B) 使用显微镜供应商提供的软件和定制的 RPS 软件创建采样区域坐标,以确定记录位点。将各区域的角点存储于显微镜软件中,并勾画出感兴趣区域(ROI)(借助半薄切片辅助确定)(i);在 ROI 上生成采样区域网格,并在 x 和 y 方向上引入随机偏移(红色箭头)。该偏移量小于采样区域之间的间距(黑色箭头),因此实际用于确定记录位点的是经过随机偏移的蓝色方框,而非无偏移的黑色方框(ii);仅使用位于 ROI 边界内的采样区域(以黑色和蓝色方框表示)进行记录。在参考切片(黑色方框)及其对应位置的查找切片(蓝色方框)中均拍摄显微图像(iii)。 (C) 在每个取样区域以足够的放大倍数拍摄显微照片;如需要,可制作由多幅图像拼接而成的图像拼合图(本例中将2×2幅图像合并)(i);生成计数框并作为叠加显示在图像上,框内及位于“允许”边界上的结构被计入接受菌线(虚线框内)的将被计数,但不在其上的不计禁线(实线边框)(ii)。 请点击此处以查看此图的放大版本。
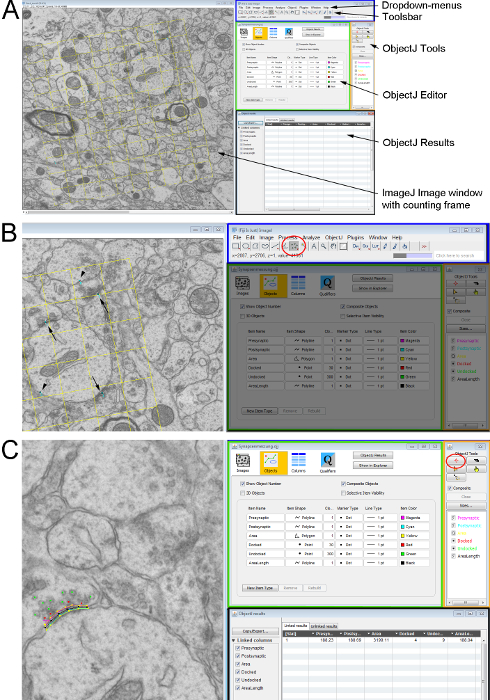
图2在一对超薄切片上使用无偏计数框测量超微结构参数。(A) 用于计数和分析细胞结构的 ImageJ 窗口概览。左侧显示电子显微照片,叠加有计数框。右侧显示 ImageJ 用户界面(蓝色矩形),上方为下拉菜单,下方为工具栏; ObjectJ 对象编辑器 (绿色矩形);该 ObjectJ 工具 用于选择测量工具的窗口(橙色矩形) ObjectJ 结果 用于记录所有测量数据的窗口(黑色矩形)。 (B) A部分细节,显示电子显微照片中标记的突触(两个切片上均可见的突触—箭头;仅在查找切片上可见的突触—箭头头)。这些标记使用 多点工具 (红色圆圈)从 工具栏 在 ImageJ 中。 (C) 突触特征的名称和测量参数通过以下方式定义 ObjectJ 工具。该 标记工具 通过沿结构用鼠标左键点击,选择感兴趣的特征并在图像中绘制轮廓。 请点击此处以查看此图的放大版本。
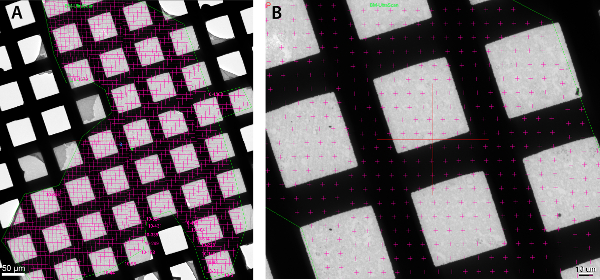
图3. 在感兴趣区域(ROI)内为能量过滤透射电子显微镜的元素映射选择采样区域。使用SerialEM软件选择感兴趣区域,并建议在规则间距下设置大量采样区域(图像A和B中的粉红色十字)。随后,一个脚本从这些预定义坐标中随机选取用于采集的采样区域。光照不良的采样区域将被剔除,以避免网格条纹干扰,当在ROI内成功选定20个光照良好的采样区域时,脚本即停止运行。(A) 整个感兴趣区域的概览图,以多边形勾勒边界,大量可能的采样区域以X标记。(B) A图的局部放大,显示随机选择前的采样区域分布。请点击此处查看该图的高清版本。
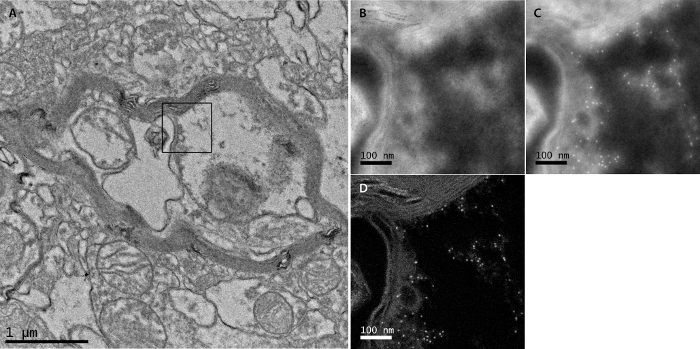
图 4. 元素分布图(EFTEM)采集示例。 (A) 采集点周围区域的明场透射电子显微镜照片。随机选择一个区域用于获取元素分布图,该区域以黑色矩形标出。 (B) 在随机选定区域中获取的 EFTEM 前边缘窗口图像。 (C) 在同一区域获取的 EFTEM 后边缘窗口图像。 (D) 同一区域铁元素的元素分布图(M 边缘)。 请点击此处查看该图的放大版本。
讨论
本文所展示的工作流程使研究人员能够以无偏倚的方式获取超微结构特征的数据。与通过连续切片进行的体积研究相比,该方法耗时显著减少。为实现这一目标,需使用多种不同的应用程序。首先,我们使用自主开发的 RPS 软件(有关获取详情,请联系通讯作者)引入随机的载物台位移,以确定采样区域的坐标。这可实现对感兴趣区域(ROI)的系统性均匀随机采样。其次,在对特定结构进行计数时,我们对传统的“体视法”(disector method)进行了改进,与以往研究13,14,15不同的是,我们采用自主开发的 RPS 软件实现系统性均匀随机采样,通过比较两段已知间距的连续切片完成计数。与基于连续切片进行全体积三维重建的方法相比,该方法节省了大量时间。需要注意的是,该自主开发的 RPS 软件专为某一特定型号的显微镜设计,这在一定程度上限制了该工作流程的可重复性。作为该专用软件的替代方案,可选用支持脚本编程且兼容多种显微镜型号的应用程序。
我们已成功将该方法应用于比较研究4,5。在神经组织的超薄切片上,首先勾画出感兴趣区域,并在该区域内采用系统均匀随机取样法采集图像。需要注意的是,感兴趣区域——齿状回的多形层(DGpl)——是一个相对较小的区域,这可能有利于我们的研究方法。在随机放置的体视学分析框(disector)内,我们评估了成年小鼠在标准环境(SE)和丰富环境(EE)饲养条件下,以及成年野生型(WT)小鼠与成年NPY基因敲除小鼠齿状回多形层(DGpl)中致密核心囊泡(DCV)的数量及突触的多种超微结构特征。通过本方法收集的数据表明,部分被检测参数发生了改变。这些发现与先前在幼年动物中开展的类似研究结果一致2。
该工作流程在实验应用中的一个缺点可能是,这种多软件联合使用的方法在用户友好性方面并不理想,因为用户需要熟悉不同的操作界面(在本例中,包括用户界面 TEM Serial Section、RPS 软件和 SerialEM 软件)。学会高效地操作所有应用程序需要耗费较长时间,这一点应予以充分考虑。然而,投入时间学习使用该工作流程,仍然明显优于采用连续切片透射电镜(serial section TEM)分析整个体积所需的时间。通过系统性均匀随机抽样在感兴趣区域放置 disector 的方法,足以提供可靠的数据1,而无需对大量切片或体积进行分析。
为了在我们的研究中获得最佳结果,样本制备过程中的细致操作至关重要,因为组织及其结构的保存不仅对评估结构特征极为关键,也有助于明确无误地识别目标区域。一个关键因素,也可能是该方法的另一个局限性,是要求超薄切片对具有高质量:在任一切片中,待研究区域均不得存在孔洞或皱褶,且切片厚度必须保持均一。研究人员必须接受过良好的超薄切片技术训练。在透射电子显微镜(TEM)中对切片成像时也需格外小心,因为切片对电子束损伤敏感,容易撕裂。此外,正确选择感兴趣区域(ROI)中的采样点数量非常重要。根据实验目的,电子显微照片的放大倍数需谨慎设定。就我们的实验而言,即在中枢神经系统中计数突触,每张切片上选取20个面积为30.25 µm2 的感兴趣区域最为理想。建议对操作人员进行充分培训,使其能够准确识别相关特征(在本研究中为突触、突触结构和致密核心囊泡DCV),以获得可靠的结果。为了准确识别突触,必须能够清晰辨认突触小泡,这要求分辨率至少达到10 nm。为此,5000倍的放大倍数最为合适,但需注意,放大倍数依赖于硬件参数,例如相机的类型和位置,因此在使用其他型号的显微镜和/或相机时需相应调整。还需注意的是,本方案所使用的操作程序是针对某一特定型号的透射电镜而设定的,其他型号设备的使用者必须考虑仪器设置上的差异。
我们相信,当研究问题需要系统性的均匀随机取样,且待检测样本数量要求高效的时间分析方式时,我们的工作流程不仅可应用于神经科学,还可推广至广泛的生物科学领域以及材料科学领域(当需要透射电子显微镜的高分辨率时)。例如,我们目前正致力于定位人脑中的铁储存区域。为此,我们最近调整了工作流程,以实现在随机选择的区域对超薄切片进行元素分析。为了尽量减少工作流程中所需使用的软件数量,我们力求仅使用 SerialEM 软件,因为它可被编程以将载物台移动至预先设定、并可随机选取的位置。我们编写了自定义脚本以控制透射电子显微镜,目标是实现整个工作流程的完全自动化。除在滤波成像模式下的自动聚焦未能获得满意结果外,其余步骤均被证实可行。因此,我们使用 DM 软件进行聚焦以及获取能量滤波图像。
总之,我们介绍了有助于以无偏倚方式获取电子显微图像的软件解决方案。
披露
作者无任何利益冲突需要披露。
致谢
由奥地利科学基金(FWF)资助,项目编号 P 29370 B27
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 戊巴比妥 | SigmaAldrich | P3761 | |
| 甲醛 | 默克 | 1040051000 | 1kg |
| 戊二醛 | 科学服务 | E 16210 | 25%;100 ml;EM级 |
| 卡可基酸盐缓冲液 | 默克 | C4945 | 250克;二甲基亚胂酸钠三水合物 |
| 醋酸硫堇/Ceristain | 默克 | 861340 | |
| 乙酸 | 默克 | 1000631000 | 1 L |
| 氢氧化钠 | 默克 | 1064951000 | 1 kg,颗粒状 |
| 四氧化锇 | 科学服务 | E 19110 | 10×1克 |
| TAAB包埋树脂 | 科学服务 | TAT001 | 500 g |
| DMP-30 | 科学服务 | TAD024 | 100克 |
| DDSA | 科学服务 | TAD025 | 500g |
| 乙酸铀酰二水合物 | Plano GmbH | 19481 | 耗尽,25克 |
| Ultrastain 2 | Leica | 16707235 | 柠檬酸铅 |
| 甲苯胺蓝溶液 | Agar Scientific | AGR1727 | 10g |
| Pioloform | Plano GmbH | R1275 | 10克 粉末 |
| 环氧丙烷 | SigmaAldrich | 82320-1L | 1L |
| DPX 封片介质 | Plano GmbH | R1320 | 用于玻璃载片半薄切片的包埋介质,50 ml |
| Leica VT 1000 振动切片机 | 徕卡显微系统公司,奥地利维也纳 | ||
| Leica Ultracut UCT 超薄切片机 | 德国韦茨拉尔,徕卡显微系统公司 | ||
| Tecnai G2 20 | 荷兰埃因霍温,FEI公司 | ||
| Megaview 广角相机 | Olympus Soft Imaging Solution, Mü德国 nster | ||
| US 1000 数码相机 | Gatan,普莱森顿,美国 | ||
| 透射电子显微镜成像分析软件 | FEI,荷兰埃因霍温 | ||
| FEI 连续切片软件 | FEI,荷兰埃因霍温 | ||
| Fiji,ImageJ 1.52e | 美国国立卫生研究院 | ||
| SPSS 20.0 | 美国伊利诺伊州芝加哥市 SPSS 公司 | ||
| SerialEM | 科罗拉多大学董事会 | ||
| RPS(随机点采样)软件 0.9a | 定制 | ||
| Disector v1.0.2(ImageJ 宏) | 定制 | ||
| EFTEM序列电镜(SerialEM 脚本) | 定制 |
参考文献
- Howard, V., Reed, M. Unbiased Stereology: Three-Dimensional Measurement in Microscopy. , BIOS Scientific Publishers. Oxford. (1998).
- Nakamura, H., Kobayashi, S., Ohashi, Y., Ando, S. Age-changes of brain synapses and synaptic plasticity in response to an enriched environment. Journal of Neuroscience Research. 56 (3), 307-315 (1999).
- Landers, M. S., Knott, G. W., Lipp, H. P., Poletaeva, I., Welker, E. Synapse formation in adult barrel cortex following naturalistic environmental enrichment. Neuroscience. 199, 143-152 (2011).
- Reichmann, F., et al. A novel unbiased counting method for the quantification of synapses in the mouse brain. Journal of Neuroscience Methods. 240, 13-21 (2015).
- Reichmann, F., et al. Environmental enrichment induces behavioural disturbances in neuropeptide Y knockout mice. Scientific Report. 6, 28182(2016).
- Mayhew, T. M. Taking Tissue Samples from the Placenta: An Illustration of Principles and Strategies. Placenta. 29, 1-14 (2008).
- Ferguson, S., Steyer, A. M., Mayhew, T. M., Schwab, Y., Lucocq, J. M. Quantifying Golgi structure using EM: combing volume-SEM and stereology for higher throughput. Histochemistry and Cell Biology. 147, 653-669 (2017).
- Sterio, D. C. The unbiased estimation of number and sizes of arbitrary particles using the disector. Journal of Microscopy. 134 (2), 127-136 (1984).
- Gundersen, H. J., et al. The new stereological tools: disector, fractionator, nucleator and point sampled intercepts and their use in pathological research and diagnosis. APMIS. 96 (10), 857-881 (1988).
- Franklin, K. B. J., Paxinos, G. The Mouse Brain in Stereotaxic Coordinates. , Elsevier/Academic Press. (2008).
- Lewis, P. R., Knight, D. P. Staining Methods for Sectioned Material. , Elsevier/North-Holland Biomedical Press. (1988).
- Mastronarde, D. N. Automated electron microscope tomography using robust prediction of specimen movements. J Struct Biol. 152 (1), can be downloaded from http://bio3d.colorado.edu/SerialEM 36-51 (2005).
- Rampon, C., Tang, Y. P., Goodhouse, J., Shimizu, E., Kyin, M., Tsien, J. Z. Enrichment induces structural changes and recovery from nonspatial memory deficits in CA1 NMDAR1-knockout mice. Nature Neuroscience. 3 (3), 238-244 (2000).
- Xu, X., Ye, L., Ruan, Q. Environmental enrichment induces synaptic structural modification after transient focal cerebral ischemia in rats. Experimental Biology and Medicine. 234 (3), 296-305 (2009).
- Lonetti, G., et al. Early environmental enrichment moderates the behavioral and synaptic phenotype of MeCP2 null mice. Biological Psychiatry. 67 (7), 657-665 (2010).
重印与许可
标签
