我们在此描述一种用于研究预先激活的CD8细胞毒性的实验方案+ 通过检测凋亡的癌细胞来识别针对癌细胞的T细胞 通过 实时显微镜技术。该方案可用于研究髓系细胞诱导的T细胞抑制机制,并评估旨在恢复T细胞功能的化合物 通过 阻断免疫抑制性髓系细胞。
方法文章
实时检测CD8+ T细胞诱导的体外肿瘤细胞凋亡以研究肿瘤浸润性髓系细胞的免疫抑制功能
* These authors contributed equally
本文内容
摘要
摘要
增强肿瘤内CD8+ T细胞的杀瘤能力并促进其有效浸润肿瘤,是成功实施免疫治疗的关键要素。多项研究表明,肿瘤浸润性髓系细胞(如髓源性抑制细胞(MDSCs)和肿瘤相关巨噬细胞(TAMs))可在肿瘤微环境中抑制CD8+ T细胞的细胞毒性,而靶向这些调控性髓系细胞可提升免疫治疗效果。本文介绍一种体外检测系统,用于评估单核样MDSCs和TAMs对CD8+ T细胞杀瘤能力的免疫抑制作用。具体方法为:首先将初始脾源CD8+ T细胞在存在或不存在抑制性细胞的条件下,用抗CD3/CD28活化抗体进行培养;随后将预活化的T细胞与靶向癌细胞共培养,并加入荧光原性caspase-3底物。通过实时荧光显微镜检测癌细胞中底物产生的荧光信号,作为T细胞诱导肿瘤细胞凋亡的指标。本实验体系可有效检测CD8+ T细胞引起的肿瘤细胞凋亡增加,以及经TAMs或MDSCs预培养后对该效应的抑制作用。该功能性检测方法适用于研究调控性髓系细胞对CD8+ T细胞抑制作用的机制,并可通过高通量筛选手段识别可作为药物靶点的分子以克服此类抑制效应。
引言
已知 CD8+ T细胞在发挥完全细胞毒性时能够清除肿瘤细胞。T细胞受体(TCR)激活后,CD8+ T细胞增殖并分化为细胞毒性效应细胞。扩增并活化的CD8+ T细胞分泌含有穿孔素和颗粒酶的细胞毒性颗粒,这些颗粒被转移到靶细胞内,并启动多种裂解途径,例如半胱天冬酶-3介导的细胞凋亡1CD8+ T细胞还可通过激活靶细胞上的受体诱导肿瘤细胞凋亡,例如肿瘤坏死因子-α(TNF-α)受体、第一凋亡信号配体(FasL)或TNF相关凋亡诱导配体(TRAIL)的受体。此外,活化的CD8+ T细胞分泌的干扰素-γ(IFN-γ)可抑制肿瘤细胞增殖,并增强肿瘤细胞对CD8的敏感性+ T细胞 通过 FasL受体的上调1鉴于CD8可能具有的潜力+ 为增强T细胞的肿瘤杀伤能力,已建立多种提高其细胞毒性的策略(例如,检查点抑制剂、癌症疫苗以及表达嵌合抗原受体(CAR)的T细胞过继转移),这些策略在某些类型的癌症治疗中已显示出显著疗效。2然而,越来越多的证据表明,肿瘤浸润性免疫细胞,如调节性T细胞、髓源性抑制细胞(MDSCs)和肿瘤相关巨噬细胞(TAMs),能够抑制CD8+ T细胞功能及免疫疗法疗效的限制因素3,4,5为了改进此类免疫疗法,了解免疫抑制细胞如何限制CD8+ T细胞毒性。CD8的鉴定+ T细胞抑制机制以及可作为药物靶点以克服该抑制作用的分子,将需要开发和利用体外检测方法。
测量CD8+ T细胞毒性的金标准方法是铬释放实验,该实验通过测定被CD8+ T细胞裂解的靶细胞中放射性探针(51Cr)的释放量来评估细胞毒性6。然而,该实验存在若干缺点,包括灵敏度相对较低、背景信号较高、无法检测早期凋亡事件、放射性废物处理危险,以及与自动化液体处理和检测系统的兼容性有限,因而难以支持高通量应用。另一种常用方法是流式细胞术分析,通过annexin V结合来检测靶肿瘤细胞的凋亡7。在此实验中,除靶细胞凋亡外,还可同时检测其他参数,例如利用碘化丙啶(PI)或7-氨基放线菌素D(7-AAD)检测靶细胞死亡,以及通过CD107a或CD69的表达评估效应细胞的活化状态7。然而,该方法相比铬释放实验需要更多的抑制细胞,且需要将贴壁的靶细胞解离和分散,这一过程可能引入结果偏差。事实上,铬释放实验或流式细胞术通常并不用于研究抑制细胞对T细胞功能的影响。相反,常用的方法是通过检测预先加载到T细胞中的荧光染料(如CFSE)的稀释程度来反映T细胞增殖情况,从而评估抑制细胞对CD8+ T细胞功能的抑制作用。检测培养T细胞中IFN-γ的产生是评估抑制细胞对T细胞活化影响的另一种标准方法8,9。然而,这些实验的结果并不一定与CD8+ T细胞杀伤靶细胞的能力相关。
本文介绍一种替代性的功能检测方法,用于评估抑制性细胞(特别是转移性肿瘤中的巨噬细胞)对CD8+ T细胞毒活性的影响。该方法通过自动化的延时显微成像技术,检测在抗CD3/CD28激活抗体存在条件下,经或未经抑制性细胞预共培养的CD8+ T细胞诱导的肿瘤细胞凋亡情况,从而判断其细胞毒活性。肿瘤细胞凋亡由荧光标记的半胱天冬酶-3(caspase-3)底物产生的荧光信号来指示6(图1)。与其它方法相比,本方案具有多项优势:所需细胞数量少,可高灵敏度地检测贴壁肿瘤细胞的死亡,能够实时成像效应细胞与靶细胞之间的相互作用,并适用于高通量筛选。
在本实验方案中,使用从小鼠转移性肿瘤中分离得到的转移相关巨噬细胞(MAMs)及其前体单核样髓源性抑制细胞(M-MDSCs)作为抑制性细胞。在转移性乳腺癌小鼠模型中,肺部含有转移性肿瘤时会富集一类特征性的巨噬细胞群体,其表型为 F4/80highLy6G-CD11bhighLy6Clow。这类巨噬细胞群体在正常肺组织中极为少见,因此被称为转移相关巨噬细胞(MAMs)10。在这些小鼠模型中,还存在另一群髓系细胞,其表型定义为 F4/80highLy6G-CD11bhighLy6Chigh,也主要富集于转移性肺组织,并可分化为 MAMs11。根据其特性,CD11bhighLy6Chigh 的 MAM 前体细胞可能属于 M-MDSCs12。
方案
所有涉及小鼠的操作均依照英国英国内政部颁发的许可(P526C60B3)进行。商用试剂和设备的相关信息列于材料表中。
1. 准备在其细胞核中表达红色荧光蛋白的靶细胞
- 从合适的来源获取目标小鼠癌细胞系。
注意:本方案中使用一种高转移性的 E0771 小鼠乳腺肿瘤细胞衍生株(E0771-LG)13。亲本 E0771 细胞来源于 C57BL/6 小鼠14。 - 在 37 °C、95% 湿度和 5% CO2 的细胞培养孵箱中,使用含 10% (v/v) 胎牛血清(FBS)的杜氏改良伊格尔培养基(DMEM)复苏并维持一管 E0771-LG 细胞。
注意:应确认细胞无支原体污染。为此,将 E0771 细胞(或待检测细胞)按上述方法培养 2–3 天(不添加抗生素和抗真菌剂),收集 500 μL 培养基。以 12,419 × g 离心 60 秒以去除细胞碎片,将上清液转移至新管中。使用市售的支原体检测试剂盒(参见材料表)和/或 PCR15,按照制造商说明检测支原体污染情况。 - 将 5 × 10³ 个 E0771-LG 细胞接种至 12 孔板的每个孔中,加入含 10% (v/v) FBS 的 DMEM 培养基,在 37 °C、95% 湿度和 5% CO2 的孵箱中过夜培养。
注意:若目标细胞的增殖速率较低(群体倍增时间大于 36 小时),可将接种细胞数量增加至 1 × 10⁴ 个。 - 更换培养基为 1 mL 含 10 μg/mL 多聚素(polybrene)和 10% (v/v) FBS 的 DMEM,并加入 25 μL 编码核定位红色荧光蛋白(mKate2,参见材料表)的慢病毒颗粒(1 × 10⁶ TU/mL)。
- 在 37 °C、95% 湿度和 5% CO2 的孵箱中继续培养细胞 24 小时。
- 更换为含 10% (v/v) FBS 的 DMEM 培养基,在 37 °C、95% 湿度和 5% CO2 的孵箱中继续培养 24–48 小时。
- 当细胞开始表达红色荧光蛋白时,更换为含 1 μg/mL 嘌呤霉素的 10% (v/v) FBS-DMEM 培养基,并继续培养至细胞融合度达到 80–90%。
注意:不同目标细胞类型所需的嘌呤霉素浓度可能不同,应使用未转染的细胞进行浓度优化。 - 将存活的细胞在含 1 μg/mL 嘌呤霉素的 10% (v/v) FBS-DMEM 培养基中传代培养 1–3 代,并在液氮气相储存系统中冻存备用。
2. 从小鼠肿瘤中分离抑制性细胞
注意:在本方案中,抑制性细胞(即, 从由 E0771-LG 细胞建立的含转移性肿瘤的肺组织中分离线粒体相关膜结构(MAMs)和单核样髓源性抑制细胞(M-MDSCs)。应优化组织解离和细胞分选条件,以从不同组织中分离出这些细胞。
- 将 1 × 10⁶ 个癌细胞(E0771-LG)注射至同源(C57BL/6)雌性、7–10 周龄小鼠的尾静脉中。
- 14 天后,分离含有转移性肿瘤的肺组织,并通过酶消化法将灌注后的肺组织制备成单细胞悬液,方法如前所述11。
注:本方案中,共向四只小鼠注射癌细胞,并将其转移性肺组织合并,以获得足够的抑制性细胞。 - 将单细胞悬液与抗小鼠 CD16/CD32 抗体在冰上孵育 30 分钟,再加入针对 CD45、F4/80、CD11b、Ly6C 和 Ly6G 的荧光标记抗体(参见材料表),继续孵育 30 分钟10,11,13。
- 用含 2%(w/v)牛血清白蛋白(BSA)的 1 mL PBS 洗涤染色细胞一次,然后将细胞沉淀重悬于 500–1000 μL 含 2%(w/v)BSA 的 PBS 中。
- 加入 3 μM DAPI,使用流式细胞分选仪分选 M-MDSCs(DAPI–CD45+F4/80+Ly6G–CD11bhighLy6Chigh)和 MAMs(DAPI–CD45+F4/80+Ly6G–CD11bhighLy6Clow)(参见补充图 1)。
注:区分 MAMs(Ly6Clow)与 M-MDSCs(Ly6Chigh)的 Ly6C 表达水平阈值基于肺泡静息巨噬细胞(RMAC)的表达水平设定。分选后细胞纯度通过流式细胞术检测,预期纯度超过 90%。 - 将分选后的细胞重悬于 400 μL 含 20%(v/v)胎牛血清(FBS)、1%(v/v)青霉素/链霉素、2 mM L-谷氨酰胺、1%(v/v)非必需氨基酸、1 mM 丙酮酸钠和 50 nM 2-巯基乙醇的 DMEM 培养基中(称为富集型 DMEM,E-DMEM)。
- 采用台盼蓝排斥法计数活细胞数量16,并用 E-DMEM 调整细胞浓度至 2 × 10⁶ 个/mL。
- 将细胞置于冰上保存,待用。
3. 从小鼠脾脏中分离CD8+ T细胞
- 从与目标癌细胞系同源的小鼠中分离脾脏(即, 本方案中使用的 C57BL/6 小鼠,操作步骤如下:
- 通过 CO 处死动物2 吸入
- 将动物置于干净的解剖板上,用70% (v/v) 乙醇擦拭皮肤。
- 使用剪刀剪开腹部皮肤以暴露脾脏
- 分离位于胃下方的脾脏,并将其放入含有5 mL预冷PBS的离心管中。
- 使用无菌5 mL注射器的内芯活塞,在置于50 mL离心管上的100 μm细胞筛网上研磨脾脏。
- 用总共10 mL的PBS将细胞通过滤器。
- 将细胞悬液在 337 x g 5 分钟后,吸除上清液。
- 将细胞沉淀重悬于1 mL含有2 mM EDTA和0.5%(w/v)BSA的PBS(运行缓冲液)中,并通过40 μm细胞滤网过滤。
- 计数活细胞数量并调整至 1 x 10⁸ cells/mL,使用运行缓冲液。
注意:保留少量细胞作为富集前样本,用于纯度检测。 - 富集CD8+ 使用阴性选择试剂盒和磁力分选仪分离T细胞(参见 材料表).
- 转移 1 × 10⁸ (1 mL) 脾细胞悬液加入至5 mL聚苯乙烯圆底管中。
- 加入50 μL生物素化抗体,室温孵育10分钟。
- 加入125 μL链霉亲和素偶联磁珠,室温孵育5分钟。
- 加入1.325 mL运行缓冲液,用移液器轻轻吹打混匀。
- 将试管放入磁力架中,室温孵育2.5 min。
- 拿起磁铁,将富集的细胞悬液倒入新管中。
- 用200 μL E-DMEM重悬富集的细胞(即., 含20% (v/v) 胎牛血清(FBS)、1% (v/v) 青霉素/链霉素、2 mM L-谷氨酰胺、1% (v/v) 非必需氨基酸、1 mM 丙酮酸钠和50 nM 2-巯基乙醇的DMEM培养基。
- 计数活细胞数量,并调整至 2 x 10⁶ 细胞/mL,用E-DMEM重悬。将细胞置于37 °C、CO₂培养箱中培养。2 孵育器中保存,直至使用。
注意:保留少量细胞作为富集后的样本,用于纯度检测。 - 确定 CD8 的纯度+ 通过流式细胞术检测T细胞,步骤如下:
- 取 1 × 10⁴ 来自预富集(步骤 3.6)或富集后(步骤 3.9)样品的细胞,用运行缓冲液调节每个样品总体积至 100 μL。
- 将单细胞悬液与抗小鼠 CD16/CD32 抗体在冰上孵育 30 分钟,然后用针对 CD45、CD3、CD4 和 CD8 的荧光标记抗体进行染色(参见 材料表再持续 30 分钟。
- 用含有2%(w/v)BSA的500 μL PBS洗涤染色后的细胞,并用500–1000 μL含有2%(w/v)BSA的PBS重悬细胞沉淀。
- 加入 3 μM DAPI,测定 CD3 阳性细胞百分比+CD4–CD8+ 总CD45中的细胞+ 细胞群体
4. 分离的CD8+ T细胞的活化与扩增
- 分装 1 x 10⁵ 每 50 μL CD8 的细胞数+ 将T细胞(步骤3.9中制备)加入至U型底96孔板的孔中。
- 加入 1 x 10⁵ 每50 μL抑制细胞(按步骤2.7制备)或50 μL E-DMEM加入至各孔中。
- 制备含有E-DMEM和4 × 10⁵ U/mL青霉素-链霉素的激活培养基。4 U/mL 集落刺激因子1(CSF-1)、240 U/mL 白细胞介素-2(IL-2)、8 μg/mL 抗小鼠CD3ε抗体和16 μg/mL 抗小鼠CD28抗体。
注意:CSF-1 在本方案中并非T细胞活化所必需,但对于抑制性细胞(即MAMs和M-MDSCs)的存活至关重要。因此,在T细胞与靶向癌细胞共培养时保留CSF-1,以维持培养条件的一致性。由于CSF-1在所有组织中均以纳摩尔浓度存在,并且对单核细胞/巨噬细胞的存活具有重要作用 体内 这是这些细胞的生理环境。 - 加入50 μL活化培养基(步骤4.3)和50 μL含或不含待测试剂的E-DMEM。
- 将培养板放入37 °C、95%湿度、5% CO₂的培养箱中2 培养细胞4天。
5. 靶细胞与预先激活的CD8+ T细胞共培养体系的建立
- 向适用于显微镜观察的平底96孔板的各孔中加入30 μL 1:100稀释的生长因子减少型可溶性基底膜基质(材料表),并在37 °C、CO2 培养箱中孵育至少1小时。
- 准备靶细胞(即表达核限制性红色荧光蛋白的E0771-LG细胞)。
- 在室温下用1 mL 0.05%胰蛋白酶/EDTA孵育靶细胞1分钟,并通过轻柔吹打收集细胞。
- 加入9 mL含10% (v/v) 胎牛血清(FBS)的DMEM,将细胞悬液在337 × g 条件下离心5分钟。
- 用500 μL E-DMEM重悬细胞,并计数活细胞数量。
注意:在计数靶细胞前,需通过40 μm细胞筛过滤,以获得单细胞悬液。 - 用E-DMEM调节细胞密度至2 × 10⁴ 个细胞/mL(即每50 μL含1 × 10³ 个细胞),并将细胞置于冰上保存。
- 准备效应细胞(即预先活化的CD8+ T细胞)。
- 用移液器充分吹打96孔板中的细胞(步骤4.5),将悬浮的CD8+ T细胞转移至新的1.5 mL离心管中。
注意:MAMs和M-MDSCs会紧密贴壁,不会因吹打而脱落。 - 为收集残留细胞,向孔中加入200 μL PBS,并将其转移至步骤5.3.1中的离心管中。
- 用1 mL E-DMEM洗涤细胞一次(在337 × g 条件下离心5分钟,吸除并弃去上清液),然后用100 μL E-DMEM重悬细胞。
- 计数活细胞数量(使用台盼蓝排斥法),调节细胞密度至1.6 × 10⁵ 个细胞/mL(即每25 μL含4 × 10³ 个细胞),并将细胞置于冰上保存。
- 用移液器充分吹打96孔板中的细胞(步骤4.5),将悬浮的CD8+ T细胞转移至新的1.5 mL离心管中。
- 吸除步骤5.1中96孔板各孔内的基底膜基质。
- 向每孔加入50 μL含1 × 10³ 个靶细胞的悬液(步骤5.2.4),并充分混匀。
注意:为避免因培养基蒸发导致的边缘效应,仅使用96孔板内侧的60个孔进行分析。 - 向每孔加入25 μL含4 × 10³ U/mL IL-2和10 μM荧光素标记的caspase-3底物的E-DMEM(参见材料表)。
- 向相应孔中加入25 μL含4 × 10³ 个CD8+ T细胞的悬液(步骤5.3.4),并充分混匀。
注意:若孔中细胞过多,将增加分析难度。在本模型中,效应细胞与靶细胞比例为4:1(每孔总细胞数为5 × 10³ 个)时效果最佳,而8:1的比例则次之。为便于数据分析,需设置以下四种对照孔:共培养所用密度的靶细胞(每孔1 × 10³ 个细胞)分别加入含或不含caspase-3底物的培养基;效应细胞(每孔1 × 10³ 个细胞)分别加入含或不含caspase-3底物的培养基。 - 向所有空孔(尤其是板边缘的孔)加入200 μL PBS或无菌水,以减少实验孔中培养基的蒸发。
- 将96孔板放入维持在37 °C、95%湿度和5% CO2 条件下的延时荧光显微镜中。
注意:以十字交叉方式轻摇培养板,使细胞均匀分布,然后将板置于平坦台面上静置10–20分钟,再转移至培养箱中。
6. 细胞成像
注意:详细的图像采集设置将根据所使用的显微镜和荧光染料而有所不同;应采用以下一般采集参数以获得最佳结果。
- 在显微镜上使用适当的自动对焦程序,获取96孔板中每个实验孔至少占总表面积25%的图像。
- 设置显微镜以采集相差图像,以及适用于核限制性红色荧光蛋白(mKate2)的荧光通道和适用于绿色荧光激活型caspase-3底物(激发波长488 nm)的荧光通道的图像(图2)。
- 每隔1至3小时,在实验孔中采集相差图像及两个荧光通道的图像,持续至少72小时。
7. 使用图像分析软件进行图像分析
注意:详细的图像分析设置将根据所使用的软件而有所不同(参见材料表);应采用以下通用分析步骤以获得最佳结果。
- 确定是否需要进行光谱解混以区分目标细胞核与凋亡细胞核发出的荧光信号;若需要,则建立相应的分析方案以实现该目的。
- 在绿色荧光通道中观察仅含有目标细胞(mkate2标记)且培养基中不含caspase-3底物的对照孔。
- 观察红色细胞核是否发出绿色荧光(细胞核呈现绿色)
- 如果在细胞核中观察到绿色荧光,请在成像软件中调用光谱分离控制功能,并逐步增加从绿色通道中去除红色信号的百分比,直至绿色信号消失(根据我们的经验,对于强亮的mKate2荧光,通常为6–7%)。
- 如果任何细胞核中均未观察到绿色荧光,则无需进行光谱分离。
注意:该光谱解混校正测试也可使用含有caspase-3底物的培养基中的靶细胞孔进行。然而,靶细胞中通常仅有极低水平的自发性凋亡(低于10%),导致少数靶细胞核因caspase-3激活而发出绿色荧光,而非荧光串扰所致。在这些条件下,若所有细胞核均显示绿色荧光,则明显提示存在真实的荧光串扰。 - 分别在红色和绿色通道中观察仅含效应细胞(细胞核未标记)且培养基中无caspase-3底物的对照孔。
- 观察细胞核是否发出绿色或红色荧光。如果在各个单独通道中均未明显观察到红色或绿色荧光,则无需进行光谱分离。
注意:根据我们的经验,小鼠 CD8+ T细胞不具有自发荧光,因此这些细胞无需进行光谱解混。该光谱解混校正测试也可使用含有caspase-3底物的培养基中的效应细胞孔进行。然而,通常存在一定水平的自发性凋亡,导致效应细胞核因caspase-3激活而发出绿色荧光。在此条件下,若所有细胞核均显现绿色荧光,则表明存在真实的荧光串色。
- 使用荧光背景扣除方法(例如 TopHat),并根据样本设置相关参数,以在两个荧光通道中分辨出荧光物体。
注意:在绿色通道中,我们使用了TopHat(细胞核半径 = 10.0 µm,绿色荧光阈值 = 0.7 绿色校准单位)。在红色通道中,我们使用了TopHat(细胞核半径 = 10.0 µm,红色荧光阈值 = 0.5 红色校准单位)。 - 使用适当的参数进行边缘分割,以区分单个荧光细胞核。
注意:我们未在绿色或红色荧光通道中使用边缘分割。 - 使用仅含靶细胞(含caspase底物)孔中红色通道的图像,确定靶细胞核的最小尺寸。
注意:我们使用了80 µm2. - 使用仅含效应细胞(含caspase底物)的孔中绿色通道的图像,确定凋亡效应细胞核的平均大小。
注意:单个凋亡效应细胞核的直径范围为 40 – 80 µm2 在这些实验中。 - 建立一种分析流程,利用适当的最小尺寸限制(例如,最小面积、最小直径)来计数荧光标记靶细胞的细胞核数量图2,目标检测掩膜)
注意:我们采用的最小细胞核面积(红色荧光)为 80 µm2. - 建立一种分析流程,用于计数大于凋亡效应细胞核平均大小的凋亡细胞核数量图2,大小受限的凋亡掩膜。
注意:尺寸过滤器已设置为 80 µm2 (即, 仅统计大于此尺寸的绿色荧光区域,从而排除 单个 凋亡效应细胞核)。使用这些参数可提高凋亡计数分析的准确性 目标 细胞核,尽管一些凋亡效应细胞的聚集体也可能被计数。 - 建立一种分析程序以计数数量 凋亡靶细胞 通过计数红色荧光信号(来自步骤7.6)与经大小筛选的绿色荧光信号(来自步骤7.7)显著共定位的细胞核图2,R/G 重叠掩膜。
注意:适当的共定位范围可能为靶细胞核平均大小的30%至100%。重叠尺寸滤波器设置为40 µm。2. - 确定每种实验条件下,在整个时间过程中各孔中凋亡靶细胞核的数量以及靶细胞核的总数。
8. 使用计算和绘图软件进行数据分析
- 将步骤 7.9 中获得的实验孔在整个时间过程中的凋亡靶细胞核数量绘制成图。如果每种实验条件使用了多个孔,则以均值 ± 标准差的形式在图中表示结果。
- 通过将每个时间点每个孔中凋亡细胞的数量除以该孔中靶细胞的数量,计算靶细胞群体的凋亡比例。
- 将步骤 8.2 中获得的结果绘制成图。
- 计算每条曲线下的面积(AUC)。如有需要,还可确定每条曲线所对应的群体最大凋亡比例及其出现的时间点。使用适当的统计学方法判断不同实验条件下的 AUC 值是否存在显著差异。
注:AUC 结果采用了带 Welch 校正的非配对 t 检验。
结果
该方法基于将靶向癌细胞与效应CD8细胞进行简单的共培养+ 在抗CD3/CD28激活抗体存在下,预先与或不与抑制细胞共培养的T细胞。可检测CD8+ T细胞与癌细胞共培养后随时间推移诱导癌细胞凋亡,从而可评估抑制性细胞对CD8细胞毒性的效应+ T细胞
通常,当癌细胞与在无抑制细胞存在的情况下由抗体预先活化的 CD8+ T 细胞接触时,其细胞核内会因核靶向型半胱天冬酶生物传感器的激活而增强绿色荧光(图3;补充视频1)。在凋亡启动后,至少15小时内仍可检测到半胱天冬酶底物产生的绿色荧光。即使将效应性 CD8+ T 细胞单独培养,随时间推移也可观察到部分自发性凋亡(图4;补充视频2)。然而,CD8+ T 细胞的细胞核尺寸小于癌细胞,因此可通过基于尺寸限制的图像分析方法将凋亡的“效应细胞”从凋亡“靶细胞”的计数中排除(图2 和 图4)。尽管部分靶向癌细胞呈现较小的圆形形态且无绿色荧光,但由于这些细胞正处于有丝分裂而非凋亡过程(补充视频3),因此可通过红/绿重叠掩膜法将其排除在凋亡“靶细胞”计数之外(补充图2)。即使在单细胞培养条件下,偶尔也可观察到靶向癌细胞的自发性凋亡(补充视频3)。然而,将靶向癌细胞与预先活化的 CD8+ T 细胞共培养后,肿瘤细胞的凋亡水平显著高于癌细胞单培养中的自发性凋亡水平(图4)。通常情况下,当采用最佳的靶细胞与效应细胞比例时,可观察到凋亡靶向癌细胞数量达到峰值(图5A)。若将数据表示为靶细胞群体中的凋亡比例,则该峰值更为明显(图5B)。本实验中,靶向肿瘤细胞的基础凋亡水平在24小时达到峰值(凋亡比例 = 0.08),而由 CD8+ T 细胞诱导的凋亡则在17小时达到最大值(凋亡比例 = 0.66)。
我们进一步发现,与MAMs或M-MDSCs共孵育预处理的CD8+ T细胞虽能与靶癌细胞发生接触,但与未经抑制细胞预激活的CD8+ T细胞相比,这种接触导致癌细胞凋亡的情况较少(图3 和 图4;补充影片4 和 补充影片5)。尽管与髓系细胞共孵育预处理的CD8+ T细胞偶尔可诱导癌细胞凋亡,但在实验观察期间,部分未被诱导凋亡的靶癌细胞还出现了增殖现象(补充影片6)。与这些结果一致的是,与经髓系细胞预孵育的CD8+ T细胞共培养的癌细胞中,凋亡细胞峰值比例(MDSC-E组在23小时时凋亡比例为0.38,MAM-E组在20小时时为0.25)显著低于未经抑制细胞预孵育的CD8+ T细胞共培养的癌细胞(图6)。

图1:实验流程示意图。 初始脾源性CD8+ T细胞在存在或不存在转移相关巨噬细胞(MAMs)或单核细胞系髓源性抑制细胞(M-MDSCs)的条件下,与抗CD3/CD28活化抗体共同培养。培养4天后,收集悬浮生长的CD8+ T细胞,并与靶癌细胞共培养,同时加入荧光原性caspase-3底物。通过实时荧光显微镜检测发生凋亡的癌细胞。图中所示图像采用活细胞成像系统获取(参见材料表)。请点击此处查看该图的放大版本。
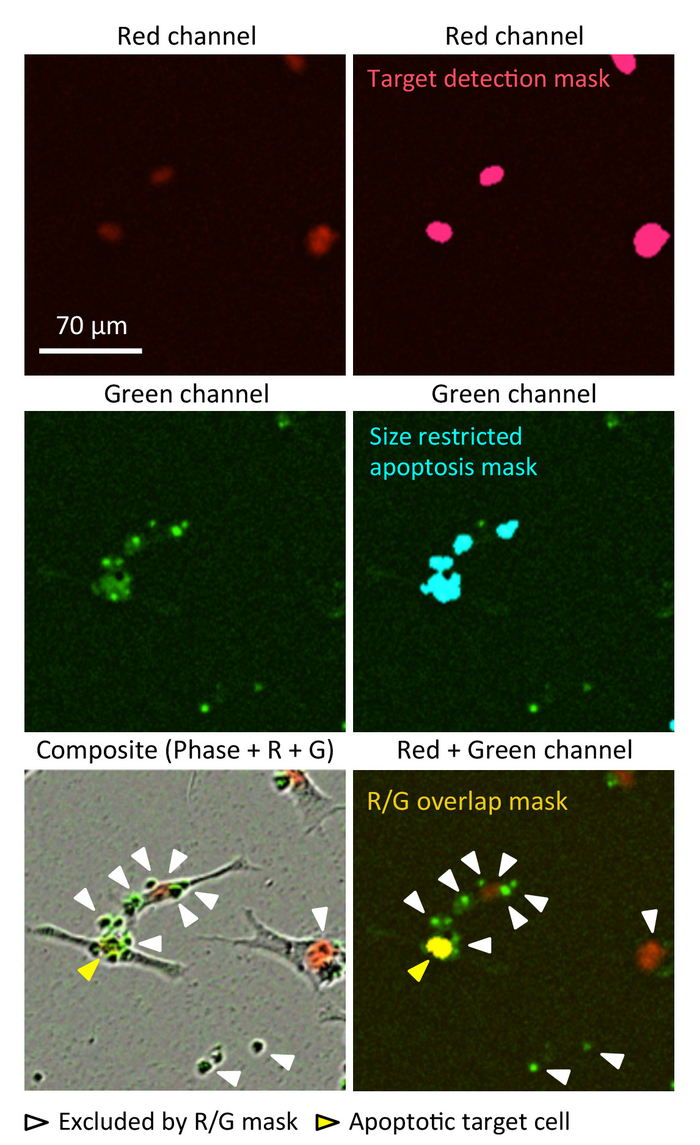
图2:区分凋亡靶细胞与凋亡效应细胞。 上排:红色通道成像可利用靶细胞检测掩膜(粉红色分析掩膜)识别靶细胞核。中排:绿色通道获取的图像显示凋亡效应细胞和靶细胞;通过设定大小限制的凋亡掩膜(蓝绿色分析掩膜;大于80 µm2),可在分析中排除单个凋亡效应细胞。下排:将红色和绿色通道图像与相差图像(左)或红/绿重叠掩膜(右)合并生成的复合图像。通过识别与红色荧光共定位且受大小限制的绿色荧光信号(黄色分析掩膜),可更准确地检测凋亡靶细胞核(黄色箭头),同时排除凋亡效应细胞的聚集体(白色箭头)。请点击此处查看该图的高清版本。
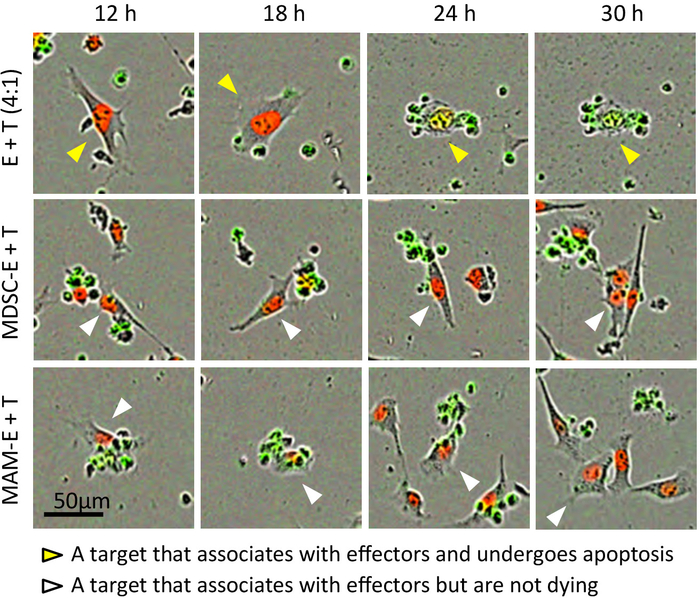
图3:CD8+ T细胞与癌细胞之间的相互作用。代表性延时成像序列截图,显示效应CD8+ T细胞(E)与靶细胞E0771-LG_NLR(T)在效靶比为4:1条件下共培养的结果。MDSC-E和MAM-E分别表示预先与M-MDSCs和MAMs共孵育的效应细胞。图中展示的是由相差、红色和绿色荧光通道图像合并而成的复合图像。箭头用于追踪不同视野和时间点中的相同细胞。黄色箭头:与效应细胞结合并发生凋亡的靶细胞;白色箭头:与效应细胞结合但未发生凋亡的靶细胞。请点击此处查看该图的高清版本。
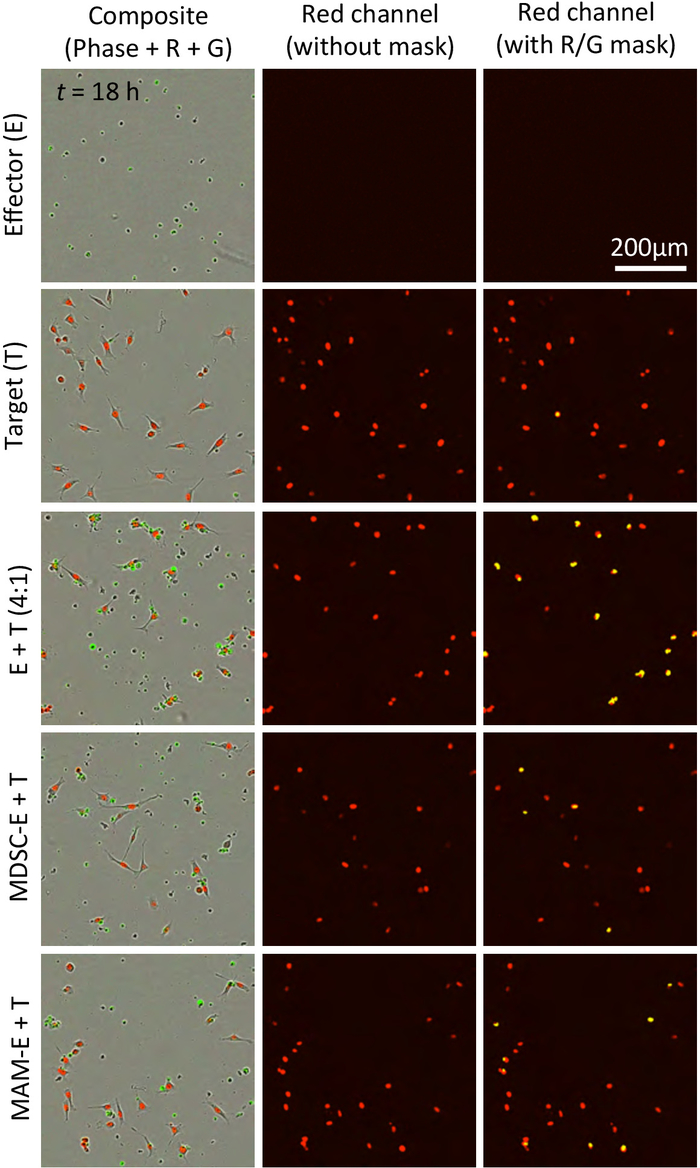
图4:凋亡癌细胞的检测。 从成像后18小时的时间序列电影中提取的代表性视野。显示复合图像(左图;相差、红色和绿色通道)、仅红色通道图像(中图)以及带有红/绿重叠掩模(黄色)的红色通道图像(右图)。右图中的黄色点代表凋亡的癌细胞。 请点击此处查看该图的放大版本。
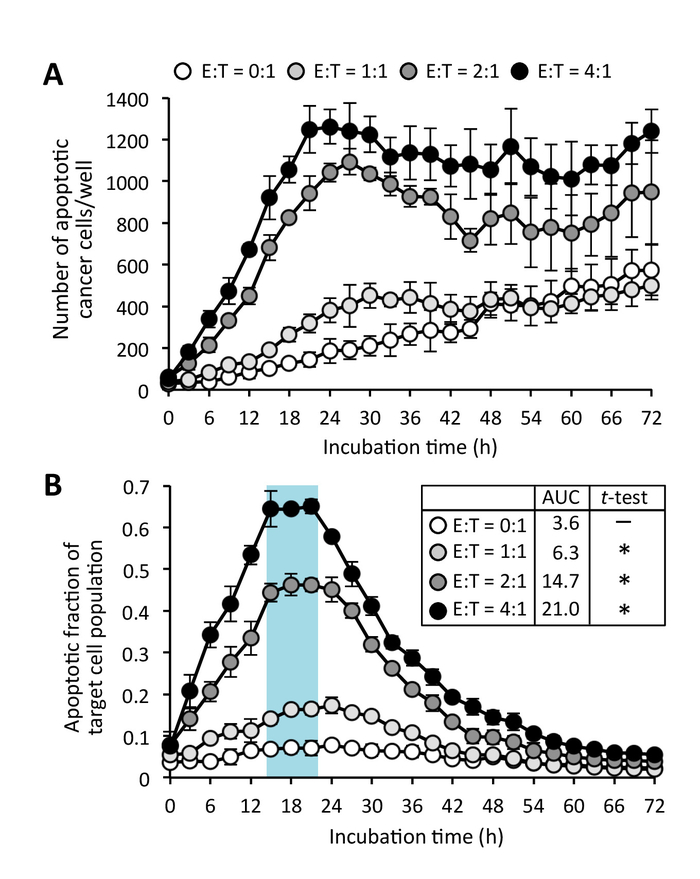
图 5:CD8+ T 细胞诱导的癌细胞凋亡。(A)在不同效应细胞与靶细胞比例(E:T)下,与效应 C8+ T 细胞共培养的凋亡癌细胞数量。(B)靶细胞群体中的凋亡比例。数据以均值 ± 标准差表示,同时展示了曲线下平均面积(AUC)。采用未配对 t 检验(Welch 校正)对 AUC 进行分析。*P<0.0001,与 E:T=0:1 组比较。请单击此处查看该图的放大版本。
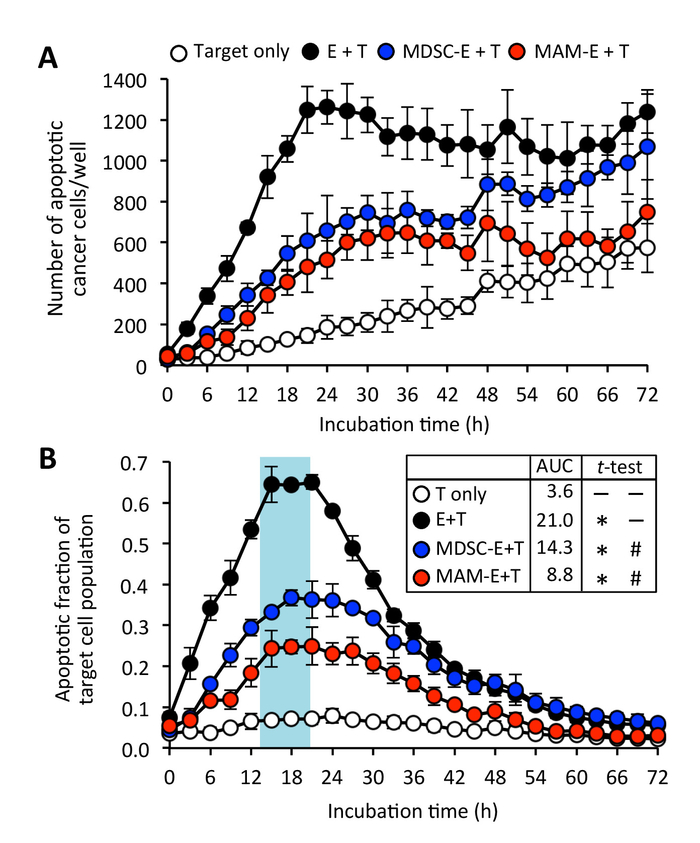
图 6:肿瘤浸润性髓系细胞对 CD8+ T 细胞细胞毒性的效应。(A)在效靶比(E:T)为 4:1 的条件下,与 CD8+ T 细胞(效应细胞:E)共培养的凋亡癌细胞(靶细胞:T)数量。CD8+ T 细胞在无(黑色圆圈)或存在单核细胞型髓源性抑制细胞(MDSC-E:蓝色圆圈)或转移相关巨噬细胞(MAM-E:红色圆圈)的条件下预先培养。数据以均值 ± 标准差表示。(B)靶细胞群体的凋亡比例。数据以均值 ± 标准差表示。同时显示平均曲线下面积(AUC)。采用未配对 t 检验(Welch 校正)分析 AUC。*P<0.0001 与仅 T 组比较,#P<0.0001 与 E+T 组比较。请点击此处查看该图的高清版本。
补充图1. 从转移性肺组织中分离抑制性细胞的设门策略。(A)用于分离单核细胞样髓源性抑制细胞(M-MDSCs)和转移相关巨噬细胞(MAMs)的代表性散点图。区分MAMs(Ly6Clow)与M-MDSCs(Ly6Chigh)的Ly6C表达水平阈值,参照肺内固有肺泡巨噬细胞(RMAC)的Ly6C水平设定。(B)分选后M-MDSCs(CD45+Ly6G-CD11b+Ly6Chigh)和MAMs(CD45+Ly6G-CD11b+Ly6Clow)的纯度验证。请点击此处下载该文件。
补充图2. 有丝分裂靶细胞的代表性图像。 来自靶细胞E0771-LG_NLR单细胞培养的代表性延时录像的静态图像。上图:包含相差、红色和绿色通道图像的合成图像。下图:红色和绿色通道的合成图像,并叠加红/绿重叠掩模。请点击此处下载该文件。
补充图3. 肿瘤浸润性髓系细胞对CD8 T细胞增殖的影响+ T细胞 (A代表性直方图显示使用CFSE对CD8进行荧光标记后的稀释情况+ T细胞。初始脾脏CD8+ T细胞按方案-3所述方法分离并标记 5 µM CFSE 的 37 °C 孵育15分钟。将标记的T细胞在含有IL-2及抗CD3/CD28激活抗体的条件下培养,根据方案4所述,可选择性加入髓系细胞。培养4天后,通过流式细胞仪检测T细胞中的绿色荧光。BCD8 分裂指数+ T细胞的计算方法同前文所述17数据为均值 ± 标准误。*P<0.01,与对照组相比, #P<0.05,相较于 αCD3/CD28 抗体。 请点击此处下载该文件。
补充视频 1. 图 3 和图 4 的动态演示;E+T。 请点击此处下载该文件。
补充视频 2. 图 3 和图 4 的视频;效应细胞 (E)。 请点击此处下载该文件。
补充视频 3. 图 3 和图 4 的视频;靶标 (T)。 请点击此处下载该文件。
补充视频 4. 图 3 和图 4 的视频;MDSC-E +T。 请点击此处下载该文件。
补充视频 5. 图 3 和图 4 的视频;MAM-E +T。 请点击此处下载该文件。
补充视频 6. 图 3 和图 4 的视频;MAM-E +T(增殖)。 请点击此处下载该文件。
讨论
该方法基于两个独立的共培养步骤: 首先将CD8+ T细胞与潜在的抑制性细胞共培养,然后将“预处理后”的CD8+ T细胞与靶肿瘤细胞共培养(图1)。第一步共培养与常用的CD8+ T细胞增殖实验类似,后者常用于评估抑制性细胞对CD8+ T细胞功能的影响。然而,T细胞增殖并不总是与其细胞毒性相关。例如,我们发现,在CD3/CD28激活抗体存在的情况下,M-MDSCs或MAMs与CD8+ T细胞共培养反而会增强而非抑制其增殖(补充图3),但这些经预处理的CD8+ T细胞对靶向癌细胞的细胞毒性却显著降低(图4、图5、图6)。这些结果凸显了本CD8+ T细胞细胞毒性实验所提供的功能性活性评估的重要性,即通过检测靶癌细胞的凋亡来反映其效应功能。
在本实验中,我们发现CD8+ T细胞需要与E0771-LG小鼠乳腺肿瘤细胞共培养约15小时,才能诱导肿瘤细胞达到最大程度的凋亡(图5)。这种延迟可能源于效应细胞与靶细胞初始接触及免疫突触形成所需的时间,以及靶细胞中凋亡信号(通过caspase-3活化程度测定)启动所需的过程(补充视频1)。我们还发现,凋亡肿瘤细胞的数量在24小时后趋于平稳,这可能是由于T细胞对靶细胞的清除作用和/或死亡细胞荧光信号的丢失所致。能够确定凋亡峰值出现的时间是本实验方法的主要优势之一,因为选择合适的时间点对于不同实验条件之间的准确比较至关重要。例如,在我们的实验中,对照组CD8+ T细胞与经MDSC/MAM诱导分化的CD8+ T细胞之间的细胞毒性差异在15–18小时明显大于72小时(图5),因此若采用72小时作为终点进行实验,将可能导致误导性结果。
该方法还可实现效应细胞与靶细胞相互作用的实时可视化,有助于更深入地理解经抑制性细胞预孵育后CD8+ T细胞杀伤活性受限的机制。例如,我们观察到经M-MDSCs或MAMs预孵育的CD8+ T细胞能够接触并结合靶肿瘤细胞,但并不总是诱导细胞凋亡(补充视频4、补充视频5、补充视频6)。尽管我们未对此事件进行量化,但进一步量化并比较不同处理组中细胞接触频率及其相互作用时间与细胞凋亡诱导之间的相关性,将是可行且有意义的研究方向。另一主要优势在于该方法所需细胞数量较少(例如,每孔仅需1 × 10³个靶细胞和4 × 10³个效应细胞)。事实上,若需要,本方案还可进一步微型化,适用于384孔板格式。因此,该检测方法适用于高通量筛选,以及细胞数量有限的实验,例如利用来自体内或离体样本的珍贵细胞进行的in vitro测试。
另一方面,本实验方法的一个局限性在于某些条件下存在大量死亡的效应细胞。为了更准确地区分靶向癌细胞与效应性CD8+ T细胞的凋亡,本实验对标记了靶细胞的细胞核,并在数据分析时设置了细胞核大小的筛选条件(以排除效应细胞)(图2)。然而,在某些情况下,(绿色)凋亡的CD8+ T细胞聚集体可能覆盖在非凋亡的靶向癌细胞上,从而干扰实验结果。若效应细胞数量充足,可在与靶向肿瘤细胞共培养前,使用死细胞去除柱来减轻这一局限性。此外,若采用更复杂的显微成像系统,还可通过使用与靶细胞核及荧光生成型caspase-3底物不同的荧光染料标记效应性CD8+ T细胞,从而降低假阳性信号。
迄今为止,本方案已用于研究CD8的抗原非特异性活化+ T细胞。尽管肿瘤微环境中的髓源性抑制细胞(MDSCs)和肿瘤相关巨噬细胞(TAMs)通过抗原非特异性机制抑制T细胞功能,但外周淋巴组织中的MDSCs则以抗原特异性方式抑制T细胞应答。18为了研究此类细胞类型的免疫抑制功能,可采用基于CD8的体外增殖实验+ 来自OT-1转基因小鼠的T细胞常被使用。在本实验中,OT-1 T细胞(表达卵清蛋白(OVA)特异性T细胞受体)与抑制性MDSCs在OVA肽存在下共培养,该条件适用于我们细胞毒性实验中的初次培养(即., 在存在或不存在抑制性细胞的情况下T细胞的活化)。还可对靶向癌细胞进行改造以表达OVA,从而诱导OT-1 T细胞对癌细胞的抗原特异性杀伤。因此,该检测方法也可用于研究MAM/MDSC介导的抗原特异性T细胞活化的抑制作用。此外,该检测方法也可应用于人源细胞的研究,因为针对人CD3和CD28的活化抗体已有商业化产品,且已建立从临床样本中分离人源TAM的实验方案。19.
总体而言,该检测方法具有较高的通用性,可用于检测其他免疫细胞类型的细胞毒性。目前,在我们的实验室中,该方法正在被拓展应用于在不同条件下检测抗原依赖性细胞毒性,同时也正在开发用于高通量筛选。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了惠康基金会(Wellcome Trust)(101067/Z/13/Z(JWP)、109657/Z/15/Z(TK)、615KIT/J22738(TK),英国)和英国医学研究理事会(MRC)(MR/N022556/1(JWP, TK),英国)的资助。NOC 和 DDS 承认获得了国家表型筛选中心表型组学发现计划和英国癌症研究基金会(Cancer Research UK)(NOC)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.05% 胰蛋白酶 EDTA (1X) | Gibco | 25300-054 | |
| 12孔细胞培养板 | 弗雷纳生物一公司 | 665-180 | |
| 1x PBS | Gibco | 14190-094 | |
| 2-巯基乙醇 | Sigma | M6250-10ML | |
| 5 mL 聚苯乙烯圆底管 | FALCON | 352054 | |
| 96孔细胞培养板(圆底) | Costar | 3799 | CD8+T细胞与分选髓系细胞的共培养 |
| 96孔板(平底) | Nunc | 165305 | CD8+ T细胞与靶细胞共培养用于细胞毒性检测 |
| AF647 anti-mouse F4/80 抗体 | BIO-RAD | MCA497A647 | 克隆:CIA3-1,批号:1707,2 μL/1×10^6 个细胞 |
| AlexaFluor700 抗小鼠 CD8 抗体 | Biolegend | 100730 | 克隆:53-6.7,货号:B205738,0.5 μL/1×10⁶ 个细胞 |
| 抗小鼠 CD28 抗体 | Biolegend | 102111 | CD8+ T细胞的活化,克隆:37.51,批号:B256340 |
| 抗小鼠 CD3e 抗体 | Biolegend | 100314 | CD8+ T细胞的活化,克隆号:145-2C11,货号:B233720 |
| APC 标记的抗小鼠 CD3 抗体 | Biolegend | 100236 | 克隆:17A2,货号:B198730,0.5 μL/1×10⁶ 个细胞 |
| APC/Cy7 抗小鼠 Ly6C 抗体 | Biolegend | 128026 | 克隆:HK1.4,货号:B248351,1 μL/1×10⁶ 个细胞 |
| 牛血清白蛋白 | Sigma | A1470-100G | |
| 细胞筛(100μm 尼龙 | FALCON | 352360 | 捣碎脾脏 |
| 细胞筛(40μm 尼龙 | FALCON | 352340 | 过滤肺组织消化液 |
| DAPI | Biolegend | 422801 | |
| 杜尔贝科′s 改良伊格尔′s 培养基 | Gibco | 41966-029 | |
| EasySep 小鼠 CD8+ T 细胞分离试剂盒 | StemCell Technologies | 19853 | |
| 胎牛血清 | Gibco | 10270-106 | |
| FITC 标记的抗小鼠 CD4 抗体 | Biolegend | 100406 | 克隆:GK1.5,货号:B179194,0.5 μL/1×10⁶ 个细胞 |
| Geltrex 即用型 | Gibco | A1596-01 | 细胞毒性实验用96孔板的包被 |
| IncuCyte NucLight Red 慢病毒试剂 | Essen BioScience | 4476 | 编码 mKate2 的慢病毒颗粒 |
| IncuCyte ZOOM | Essen BioScience | 检测器(荧光显微镜) | |
| IncuCyte ZOOM 2018A | Essen BioScience | 分析软件 | |
| L-谷氨酰胺(100X) | Gibco | A2916801 | |
| 肺组织解离试剂盒 | Miltenyi | 130-095-927 | 从荷瘤肺组织制备单细胞悬液 |
| MycoAlert 支原体检测试剂盒 | Lonza | LT07-318 | |
| 非必需氨基酸(100X) | Gibco | 11140-035 | |
| NucView488 | Biotium | 10403 | 荧光原性caspase-3底物 |
| PE 抗小鼠 Ly6G 抗体 | Biolegend | 127607 | 克隆:1A8,批号:B258704,0.5 μL/1×10⁶ 个细胞 |
| PE/Cy7 抗小鼠 CD11b 抗体 | Biolegend | 101216 | 克隆:M1/70,批号:B249268,0.5 μL/1×10^6 个细胞 |
| 青霉素-链霉素 | Gibco | 15140-122 | 细胞原代培养用青霉素-链霉素 |
| PerCP/Cy5.5 抗小鼠 CD45 抗体 | Biolegend | 103132 | 克隆:30-F11,批号:B249564,0.5 μL/1×10⁶ 个细胞 |
| Polybrene(Hexadimethrine bromide) | Sigma | H9268 | |
| 嘌呤霉素 | Gibco | A11138-03 | |
| 红细胞裂解缓冲液(10X) | Biolegend | 420301 | |
| 重组小鼠 IL-2 | Peprotech | 212-12 | 分离的CD8+ T细胞的活化 |
| 丙酮酸钠(100X) | Gibco | 11360-070 | |
| TruStain fcX(抗小鼠 CD16/32)抗体 | Biolegend | 101320 | |
| :尼康10倍物镜(分辨率1.22 µm) :绿色通道激发:440 - 480 nm :绿色通道发射波长:504 - 544 nm :红色通道激发:565-605 nm :红色通道发射光:625 - 705 nm |
参考文献
- Barry, M., Bleackley, R. C. Cytotoxic T lymphocytes: all roads lead to death. Nature Reviews in Immunology. 2, 401-409 (2002).
- Durgeau, A., Virk, Y., Corgnac, S., Mami-Chouaib, F. Recent advances in targeting CD8 T-cell immunity for more effective cancer immunotherapy. Frontiers in Immunology. 9. , 14(2018).
- Tanaka, A., Sakaguchi, S. Regulatory T cells in cancer immunotherapy. Cell Research. 27, 109-118 (2017).
- Fleming, V., et al. Targeting myeloid-derived suppressor cells to bypass tumor-induced immunosuppression. Frontiers in Immunology. 9, 398(2018).
- Cassetta, L., Kitamura, T. Macrophage targeting: opening new possibilities for cancer immunotherapy. Immunology. 155, 285-293 (2018).
- Chahroudi, A., Silvestri, G., Feinberg, M. B. Measuring T cell-mediated cytotoxicity using fluorogenic caspase substrates. Methods. 31, 120-126 (2003).
- Zaritskaya, L., Shurin, M. R., Sayers, T. J., Malyguine, A. M. New flow cytometric assays for monitoring cell-mediated cytotoxicity. Expert Review of Vaccines. 9, 601-616 (2010).
- Azimi, M., et al. Identification, isolation, and functional assay of regulatory T Cells. Immunological Investigation. 45, 584-602 (2016).
- Bruger, A. M., et al. How to measure the immunosuppressive activity of MDSC: assays, problems and potential solutions. Cancer Immunology Immunotherapy. , (2018).
- Qian, B., et al. A distinct macrophage population mediates metastatic breast cancer cell extravasation, establishment and growth. PLoS One. 4, e6562(2009).
- Kitamura, T., et al. Monocytes differentiate to immune suppressive precursors of metastasis-associated macrophages in mouse models of metastatic breast cancer. Frontiers in Immunology. 8, 2004(2018).
- Bronte, V., et al. Recommendations for myeloid-derived suppressor cell nomenclature and characterization standards. Nature Communications. 7, 12150(2016).
- Kitamura, T., et al. CCL2-induced chemokine cascade promotes breast cancer metastasis by enhancing retention of metastasis-associated macrophages. Journal of Experimental Medicine. 212, 1043-1059 (2015).
- Ewens, A., Mihich, E., Ehrke, M. J. Distant metastasis from subcutaneously grown E0771 medullary breast adenocarcinoma. AnticancerResearch. 25, 3905-3915 (2005).
- Choppa, P. C., et al. Multiplex PCR for the detection of Mycoplasma fermentans, M. hominisandM. penetransin cell cultures and blood samples of patients with chronic fatigue syndrome. Molecular and Cellular Probes. 12, 301-308 (1998).
- Strober, W. Trypan blue exclusion test of cell viability. Current protocols in immunology. , Appendix 3:Appendix 3B (2001).
- Koyanagi, M., Kawakabe, S., Arimura, Y. A comparative study of colorimetric cell proliferation assays in immune cells. Cytotechnology. 68, 1489-1498 (2016).
- Gabrilovich, D. I., Nagaraj, S. Myeloid-derived-suppressor cells as regulators of the immune system. Nature Reviews in Immunology. 9, 162-174 (2009).
- Cassetta, L., et al. Isolation of mouse and human tumor-associated macrophages. Advances in Experimental Medicine and Biology. 899. 899, 211-229 (2016).
重印与许可
