Drosophila 细胞系是基础研究和生物医学研究中的重要试剂。本文提供了常用 Drosophila 细胞系的解冻、传代培养和冷冻保存的实验方案,以帮助研究人员在其研究中更好地使用这些试剂。
本文内容
摘要
摘要
目前已有超过160种不同的 果蝇 由果蝇基因组资源中心(Drosophila Genomics Resource Center, DGRC)分发的细胞系。随着基因组编辑技术的发展,新型细胞系的数量预计将不断增加。DGRC 旨在帮助研究人员熟悉这些细胞系的使用方法 果蝇 细胞系作为一种实验工具,可用来补充并推动其研究计划。涉及多种细胞系操作的实验方案 果蝇 具有不同特性的细胞系,包括细胞系的复苏、培养和冻存方案。重要的是,本出版物展示了操作细胞系所需的最佳实践方法 果蝇 细胞系,以尽量降低来自意外微生物或其他细胞系污染的风险。熟悉这些操作的研究人员将能够深入探索使用细胞系的众多应用领域。 果蝇 培养的细胞,包括生物化学、细胞生物学和功能基因组学。
引言
Drosophila 培养细胞的使用可补充体内果蝇遗传学分析,并作为探究众多基础生物学问题的主要工具1,2,3。Drosophila 细胞系提供了来源于不同组织、具有不同遗传背景的均一细胞群体。这些细胞系适用于多种应用,包括转基因表达、基因组学、转录组学、蛋白质组学、代谢组学、高通量RNA干扰(RNAi)筛选、细胞生物学和显微镜观察。尤为重要的是,Drosophila 细胞培养有助于表征细胞对已知刺激的即时时间响应。此外,Drosophila 细胞培养适用于CRISPR-Cas9基因组编辑,因而相对容易构建具有特定基因组修饰的新细胞系4,5,6,7。
果蝇基因组资源中心(Drosophila Genomics Resource Center, DGRC)作为存储与分发中心,为果蝇研究社区提供质粒、细胞系、cDNA文库、基因组DNA及其他相关资源。该中心支持基础生物学、遗传学与发育生物学研究,促进科学资源共享与协作。 关键词:果蝇基因组资源中心,DGRC,果蝇,质粒,细胞系,cDNA文库,基因组DNA,遗传学,发育生物学,资源分发 果蝇 细胞系。DGRC 的目标之一是协助科研社区成员使用 果蝇 细胞培养资源。本文介绍了细胞培养操作的基本方案 果蝇 细胞系。它补充了现有资源,帮助研究人员熟悉细胞操作 黑腹果蝇 细胞培养并在实验中实现一定程度的独立性1,2,8,9,10.
最常用的 Drosophila 细胞系包括:Schneider 细胞系11、Kc16712、Mitsubishi/Miyake 幼虫盘和中枢神经系统(CNS)细胞系13,14、Milner 实验室幼虫盘细胞系15、成体卵巢细胞系16,17,以及 Ras 细胞系18(表 1)。Schneider 细胞系和 Kc167 细胞系是通用型细胞系,适用于生物化学、重组转基因表达以及反向遗传筛选实验。Mitsubishi/Miyake 实验室(ML)细胞系来源于幼虫的成虫盘或中枢神经系统(CNS),在神经分泌、转录调控和 RNA 加工相关研究中具有重要价值。Milner(CME)成虫盘细胞系在信号转导研究中发挥着重要作用。来源于突变成体卵巢的 fGS/OSS 细胞系仍是研究非编码小 RNA 生物学在生殖细胞维持与分化中作用的重要工具17,19。最后,Ras 细胞系具有独特性,因其来源于异位表达 Ras 癌基因的胚胎,具有肌肉前体细胞的转录特征,并表达有活性的 piRNA 机制20。近期的综述文章和书籍章节对这些常用细胞系的应用进行了更详细的介绍2,3,9。
所有这些细胞系均可进行传代培养和冻存。不同细胞系在维持和冻存前的处理方面存在一些细微但重要的差异。例如,不同的细胞系需要使用不同的培养基和添加剂(表1)。这些细胞系在贴壁特性、形态(图1 和 图2)、基因型以及倍增时间(表2)方面也各不相同。本文提供了基本的操作方案,并重点说明了处理各种常用黑腹果蝇(Drosophila)细胞系时的独特差异。
方案
1. 解冻与复苏冻存的 Drosophila 细胞系
- 用70%乙醇擦拭操作台表面以对超净台进行消毒。加入5 mL适当的培养基(表1)转移至一个 25 cm2 T型培养瓶(T-25)
- 从液氮中取出冻存管/安瓿瓶2 或干冰。用70%乙醇擦拭冻存管,小心松开并打开安瓿瓶。
- 使用巴斯德移液管,从 T-25 培养瓶中吸取 1 mL 室温(RT)培养基。缓慢将培养基加入冻存管中,轻轻混匀以解冻冻存的细胞,注意避免细胞悬液溢出。
- 将安瓿中解冻的细胞悬液全部转移至T-25培养瓶中。重复操作,以确保细胞悬液完全转移。
- 将培养瓶置于25 °C培养箱中,使细胞沉降并贴壁至少2小时。在显微镜下观察细胞,确保大多数细胞已贴附于生长表面。轻轻移除旧培养基,加入5 mL新鲜培养基。将培养瓶放回培养箱中。
- 次日,轻轻吸出旧培养基,更换为5 mL新鲜培养基,将培养物放回培养箱中。
2. 解冻与复苏冻存的 Drosophila 细胞系(替代方法)
- 在无菌操作台中,用 1 mL 室温培养基重悬冻存的细胞沉淀,使其解冻。将全部解冻后的细胞悬液转移至 15 mL 圆底离心管中。
- 在 1,000 × g 条件下离心 5 分钟,使细胞沉淀。弃去上清液,并将细胞沉淀用 5 mL 新鲜培养基重悬。
- 将全部细胞悬液转移至 T-25 培养瓶中,并在 25 °C 条件下培养。
- 1 至 2 小时后,在显微镜下观察细胞,确保大多数细胞已贴附于生长表面。次日,将旧培养基更换为 5 mL 新鲜培养基,并将培养物放回培养箱中继续培养。
3. 在100 mm培养板中培养的半贴壁细胞的传代
- 用70%乙醇擦拭超净台以进行灭菌。将传代培养所需的无菌材料放入超净台内,包括培养基瓶、移液管、移液器辅助装置和培养板。
- 在显微镜下观察细胞的形态和融合度。检查培养物中是否存在微生物污染的明显迹象。根据细胞培养特性(包括细胞密度、倍增时间以及上次传代时间)判断细胞是否已准备好进行传代。
- 如果培养物显示高度融合(图1),则测定细胞密度。在无菌超净台内,用移液管吸取最多10 mL培养基,反复吹打培养板上的细胞,使其从生长表面脱落。重复数次,注意避免产生泡沫,直至生长表面变得清晰。使用血细胞计数板或自动颗粒计数器测定细胞密度(第5节,图3)。当细胞密度处于5 × 10⁶ 至 1 × 10⁷ 个细胞/mL之间时,进行细胞传代。
注意:果蝇(Drosophila)细胞系的传代不得使细胞密度低于1 × 10⁶ 个细胞/mL。 - 使用适当的培养基将细胞悬液稀释至最终接种浓度至少为1 × 10⁶ 个细胞/mL。
- 对于常规传代和维持培养,将适量的细胞悬液加入新培养板中已预置体积的培养基中,以达到目标接种细胞密度。
- 对于扩大培养,将全部细胞悬液转移至较大的培养瓶中,用适量培养基将细胞悬液稀释至目标细胞密度,然后将等体积的稀释后细胞悬液分配至新的培养板中。此方法可最大限度减少各培养板间细胞密度的差异。
- 盖好培养板,并贴上标签,注明操作者姓名缩写、日期、传代比例、接种细胞密度、细胞系标识符、培养基种类、传代次数以及任何添加成分(如抗生素)。
- 将培养板放入塑料容器中,并将容器放回培养箱。
注意:<表格3列出了常用于培养果蝇(Drosophila)细胞系的培养容器及其对应的培养工作体积。
4. 收集在100 mm培养皿中生长的贴壁细胞
- 将培养皿中的全部培养基转移至一个新的无菌烧瓶中,保存培养基。
- 缓慢向培养皿中加入1 mL 0.05%胰蛋白酶-EDTA溶液,润洗细胞。轻轻晃动培养皿,确保胰蛋白酶溶液覆盖整个生长表面,随后弃去胰蛋白酶溶液。
- 向培养皿中轻柔加入1 mL 0.05%胰蛋白酶-EDTA溶液。将培养皿置于25 °C孵育3−10分钟,并密切观察细胞层是否出现脱离并从生长表面滑落的可见迹象。
- 向培养皿中加入9 mL保存的培养基以终止胰蛋白酶活性。混匀细胞悬液,使细胞团块充分解离。当所有细胞均脱落之后,生长表面将变得清晰透明。
注意: 使用胰蛋白酶等消化酶有助于传代贴壁性较强的细胞系。胰蛋白酶是一类蛋白酶的混合物,通常来源于猪胰腺,市面上有不同纯度等级的产品可供选择。
5. 使用Neubauer细胞计数板进行手动细胞计数
- 用70%酒精擦拭血细胞计数板和盖玻片表面,进行准备。
- 混匀细胞悬液,取15 µL细胞悬液加入血细胞计数板的凹槽边缘(图3A),以填充计数板的第一个计数室。同样填充第二个计数室。细胞悬液将通过毛细作用被吸入计数室。
- 使用10倍物镜,在网格中央由平行线围成的1 mm2 区域内进行细胞计数(图3C、D)。为避免重复计数,仅计数覆盖上方和左侧边界线的细胞,不计数跨越右侧和下侧边界的细胞,每个200 µm2方格均按此规则进行。总计数范围应为100−200个细胞。对第二个计数室重复相同计数过程。
- 计算两次计数的平均值,并根据以下公式确定细胞密度:细胞密度(细胞/mL)= 平均细胞数(n1 + n2/2)× 104。
注意:细胞活力以活细胞占总细胞数的百分比表示。为测定细胞活力,在进行手动或自动细胞计数前,将细胞悬液与等体积的台盼蓝(0.4%)溶液混合。活细胞不会摄取染料,而死细胞则会被染成蓝色。
6. 冷冻保存 果蝇 细胞系
- 检查培养物的形态是否健康、生长状况及有无污染。从中对数期至对数期末期生长阶段收获培养物(步骤 3.3 或第 4 节)。对于许多 果蝇 细胞系中,其数量大约在 4 x 10 之间6 细胞/mL 至 8 × 10⁶ cells/mL
- 将全部细胞悬液转移至15 mL或50 mL锥形离心管中。在1,000 x g 5 分钟后弃去上清液。
- 将细胞沉淀重悬于一定体积的冻存液中(表 4) 以获得最终细胞密度至少为 4 x 10⁷ cells/mL
- 逐滴加入适量的冷冻保护剂二甲基亚砜(DMSO)至细胞悬液中,使终浓度为10%。轻轻混匀细胞悬液。
- 小心地将0.5 mL细胞悬液分装至预先标记的冻存管中(每管约含2 × 10⁶个细胞)7 细胞/瓶)。将安瓿放入装有异丙醇的冷冻容器中(图4A将冻存容器转移至-80 °C超低温冰箱中过夜,使冻存管温度以-1 °C/min的速率缓慢降至冰箱设定温度。
- 取出冻存的冻存管,迅速将其连接到小棒上(图4B)。将装有冻存管的提篮插入提筒中(图 4C)。或者,将冻存管放入预冷的冻存盒中(图 4D). 将冻存管储存于液氮的液相中2 冷冻机(图4E,F).
注意: 使用含有DMSO的冻存液时,室温下延迟最多30分钟不会对细胞造成不利影响。
结果
快速解冻冷冻的 Drosophila 细胞,并将其培养在能使细胞培养物重新进入生长期的细胞密度下,这一点非常重要。如果严格遵循细胞冻存和解冻的操作步骤,T-25 培养瓶中的细胞密度至少可达到 4 × 10⁶ 个细胞/mL。解冻后 1 至 2 小时,大多数 Drosophila 细胞系将开始贴附于培养表面。如果解冻后两小时内大多数细胞仍未贴壁,则建议在更换培养基前先将细胞继续孵育过夜。
传代培养的目的是使细胞保持在生长曲线中健康的指数生长期。传代培养的标准取决于是否可见微生物污染、细胞密度以及是否需要建立规律的维护计划。在冻存前,首先评估细胞的健康状况并确定不存在外源性污染物至关重要。大多数细菌和真菌污染仅通过肉眼观察即可轻易发现。污染的培养物可通过培养基浊度增加来识别。在显微镜下,污染物可能表现为细菌杆菌、球菌、出芽酵母细胞或丝状真菌菌丝。其他类型的污染源,例如非细胞病变性的支原体,无法通过肉眼检测,需通过基于PCR的检测方法进行常规筛查21。
细胞系的汇合度可通过肉眼观察确定(图1)。生长迅速的细胞系会较快达到汇合状态,需定期传代,此类细胞系可每周传代两次。相比之下,生长缓慢的细胞系至少每两周或更长时间传代一次。然而,细胞需每周更换新鲜培养基,以防止培养基耗尽,并稀释细胞代谢产生的废物。来源于不同组织来源的细胞系在形态(图2)、贴壁特性、培养基需求(表1)和倍增时间(表2)方面存在差异。表5、表6、表7 和 表8 列出了多种 Drosophila 细胞培养基的配方。
细胞计数可确保准确的接种密度以及可预测的传代培养流程。对于定量实验,细胞计数至关重要。细胞计数可通过血细胞计数板(图3A)或自动颗粒计数仪(图3B)进行。若使用自动计数仪,请遵循制造商的操作说明。使用血细胞计数板进行手动细胞计数经济且简便。需统计中间Neubauer方格内所包含的细胞数量,并据此计算细胞密度;例如,n = 214个细胞,对应的细胞密度为2.14 × 10⁶ cells/mL(图3D)。
收集两个100 mm培养皿的细胞悬液,每个培养皿含有10 mL细胞悬液,细胞浓度为4 × 10⁶ 个细胞/mL,将细胞重悬于2 mL冻存液中,使细胞密度达到4 × 10⁷ 个细胞/mL。每支冻存管中加入0.5 mL细胞悬液,含2 × 10⁷ 个细胞。按照第1部分解冻步骤操作后,可获得细胞浓度为4 × 10⁶ 个细胞/mL的培养物。
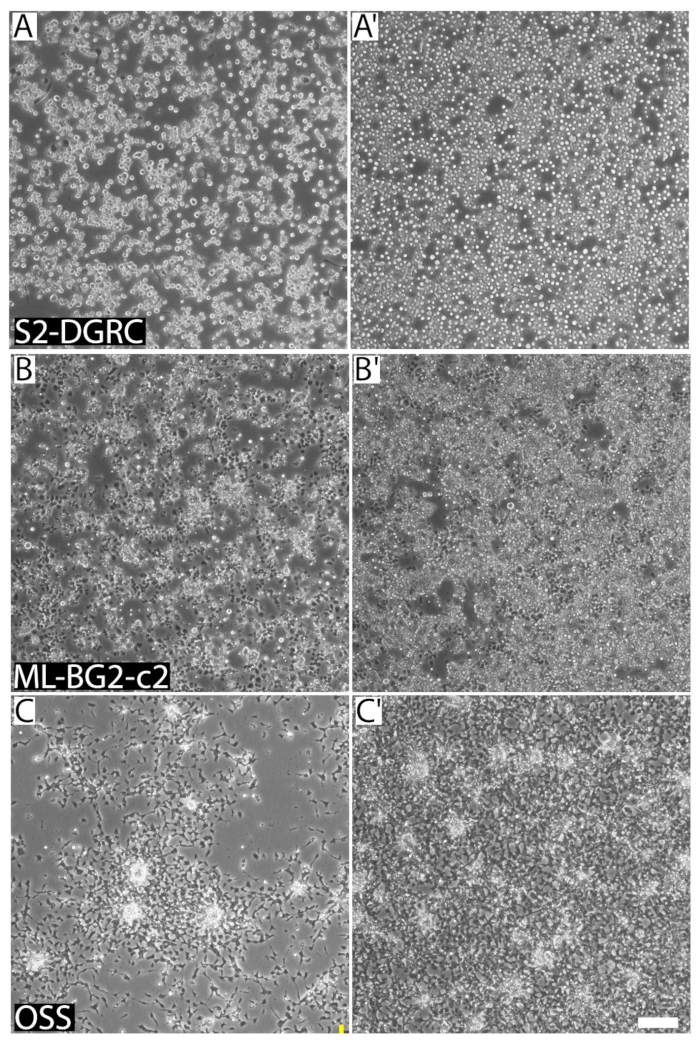
图1: 三种不同类型的代表性图像 果蝇 不同汇合度和细胞密度的细胞系。 (AS2-DGRC 细胞培养,密度为 1 × 10⁶ 细胞/mL6 细胞/mL。 (A'S2-DGRC 细胞培养于 4.5 x 10⁶ 细胞/mL。B) ML-BG2-c2 培养物,浓度为 2 x 10⁶ 细胞/mL。B') ML-BG2-c2 培养物,浓度为 8 x 10⁶ 细胞/mL,此时细胞正在堆积并聚集成集落。 (C) 1 × 10 的 OSS 培养6 细胞/毫升。 (C') 4 × 10 的 OSS 培养6 细胞/mL。悬浮细胞未在同一焦平面上捕获。比例尺 = 100 µm. 请点击此处以查看此图的放大版本。

图2:八种不同类型的代表性图像 果蝇 细胞系 (A圆形胚胎来源的 S2-DGRC。B球形胚胎来源的 Kc167。C) 来自幼虫中枢神经系统(CNS)的圆形ML-BG2-c2细胞。D) 圆形幼虫纺锤形 ML-BG3-c2。ECME L1 是一种源自幼虫腿部成虫盘的细胞系,体积较小,呈圆形/梭形形态。F) 卵巢来源的细胞系OSS呈纺锤形形态。G纺锤形RasV12 表达活化型Ras的细胞系。 (H) RasV12;wtsRNAi (WRR1),一种表达活化型Ras并靶向肿瘤抑制因子的双链RNA的细胞系 疣 (wts),呈现上皮特征。比例尺 = 50 µm. 请点击此处以查看此图的放大版本。
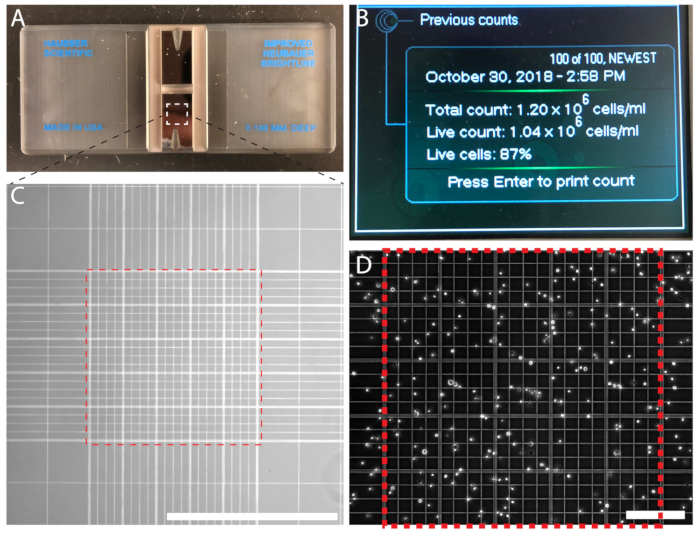
图3:细胞密度可通过血细胞计数板进行人工计数,或通过自动颗粒计数仪进行自动计数。(A)具有两个计数室的血细胞计数板。(B)自动细胞计数仪显示细胞计数结果。(C)在10倍物镜下观察改进的Neubauer细胞计数网格。计数由0.1 mm3中心网格(红色虚线方框)所包围的细胞。(D)血细胞计数板中心网格区域充满待计数细胞。比例尺 = 1 mm(C);0.2 mm(D)。请点击此处查看该图的放大版本。
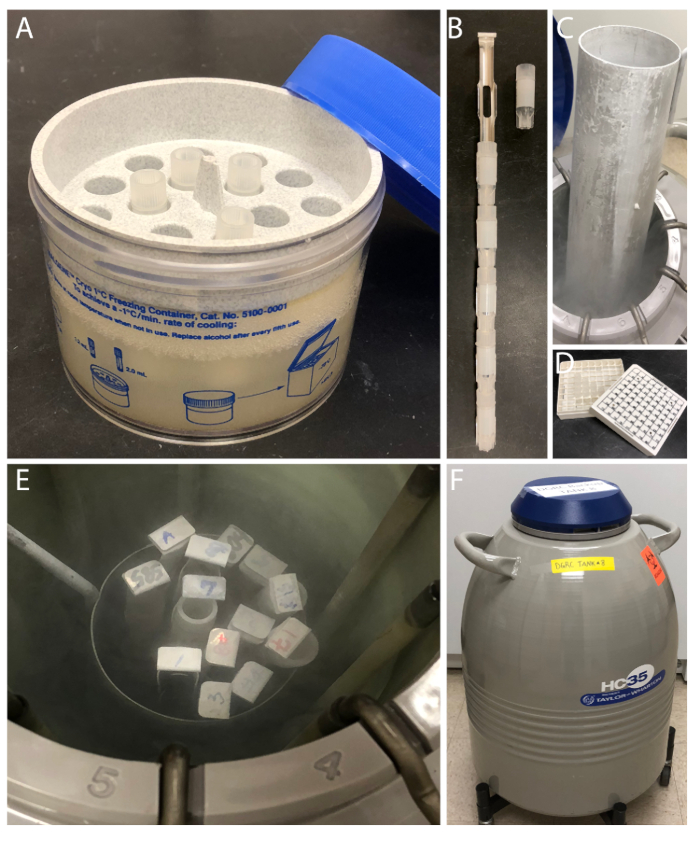
图4用于冷冻保存的设备 (A) 冻存容器用于将安瓿管直立放置,以实现缓慢冷冻。B用于夹持冷冻安瓿瓶的金属镊子。C用于存放手杖的容器。D) 塑料冻存盒(cryobox)。E) 一个容器,内装多根插入液氮中的手杖2 储液罐。F液氮2 储液罐 请点击此处以查看此图的放大版本。
| 细胞株 | 培养基 | 贴壁性 | 胰蛋白酶处理 |
| Schneider细胞系 | M3 + BPYE + 10% 胎牛血清 (FCS),pH 6.6 | 半贴壁 | 否 |
| (S2R+, S2-DRSC, S2-DGRC, Sg4)11 | |||
| Schneider’s 培养基+ + 10% FCS | |||
| Kc细胞系 (Kc167, Kc7E10)21,22 | M3 + BPYE + 5% FCS,pH 6.6 | 半贴壁 | 否 |
| Hyclone-CCM3,pH 6.2 | |||
| 幼体盘与中枢神经系统细胞系 (ML细胞系)13,14 | M3 + BPYE + 10% FCS,pH 6.6 | 半贴壁 | 否 |
| 10 µg/mL 胰岛素 | |||
| Milner幼体盘细胞系 (CME细胞系)15 | M3 + 2% FCS | 半贴壁 | 否 |
| 5 µg/mL 胰岛素 | |||
| 2.5% 果蝇提取物 | |||
| fGS/OSS16 | M3 + 10% FCS,pH 6.8 | 贴壁 | * |
| 10 µg/mL 胰岛素 | |||
| 1 mg/mL C5H8KNO4 | |||
| 0.5 mg/mL KHCO3 | |||
| 0.6 mg/mL 谷胱甘肽 | |||
| 10% 果蝇提取物 | |||
| RasV12细胞系18 | M3 + BPYE + 10% FCS,pH 6.6 | 贴壁 | 是 |
表1: 各种材料的特性及培养基需求 果蝇 细胞系 半贴壁型Schneider细胞系的不同分离株,包括S2R+、S2-果蝇RNAi筛选中心(DRSC)、S2-果蝇基因组资源中心(DGRC)和Sg4,均为常用细胞系,在添加10%胎牛血清(FCS)的M3培养基加Bactopetone酵母提取物(BPYE)中可 robustly 增殖。此外,Schneider培养基(pH 6.7–6.8)也常被用于替代M3+BPYE。Kc细胞系可在M3 + BPYE(含5% FCS)或无血清CCM3培养基中增殖。ML幼虫盘和中枢神经系统(CNS)细胞系的增殖需要胰岛素补充。Milner幼虫盘细胞系则需同时补充胰岛素和果蝇提取物。贴壁型fGS/OSS细胞系生长需要胰岛素、更高浓度的果蝇提取物以及谷胱甘肽。贴壁型RasV12 细胞系在 M3 + BPYE(含 10% FCS)培养基中生长良好。使用胰蛋白酶消化以使贴壁细胞系从生长表面脱落。
| 细胞系(货号) | 基因型 | 倍增时间(小时)* | 组织来源 |
| S2R+ (150) | OreR | 39 | 晚期胚胎 |
| S2-DGRC (6) | OreR | 23 | 晚期胚胎 |
| S2-DRSC (181) | OreR | 46 | 晚期胚胎 |
| Kc167 (1) | e/se | 22 | 6−12 小时胚胎 |
| ML-BG2-c2 (53) | y v f mal | 48 | 3rd 龄幼虫中枢神经系统 |
| ML-BG3-c2 (68) | y v f mal | 104 | 3rd 龄幼虫中枢神经系统 |
| ML-DmD8 (92) | y v f mal | 66 | 3rd 龄幼虫翅成虫盘 |
| CME W1 Cl.8+ (151) | OreR | 46 | 3rd 龄幼虫翅成虫盘 |
| CME L1 (156) | OreR | 47 | 3rd 龄幼虫腿成虫盘 |
| OSS (190) | bamD86 | 45 | 成虫 bam 突变体卵巢 |
| RasV12 细胞系 | UAS-GFP; P(UAS-Ras85D.V12)/ P(Act5C-GAL4)17bFO1 | 41−65 | 胚胎 |
表2: 基因型、倍增时间及常用细胞系的组织来源 果蝇 细胞系 常用细胞系的组织基因型、来源及群体倍增时间如下所示。倍增时间基于在推荐培养基中的生长情况得出 25 °C.
| 培养容器 | 培养基体积 (mL) |
| 12.5 cm2 T形瓶 | 2.5 |
| 25 cm2 T形瓶 | 5 |
| 75 cm2 T形瓶 | 15 |
| 35 mm 培养皿 | 1 |
| 60 mm 培养皿 | 4 |
| 100 mm 培养皿 | 10 |
| 384孔板* | 0.04/孔 |
| 96孔板* | 0.1/孔 |
| 48孔板* | 0.3/孔 |
| 24孔板* | 0.5/孔 |
| 12孔板 | 1.0/孔 |
| 6孔板 | 2.0/孔 |
表3:培养容器及推荐的培养基体积。 可提供多种规格的培养容器用于培养 Drosophila 细胞。每种容器均推荐相应的培养基体积(mL)。对于细胞悬液量少于0.5 mL的多孔板,建议使用石蜡膜密封,以减少因蒸发造成的培养基损失。
| 体积 | |
| M3 + BPYE,pH 6.6 | 70 mL |
| 热灭活 FCS | 20 mL |
| 无菌过滤的 DMSO* | 10 mL |
表4:冻存液(M3 + BPYE,20% FCS,10% DMSO)100 mL 配制配方。根据需要配制冻存液,避免长期储存含有DMSO的冻存液。
| M3 + BPYE 培养基 | 用量 |
| Shields 和 Sang 的 M323 | 1 瓶 |
| KHCO3 | 0.5 g |
| 酵母提取物(Select yeast extract) | 1.0 g |
| 蛋白胨(Bactopeptone) | 2.5 g |
| 无菌纯水 | 1000 mL |
表5:制备1 L M3 + BPYE组织培养基的配方。 将pH值调节至6.6。通过0.22 µm滤膜过滤对培养基进行灭菌。
| fGS/OSS 细胞系基础 M3 培养基 | 用量 |
| Shields and Sang M3 | 1 瓶 |
| KHCO3 | 0.5 g |
| C5H8KNO4 | 1.0 g |
| 无菌纯水 | 1,000 mL |
表6:1 L fGS/OSS M3基础培养基配方。将pH调至6.8。通过0.22 µm滤膜过滤培养基以实现灭菌。
| Hyclone-CCM3 | 用量 |
| CCM3 粉末 | 28.6 g |
| NaHCO3 | 0.35 g |
| 10 N NaOH | 2.5 mL |
| CaCl2 | 0.5 g |
| 无菌纯水 | 1,000 mL |
表7:1 L Hyclone-CCM3 组织培养基配方。 调节pH至6.2。使用0.22 µm滤膜过滤除菌。
| M3 + BPYE + 10% FCS | Miyake碟与CNS细胞系培养基 | Milner碟细胞系培养基 | fGS/OSS完全培养基 | |
| M3 + BPYE, pH 6.6 | 90 mL | 90 mL | - | - |
| 热灭活FCS* | 10 mL | 10 mL | 2 mL | 10 mL |
| 胰岛素 (10 mg/mL) | - | 100 µL | 50 µL | 100 µL |
| 果蝇提取物 | - | - | 2.5 mL | 10 mL |
| 谷胱甘肽 (60 mg/mL) | - | - | 1 mL | |
| M3, pH 6.6 | - | - | 97.5 mL | - |
| fGS/OSS M3, pH 6.8 | - | - | 79 mL |
表8:配制100 mL多种常用果蝇细胞培养基的配方。将FCS在56 °C孵育1小时,每5分钟摇动一次,以热灭活补体蛋白。
讨论
Drosophila 细胞培养物是基于细胞的高通量筛选的主要试剂。这些细胞培养物的应用还补充了体内遗传学研究,提供了适用于生物化学、转基因构建体在注射入果蝇前的快速测试、细胞生物学、显微镜观察,以及近年来通过基因组编辑实现的体细胞遗传操作的均一细胞群体1,2,3,8,9,10。
冷冻细胞的活力与复苏 果蝇 细胞即使在低温条件下也对剧烈的温度波动敏感。DGRC 将冷冻的细胞系储存在液氮的液相中。2 (-196 °C)中,并在干冰(-78.5 °C)中运输。经干冰运输的冷冻安瓿不应重新转移回液氮中2 或-80 °C冰箱中保存。相反,冻存的细胞在收到后应尽快解冻,并以高细胞密度重新接种(方案第1节),然后按预期目的进行培养(方案第3节)。如果细胞系不立即用于实验,则应将其冻存(方案第6节),待使用时再复苏。
某些细胞系,例如 ML-BG2-c2 和 Ras 细胞系,需要数天时间才能从冻存复苏后的状态中恢复。这些细胞系在解冻后的最初几天内会伴随大量细胞碎片。只要保持培养环境不受干扰,细胞将自行恢复并增殖。果蝇基因资源中心(DGRC)的许多 Drosophila 细胞系已适应在基于 M3 的培养基中生长22。对于解冻后恢复较慢的细胞系,使用条件培养基可能具有帮助。条件培养基中可能含有细胞分泌到培养基中的生长因子,有助于促进细胞在解冻后的恢复与增殖。
细胞系通常遵循典型的生长曲线,包括迟滞期、对数生长期、平台期和衰退期。许多黑腹果蝇(Drosophila)细胞系在25 °C下培养,且细胞密度维持在1 × 10⁶ 至 1 × 10⁷ 个细胞/mL时,会处于对数生长期并持续增殖。必须对细胞系进行传代培养,以确保其始终处于对数生长期。
融合度以百分比表示,描述的是细胞所覆盖的生长表面面积。细胞系的融合度取决于其细胞形态和大小。不同细胞系具有不同的形态特征和贴壁特性,因此,即使融合度大致相同,不同细胞系的细胞密度也可能存在显著差异。图1。细胞培养的汇合度可能不是传代的理想指标 果蝇 细胞培养因为 果蝇 细胞系在生长表面已被覆盖后,仍会以相互堆叠形成集落的方式或在悬浮状态下继续增殖(图1然而,对特定细胞系有经验的使用者通常会以汇合度作为传代培养时机的快速视觉参考。
虽然可以在 19−25 °C 的室温条件下培养 Drosophila 品系,但并不推荐,因为环境温度的波动可能会影响其增殖速率。建议使用专用的 25 °C 培养箱。Drosophila 细胞培养所用的培养箱无需提供 CO2 气体交换,因为 Drosophila 细胞培养基不依赖 CO2 进行缓冲。培养细胞时,培养箱内的湿度是不可忽视的重要因素,尤其是在培养板中进行细胞培养时。根据培养箱类型和工作环境的不同,可能需要在培养箱内放置一杯无菌水。为尽量减少培养基蒸发,建议使用封闭式 T 形瓶,或将培养板置于密封良好的塑料容器中后再放入培养箱。
制定传代培养的时间表非常重要 果蝇 细胞系。为了估算生长速率并监测培养的一致性,建议以均匀的几何倍数比例进行传代(传代比例为1:2、1:4、1:8)。例如,将一个汇合度为10 mL、密度为8 × 10⁶个细胞/mL的Kc167细胞培养皿6 细胞/mL 可按 1:8 的比例传代,以达到 1 x 10⁵ 细胞/mL 的接种密度6 个细胞/mL(将1.25 mL细胞悬液稀释至8.75 mL新鲜培养基中)。72小时后,Kc167细胞培养物预计增殖至8 × 10⁶个细胞/mL。6 细胞/mL,因其倍增时间为24小时。因此,传代比例的确定应便于每周最多传代两次的常规操作,确保细胞始终处于对数生长期。这样可建立规律的传代时间表,使细胞达到汇合的时间既不太短也不太长。如果达到汇合的时间过短,则应以较低的细胞密度(较高的传代比例)进行传代;反之,如果达到汇合的时间过长,则应以较高的细胞密度(较低的传代比例)进行传代。需要注意的是,大多数 果蝇 细胞系对低细胞密度非常敏感(<1 × 10⁵ 细胞/mL),在此密度下细胞几乎不增殖,并可能最终死亡。
Drosophila 细胞系在生长特性和形态上存在差异。因此,具有不同特性的细胞系可能需要采用不同的处理方法。大多数 Drosophila 细胞系为半贴壁型。在较低细胞密度时,它们对生长表面的贴附性较强;随着培养物趋于融合,细胞贴附性减弱,容易脱落。这种贴附性逐渐变化的特性使得大多数常用的 Drosophila 细胞系(如 Schneider 细胞系、Kc 细胞系、成虫盘细胞系和中枢神经系统细胞系)易于传代,当细胞密度较高时,操作者只需将培养基直接加入细胞单层表面,即可使细胞从生长表面脱落。而对于某些严格贴壁的细胞系,例如雌性生殖系干细胞/卵巢体膜细胞(fGS/OSS)和 Ras 细胞系,则必须用胰蛋白酶短时间孵育,以帮助细胞从生长表面脱离。
大多数 Drosophila 细胞系的培养基添加物包括胎牛血清(FCS)。某些特定细胞系还需要添加胰岛素和成年果蝇提取物(FEX)。FEX 含有对特定幼虫成虫盘细胞系和成年卵巢细胞系生长至关重要的未定义成分。DGRC 制备并提供来源于一周龄 Oregon-R-modENCODE 果蝇(RRID: BDSC_25211)的成年 FEX,规格为 2.5 mL 和 10 mL 分装。DGRC 还在其网站上提供了小规模制备 FEX 的说明 <https://dgrc.bio.indiana.edu/include/file/additions_to_medium.pdf>。然而,FEX 的制备过程耗时,且需要大量成年果蝇。
Drosophila 细胞系的冷冻保存可节省对非即时使用细胞系进行常规维护所需的时间和试剂。冷冻保存通过在含有二甲基亚砜(DMSO,一种冷冻保护剂)的培养基中,以缓慢降温速率(-1 °C/min)将细胞冷却至 -80 °C 来实现。缓慢降温步骤对于成功冷冻保存至关重要。将细胞安瓿置于装有异丙醇的冷冻容器中后,在 -80 °C 冰箱中可实现 -1 °C/min 的降温速率。从 25 °C 的室温开始,安瓿内温度降至 -80 °C 可能需要长达 2 小时。建议将安瓿在冷冻容器中过夜冷冻。
冷冻安瓿必须迅速转移至液氮的液相中进行长期保存。在室温下,冻存管的温度会以约10 °C/min的速度迅速回升,当温度高于-50 °C时,细胞活力将受到损害。23为保持转移过程迅速,应分批处理安瓿管,以尽量减少其暴露于室温环境。或者,在将冷冻冻存管转移至液氮前,可将其置于干冰中保存。2. 若无液氮,细胞可保存于 -80 °C 冰箱中,但长期存放存在显著退化的风险。
细胞密度对于成功冻存细胞系及其后续复苏至关重要。通常,一旦获得过量细胞,应立即冻存新细胞系以建立初始冻存(1−3 支安瓿管)。待细胞系进一步稳定培养后,应建立包含 10−20 支安瓿管的冷冻保藏库。随后将保藏库中的细胞冻存管解冻,检测其冻后细胞复苏率和活力,之后可用于实验或在冻存安瓿管数量少于五支时补充库存。最后,必须验证解冻后的细胞是否仍保留其亲本细胞系的特性,因为已知细胞系在传代过程中可能发生演化3,24。
总之,本文介绍了一种用于处理 果蝇 通过提供各类细胞系的基本信息、最佳实践以及细胞基本操作的音视频方案,为细胞培养提供基础支持 果蝇 细胞系。这一便捷的资源旨在帮助初学者顺利开展培养细胞的操作。 果蝇 细胞研究,并补充任何科研实验室现有的培训指南。
披露
作者无任何利益冲突需要披露。
致谢
感谢美国国立卫生研究院(资助编号:NIH P40OD010949)以及研究界对DGRC所整理的多种黑腹果蝇(D. melanogaster)DNA/载体/细胞资源的使用。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 100 mm 组织培养板 | Corning | 430167 | 传代培养 |
| 25 cm2 T-型培养瓶 | Corning | 430168 | 传代培养 |
| 35HC 液氮储存罐 | Taylor-Wharton | 35HCB-11M | 冷冻保存 |
| 自动细胞计数仪 | BIO-RAD | TC20 | 计数 |
| 蛋白胨 | BD BioSciences | 211677 | 培养基添加物 |
| 细胞计数板 | BIO-RAD | 145-0011 | 计数 |
| 1 mL 冻存管 | Greiner | 123263 | 冷冻保存 |
| DMSO | Sigma Aldrich | D5879 | 冷冻保存 |
| 冻存盒 | Nalgene | 5029-0909 | 冷冻保存 |
| 冻存容器 | Fisher Scientific | 15-350-50 | 冷冻保存 |
| 血细胞计数板 | Fisher Scientific | #0267110 | 计数 |
| 人胰岛素 | Millipore Sigma | I9278 | 培养基添加物 |
| Hyclone CCM3 培养基 | GE Healthcare Life Sciences | SH30061.03 | 培养基 |
| Hyclone 胎牛血清 | GE Healthcare Life Sciences | SH30070.03 | 培养基添加物 |
| L-谷氨酸钾盐一水合物 | Millipore Sigma | G1149 | 培养基添加物 |
| 还原型 L-谷胱甘肽 | Millipore Sigma | G6013 | 培养基添加物 |
| 碳酸氢钾 | Millipore Sigma | 237205 | 培养基添加物 |
| Select 酵母提取物 | Millipore Sigma | Y1000 | 培养基添加物 |
| Shields 和 Sang 的 M3 昆虫培养基 | Millipore Sigma | S8398 | 培养基 |
| 胰蛋白酶-EDTA(0.05 %),含酚红 | ThermoFisher Scientific | 25300054 | 传代培养 |
| 台盼蓝(0.4%) | BIO-RAD | 145-0013 | 计数 |
参考文献
- Baum, B., Cherbas, L. Drosophila: Methods and Protocols. Methods in Molecular Biology. Dahmann, C. 420, Humana Press. Ch. 25 391-424 (2008).
- Cherbas, L., Gong, L. Cell lines. Methods. 68 (1), 74-81 (2014).
- Luhur, A., Klueg, K. M., Zelhof, A. C. Generating and working with Drosophila cell cultures: Current challenges and opportunities. Wiley Interdisciplinary Reviews: Developmental Biology. , e339(2018).
- Franz, A., Brunner, E., Basler, K. Generation of genome-modified Drosophila cell lines using SwAP. Fly (Austin). 11 (4), 303-311 (2017).
- Housden, B. E., et al. Identification of potential drug targets for tuberous sclerosis complex by synthetic screens combining CRISPR-based knockouts with RNAi. Science Signaling. 8 (393), r9(2015).
- Kunzelmann, S., Bottcher, R., Schmidts, I., Forstemann, K. A Comprehensive Toolbox for Genome Editing in Cultured Drosophila melanogaster Cells. G3 (Bethesda). 6 (6), 1777-1785 (2016).
- Ishizu, H., Sumiyoshi, T., Siomi, M. C. Use of the CRISPR-Cas9 system for genome editing in cultured Drosophila ovarian somatic cells. Methods. 126, 186-192 (2017).
- Echalier, G. Drosophila Cells in Culture. , Academic Press. (1997).
- Echalier, G., Perrimon, N., Mohr, S. Drosophila cells in culture. 2nd edition. , Elsevier. (2017).
- Cherbas, L., Cherbas, P. Drosophila: A practical approach. Roberts, D. B. 10, 2nd, Oxford University Press. 319-346 (1998).
- Schneider, I. Cell lines derived from late embryonic stages of Drosophila melanogaster. Journal of Embryollgy and Experimental Morphology. 27 (2), 353-365 (1972).
- Echalier, G., Ohanessian, A. Isolement, en cultures in vitro, de lignees cellulaires diploides de Drosophila melanogaster. Comptes rendus de l'Académie des Sciences. 268, 1771-1773 (1969).
- Ui, K., et al. Newly established cell lines from Drosophila larval CNS express neural specific characteristics. In Vitro Cellular & Developmental Biology − Animal. 30A (4), 209-216 (1994).
- Ui, K., Ueda, R., Miyake, T. Cell lines from imaginal discs of Drosophila melanogaster. In Vitro Cellular & Developmental Biology. 23 (10), 707-711 (1987).
- Currie, D. A., Milner, M. J., Evans, C. W. The growth and differentiation in vitro of leg and wing imaginal disc cells from Drosophila melanogaster. Development. 102, 805-814 (1988).
- Niki, Y., Yamaguchi, T., Mahowald, A. P. Establishment of stable cell lines of Drosophila germ-line stem cells. Proceedings of the National Academy of Sciences of the United States of America. 103 (44), 16325-16330 (2006).
- Saito, K., et al. A regulatory circuit for piwi by the large Maf gene traffic jam in Drosophila. Nature. 461 (7268), 1296-1299 (2009).
- Simcox, A., et al. Efficient genetic method for establishing Drosophila cell lines unlocks the potential to create lines of specific genotypes. PLoS Genetics. 4 (8), e1000142(2008).
- Sumiyoshi, T., et al. Loss of l(3)mbt leads to acquisition of the ping-pong cycle in Drosophila ovarian somatic cells. Genes & Development. 30 (14), 1617-1622 (2016).
- Dequeant, M. L., et al. Discovery of progenitor cell signatures by time-series synexpression analysis during Drosophila embryonic cell immortalization. Proceedings of the National Academy of Sciences of the United States of America. 112 (42), 12974-12979 (2015).
- Young, L., Sung, J., Stacey, G., Masters, J. R. Detection of Mycoplasma in cell cultures. Nature Protocols. 5 (5), 929-934 (2010).
- Shields, G., Sang, J. H. Improved medium for culture of Drosophila embryonic cells. Drosophila Information Service. 52, 161(1977).
- Freshney, R. I., Capes-Davis, A., Gregory, C., Przyborski, S. Culture of animal cells : a manual of basic technique and specialized applications. Seventh edition. edn. , Wiley Blackwell. (2016).
- Lee, H., et al. DNA copy number evolution in Drosophila cell lines. Genome Biology. 15 (8), R70(2014).
重印与许可
标签
