我们介绍了一种利用未标注来源的太平洋牡蛎样本RNA的策略,并通过与公开的基因组数据进行比对来评估其遗传物质,从而构建一个虚拟测序的cDNA文库。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
参考物种的生物材料在以往的关键实验中(如新细胞系的建立或基因组测序项目)曾被广泛使用,但由于样本具有消耗性,这些材料往往难以再次提供用于后续研究或第三方使用。尽管太平洋牡蛎目前在亚洲、澳大利亚和北美洲的太平洋沿岸已广泛分布,但个体间的遗传差异较大,因此并不适合作为基因文库构建的起始材料。本文展示了利用从地区性海鲜市场获得的未标注来源的太平洋牡蛎样本构建cDNA文库的方法。随后,将这些文库与公开的牡蛎基因组进行比对,并利用线粒体参考基因细胞色素c氧化酶亚基I(COX1)和NADH脱氢酶(ND)筛选出亲缘关系最近的文库。此外,通过克隆并表达编码UDP-葡萄糖醛酸脱氢酶(UGD)和UDP-木糖合成酶(UXS)的两个基因,进一步验证了所构建cDNA文库的适用性,这两种酶负责由UDP-葡萄糖生物合成UDP-木糖的过程。
引言
获取活体参考生物材料可能因运输时间长、商业因素或特定国家的海关法规而面临挑战。作为替代方案,所需生物材料也可从表型相同的标本中采集。然而,这些样本在基因型水平上可能存在显著差异,因此由于新来源材料与现有DNA扩增方法不兼容,常导致与同物种数字化存储的参考基因组进行比较变得困难甚至无效。对个体样本中高度保守基因进行测序是一种广泛应用且有效的物种鉴定工具1,例如常用于cDNA文库质量评估的保守线粒体基因2,3,4,5,6。本文所提出方法的基本原理在于:若个体匿名牡蛎样本的线粒体基因序列与参考基因组相应序列高度保守,则鉴于线粒体DNA进化速率通常快于核DNA7,可推断其他基因也可能表现出较低的分歧度,从而仅需利用公开可用的测序数据作为参考,即可实现大量具有科学和工业价值基因的扩增与分离。
本文所述方法的总体目标是提供一种优化的工作流程,用于构建一个虚拟测序的牡蛎cDNA文库,该文库可作为克隆牡蛎基因的模板DNA。在虚拟测序中,无需进行从头基因组测序,而是直接利用已知的、数字化存储的参考序列,用于使用或设计引物以生成cDNA,这些cDNA最终将构成一个文库(或添加到已有的文库中)。目标是构建一个趋同的cDNA文库,即生成的cDNA序列与参考序列之间的相似性可按从低到高分歧度进行排序。使用细胞色素c氧化酶亚基1(Cytochrome C Oxidase subunit 1, COX1)和NADH脱氢酶(NADH Dehydrogenase, ND)作为参考基因的一个关键优势在于,由于这些线粒体基因高度保守,即使地理分布相距甚远的牡蛎样本也可进行分析。在利用这些已被广泛验证的分子标记验证该方法的有效性后,我们进一步展示了该方法在两个参与糖核苷酸生物合成且可能具有工业应用价值的酶候选基因上的应用8,9,10。太平洋牡蛎的生物技术潜力尚未被充分开发。因此,我们认为,这种用于构建虚拟测序cDNA文库的趋同方法,也适用于希望从这种重要生物材料中获取cDNA的非专业研究人员。
访问受限。请登录或开始试用以查看此内容。
方案
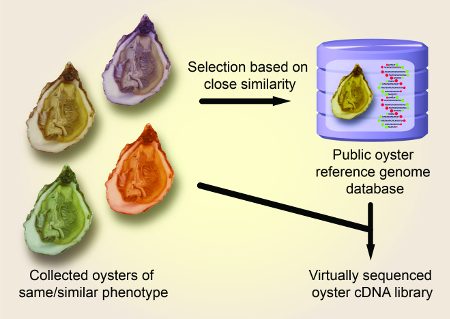
注意:示意图见图1。
1. 样品采集
- 获取牡蛎样本。在收获后、运输过程中以及实验室使用前,将牡蛎置于冰上保存,并在购买后4–7天内进行处理。
注:本实验所用牡蛎购自南京众彩批发市场(源自中国福建宁德和中国江苏连云港)、青岛海杰水产品公司(源自中国山东青岛)、烟台聚成水产品公司(源自中国山东烟台)和青岛锦绣水产品公司(源自中国山东青岛)。
2. 采用硫氰酸胍-酚法提取RNA
- 牡蛎组织样品的制备
- 使用灭菌解剖刀从每只牡蛎样本的大致几何中心切取约 100 mg 的均质软组织,并将样品转移至液氮中。
- 将牡蛎剩余部分在 -80 °C 冷冻 1 小时以实施安乐死,随后作为生物废弃物丢弃。
- 在装有 50 mL 液氮的研钵(200 mL)中将速冻的牡蛎组织研磨成细粉。
- 称取 75 mg 每个样本的冷冻组织置于无菌的 1.5 mL 离心管中,加入 1 mL 异硫氰酸胍-苯酚提取试剂。在 4 °C 下以 14,000 x g 离心 15 分钟。
- 将上清液转移至新的 1.5 mL 离心管中,加入 200 µL 氯仿,使用涡旋振荡器充分混匀 10–15 秒,直至混合物变为乳白色。
- 在 4 °C 下以 14,000 x g 离心 15 分钟,然后用 200 µL 移液器小心吸取上层水相,避免扰动中间相,转移至新的 1.5 mL 离心管中。
- 加入 500 µL 异丙醇,轻轻颠倒混匀样品,然后将样品置于冰上静置 20 分钟。在 4 °C 下以 14,000 x g 离心 8 分钟,弃去上清液。
- 将每份沉淀用 1 mL 75% 乙醇(EtOH)重悬,在 4 °C 下以 14,000 x g 离心 5 分钟,彻底去除上清液。
- 重复步骤 2.5 一次。在室温下干燥沉淀 6 分钟。切勿过度干燥,否则可能导致下一步中 RNA 沉淀难以溶解。
- 将干燥的 RNA 沉淀溶解于 25 µL 经焦碳酸二乙酯(DEPC)处理的水中,并将离心管置于冰上。RNA 样品应在 24 小时内使用。
3. 通过逆转录生成 cDNA 文库
- 针对每个RNA样本,使用市售的反转录系统,用10 µL移液器配制反应混合液:在300 µL的PCR管中加入4 µL MgCl2溶液、2 µL 10x反应缓冲液、2 µL dNTP溶液、0.5 µL RNase抑制剂、0.7 µL AMV反转录酶、0.5 µL Oligo(dT) 15引物、1 µL提取的RNA样本以及9.3 µL H2O。
- 将反应混合物置于PCR仪中,在42 °C孵育60分钟,随后升温至95 °C持续5分钟。
- 生成的cDNA文库可在-20 °C保存长达12个月。
4. 线粒体基因扩增与纯化
- 使用 10 µL 移液器配制 PCR 混合液。向一个 300 µL 的 PCR 管中加入 0.25 µL(1.25 U)高保真 DNA 聚合酶、2 µL dNTP 溶液(每种 dNTP 2.5 mM)、0.5 µL COX1 或 ND 正向引物(100 µM)、0.5 µL 对应的 COX1 或 ND 反向引物(100 µM)、1 µL cDNA 文库、5 µL 5x 缓冲液以及 16 µL 去离子 H2O。
- 按以下参数进行 PCR 扩增:首先在 95 °C 下变性 5 分钟,随后进行 35 个 PCR 循环,每个循环包括 55 °C 退火 30 秒、72 °C 延伸 2 分钟、95 °C 变性 30 秒,最后在 72 °C 下进行一次 5 分钟的最终延伸步骤。
- 取 5 µL PCR 产物通过琼脂糖凝胶电泳检测扩增产物的质量。观察扩增的 COX1 或 ND 基因是否分别在 759 或 748 个碱基对处呈现单一条带。
- 使用 PCR 纯化试剂盒对剩余的 PCR 产物进行纯化。
- 向样品中加入 100 µL 溶液“PCR-A”(DNA 结合缓冲液,含有高浓度的变性盐11),短暂涡旋混匀。
- 将纯化柱放入一个 2 mL 离心管中。用移液器将步骤 4.4.1 的反应混合物加入柱中,在室温下以 14,000 x g 离心 1 分钟。
- 弃去滤液,将柱重新放回 2 mL 离心管中,向柱中加入 700 µL 溶液“W2”,在室温下以 14,000 x g 离心 1 分钟(“W2”为洗涤液,含有高浓度乙醇,用于去除纯化柱中残留的变性盐)。
- 弃去滤液,将柱重新放回 2 mL 离心管中,向柱中加入 400 µL 溶液“W2”,在室温下以 14,000 x g 离心 1 分钟。
- 在金属浴中将 1 mL 去离子水预热至 65 °C。将柱转移至一个新的 1.5 mL 离心管中,将 25 µL 65 °C 预热的去离子水加至白色柱膜中心,室温静置 1 分钟使膜充分浸润。
- 在室温下以 14,000 x g 离心 1 分钟,随后弃去柱。
- 将纯化的 PCR 产物在 -20 °C 下保存,可稳定保存长达 12 个月。
5. 线粒体基因测序与比较
- 将步骤4.5中纯化的PCR样品送交进行Sanger测序,使用相应的COX1或ND正向引物作为测序引物。可选地,也可使用COX1或ND反向引物进行双向测序。
- 获取测序结果后,利用NCBI核苷酸BLAST在线工具(blast.ncbi.nlm.nih.gov),将测得序列与太平洋牡蛎参考菌株的基因组序列(NCBI分类学编号:29159)进行比对(图2 和 图3)。
6. 利用cDNA文库克隆MgUGD和MgUXS基因
- 使用MgUGD和MgUXS的特异性上下游引物,通过PCR扩增并纯化MgUGD和MgUXS基因,操作步骤参照4.1至4.4。
- 将2 µL消化缓冲液(10倍浓缩)和6 µL去离子水转移至1.5 mL离心管中。加入10 µL纯化的MgUGD或MgUXS PCR产物以及限制性内切酶Nde I和Xho I(各1 µL,20 U)。37 °C孵育3 h。
- 准备预消化的pET-30a载体:将500 ng pET-30a载体转移至一个新的1.5 mL离心管中,用去离子水补足体积至16 µL。加入2 µL限制性内切酶缓冲液(10倍浓缩液)以及限制性内切酶Nde I和Xho I(各1 µL,20 U)。
- 37 °C孵育混合物3小时后,加入1 µL碱性磷酸酶(1 U),于37 °C继续孵育1小时。将混合物转移至预热的金属浴中,75 °C加热10分钟以灭活碱性磷酸酶。
- 将4 µL消化后的MgUGD或MgUXS DNA产物转移至新的1.5 mL离心管中,加入4 µL消化后的pET-30a载体。加入1 µL连接缓冲液(10×)、1 µL T4 DNA连接酶(3 U),于22 °C孵育反应体系3 h。
- 转化 电转感受态 E. coli 使用连接产物通过电穿孔法转化Mach1感受态细胞。将转化后的细胞涂布于含有50 μg/mL卡那霉素的LB琼脂平板上。37 °C培养16小时。
- 使用质粒特异性的T7启动子和终止子引物,通过Sanger测序验证菌落中是否含有目标插入片段。从验证正确的细菌克隆中提取质粒。
7. MgUGD 和 MgUXS 的表达与活性检测
- 转化 E. coli BL21 (DE3) 感受态细胞 用含有 MgUGD 和 MgUXS 基因的质粒转化细胞,并将转化后的细胞涂布于含 50 μg/mL 卡那霉素的 LB 琼脂平板上。在 37 °C 下培养 16 小时。
- 在含有50 μg/mL卡那霉素的5 mL LB培养基中过夜培养单菌落。将菌液转接至400 mL LB培养基中,在37 °C、200 rpm条件下持续振荡培养,直至600 nm波长下的光密度(OD600) 吸光度达到约 0.5。
- 将孵育温度降至20 °C,加入400 µL异丙基-β-D-硫代半乳糖苷(浓度1 M)。诱导重组蛋白表达3小时。
- 通过离心在 4,500 x g 条件下收集细胞 g 4 °C下离心15分钟。将沉淀重悬于10 mL裂解缓冲液(100 mM NaCl,50 mM Tris/HCl,1% Triton X-100,1 mM苯甲基磺酰氟(PMSF),pH 8.0)中。
- 在4 °C条件下,通过超声处理20分钟(20 μm振幅,15秒开/关循环,共40个循环)裂解细胞。在4 °C下以14,000 x g 4°C 下孵育 20 分钟,收集上清液用于活性检测。
- 通过将2 µL细胞裂解液与2 µL UDP-葡萄糖(10 mM)、4 µL NAD在适宜缓冲体系中孵育,进行MgUGD活性测定+ (10 mM),4 µL MgCl₂2 (10 mM),2 µL Tris/HCl 缓冲液 (500 mM, pH 7.5),以及 6 µL 去离子水2在新的1.5 mL离心管中,37 °C孵育30分钟。
- 通过将2 µL细胞裂解液与2 µL UDP-葡萄糖醛酸(10 mM)、2 µL Tris/HCl缓冲液(500 mM,pH 7.5)以及14 µL去离子水混合孵育,进行MgUXS的活性测定2在新的1.5 mL离心管中于37 °C孵育30分钟。
- 通过向每个混合物中加入20 μL甲醇和40 μL氯仿,终止第7.5和7.6步的反应。样品混合物经涡旋振荡后,在14,000 x g 在 4 °C 下离心 6 分钟,并收集每根试管的上层水相。
- 使用基质辅助激光解吸电离飞行时间质谱法(MALDI-TOF质谱)在负离子模式下分析反应产物,质荷比(m/z)检测范围为500–700。取1 μL样品混合物与1 μL 2,5-二羟基苯甲酸基质溶液(1% w/V,溶于50%水-乙腈)混合。预期可检测到UDP-葡萄糖醛酸和UDP-木糖的m/z值分别为579和535。图4).
访问受限。请登录或开始试用以查看此内容。
结果
图1展示了由太平洋牡蛎个体衍生的汇聚式cDNA文库制备方法的示意图。图2显示了一种远缘相关牡蛎样本的COX1和ND基因序列,这些序列与参考材料的COX1和ND基因序列具有高度差异。图3显示了一种近缘相关牡蛎样本的COX1和ND基因序列,这些序列与参考材料的COX1和ND基因序列差异较小。图4展示了该cDNA文库在克隆工业相关基因MgUGD和MgUXS方面的成功应用。
访问受限。请登录或开始试用以查看此内容。
讨论
本方案通过将未收录样本的COX1和ND基因与公开的牡蛎DNA基因组数据库进行比对,实现对来自地区海鲜市场、表型相似的未收录牡蛎样本进行遗传学鉴定。该方法的意义在于其简便性,仅需一次PCR反应即可完成对虚拟cDNA文库的评估。从由各牡蛎RNA提取物经反转录生成的cDNA文库中,扩增出两个保守的线粒体基因COX1和ND。通过在液氮中直接研磨牡蛎组织,简化了RNA提取步骤(步骤2.1)。在对每个样本的COX1和ND基因进行测序后,序列比对结果显示,部分样本与参考菌株具有高度相似性。其中亲缘关系最近的样本在COX1和ND基因序列上均表现出完全一致。
该实验流程中最关键的步骤是RNA提取步骤;为了最大限度地减少RNA降解,必须缩短牡蛎组织采集与RNA提取之间的时间间隔。
近期成功克隆牡蛎UGE基因12,以及本文中克隆MgUGD和MgUXS基因13的实例,验证了所构建cDNA文库的实用性,使得无需使用简并引物等繁琐的克隆策略,即可克隆任意数量的...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作部分得到了中国国家自然科学基金(资助号 31471703、A0201300537 和 31671854 致 J.V. 和 L.L.,资助号 31470435 致 G.Y.)以及“千人计划”外专项目(资助号 JSB2014012 致 J.V.)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 化学试剂: | |||
| 1% Triton X-100 | Solarbio | 9002-93-1 | *可选用其他供应商 |
| 2,5-二羟基苯甲酸 | Alfa Aesar | 490-79-9 | *可选用其他供应商 |
| 乙腈 | Merck | 75-05-8 | *可选用其他供应商 |
| 分子生物学用琼脂糖 | Biowest Chemicals | 111860 | *可选用其他供应商 |
| 氨苄青霉素 | Solarbio | 69-52-3 | *可选用其他供应商 |
| 氯仿 | 上海凌峰 | 67-66-3 | *可选用其他供应商 |
| DEPC 处理水 | Thermo Scientific | R0601 | |
| 乙醇 | 广州金花达 | 64-17-5 | *可选用其他供应商 |
| 硫氰酸胍-苯酚试剂 | Invitrogen | 15596018 | TRIzol 试剂 |
| 咪唑 | Energy Chemical | 288-32-4 | *可选用其他供应商 |
| 异丙醇 | 南京化学试剂 | 67-63-0 | *可选用其他供应商 |
| 异丙基 β-D-硫代半乳糖吡喃糖苷 | Solarbio | 367-93-1 | *可选用其他供应商 |
| 卡那霉素 | Solarbio | 25389-94-0 | *可选用其他供应商 |
| LB 琼脂 | Thermo Fisher | 22700025 | *可选用其他供应商 |
| LB 肉汤 | Thermo Fisher | 10855021 | *可选用其他供应商 |
| 甲醇 | 广州金花达 | 67-56-1 | *可选用其他供应商 |
| MgCl2 六水合物 | 西陇化工 | 7791-18-6 | *可选用其他供应商 |
| NaCl | 西陇化工 | 7647-14-5 | *可选用其他供应商 |
| NAD+ | 笃力生物 | 53-84-9 | *可选用其他供应商 |
| 苯甲基磺酰氟 | 麦克林 | 329-98-6 | *可选用其他供应商 |
| Tris | Solarbio | 77-86-1 | *可选用其他供应商 |
| UDP-葡萄糖 | 芜湖诺为化学品 | 28053-08-9 | *可选用其他供应商 |
| UDP-葡萄糖醛酸 | SIGMA | 63700-19-6 | *可选用其他供应商 |
| 工具/仪器: | |||
| MALDI-TOF 质谱仪 | Bruker | Autoflex | *可选用其他供应商 |
| 金属块加热器 | 龙洋科学仪器 | Thermoshaker HB20 | *可选用其他供应商 |
| PCR 扩增仪 | Hema | 9600 | *可选用其他供应商 |
| 酶与试剂盒: | |||
| 10×连接缓冲液 | Thermo Scientific | B69 | *可选用其他供应商 |
| 5×PrimeSTAR 缓冲液 | Takara | 9158A | |
| 碱性磷酸酶 | ThermoFisher FastAP | EF0654 | *可选用其他供应商 |
| COX 正向引物 | Genscript | ATGTCAACAAATCATTTAGACATTG | |
| COX 反向引物 | Genscript | ACTTGACCAAAAACATAAGACATG | |
| Cutsmart 缓冲液 | NEB | B7204S | *可选用其他供应商 |
| dNTP 混合液 | Invitrogen | 18427088 | |
| MgUGD 正向引物 | Genscript | ACATATGACCCTGTCCAAGATCTGTTGT | |
| MgUGD 反向引物 | Genscript | ACTCGAGACTCTGTGAGGCGGTGGAG | |
| MgUXS 正向引物 | Genscript | CCATATGGCAGAATCCTCACAATCAC | |
| MgUXS 反向引物 | Genscript | ACTCGAGCACATTTTTGAATTTGCAGACGT | |
| ND 正向引物 | Genscript | ATGAGATGGCAATTATTTTTTAAT | |
| ND 反向引物 | Genscript | ATGTATTTTGGAAAAATCTCCAC | |
| PCR 纯化试剂盒 | AxyGen | AP-PCR-250 | *可选用其他供应商 |
| pET-30a(+) 载体 | Merck Millipore | 69909 |
参考文献
- Blaxter, M. L. The promise of a DNA taxonomy. Philosophical transactions of the Royal Society of London. Series B, Biological. 359 (1444), 669-679 (2004).
- Wen, J., et al. Species identification of dried shellfish (oyster, clam and mussel) products sold on the Chinese market. Food Control. 90, 199-204 (2018).
- Zhang, H., et al. Mitochondrial cob and cox1 genes and editing of the corresponding mRNAs in Dinophysis acuminata from Narragansett Bay, with special reference to the phylogenetic position of the genus Dinophysis. Applied and Environmental Microbiology. 74 (5), 1546-1554 (2007).
- Sell, J., Spirkovski, Z. Mitochondrial DNA differentiation between two forms of trout Salmo letnica, endemic to the Balkan Lake Ohrid, reflects their reproductive isolation. Molecular Ecology. 13, 3633-3644 (2004).
- Karadjian, G., et al. Highly rearranged mitochondrial genome in Nycteria parasites (Haemosporidia) from bats. Proceedings of the National Academy of Sciences of the United States of America. 113 (35), 9834-9839 (2018).
- Morga, B., et al. Identification of genes from flat oyster Ostrea edulis as suitable housekeeping genes for quantitative real time PCR. Fish and Shellfish Immunology. 29 (6), 937-945 (2010).
- Delsuc, F., et al. Molecular systematics of armadillos (Xenarthra, Dasypodidae): contribution of maximum likelihood and Bayesian analyses of mitochondrial and nuclear genes. Molecular Phylogenetics and Evolution. 28 (2), 261-265 (2005).
- Wei, S., et al. Discovery and Biochemical Characterization of UDP-Glucose Dehydrogenase from Akkermansia muciniphila. Protein & Peptide Letters. 24 (8), 735-741 (2017).
- Gu, B., et al. Discovery and Biochemical Characterization of the UDP-Xylose Biosynthesis Pathway in Sphaerobacter thermophilus. Protein & Peptide Letters. 23 (12), 1103-1110 (2016).
- Duan, X. C., et al. Functional characterization of the UDP-xylose biosynthesis pathway in Rhodothermus marinus. Applied Microbiology and Biotechnology. 99 (22), 9463-9472 (2015).
- Vogelstein, B., Gillespie, D. Preparative and analytical purification of DNA from agarose. Proceedings of the National Academy of Sciences of the United States of America. 76 (2), 615-619 (1979).
- Song, H. B., et al. UDP-glucose 4-epimerase and β-1,4-galactosyltransferase from the oyster Magallana gigas as valuable biocatalysts for the production of galactosylated products. International Journal of Molecular Sciences. 19 (6), 1600(2018).
- Gainey, P. A., Phelps, C. F. Uridine diphosphate glucuronic acid production and utilization in various tissues actively synthesizing glycosaminoglycans. Biochemical Journal. 128 (2), 215-227 (1972).
访问受限。请登录或开始试用以查看此内容。
重印与许可
