1类组蛋白去乙酰化酶(HDACs)如RpdA作为治疗真菌感染的潜在靶点日益受到关注。本文介绍了一种特异性富集TAP标签RpdA并结合HDAC活性检测的方法流程,该方法能够 体外 组蛋白去乙酰化酶抑制剂的功效检测
本文内容
摘要
摘要
像 RpdA 这样的 1 类组蛋白去乙酰化酶(HDACs)作为治疗真菌感染以及挖掘真菌次级代谢产物的潜在靶点,其重要性日益凸显。然而,抑制剂筛选需要获得纯化的酶活性。由于 1 类去乙酰化酶以多蛋白复合物的形式发挥功能,当其作为单一多肽在细菌中表达时通常无活性。因此,需要分离内源性的复合物,而采用离子交换和凝胶过滤色谱等传统技术进行分离时,过程往往繁琐且耗时。串联亲和纯化技术已被开发用于从细胞中富集多蛋白复合物,因此被证明是分离内源性酶的理想方法。本文提供了一种通过 C 末端 TAP 标签标记的 RpdA 从Aspergillus nidulans中单步富集活性 RpdA 复合物的详细实验方案。所获得的纯化复合物可用于后续基于去乙酰化酶活性检测的抑制剂筛选。该蛋白富集过程结合酶活性测定可在两天内完成。
引言
组蛋白去乙酰化酶(HDACs)是依赖锌的2+-依赖的水解酶,能够去除组蛋白及其他蛋白质赖氨酸残基上的乙酰基。根据序列相似性,HDACs 被分为多个类别1最近,真菌1类HDAC RpdA,即面包酵母(酿酒酵母(Saccharomyces cerevisiae)Rpd3p 被证明是机会性真菌病原体所必需的 Aspergillus fumigatus2因此,RpdA 已成为治疗真菌感染的潜在重要靶点2体外评估去乙酰化酶活性对于表征酶学特性至关重要,并可用于确定新型物质在抑制剂开发中的有效性。尽管已实现人源HDAC1的密码子优化版本的重组表达, 大肠杆菌 最近已有报道3,尝试在该宿主中表达全长RpdA均未成功4此外,由于丝状真菌中的1类组蛋白去乙酰化酶(如RpdA和HosA)以多蛋白复合物的形式发挥功能,因此在酶抑制剂研究中使用天然内源性复合物更为理想。然而,由于真菌裂解物中存在抑制因子以及多种不同的HDAC,从全蛋白提取物中测得的催化活性相对较低,且无法归因于特定的单个酶。此外,以往在丝状真菌中的研究 A. nidulans 鉴定出一类2型组蛋白去乙酰化酶HdaA是真菌提取物层析组分中的主要去乙酰化酶活性来源。因此,需要多个常规层析纯化步骤以从真菌菌株中分离非HdaA的去乙酰化酶活性4串联亲和纯化(TAP)策略的引入 A. nidulans5 显著简化了特定去乙酰化酶活性的富集。原始的TAP标签由两个蛋白A结构域和一个钙调蛋白结合肽(CBP)组成,二者之间由烟草蚀纹病毒蛋白酶(TEV)切割位点分隔。6这使得带有标签的蛋白质及其相互作用伙伴能够进行天然状态下的纯化和洗脱7在使用富集后的蛋白质进行活性测定实验时,TAP标签纯化的一个重要特征是在天然条件下通过蛋白酶切割实现温和洗脱。例如,GFP标签蛋白也可通过固定化抗体进行富集,但无法在天然条件下洗脱。
本文提供了一种通过单步富集活性RpdA复合物的详细方案,即对构巢曲霉(A. nidulans)中C端TAP标签RpdA进行第一步纯化(IgG分离和TEV酶切),随后应用组蛋白去乙酰化酶活性检测进行抑制剂筛选。研究表明,仅进行一步亲和富集已足够,且由于与单独IgG纯化相比,两步TAP纯化后酶活性显著降低,因此将亲和富集限制在单一纯化步骤。
然而,所介绍的实验方案应 也可适用于富集其他参与染色质调控的带标签酶,如乙酰转移酶、甲基转移酶和去甲基化酶。通过添加TAP方案的第二步纯化,与带标签诱饵共同纯化的蛋白质可被视为(新)酶复合物的复合物组分。
方案
1. 构巢曲霉(A. nidulans)的培养
- 接种体制备
注意:除培养步骤外,所有操作均应在超净工作台内进行。- 从甘油保存液(-80 °C)中取出TAP菌株(例如 TIB32.12),划线接种于含葡萄糖/木糖的最低培养基(GXMM;每升:10.0 g 葡萄糖,0.5 g 木糖,10 mL 1 M 硫酸二铵溶液,20 mL 50 × 盐溶液 [每升:26.0 g KCl,26.0 g MgSO4 · 7 H2O,76.0 g KH2PO4,1 mL 氯仿],1 mL 1,000 × Hutner微量元素溶液8),添加1.5%(w/v)琼脂及Todd 等 20079所述的必要补充物。于37 °C培养2–3天。
注意:TIB32.1含有由木糖诱导型启动子xylP(p)10控制的rpdA::TAP融合基因,因此上述配方中需加入木糖。当培养表达非由xylP(p)调控的构建体的菌株时,应省略木糖。 - 准备一个无菌的1.5 mL离心管,加入1.5 mL无菌分生孢子悬浮液(CSS;0.9%(w/v)NaCl,0.01%(v/v)聚山梨酯80)。
- 将一次性接种环浸入CSS中润湿,从步骤1.1.1的平板上刮取分生孢子,并悬浮于步骤1.1.2的离心管中。
- 将分生孢子悬浮液各150 µL分别转移至十个带有通气盖、装有含补充物及200 µL CSS的GXMM琼脂的25 cm2细胞培养瓶中。
- 使用无菌接种环在培养瓶内均匀涂布分生孢子悬浮液,并于37 °C培养2–3天。
- 收集分生孢子时,每瓶使用10 mL CSS。将溶液倒入培养瓶中,用配套的螺旋盖紧密封闭后剧烈振荡。
- 润湿菌体表面后,用无菌接种环彻底刮下残留的分生孢子。
- 将分生孢子悬液通过置于无菌50 mL离心管上的40 µm细胞滤筛过滤,并将五个培养瓶的悬液收集至同一管中。
- 以1,000 × g离心10分钟。
- 弃去上清液,每管沉淀用10 mL CSS重悬。
- 将两份悬液合并至同一管中,用40 mL CSS冲洗空管后加入合并悬液,并按步骤1.1.9所述条件离心。
- 弃去上清液,用4 mL CSS重悬分生孢子沉淀。
- 对分生孢子悬液进行连续两次1:50稀释,使用血球计数板测定最终1:2,500稀释悬液中的分生孢子数量,方法如文献所述11。
- 从甘油保存液(-80 °C)中取出TAP菌株(例如 TIB32.12),划线接种于含葡萄糖/木糖的最低培养基(GXMM;每升:10.0 g 葡萄糖,0.5 g 木糖,10 mL 1 M 硫酸二铵溶液,20 mL 50 × 盐溶液 [每升:26.0 g KCl,26.0 g MgSO4 · 7 H2O,76.0 g KH2PO4,1 mL 氯仿],1 mL 1,000 × Hutner微量元素溶液8),添加1.5%(w/v)琼脂及Todd 等 20079所述的必要补充物。于37 °C培养2–3天。
- 菌丝体的培养与收获
- 在超净工作台内操作,向4–6个锥形瓶(每个容量1升,内含250 mL GXMM)中加入适当补充物,按每毫升5 × 10⁶个分生孢子的密度接种,并于37 °C、180 rpm条件下振荡培养14–16小时。
- 将纱布置于漏斗中并架在烧瓶上方,过滤菌丝体,并用去离子水短暂冲洗。
- 用手挤压纱布中的菌丝体以尽可能去除水分,随后再用纸巾进一步吸干。
- 将干燥后的菌丝体以扁平片状转移至带螺旋盖的塑料烧杯中,用液氮速冻。此步骤可确保后续冻干过程中具有较高的表面积/体积比。
- 在冻干前将冷冻菌丝体保存于-80 °C。
注意:本方案可在此处暂停。 - 将菌丝体过夜冻干。
- 当菌丝体温度保持恒定时(18–24小时)停止冻干过程。取出烧杯并立即用配套螺旋盖密封。
注意:若密封良好,冻干菌丝体可在室温下保存数周。
2. TAP标签HDAC的单步富集(改编自Bayram 等,2012)12
- 缓冲液和溶液的制备
注意:在使用前立即向缓冲液中添加2-巯基乙醇(EtSH)和蛋白酶抑制剂。所有用于层析的缓冲液均需通过0.22 µm硝酸纤维素膜过滤,以避免将杂质/污染物引入层析树脂。以下步骤中的说明均指每种缓冲液制备1 L。将缓冲液储存于4 °C。- 提取缓冲液(B250):250 mM NaCl,100 mM Tris-HCl pH 7.5(室温),0.1%(v/v)TX-100,5 mM EtSH。
- 将12.35 g Tris-HCl、2.62 g Tris(游离碱)和13.2 g NaCl溶解于800 mL去离子水中,并加入10 mL 10%(v/v)TX-100溶液。
- 在室温下检测pH值,必要时用NaOH或HCl [5 M]调节至pH 7.5。
- 定容至1 L,并通过0.22 µm硝酸纤维素膜过滤。
- 使用前每100 mL缓冲液中立即加入35 µL EtSH(终浓度为5 mM)。
- 洗涤缓冲液250(WB250):250 mM NaCl,40 mM Tris-HCl pH 8.0(室温),0.1%(v/v)TX-100,5 mM EtSH。
- 按B250(2.1.1)所述方法制备WB250,但使用3.59 g Tris-HCl和2.08 g Tris(游离碱)。
- 洗涤缓冲液150(WB150):150 mM NaCl,40 mM Tris-HCl pH 8.0(室温),0.1%(v/v)TX-100,5 mM EtSH。
- 按B250(2.1.1)所述方法制备WB150,但使用3.59 g Tris-HCl、2.08 g Tris(游离碱)和8.77 g NaCl。
- TEV平衡缓冲液(TEB):150 mM NaCl,40 mM Tris-HCl pH 8.0(室温),0.5 mM EDTA,0.1%(v/v)TX-100,5 mM EtSH。
- 与WB150相同,但添加EDTA至终浓度0.5 mM。
- TEV切割缓冲液(TCB):150 mM NaCl,40 mM Tris-HCl pH 8.0(室温),0.5 mM EDTA,0.1%(v/v)TX-100,10%(v/v)甘油,5 mM EtSH。
- 按步骤2.1.1所述方法制备,使用3.59 g Tris-HCl、2.08 g Tris(游离碱)和8.77 g NaCl,并在定容至1 L前加入100 mL甘油。
- 50 × 蛋白酶抑制剂混合液:将1片市售蛋白酶抑制剂混合片剂溶于1 mL水中,于-20 °C保存。
- TBS-T:50 mM Tris-HCl pH 7.6(室温),0.9%(w/v)NaCl,0.1%(v/v)聚山梨酯20。
- 按步骤2.1.1所述方法制备。使用6.06 g Tris-HCl、1.40 g Tris(游离碱)、9 g NaCl和1 mL聚山梨酯20。
- 5 × LSB(Laemmli样品缓冲液):315 mM Tris-HCl pH 6.8(室温),25%(v/v)EtSH,50%(v/v)甘油,10%(w/v)SDS,0.05%(w/v)溴酚蓝。
- 提取缓冲液(B250):250 mM NaCl,100 mM Tris-HCl pH 7.5(室温),0.1%(v/v)TX-100,5 mM EtSH。
- 蛋白提取物的制备
- 将1.5 g冻干菌丝体和一个研磨球加入球磨机的研磨罐中。
注意:也可使用新鲜菌丝体。若使用新鲜菌丝体,请在冷冻前尽可能彻底干燥,并确保在液氮中预冷研磨罐以用于研磨新鲜菌丝体。 - 以25 Hz频率将菌丝体研磨成粉末,持续30秒。
注意:若无研磨设备,可使用研钵和研杵将菌丝体研磨成粉末,方法见Bayram et al.12。 - 将菌丝体粉末转移至15 mL离心管中。
- 倾斜离心管(含研磨后的菌丝体),以便后续与缓冲液混合。
- 每克菌丝体粉末加入6 mL冰浴B250缓冲液(含1 ×蛋白酶抑制剂混合液),用小刮勺搅拌直至粗提物完全均质化。若使用新鲜菌丝体,请参考Bayram et al.12以获得合适的生物量与提取缓冲液体积比。
- 将离心管置于冰上静置5分钟。
- 将离心管与配平管放入离心机,在4 °C下以40,000 × g离心≥20分钟。在离心过程中进行IgG树脂的平衡(步骤2.3)。
- 离心后,取10 µL上清液用于SDS-PAGE分析。将样品放入含40 µL水和12.5 µL 5 × LSB的1.5 mL离心管中;在图1中标记为“Ex”。
- 使用移液管小心吸取上清液(澄清裂解液),转移至含有已平衡IgG珠的层析柱中,并用配套的端盖紧密封闭。
- 将1.5 g冻干菌丝体和一个研磨球加入球磨机的研磨罐中。
- IgG树脂的平衡(在步骤2.2.7期间进行)
- 准备一个10 mL一次性层析柱,用移液器将300 µL充分重悬的IgG树脂(50%悬液)加入柱中。用B250加满至10 mL,让缓冲液依靠重力流过。
- 加入1 mL含1 ×蛋白酶抑制剂混合液的B250,让其流过。封闭柱底。
- TAP标签HDAC的批次纯化
- 将含有已平衡珠的层析柱与步骤2.2.9所得的澄清裂解液在4 °C下以10 rpm于旋转混合器上孵育2–4小时。
- 批次结合完成后,取下端盖并打开柱底以收集穿流液。
- 按步骤2.2.8所述取样进行SDS-PAGE分析;在图1中标记为“FT”。
- 用10 mL WB250洗涤珠子。首先用1 mL缓冲液将柱盖中滞留的珠子洗下,用移液器将此悬液一次性转移至已沉降的树脂上,以使珠子重悬。然后加满柱子,用堆叠盖封闭并连接至蠕动泵。调节流速约为1–5 mL/min。防止树脂干涸。
- 重复步骤2.4.4共三次,总计用WB250洗涤四次。
- 按步骤2.4.4所述方法,用TEB洗涤珠子三次,每次10 mL。
- 封闭层析柱底部,将IgG珠重悬于1 mL TCB中,并加入20 µL 50 ×蛋白酶抑制剂混合液以及10 µL TEV蛋白酶(约1 mg/mL储存液,S219V突变体,实验室自制)。
- 盖紧柱子,在4 °C下以10 rpm于旋转混合器上孵育过夜,以洗脱通过标签HDAC结合的蛋白复合物。
注意:也可在较高温度(16–25 °C)下进行TEV消化,可缩短反应时间,但会增加蛋白降解的风险。 - 次日打开柱子,将洗脱液收集至2 mL离心管中。用0.7 mL TCB将珠子从柱盖上洗下,并冲洗柱壁。
- 将柱子置于上一步的开口2 mL离心管上,该离心管本身置于50 mL离心管内。
- 将此装置放入台式离心机,以300 × g离心2分钟。此即TEV洗脱液。
注意:若进行串联亲和纯化,可将TEV洗脱液作为钙调蛋白亲和步骤的输入。也可将TEV洗脱液分装,一部分用于HDAC活性测定,另一部分用于完成TAP纯化。 - 从TEV洗脱液中取出50 µL,加入12.5 µL 5 × LSB用于SDS-PAGE(在图1和图2中标记为“TE”),其余洗脱液保持在冰上。
- 为评估蛋白酶洗脱效率,加入2 mL 5%(v/v)乙酸,在室温下孵育5分钟。再次使用前1 mL缓冲液重悬树脂。
- 收集酸性洗脱液,再次取50 µL样品并加入12.5 µL 5 × LSB(在图1中标记为“AE”)。当LSB加入酸性溶液时会变为黄色。为中和酸,逐次加入1 µL 10 M NaOH并充分混匀,直至颜色恢复蓝色。
- 用TBS-T重新平衡IgG树脂以中和酸。将树脂储存于含20%(v/v)乙醇的TBS-T中,于4 °C保存,可重复用于同一种标签蛋白的纯化。
- 洗脱组分的储存
- 将洗脱液分装为约100 µL的等份,以避免多次冻融循环。
- 在液氮中速冻分装样品,并于-80 °C保存。
注意:以此方式储存的样品可稳定数月而不损失酶活性。
3. 通过SDS-PAGE和蛋白质印迹法分析纯化效果
- 采用标准方案制备SDS-聚丙烯酰胺凝胶,或使用预制胶13。将前一步骤中的凝胶样品在95 °C下变性5分钟,于≥15,000 × g离心5分钟,上样至12%凝胶中。推荐上样体积见图1图注。在1 × Tris-甘氨酸SDS-PAGE电泳缓冲液中,以180 V恒压电泳60–70分钟,直至SDS-PAGE上样缓冲液中的溴酚蓝指示剂开始从凝胶中迁移出。
- 采用标准的凝胶银染染色方案。例如,可使用Blum et al. 198714报道的方案,该方案也适用于质谱分析。
- 采用标准的蛋白质印迹(Western blotting)方案15。在下文代表性结果的实验中,使用了 commercially available blotting system(商用转印系统)。
- 在含5%(w/v)脱脂奶粉的TBS-T缓冲液中,使用 commercially available anti-calmodulin binding protein(抗钙调蛋白结合蛋白,anti-CBP)抗体于4 °C孵育印迹膜过夜。
注意:anti-CBP抗体靶向的是TEV蛋白酶切割后仍保留在TAP标签中的部分序列。 - 采用标准方案进行印迹膜的检测与显色。例如,在下文代表性结果的实验中,使用了anti-rabbit IgG-碱性磷酸酶偶联物及BCIP/NBT显色底物进行显色。
4. 使用体外[3H]乙酸盐标记的鸡网织红细胞组蛋白进行去乙酰化酶活性检测(改编自 Trojer et al. 2003)4
- 参见 Kölle 等 1998年的实验方案16,以制备[3H]乙酸盐标记的鸡网织红细胞组蛋白。
- 每种检测条件设置三个1.5 mL离心管,置于冰上,用于三重复测量。另准备三根仅含缓冲液的背景对照管。
- 向每根管中加入25 µL WB150,并加入25 µL步骤2.4.11中的TEV洗脱液,保持在冰上。
- 将温育仪预热至25 °C。
- 以15秒为间隔(使用秒表),向每根管中加入10 µL标记组蛋白[1.5 mg/mL]。
- 开始检测前,吸取10 µL [3H]乙酸盐标记的鸡组蛋白,并启动秒表。
- 启动5秒后,加入标记组蛋白,迅速盖紧管盖,涡旋混匀,然后放入温育仪中。
- 继续以15秒为间隔加入10 µL标记组蛋白,并按前一步骤所述操作进行。
- 温育60分钟后,以15秒为间隔向每根管中加入50 µL终止液(1 M HCl/0.4 M乙酸),立即涡旋混匀。加入酸性溶液后,反应混合物稳定,可在室温下保存至下一步操作。
- 向每根管中加入800 µL乙酸乙酯,用于萃取释放的[3H]乙酸。
- 盖紧管盖,每根管涡旋5秒。
- 将管子放入微量离心机,于室温下以10,000 × g 离心10分钟。
- 在此期间,为每个检测样品准备一个闪烁计数瓶,并加入3 mL适用于疏水性样品的闪烁液。
- 离心完成后(步骤2.12),小心转移600 µL上层有机相至已准备好的闪烁计数瓶中,并盖紧瓶盖。
- 使用液体闪烁计数器测定与HDAC活性相对应的放射性。
结果
所示的 RpdA 单步富集的典型结果如图1所示(记为“IgG”)。为完整起见,我们还展示了通过钙调蛋白树脂(“CaM”)进行第二步纯化的穿流组分和洗脱组分(“CFT”和“CE”),如文献12所述。所示的银染凝胶(A)清晰地展示了第一步亲和纯化的高效性,而在进行串联纯化时效率进一步提高。然而,在TEV洗脱组分(TE)中,蛋白提取物和穿流组分中最为丰富的蛋白已基本被去除。需要注意的是,TEV洗脱组分相对于提取物和穿流组分已被浓缩 >100 倍。星号标记的是带标签的RpdA(参见图B)。包含CBP标签的RpdA(RpdA::CBP)的理论分子量为82 kDa,但该蛋白在凝胶中的表观分子量明显更高,约为120 kDa。这一现象此前已有报道,可归因于其C末端的特定性质4,17。免疫印迹(B)显示,在TEV洗脱组分(“TE”)、钙调蛋白穿流组分(“CFT”)和洗脱组分(“CE”)中,均有强信号条带迁移至约120 kDa位置,对应于CBP标记的全长RpdA(RpdA::CBP)。在酸性洗脱组分(“AE”)中可见第二个分子量略大的信号条带。该条带代表与IgG树脂结合但未被TEV蛋白酶切割释放的TAP标记RpdA。其分子量差异对应于未切割的RpdA::TAP中蛋白A重复序列的16 kDa部分。如预期,在野生型对照组分中(图B,“wild type”),抗CBP抗体未检测到任何条带。
使用特异性HDAC抑制剂曲古抑菌素A(TSA)进行代表性去乙酰化酶活性测定的结果如图2所示。该检测方法最初为植物开发18,并已用于针对哺乳动物去乙酰化酶的抑制剂筛选19,20。实验所用组蛋白的标记与制备方法如前所述16。图中展示了TSA浓度递增对富集的RpdA复合物(“TE ± TSA”)催化活性的影响。活性的敏感性证实所测得的cpm值确实来源于RpdA,而非非特异性蛋白酶活性所致。这一观察结果非常重要,表明尽管TEV蛋白酶浓度相对较高,其存在并不会干扰HDAC活性检测。为将所测HDAC活性归因于RpdA,实验中使用了野生型菌株作为阴性对照(“Co”)。正如预期,野生型菌株TEV洗脱液中仅检测到极低水平的HDAC活性(约为RpdA富集组分的5–10%)。有趣的是,与TEV洗脱液相比,在第二次亲和纯化步骤后(“CE”),HDAC活性显著降低。
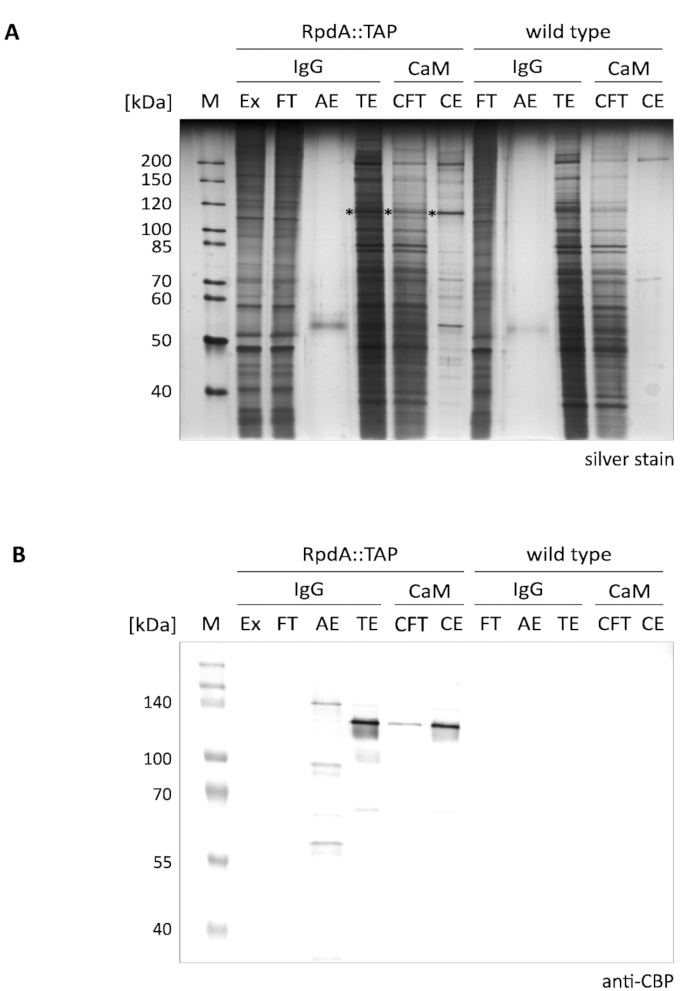
图1. TAP标签RpdA的串联亲和纯化。 显示了一块10% SDS-聚丙烯酰胺凝胶的银染结果(A)以及使用抗CBP抗体探测的蛋白质印迹结果(B)。泳道标记及上样体积如下:“M”:2 µL 1:10稀释的未染色蛋白标记物(用于银染),3.5 µL预染蛋白标记物(用于蛋白质印迹);“Ex”:按步骤2.2.8制备的蛋白提取物样品(1:10稀释液2 µL,5 µL);“FT”:按步骤2.4.3制备的IgG树脂穿流样品(1:10稀释液2 µL,5 µL);“AE”:步骤2.4.14的酸洗脱组分(10 µL,10 µL);“TE”:经TEV蛋白酶过夜切割后得到的TEV洗脱组分(步骤2.4.12,10 µL,10 µL);“CFT”:钙调蛋白穿流组分(20 µL,20 µL);“CE”:钙调蛋白洗脱组分(10 µL,10 µL)。所选蛋白标记物的大小标注在图左侧。括号中给出的体积分别对应银染和蛋白质印迹的上样量。银染凝胶中的星号表示RpdA融合蛋白。免疫印迹(B)使用BCIP/NBT显色系统通过碱性磷酸酶进行检测。请点击此处查看该图的放大版本。
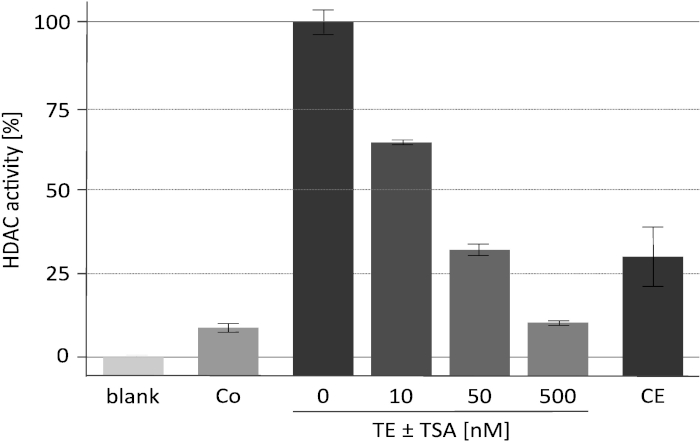
图2. 在三羟基苯甲酸羟肟酸(trichostatin A)浓度递增条件下的HDAC活性检测。 使用25 µL亲和纯化的重组RpdA(“TE”)和25 µL浓度分别为0、10、50和500 nM的HDAC抑制剂TSA(溶于RPMI-1640培养基中)检测RpdA抑制效果。使用RPMI评估背景活性(“空白”)。结果显示经过第二次钙调蛋白亲和步骤后的最终洗脱液(“CE”)以及在第一次亲和纯化步骤后未带标签菌株(阴性对照,“Co”)的活性。活性以不含TSA时富集RpdA的活性为100%进行表示(“TE”)。误差线表示三次重复实验的标准差。该图改编自Bauer et al. 20162。请点击此处查看该图的放大版本。
讨论
本方案描述了一步法富集丝状真菌A. nidulans中TAP标签化的I类HDAC,以评估其体外去乙酰化酶活性。TAP标签最初在酿酒酵母中引入,用于鉴定标签蛋白的蛋白质-蛋白质相互作用伙伴6。随后,该标签针对A. nidulans5进行了密码子优化。本文提供了一个简单明了的分步操作流程,用于实施TAP策略中的第一步亲和纯化,以实现I类HDAC RpdA的一步法富集。第二步亲和纯化可显著提高纯度,这对于鉴定诱饵蛋白相互作用蛋白尤为重要。然而,后续的活性检测仅推荐使用第一步纯化产物,因为通过野生型菌株的对照实验已证实第一步纯化后无明显污染。此外,与完整的TAP两步法相比,一步法富集后洗脱的酶活性显著更高。除RpdA2外,本方案也已成功用于纯化A. nidulans中另一I类HDAC HosA的复合物21。
由于我们观察到真菌I类HDACs能够形成稳定的复合物4,因此成功改进了Bayram et al. 201212报道的实验方案,该方案是本方法的基础。然而,必须指出一些关键步骤。制备高浓度的蛋白提取物以维持接近生理条件,对保持复合物的稳定性至关重要。因此,必须严格遵循生物质与提取缓冲液体积比的相关建议。此外,使用充分研磨的细菌丝粉末对于实现有效提取也十分关键,使用研磨仪在此过程中具有明显优势。如实验方案部分所述,建议在室温下尝试TEV蛋白酶切步骤1–2小时,以加快纯化速度。该条件已用于RpdA的纯化,未观察到对复合物稳定性产生不利影响(未发表数据,Bauer I, 2018)。此外,用TX-100替代原方案中使用的NP40可能并不适用于其他蛋白复合物。当使用本方法纯化其他TAP标签蛋白时,还应参考Bayram的实验方案,其中包含多项有价值的提示,有助于实现其他蛋白复合物的有效纯化12。
除了本文所述的TAP方法外,其他亲和标签和技术也常用于丝状真菌蛋白的单步富集,包括His标签和GFP标签。然而,由于Ⅰ类组蛋白去乙酰化酶(HDACs)通常以高分子量复合物形式发挥功能,因此必须采用天然洗脱条件,才能实现对具有催化活性的HDACs的有效富集。值得注意的是,许多其他亲和纯化方法是在不利条件下进行的。例如,基于抗原-抗体相互作用的GFP-trap法因采用酸性洗脱条件,会干扰结合在树脂上的HDAC复合物的蛋白质-蛋白质相互作用,因此不适用于HDACs的富集。此外,尝试利用金属螯合亲和层析纯化His标签修饰的RpdA也未能成功。22尽管洗脱时使用了咪唑而非低pH条件,但在纯化过程中仍导致催化活性显著丧失(未发表数据,Bauer, I, 2010)。
所述酶活性测定方案的一个局限性在于使用了放射性底物。然而,基于荧光的检测方法也已开发出来23,24,并且已有商业化试剂盒。这些检测在微孔板中进行,因此也适用于HDAC抑制剂的高通量筛选。在此情况下,需要对本文所述的操作流程进行规模放大。
该实验方案潜在的未来应用包括富集第1类组蛋白去乙酰化酶(HDACs)的特定亚复合物,以评估它们各自在生理功能上的作用和/或在对HDAC抑制剂敏感性方面的差异。在将所述方法应用于其他酶时,强烈建议使用未加标签的菌株进行阴性对照实验。这可以确保所测酶活性的特异性,并揭示是否存在非特异性结合酶的污染。
此处描述的纯化与活性检测可在两天内完成,且富集的酶在 -80 °C 分装保存时至少可稳定数月。总之,该方案提供了一种相对简单且经济有效的方法,用于获得可用于活性测定及抑制剂功效评估的 I 类 HDAC 复合物。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢因斯布鲁克医科大学生物中心分子生物学部的Petra Merschak在本手稿撰写过程中提供的帮助与支持。此外,我们还要感谢审稿人提出的宝贵意见。
本工作由奥地利科学基金(SG 获资助号 P24803,GB 获资助号 P21087)以及机构内部资助(MUI Start,IB 获资助号 ST201405031)提供支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 x SDS-PAGE 电泳缓冲液 | Novex | ||
| 2-巯基乙醇 (EtSH) | Roth | 4227 | |
| 25 cm2 带透气盖的细胞培养瓶 | Sarstedt | 833910002 | 用于孢子生产 |
| 47 mm 真空过滤装置 | Roth | EYA7.1 | |
| AccuFLEX LSC-8000 | HITACHI | – | 液体闪烁计数器 |
| 乙酸 | Roth | 7332 | |
| 抗钙调蛋白结合蛋白表位标签抗体 | Millipore | 07-482 | 使用稀释比例为 1:1333 |
| 抗兔 IgG(全分子)–碱性磷酸酶 (AP) 抗体 | Sigma-Aldrich | A3687 | |
| 球磨机 | Retsch | 207450001 | Mixer Mill MM 400 |
| BCIP/NBT | Promega | S3771 | AP 显色底物 |
| 细胞滤器 | Greiner | 542040 | |
| 收获菌丝用纱布 | BioRen | H0028 | Topfentuch |
| 二甲基亚砜 (DMSO) | Roth | 4720 | |
| EDTA | Prolabo | 20309.296 | |
| 乙酸乙酯 | Scharlau | Ac0155 | |
| 冷冻干燥机 | LABCONCO | 7400030 | FreeZone Triad |
| 甘油 | Roth | 3783 | |
| HCl | Roth | 4625 | |
| IgG 树脂 | GE Healthcare | 17-0969-01 | IgG Sepharose 6 Fast Flow |
| 接种环 | VWR | 612-2498 | |
| KOH | Merck | 5033 | |
| 超净工作台 | Thermo Scientific | – | Hera Safe KS |
| 混合纤维素酯膜滤器 | Millipore | GSWP04700 | |
| NaCl | Roth | 3957 | |
| NaOH | Roth | 6771 | |
| 改进型 Neubauer 血细胞计数板 | Roth | T728 | |
| Novex 凝胶系统 | Thermo Scientific | 用于 SDS-PAGE | |
| Novex Tris-甘氨酸 SDS 电泳缓冲液 (10X) | Thermo Scientific | LC2675 | SDS-PAGE 电泳缓冲液 |
| peqGold 蛋白 Marker II | VWR | 27-2010P | 银染用蛋白 Ladder |
| Peristaltic Pump P-1 | GE Healthcare | 18111091 | |
| 移液控制器 | Brand | 26302 | accu-jet pro |
| Poly-Prep 层析柱 | Bio-Rad | 731-1550 | |
| ProSieve QuadColor 蛋白 Marker | Biozym | 193837 | Western blot 用预染蛋白 Ladder |
| 蛋白酶抑制剂混合片剂 | Sigma-Aldrich | 11873580001 | cOmplete, 无 EDTA |
| 旋转混合器 | ELMI | – | Intelli-Mixer RM-2 S |
| Rotiszint eco plus | Roth | 0016 | |
| RPMI-1640 | Sigma-Aldrich | R6504 | |
| 闪烁计数瓶 | Greiner | 619080 | |
| Sorvall Lynx 4000 | Thermo Scientific | ||
| Thermomixer comfort | Eppendorf | ||
| TIB32.1 | A. nidulans rpdA::TAP 菌株。 基因型:alcA(p)::rpdA;veA1; argB2;yA2;pIB32::argB;ArgB+;PyrG+ | ||
| Trans-Blot Turbo RTA Midi 硝酸纤维素转移试剂盒 | Bio-Rad | 1704271 | |
| Trans-Blot Turbo 转膜系统 | Bio-Rad | 1704150 | |
| 曲古抑菌素 A (TSA) | Sigma-Aldrich | T8552 | 5 mM 储存液(溶于 DMSO) |
| Tris(游离碱) | Serva | 37190 | |
| Tris-HCl | Roth | 9090 | |
| 聚山梨酯 20 | Roth | 9127 | Tween 20 |
| 聚山梨酯 80 | Sigma-Aldrich | P1754 | Tween 80 |
| TX-100 | Acros Organics | 215682500 | Triton X-100,辛基酚聚氧乙烯醚-9 去垢剂 |
参考文献
- Gregoretti, I. V., Lee, Y. -M., Goodson, H. V. Molecular evolution of the histone deacetylase family: functional implications of phylogenetic analysis. Journal of Molecular Biology. 338 (1), 17-31 (2004).
- Bauer, I., et al. A Class 1 Histone Deacetylase with Potential as an Antifungal Target. mBio. 7 (6), (2016).
- Stefan, A., et al. Purification of active recombinant human histone deacetylase 1 (HDAC1) overexpressed in Escherichia coli. Biotechnology Letters. 40 (9-10), 1355-1363 (2018).
- Trojer, P., et al. Histone deacetylases in fungi: novel members, new facts. Nucleic Acids Research. 31 (14), 3971-3981 (2003).
- Bayram, Ö, et al. VelB/VeA/LaeA complex coordinates light signal with fungal development and secondary metabolism. Science. 320 (5882), 1504-1506 (2008).
- Puig, O., et al. The tandem affinity purification (TAP) method: a general procedure of protein complex purification. Methods. 24 (3), 218-229 (2001).
- Rigaut, G., et al. A generic protein purification method for protein complex characterization and proteome exploration. Nature Biotechnology. 17 (10), 1030-1032 (1999).
- Hill, T. W., Kafer, E. Improved protocols for Aspergillus minimal medium: trace element and minimal medium salt stock solutions. Fungal Genetics Reports. 48, (2001).
- Todd, R. B., Davis, M. A., Hynes, M. J. Genetic manipulation of Aspergillus nidulans: meiotic progeny for genetic analysis and strain construction. Nature Protocols. 2 (4), 811-821 (2007).
- Zadra, I., Abt, B., Parson, W., Haas, H. xylP promoter-based expression system and its use for antisense downregulation of the Penicillium chrysogenum nitrogen regulator NRE. Applied and Environmental Microbiology. 66 (11), 4810-4816 (2000).
- Stolz, D. J., et al. Histological Quantification to Determine Lung Fungal Burden in Experimental Aspergillosis. Journal of Visualized Experiments. (133), (2018).
- Bayram, Ö, et al. Identification of protein complexes from filamentous fungi with tandem affinity purification. Methods in Molecular Biology. 944, 191-205 (2012).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Blum, H., Beier, H., Gross, H. J. Improved silver staining of plant proteins, RNA and DNA in polyacrylamide gels. Electrophoresis. 8 (2), 93-99 (1987).
- Towbin, H., Staehelin, T., Gordon, J. Electrophoretic transfer of proteins from polyacrylamide gels to nitrocellulose sheets: procedure and some applications. Biotechnology. 24, 145-149 (1992).
- Kölle, D., et al. Biochemical methods for analysis of histone deacetylases. Methods. 15 (4), 323-331 (1998).
- Tribus, M., et al. A novel motif in fungal class 1 histone deacetylases is essential for growth and development of Aspergillus. Molecular Biology of the Cell. 21 (2), 345-353 (2010).
- Sendra, R., Rodrigo, I., Salvador, M. L., Franco, L. Characterization of pea histone deacetylases. Plant Molecular Biology. 11 (6), 857-866 (1988).
- Valente, S., et al. 1,3,4-Oxadiazole-containing histone deacetylase inhibitors: anticancer activities in cancer cells. Journal of Medicinal Chemistry. 57 (14), 6259-6265 (2014).
- Mai, A., et al. Synthesis and biological properties of novel, uracil-containing histone deacetylase inhibitors. Journal of Medicinal Chemistry. 49 (20), 6046-6056 (2006).
- Pidroni, A., et al. A Class 1 Histone Deacetylase as Major Regulator of Secondary Metabolite Production in Aspergillus nidulans. Frontiers in Microbiology. 9, 2212(2018).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Wegener, D., Wirsching, F., Riester, D., Schwienhorst, A. A fluorogenic histone deacetylase assay well suited for high-throughput activity screening. Chemistry & Biology. 10 (1), 61-68 (2003).
- Peng, L., Yuan, Z., Seto, E. Histone deacetylase activity assay. Methods in Molecular Biology. 1288, 95-108 (2015).
重印与许可
