我们介绍一种利用酶标仪在薄膜条件下对气道表面液体pH进行动态测量的实验方案。
本文内容
摘要
摘要
近年来,气道黏膜表面pH值的重要性日益凸显,因其能够调节气道表面液体(ASL)的水合状态、黏液黏稠度以及抗菌肽的活性,这些参数均是肺部先天防御机制中的关键因素。这一点在囊性纤维化(CF)等慢性呼吸系统疾病研究领域尤为重要,因为在这些疾病中上述参数均出现失调。尽管已有多个研究团队在体内和体外对ASL的pH值进行了研究,但其报道的ASL pH值范围较宽,甚至在非CF与CF细胞之间是否存在pH差异的问题上得出了相互矛盾的结果。此外,这些研究的方法学描述往往不够详尽,难以确保实验的可重复性;大多数方法通量较低,且需要昂贵的设备或专门的技术知识,导致其在多数实验室中难以推广应用。本文介绍一种半自动化的荧光酶标仪检测方法,可在更接近体内状态的薄膜条件下实现ASL pH值的实时测定。该技术能够同时对多个气道上皮培养样本进行持续数小时的稳定测量,并且重要的是,可实时监测ASL pH值在激动剂或抑制剂作用下的动态变化。为实现这一目标,将完全分化的原代人源气道上皮细胞(hAECs)的ASL与一种pH敏感性染料在过夜孵育中染色,以允许过量液体被重新吸收,从而确保形成薄膜条件。在有或无激动剂存在下监测荧光信号后,进行原位pH校准,以校正液体体积和染料浓度的影响。本方法提供了必要的对照措施,可实现稳定且可重复的ASL pH值测量,未来有望作为个体化医疗中药物筛选的平台,并可拓展应用于其他上皮组织及实验条件,如炎症模型和/或宿主-病原体相互作用模型。
引言
气道上皮表面覆盖着一层薄薄的液体层(约10 μm),称为气道表面液体(ASL)。ASL的成分和深度(水合状态)受到严格调控,并通过黏液纤毛清除系统控制气道清除效率1,2,3,4。近年来,多个研究团队已证实ASL中H+/HCO3-含量的重要性,因其能够调节ASL的水合状态5、气道炎症6和感染7,8,以及黏液黏稠度8,9。值得注意的是,尽管目前仍存在一些争议,但许多研究报道了在哮喘10,11,12、慢性阻塞性肺疾病(COPD)11、支气管扩张症11、慢性鼻窦炎13,14和囊性纤维化(CF)5,9,15,16,17等慢性气道疾病中存在气道pH值调节异常,这提示恢复ASL pH值的治疗方法可能对多种慢性气道疾病具有治疗作用。囊性纤维化是白种人群中最常见的常染色体隐性遗传病,由囊性纤维化跨膜传导调节因子(CFTR)基因突变所致。该基因编码一种阴离子(HCO3-和Cl-)通道,在上皮细胞的离子和液体转运及稳态中发挥关键作用18。尽管CF是一种多器官受累的疾病,但肺部病变是导致发病和死亡的主要原因19,20。鉴于CF的主要缺陷是Cl-和HCO3-转运功能受损,可以推测,与无CF的人群相比,CF患者的细胞外液pH值将出现调节异常。因此,ASL pH值的测定已成为CF研究的一个热点领域,多个研究团队已开发出用于测定CF气道ASL pH值的技术。
在体内,气道pH值已通过多种技术进行测量,包括微探针(光纤、金或钼探针)5,21,22,23,24 用于咳出物或呼出气冷凝物(EBC)的pH值测定10,11,12,25,26,27在囊性纤维化(CF)研究领域,pH值因其潜在的临床意义而受到广泛关注。理论上,使气道环境更偏碱性可能增强细菌杀灭能力,并整体改善黏液纤毛清除功能和气道稳态。然而,在体内研究中/离体研究报道了广泛的pH值范围,迄今为止,关于非囊性纤维化(CF)与囊性纤维化气道之间是否存在pH差异,结果尚无定论。在2000年代初期,不同研究团队报告了呼出气冷凝液(EBC)的pH值。在无疾病人群中,pH值范围为4.6至8.5,但有趣的是,在囊性纤维化患者急性加重期,EBC的pH值被发现更偏酸性。12,27最近,在囊性纤维化的人类和动物模型中对ASL进行的活体测量报告了相互矛盾的结果16,17,21,22,23,24 目前尚不清楚囊性纤维化患者的气道是否比非囊性纤维化患者的气道更偏酸性。
由于气道表面液体(ASL)的体积极小,且在疾病状态下可能存在黏液栓,导致体内测量下呼吸道ASL pH值十分困难,因此许多研究团队转而采用体外实验来测定ASL pH值,主要使用三种不同的方法。第一种方法是使用与葡聚糖偶联的、不能穿透细胞的pH敏感型荧光染料,以干燥粉末形式直接加入ASL中,或通过一种名为全氟化碳(perfluorocarbon, PFC)的惰性液体进行添加5,8,16,17,28,29,30,31,32。然而,该技术难以精确控制加入培养物中的染料量,并存在染料聚集的风险,导致不同样本之间、不同实验之间,甚至同一样本内部的染料浓度差异较大。此外,该方法通常在共聚焦显微镜下进行,限制了其适用性,在许多情况下难以对多个样本进行详细监测,也无法灵活调整记录条件。第二种用于测量ASL pH值的方法是使用pH敏感型微电极5,15。因此,ASL pH值的测量不依赖于荧光染料的浓度,应能提供更可靠且可重复的结果。然而,该方法无法实现ASL pH值的动态、实时测量,也不便于在不同条件下进行多次读数。此外,该方法操作繁琐、技术复杂,需要专门的设备(如微电极制备装置或电生理记录设备)以及专业培训,以完成样本采集、后续pH测量和校准工作。而且,这两种技术在获得可重复结果方面也表现出一定的不一致性:使用pH敏感型荧光染料法时,Tang等人报告非囊性纤维化(non-CF)ASL的pH值为7.35,而囊性纤维化(CF)ASL的pH值为7.08;而在该研究团队近期的另一篇论文中,非CF和CF ASL的pH值分别为6.9和6.417。类似地,微电极测量法在2003年的一项研究中报告非CF ASL pH值为6.4,CF ASL为6.115,而同一研究团队在2013年的研究中报告的数值分别为6.7(非CF ASL)和6.45(CF ASL)5。最后,第三种方法是研究人员在培养物的顶膜(黏膜)表面加入相对大量、缓冲能力较弱的溶液,从而破坏了薄膜状态,改变了ASL的组成,可能也影响了其调控机制。随后通过pH敏感型荧光染料33、Ussing chamber中的pH-stat滴定法13,14,或需将稀释后的ASL从培养物中取出,再使用pH电极、分析仪或石蕊试纸测量pH值34。准确测量ASL pH值的另一个难点在于建立尽可能精确的标准曲线。事实上,无论是使用通过树脂检测电势差的电极,还是使用pH敏感型荧光染料,这两种方法都会受到被测样本局部微环境的影响。更具体而言,染料的解离常数(Kd)可能因温度、离子强度、黏度,以及染料与细胞成分(如蛋白质)甚至黏液之间潜在的相互作用而发生显著变化。
为了尝试克服上述诸多技术难题,并建立一种更动态、更简便且通量更高的方法,我们开发了一种体外技术,利用标准商用酶标仪和细胞非通透性pH敏感荧光染料,检测原代人支气管上皮细胞(hAEC)培养物中的气道表面液体(ASL)pH值。该方法可在薄膜条件下,对完全分化的三维细胞培养模型的ASL pH值进行可重复、动态、半自动化、实时的测定。通过使用多孔板酶标仪,该半自动化检测方法可在12 小时内对多达24种不同条件下的pH值进行近乎同步的测量,并可监测添加各种激动剂或抑制剂后的效应。本文详细描述了该方法学,并报告了在阳性和阴性对照条件下的代表性结果,以验证该技术的可靠性。
方案
原代非囊性纤维化(n = 3 名供体,年龄分别为34岁、27岁和23岁)和囊性纤维化(n = 3 名供体,均为F580del/F508del突变;年龄分别为40岁、41岁和未知)的人支气管上皮细胞(hAECs)由美国北卡罗来纳大学教堂山分校Marsico肺研究所的Scott H. Randell博士惠赠,并在北卡罗来纳大学教堂山分校生物医学机构审查委员会批准的方案(编号#03-1396)下获取。细胞培养按照Fulcher和Randell先前发表的方法进行,使用其描述的生长培养基和分化培养基35,36。
1. 样品制备
- 按照先前所述方法35,36,将原代人支气管上皮细胞(hAECs)接种于直径为6.5 mm的半透性支持膜上(材料表),在气液界面培养至少28天。
- 配制50 mL含HCO3-的无菌Krebs缓冲液(HCO3- KRB,各成分浓度单位为mM:NaHCO3 (25)、NaCl (115)、KCl (5)、CaCl2 (1)、MgCl2 (1)、D-葡萄糖(5)),并使用0.2 μm针头滤器过滤除菌。
- 按照1.1节所述更换基底侧培养基为新鲜的分化培养基35,36。
注意:已有研究表明,基底侧葡萄糖浓度会影响气道表面液体(ASL)的pH值33。在此阶段,可通过更换为已知葡萄糖浓度的缓冲溶液来调控基底侧隔室中的葡萄糖含量。 - 向细胞顶面加入150 µL HCO3- KRB溶液进行洗涤,并在37 °C、5% CO2条件下孵育20分钟。
- 使用无菌玻璃巴斯德移液管和连接至抽吸泵的无菌P200移液器吸头,小心抽吸去除顶面洗涤液,避免破坏上皮层。此步骤应尽可能减少顶面残留液体,以恢复气液界面。
- 将细胞在37 °C、5% CO2条件下继续孵育30分钟。
2. 背景测量
- 打开酶标仪和计算机。
- 启动控制面板。
- 点击 Spark 10M,打开温度控制并设置为 37 °C;打开气体控制并将 CO2 设置为 5%。
- 等待温度和 CO2 达到设定值。
- 打开酶标仪抽屉,将每侧加入 6 mL dH2O 的湿度盒插入仪器中。确保培养板的盖子和底部清洁——若不清洁,用蘸有 70% 乙醇的纸巾擦拭——然后将培养板放入湿度盒中。
注意:在整个实验过程中,组织培养板的盖子应始终保持在板上,仅在添加药物或更换基底外侧培养基时取下,这些操作需在组织培养超净工作台中进行,以维持无菌环境。 - 打开 Spark 方法编辑器,并按以下方式在软件中设置参数:
- 选择合适的板型模板(对于直径为 6.5 mm 的半透膜支持物,选择 24 孔板),并选择本实验中需要监测的孔位。
- 添加温度和 CO2 控制模块,并分别设置为 37 °C 和 5%。勾选 等待温度/气体 选项框。
- 添加一个动力学循环模块,选择“持续时间”作为循环类型,设置为 5–10 分钟。选择“未定义”作为间隔类型,以实现连续读数。
注意:连续读数的时间间隔取决于孔数/条件数。对于 6–12 个孔,5 分钟足够;而对于包含 24 个条件的整块板,则需要 10 分钟的连续测量。 - 在动力学循环内,使用拖放功能添加两个“荧光强度”模块,分别用于 pH 敏感性和 pH 非敏感性荧光染料。pH 敏感性染料的激发波长和发射波长分别设置为 560 nm 和 590 nm;pH 非敏感性染料的激发波长和发射波长分别设置为 495 nm 和 520 nm。
- 将每种荧光染料的闪光次数设置为 30 次,z 位置设置为 33200。
注意:z 位置和增益设置取决于酶标仪的特性。手动设置增益值,使其足够高以检测样品间的差异,但又足够低,以避免激动剂加入后信号超出检测范围。 - 将每孔多次读数设置为用户自定义,选择圆形模式,尺寸为 3 × 3,边界为 4750 µm。
- 点击开始按钮进行背景测量,并点击“确定”确认湿度盒盖已就位。
- 测量结束后,打开酶标仪抽屉,取出培养板,并将细胞放回培养箱,同时准备荧光染料混合液。
- 通过将 2 µL 的 1 mg/mL 葡聚糖偶联 pH 敏感性(pHsens)荧光染料与 0.2 µL 的 10 mg/mL 葡聚糖偶联 pH 非敏感性(pHins)荧光染料以及 0.8 µL 无菌 HCO3- KRB 混合,配制成每种条件最终体积为 3 µL 的染料混合液。
注意:染料混合液的总体积应根据样本数量准备,若样本数为 1–10,则准备 n 孔 + 1 份体积;若为 11–24,则准备 n 孔 + 2 份体积。葡聚糖偶联染料用过滤灭菌的 HCO3- KRB 溶液重悬,分装后储存于 -20 °C。可在顶侧表面加入任何化学物质,进行 16–24 小时的孵育37。化学物质应配制成 0.1 倍浓度,因为在培养物吸收多余液体后,最终体积约为 0.3 µL(适用于直径为 6.5 mm 的半透膜支持物)。 - 小心地将 3 µL 染料混合液(见步骤 2.8)加至细胞的顶侧表面,并在 37 °C、5% CO2 条件下过夜孵育。
3. 动力学 测量
- 重复步骤 2.1 至 2.4,准备酶标仪。
- 点击“打开”图标,并选择用于背景测量的方法文件。
- 在动力学循环面板中,将循环类型保持为“持续时间”,并设置为 08 小时。将间隔类型更改为“固定”,并设置为 5 分钟。荧光强度面板的设置应与背景测量时相同。
注意:背景测量的间隔类型设置为“未定义”,以允许连续读数。对于动力学实验和校准实验,间隔类型应设置为“固定”,间隔时间为 5 分钟。可根据实验设计和条件数量进行调整。 - 打开酶标仪抽屉;在每侧插入装有 6 mL dH2O 的湿度盒。确保微孔板的盖子和底部清洁——若不清洁,使用蘸有 70% 乙醇的纸巾擦拭——然后将微孔板连同其盖子一起放入湿度盒中。
- 点击 开始 启动荧光读数。确认湿度盒盖已盖好后,点击 确定。
- 经过 n 个循环(通常为 12 至 24 个循环,相当于 1 至 2 小时)后,点击 暂停 以中断实验。取出微孔板,并向不同样本的基底外侧施加药物/激动剂。
注意:当细胞从酶标仪中取出时,CO2 会逸出,导致 ASL pH 上升,表现为 pH 敏感染料荧光信号下降。将培养物放回酶标仪后,这种由 CO2 引起的 pH 变化可在 10–15 分钟内恢复。 - 将微孔板重新放回托盘上的湿度盒中,盖好湿度盒盖,然后点击 继续,以继续记录 ASL pH 并监测药物/激动剂对 ASL pH 的影响。
4. 原位 pH 校准
- 从酶标仪中取出培养板。
- 吸除基底外侧的培养基/溶液。
- 分别向基底外侧室和顶侧表面加入 750 µL 和 1 µL 的高缓冲标准曲线溶液。
注意:高缓冲标准曲线溶液包含(单位为 mM)NaCl (86)、KCl (5)、CaCl2 (1.2)、MgCl2 (1.2)、NaHEPES 或 MES 或 Tris (100 mM)。当溶液 pH 低于 7 时使用 MES 缓冲,pH 为 7–7.5 时使用 NaHEPES,pH 为 8 时使用 Tris。用 HCl 将 pH 调节至目标值。 - 关闭酶标仪的 CO2 供应,或将其设为 0.1%,然后将培养板放回湿化盒中。
- 按照之前所述相同参数设置酶标仪,但不添加 CO2,如步骤 3.2 所述。
- 开始荧光读数,每 5 分钟读取一次,持续 1–1.5 小时。
5. 染料浓度和悬液体积对校准数据影响的评估
- 准备足量的pH敏感性和非敏感性染料混合物,以便在3种不同体积下至少记录4个不同pH值的荧光信号。
注意:此处,混合物1由26 µL pH敏感性染料(1 mg/mL)和2.6 µL pH非敏感性染料(10 mg/mL)配制而成,混合物2由13 µL pH敏感性染料(1 mg/mL)和1.3 µL pH非敏感性染料(10 mg/mL)配制而成。 - 将2.2 µL或1.1 µL的混合物1或混合物2分别加入96孔板的12个孔中,并加入足够的校准溶液,使最终体积分别为50、100或200 µL,充分混匀。
注意:在此实验设置中,染料浓度对应的荧光计数将分别为5 µg/mL(在200 µL中)、10 µg/mL(在100或200 µL中)、20 µg/mL(在50或100 µL中)以及40 µg/mL(在50 µL中)。 - 打开酶标仪,将温度设置为37 °C,将96孔板插入酶标仪中。请勿开启CO2控制器。
注意:由于该实验时间较短,仅需足够时间使温度平衡,因此无需使用湿度盒。 - 调整96孔板的z轴位置和增益参数,并采用与在半透性支持物上进行实验时相同的参数设置。
6. 数据分析
- 将所有数据保存到电子表格中,并创建一个新文件。
- 在背景文件中,选择每个样本/条件在两个波长下的所有平均数据,复制并粘贴至新文件中。计算每个孔和每个波长的平均背景值。
- 对校准数据和动力学数据重复此操作,并从每个波长的每个数据点中减去背景值。
- 针对每个时间点和每个样本,计算pH敏感荧光与pH不敏感荧光之间的比值。
- 如果所有样本均来自同一个供体,则计算校准曲线中每个时间点比值的平均值。
注意:应尽可能为每个供体或每种基底外侧溶液生成独立的校准曲线。事实上,这些参数可能影响背景读数或液体吸收速率,进而影响染料浓度,从而影响计算出的pH值。 - 针对每个时间点,利用比值生成标准曲线,将已知的pH值绘制在x轴上,比值绘制在y轴上。
- 确定比值趋于稳定的时间点,拟合线性回归直线,并获得该直线的方程。
- 根据动力学数据,计算每个时间点的pH值,并将pH值绘制在y轴上,时间绘制在x轴上。
注意:静息/基础pH值可通过在加入任何激动剂或其他干预措施之前,对pH稳定测量期间的数据点取平均值来计算。激动剂的作用可通过计算处理前后(一定时间间隔)的pH差值来表征,或通过直接对干预后数据点拟合非线性曲线来分析。后者可进一步提供关于t1/2和最大值的信息。最后,酸化或碱化速率也可通过拟合干预后初始数据点的直线斜率获得。
结果
上述技术可实现对最多24个独立的原代人支气管上皮细胞(hAECs)培养物中气道表面液体(ASL)pH值的动态测量。图1展示了主要步骤和设备设置的示意图。将过夜负载的细胞置于由CO2和温度控制的酶标仪中,每5分钟记录一次偶联于葡聚糖的pH敏感性染料和pH非敏感性染料的荧光信号。
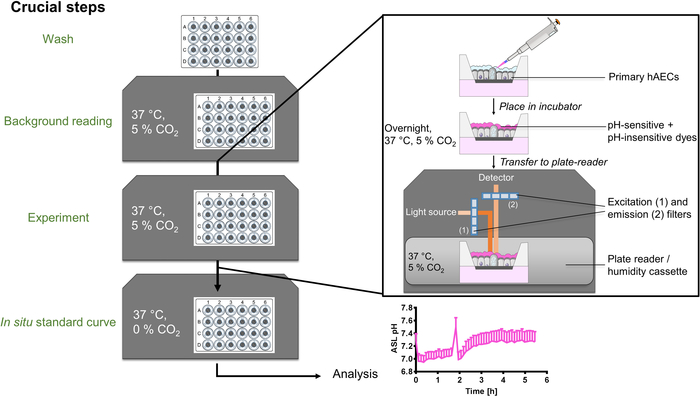
图1:ASL pH 测定方法示意图。培养物经洗涤并完成背景读数后,将人原代气道上皮细胞(hAECs)的气道表面液体(ASL)在37 °C、5% CO2条件下,与偶联了pH敏感性和pH不敏感性染料的葡聚糖混合物共同孵育过夜。次日,将培养板转移至温度和CO2浓度受控的酶标仪中,随时间连续记录两种染料的荧光信号。实验结束后进行原位校准,数据经分析后以ASL pH随时间变化的形式呈现。请点击此处查看该图的放大版本。
首先,我们研究了不同体积和染料浓度对荧光计数以及560/495比值的影响。事实上,将pH不敏感染料与pH敏感染料联合使用的目的在于校正ASL加载量的差异。然而,验证这一假设非常重要,即我们是否可以在不含细胞的96孔板中建立标准校准曲线,并将其应用于所有实验和细胞类型。我们在50、100或200 µl的校准溶液(pH值分别为5.5、6.5、7或8)中监测了1小时内的荧光计数,这些溶液含有5、10、20或40 µg/mL的染料。结果如图2A-C所示,表明在相同pH值和相同染料浓度下,报告的pH敏感/pH不敏感发射比值(y轴上的560/495)随体积不同而变化(图2A)。此外,在相同pH值和相同体积条件下,不同染料浓度也会产生不同的比值(图2B)。因此,体积或染料浓度的变化会影响由发射比值计算得到的pH绝对值。图2C显示,温度平衡所需时间约为15–20分钟。为了进一步验证染料浓度和体积对发射比值的影响,我们记录了加载于原代非囊性纤维化(non-CF)和囊性纤维化(CF)人支气管上皮细胞(hAECs)ASL中的染料的荧光信号。随后,我们通过两种方法进行校准并分析结果:(1)基于所有样本生成一条全局标准曲线;或(2)分别为每种细胞类型(non-CF和CF)生成两条独立的标准曲线。然后将两种细胞类型的ASL pH值随时间变化绘图(图3A,B),并计算平均值(图3C)。使用单一全局标准曲线计算得到的ASL pH值在non-CF和CF培养物之间显示出显著差异(图3A,C),而当使用各自独立的标准曲线计算pH值时,CF与non-CF hAECs之间的ASL pH值无显著差异(图3B,C)。这些结果表明,为每次实验以及实验内每个供体样本分别建立独立校准曲线的重要性;因为当校准曲线被合并平均时,CF培养物中出现了更高的pH敏感/pH不敏感比值,提示其pH更偏酸性(图3C)。
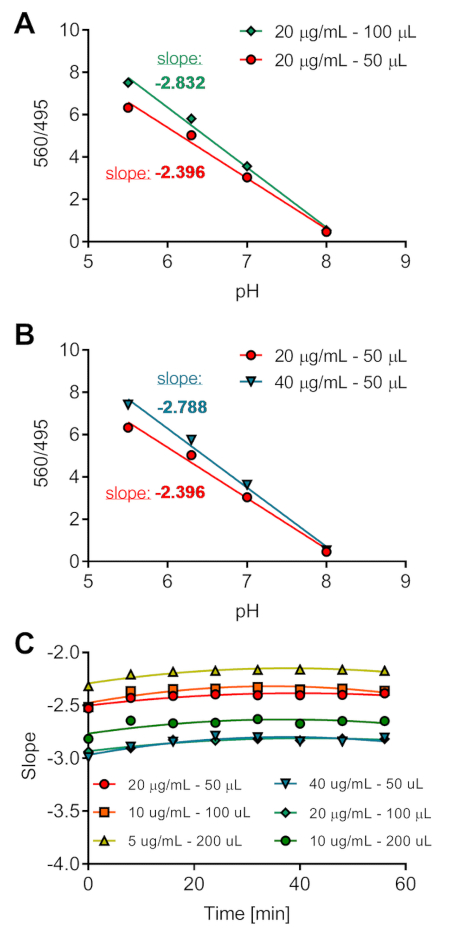
图2:体外pH校准的优化。 将不同体积、已知pH值且含有不同染料浓度的溶液加入96孔板中,持续记录1小时的荧光信号。图(A)和(B)显示体积和染料浓度对荧光比值的影响。荧光比值以24分钟时间点的数据对pH作图(C)。计算每种溶液荧光变化的斜率,并以时间为横坐标(单位:min)作图。请点击此处查看该图的放大版本。
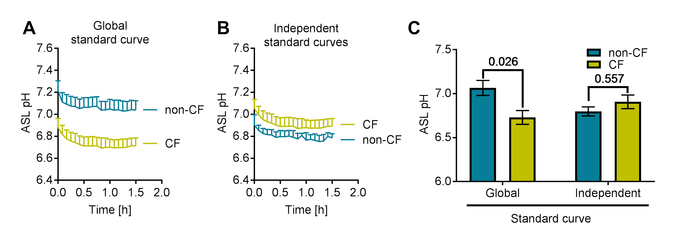
图3:人原代肺泡上皮细胞pH校准分析的优化 在 原位 (A) 来自单次标准曲线的ASL pH代表性曲线,该曲线平均了非CF和CF培养物的数据。B) 来自非囊性纤维化(non-CF)或囊性纤维化(CF)培养物的独立标准曲线所获得的ASL pH代表性曲线。每组数据均根据其各自的标准曲线计算得出。C) 根据校准方法的不同,评估非囊性纤维化(non-CF)与囊性纤维化(CF)培养物在气道表面液体(ASL)pH值上的差异。数据表示均值 ± n=3 次独立实验的扫描电镜结果,双因素方差分析,Sidak 多重比较检验。 请点击此处以查看此图的放大版本。
为了进一步验证我们的技术,我们需要一个阳性对照,以证明该技术能够检测到气道表面液体(ASL)pH值的“预期”变化。由于囊性纤维化(CF)细胞中ASL酸性增强的现象仍存在争议,我们采用cAMP激动剂佛司可林作为阳性对照条件,以刺激HCO₃⁻分泌,从而提高ASL的pH值。3- 通过CFTR的分泌。预期结果将显示,在非囊性纤维化(非CF)细胞中,毛喉素可诱导气道表面液体(ASL)发生碱化,而在CF细胞中,这种碱化作用则会根据突变的严重程度显著减弱或完全消失。 图 4A 显示非囊性纤维化(non-CF)和囊性纤维化(CF)细胞随时间变化的气道表面液体(ASL)pH的代表性轨迹 图4B 显示了两种细胞类型在佛司可林处理前后ASL pH值的平均数据。从这些结果中我们可以获得不同的信息。首先,正如之前已展示的那样 图3B,C,非囊性纤维化与囊性纤维化上皮的静息ASL pH值无显著差异。其次,在暂停实验以佛司可林处理细胞后的最初3-4个时间点,pH值出现显著升高,并在约15分钟内恢复。此现象归因于CO₂下降2 浓度在酶标仪(5%)与组织培养安全柜(约0%)之间存在差异。根据亨德森-哈塞尔巴尔赫方程,当CO₂浓度为5%时,pH 7的环境2 环境相当于 HCO 的浓度3- 约为 9.3 mM。当将细胞从酶标仪中取出时,CO₂ 水平下降2 浓度降至0%理论上将导致pH值升高 >8. 图 4A 显示ASL pH升高至约7.8,这可归因于将培养板重新放入酶标仪过程中所经历的时间延迟(即, 在5% CO₂环境中2 环境)。最后,正如所预测的,添加基底外侧 10 µM forskolin(Fsk)仅在非囊性纤维化(non-CF)培养物中显著升高ASL pH值。已有多个研究团队证实,CF与非CF上皮之间在稳态ASL pH值方面存在差异;因此,我们希望进一步探究本实验中pH值差异看似缺失的原因以及CFTR的作用。为此,我们使用特异性CFTR抑制剂CFTR对非CF培养物进行预孵育。inh172 (172). 如方案第2.8节所述,染料混合物按上述方法配制,并加入浓度为0.1X的抑制剂。 = 2 µM根据文献报道,非囊性纤维化细胞的ASL高度约为 10 µm因此,在直径为6.5 mm的半透性支撑膜上,ASL的理论体积为 π × 3.252 = 0.3 µL通过添加 3 µL 染料 + 172 在 2 µM,抑制剂在吸收多余液体后的浓度理论上将为 20 µM (1倍,所需浓度)。代表性轨迹图 图4C 以及平均值总结在 图4D 表明172号化合物未降低静息状态下的ASL pH值,但可防止佛司可林诱导的ASL pH值升高,从而验证了我们在非囊性纤维化条件下获得的结果 与 CF 培养物并进一步验证我们的技术。
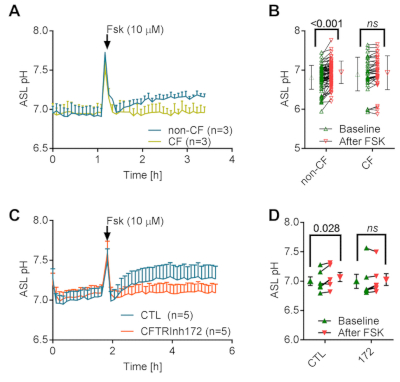
图4:福斯科林激活CFTR后对ASL pH的动态测量 (A) 福斯科林(Fsk, 10 µM)在非囊性纤维化和囊性纤维化人支气管上皮细胞中ASL pH随时间变化的动力学。数据表示均值 ± n=3 次独立实验的扫描电镜结果。B) Fsk 对非囊性纤维化和囊性纤维化培养细胞 ASL pH 影响的总结。数据代表均值 ± 来自69个非囊性纤维化(non-CF)培养物和35个囊性纤维化(CF)培养物的标准差(SD)(双因素方差分析,Sidak多重比较检验)。(CCFTR作用的代表性痕迹inh172 (172, 20 µM)对非CF hAECs中Fsk诱导的ASL pH升高的影响。数据表示为均值 ± n=5 次独立实验的扫描电镜结果。D172对非囊性纤维化培养细胞中Fsk诱导的ASL碱化作用的总结。数据表示均值 ± n=5 次独立实验的扫描电镜结果(双因素方差分析,Sidak 多重比较检验)。 请点击此处以查看此图的放大版本。
最后,如方案第6.8节所述,可通过将线性回归拟合至干预后的初始时间点来计算酸化/碱化速率。图5A显示,在无CO2条件下,移除含有HCO3-的基底外侧溶液(HCO3- KRB)并替换为HEPES缓冲液后,气道表面液(ASL)发生了显著酸化。这与缺乏HCO3-抑制跨上皮HCO3-分泌的现象一致,使得这些气道细胞持续性的质子分泌能够稳步降低ASL的pH值15,17。有趣的是,非囊性纤维化(non-CF)细胞的初始酸化速率显著慢于囊性纤维化(CF)培养细胞(图5B)。
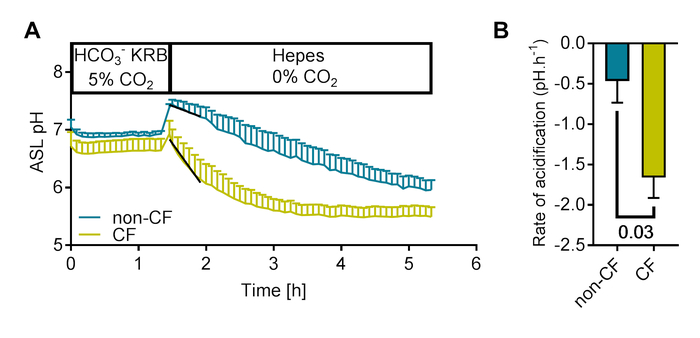
图5:ASL pH值对HCO₃⁻的动态响应3- 去除 (A代表性痕迹显示 HCO的作用3- 去除对非囊性纤维化和囊性纤维化人支气管上皮细胞中气道表面液pH值随时间变化动力学的影响。初始酸化速率通过在HCO₃⁻去除后7个时间点拟合直线的斜率获得。3- 去除。数据表示为均值 ± 非CF和CF培养物分别来自n=6和7次实验的扫描电镜结果。B) 碳酸氢盐刺激后初始酸化速率的总结3- 去除。数据表示为均值 ± 非CF和CF培养物分别来自n=6和n=7次实验的扫描电镜结果(Mann-Whitney检验)。 请点击此处以查看此图的放大版本。
讨论
本文提供了一种在原代人呼吸道上皮细胞中动态测量气道表面液体(ASL)pH值的详细方案。关键步骤包括:用洗涤液清除细胞顶面的黏液,使用与实验相同的参数测量并扣除背景值,优化z轴位置和增益,以及进行原位pH校准。
清洗细胞的第一步至关重要,因为过厚的黏液层可能会(i)阻碍染料到达纤毛周围层(PCL),以及(ii)延迟或阻碍对激动剂/抑制剂引起的荧光变化的检测。本方法旨在研究原代人支气管上皮细胞(hAECs)如何调节HCO3-和H+转运蛋白在激动剂作用下的活性。尽管探究PCL的pH变化与黏液pH变化之间的关系具有重要意义,但仍需对该方案作进一步优化,包括使用不同分子量的葡聚糖以选择性地靶向两层结构,并对整个气道表面液体(ASL)进行z轴扫描。
背景测量是本方案的另一个重要步骤。完全分化的原代气道上皮的顶面很少完全平坦,这会影响光路,从而影响背景值。确保在实验过程中与记录时处于孔板中相同的局部位置进行背景读数,对于记录结果的可重复性和稳定性至关重要。
优化Z轴位置和增益是使用每种不同浓度荧光染料时必须设置的必要步骤,这可以防止实验间出现较大的变异性。一旦完成设置,本检测方法即可提供稳定且可重复的结果。其中一个原因是,染料以少量液体形式添加至细胞的顶膜表面,该液体可被上皮组织快速重吸收,从而形成均匀标记的气道表面液体(ASL)。另一种可用于染色ASL的方法是使用干燥粉末或在全氟化碳(PFC)中的“悬浮液”,该方法也可能取得同样良好的效果。尽管这种方法可能更节省时间(因为实验通常在2 小时内完成),但干燥染料在ASL中可能无法完全溶解,因而容易形成团块,导致上皮细胞表面各处的pH敏感性染料浓度不一致。
原位pH校准是获得准确且可重复结果的重要步骤。如结果部分所示并解释的,ASL体积的差异会影响荧光计数,从而影响插值得到的pH值(图2 和 图3)。尽管已有不同研究团队发表过ASL pH值的测量结果,但即使是同一团队发表的不同研究之间,所得数值也存在较大差异8,17。我们认为,通过进行原位校准,结果将更具可重复性。与其他pH校准技术相比,本实验方法具有优势:其他方法通常采用高K+/尼日霉素(或多种离子载体)法生成标准曲线28,29,30,而本方法中,只要所有操作均在生物安全柜中进行,用于ASL pH检测的细胞即可被洗涤、保存,并在不影响上皮细胞不可逆损伤的前提下,用于其他实验。
该检测方法的建立与优化已获得可重复的结果,我们相信此方法将有助于其他研究团队进行ASL pH值的测定。然而,由于实验装置和所用细胞类型的原因,该技术也存在一些局限性。监测ASL pH值的时间若超过本文所述范围(>8–10 h),可能会遇到困难,因为长期的高湿度环境可能损坏设备,且大多数酶标仪仅支持在一定时间内(通常为24 h)记录 动力学 读数。使用完全分化的原代人支气管上皮细胞(hAECs)至关重要,因为分化程度的不同会影响HCO3-和H+转运蛋白的表达。然而,对于在薄膜条件下培养的细胞,几乎无法精确控制ASL的体积。正如方案和结果部分所述,体积的变化会影响荧光比值,遗憾的是,我们只能假设来自同一个体、在同一天接种于不同可渗透支持膜上的细胞,其ASL体积是相同的。由此产生的局限性是,任何影响液体分泌或吸收的激动剂或抑制剂都将改变ASL体积,并可能影响荧光比值。但在我们的检测中,校准曲线是在实验结束时进行的,因此可以推测这些体积变化对校准比值的影响与动力学实验期间的影响相同。基于此,我们建议有意开发该检测方法的研究团队,每种实验条件至少设置2–3个重复,以便为每种条件建立标准曲线。
本文介绍了一种简单且半自动化的检测方法,可在薄膜条件下实时测量黏膜表面的pH值。该方法能够近乎同时地检测多种培养样本的动态pH响应,从而实现不同供体之间及同一供体内部的比较。若将该方法扩展至96孔板格式,并结合极化系统(HTS 96孔板)38,可进一步提高通量,适用于药物发现筛选。此外,我们已展示该技术可用于研究激动剂对ASL pH的急性影响,并已发表该方法可用于研究顶端质子泵抑制剂对CF hAECs ASL的长期作用39。由于pH已被证实可调控感染、炎症、黏液黏稠度及离子转运,因此鉴定能够提高pH的分子靶点,将在慢性肺部疾病研究领域具有重要价值,而该技术有望推动个体化医学中药物筛选的发展。最后,鉴于酸碱稳态失调在其他疾病中也发挥重要作用,本方案经过优化后可适配于不同设备(如酶标仪)和细胞类型(如其他上皮细胞)。细胞外酸化是癌症的特征之一40,41,42,该检测方法有助于阐明实体瘤如何产生低pHe,或可作为低通量药物筛选手段用于恢复pH稳态的研究。类似地,对于慢性气道疾病,该方法也可为个体化医学策略的开发提供平台。
披露
MB:与本工作无关:来自辉瑞和罗氏诊断的由研究者发起的研究资助;诺华、罗氏诊断和TEVA支付给纽卡斯尔大学的演讲费用;勃林格殷格翰和福泰制药支付的参加教育会议的差旅费用。
致谢
本工作得到了两个囊性纤维化基金会战略研究中心拨款(SRC003 和 SRC013)以及英国医学研究理事会(MRC)概念验证拨款(MC_PC_15030)的支持。JG 获得了医学研究基金会拨款(MRF-091-0001-RG-GARNE)的支持。MB 获得了医学研究理事会临床科学家奖学金(MR/M008797/1)的支持。IH 获得了惠康信托临床培训奖学金(203520/Z/16/Z)的支持。本研究得到了位于纽卡斯尔医院NHS基金会信托和纽卡斯尔大学的英国国家卫生研究所纽卡斯尔生物医学研究中心的支持。文中观点仅代表作者自身,不代表NHS、NIHR或卫生部的观点。来自Randell博士的原代细胞得到了囊性纤维化基金会拨款(BOUCHE15R0)和美国国立卫生研究院拨款(P30DK065988)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.2 µm 注射器滤器 | Starlab | E4780-1226 | |
| 6.5 mm Transwell 插入式聚酯膜,孔径 0.4 µm | Corning | 3470 | |
| CaCl2 | Sigma Aldrich | 21115 | |
| CFTRInh172 | RnD Systems (Tocris) | 3430 | 储存浓度:50 mM;终浓度:20 µM |
| Costar 24孔透明组织培养处理多孔板 | Corning | 3524 | |
| 偶联葡聚糖的pH不敏感荧光染料:AlexaFluor488-葡聚糖 | ThermoFisher | D22910 | 储存浓度:1 mg/mL;终浓度:0.67 mg/mL |
| 偶联葡聚糖的pH敏感荧光染料:pHrodo-葡聚糖 | ThermoFisher | P10361 | 储存浓度:1 mg/mL;终浓度:0.67 mg/mL |
| D-葡萄糖 | Sigma Aldrich | G5767 | |
| 福斯科林(Forskolin) | RnD Systems (Tocris) | 1099 | 储存浓度:50 mM;终浓度:10 µM |
| Greiner CELLSTAR 96孔板 | Cellstar | 655180 | |
| 湿度盒 | TECAN | 30090495 | |
| KCl | Sigma Aldrich | P9541 | |
| MES | Sigma Aldrich | M3885 | |
| MgCl2 | Sigma Aldrich | M1028 | |
| NaCl | Sigma Aldrich | S9888 | |
| NaHCO3 | Sigma Aldrich | S5761 | |
| NaHepes | Sigma Aldrich | H3784 | |
| 酶标仪:TECAN SPARK 10M | TECAN | 30086375 | |
| Tris | Sigma Aldrich | T1503 | |
| 通用pH电极 DJ 113 | VWR | 662-1385 |
参考文献
- Boucher, R. C. Human airway ion transport. Part one. American Journal of Respiratory and Critical Care Medicine. 150 (1), 271-281 (1994).
- Roomans, G. M., et al. Measurements of airway surface liquid height and mucus transport by fluorescence microscopy, and of ion composition by X-ray microanalysis. Journal of Cystic Fibrosis. 3, Suppl 2. 135-139 (2004).
- Haq, I. J., Gray, M. A., Garnett, J. P., Ward, C., Brodlie, M. Airway surface liquid homeostasis in cystic fibrosis: pathophysiology and therapeutic targets. Thorax. 71 (3), 284-287 (2016).
- Martin, S. L., Saint-Criq, V., Hwang, T. C., Csanady, L. Ion channels as targets to treat cystic fibrosis lung disease. Journal of Cystic Fibrosis. 17 (2S), S22-S27 (2018).
- Garland, A. L., et al. Molecular basis for pH-dependent mucosal dehydration in cystic fibrosis airways. Proceedings of the National Academy of Sciences of the United States of America. 110 (40), 15973-15978 (2013).
- Torres, I. M., Patankar, Y. R., Berwin, B. Acidosis exacerbates in vivo IL-1-dependent inflammatory responses and neutrophil recruitment during pulmonary Pseudomonas aeruginosa infection. American Journal of Physiology-Lung Cellular and Molecular Physiology. 314 (2), L225-L235 (2018).
- Berkebile, A. R., McCray, P. B. Effects of airway surface liquid pH on host defense in cystic fibrosis. The International Journal of Biochemistry & Cell Biology. 52, 124-129 (2014).
- Tang, X. X., et al. Acidic pH increases airway surface liquid viscosity in cystic fibrosis. Journal of Clinical Investigation. 126 (3), 879-891 (2016).
- Quinton, P. M. Cystic fibrosis: impaired bicarbonate secretion and mucoviscidosis. Lancet. 372 (9636), 415-417 (2008).
- Hunt, J. F., et al. Endogenous airway acidification. Implications for asthma pathophysiology. American Journal of Respiratory and Critical Care Medicine. 161, 694-699 (2000).
- Kostikas, K., et al. pH in expired breath condensate of patients with inflammatory airway diseases. American Journal of Respiratory and Critical Care Medicine. 165 (10), 1364-1370 (2002).
- Ojoo, J. C., Mulrennan, S. A., Kastelik, J. A., Morice, A. H., Redington, A. E. Exhaled breath condensate pH and exhaled nitric oxide in allergic asthma and in cystic fibrosis. Thorax. 60 (1), 22-26 (2005).
- Cho, D. Y., Hajighasemi, M., Hwang, P. H., Illek, B., Fischer, H. Proton secretion in freshly excised sinonasal mucosa from asthma and sinusitis patients. American Journal of Rhinology & Allergy. 23 (6), e10-e13 (2009).
- Cho, D. Y., Hwang, P. H., Illek, B., Fischer, H. Acid and base secretion in freshly excised nasal tissue from cystic fibrosis patients with DeltaF508 mutation. International Forum of Allergy & Rhinology. 1 (2), 123-127 (2011).
- Coakley, R. D., et al. Abnormal surface liquid pH regulation by cultured cystic fibrosis bronchial epithelium. Proceedings of the National Academy of Sciences of the United States of America. 100 (26), 16083-16088 (2003).
- Pezzulo, A. A., et al. Reduced airway surface pH impairs bacterial killing in the porcine cystic fibrosis lung. Nature. 487 (7405), 109-113 (2012).
- Shah, V. S., et al. Airway acidification initiates host defense abnormalities in cystic fibrosis mice. Science. 351 (6272), 503-507 (2016).
- Saint-Criq, V., Gray, M. A. Role of CFTR in epithelial physiology. Cellular and Molecular Life Sciences. 74 (1), 93-115 (2017).
- ECFS Patient Registry Annual Data Report. , Available from: https://www.ecfs.eu/sites/default/files/general-content-images/working-groups/ecfs-patient-registry/ECFSPR_Report2016_06062018.pdf (2016).
- Cystic Fibrosis Foundation Patient Registry Annual Data Report 2017. , Available from: https://www.cff.org/Research/Researcher-Resources/Patient-Registry/2017-Patient-Registry-Annual-Data-Report.pdf (2017).
- Abou Alaiwa, M. H., et al. Neonates with cystic fibrosis have a reduced nasal liquid pH; a small pilot study. Journal of Cystic Fibrosis. 13 (4), 373-377 (2014).
- Abou Alaiwa, M. H., et al. Ivacaftor-induced sweat chloride reductions correlate with increases in airway surface liquid pH in cystic fibrosis. JCI Insight. 3 (15), (2018).
- McShane, D., et al. Airway surface pH in subjects with cystic fibrosis. European Respiratory Journal. 21 (1), 37-42 (2003).
- Schultz, A., et al. Airway surface liquid pH is not acidic in children with cystic fibrosis. Nature Communications. 8 (1), 1409(2017).
- Abou Alaiwa, M. H., et al. Repurposing tromethamine as inhaled therapy to treat CF airway disease. JCI Insight. 1 (8), (2016).
- Ngamtrakulpanit, L., et al. Identification of Intrinsic Airway Acidification in Pulmonary Tuberculosis. Global Journal of Health Science. 2 (1), 106-110 (2010).
- Tate, S., MacGregor, G., Davis, M., Innes, J. A., Greening, A. P. Airways in cystic fibrosis are acidified: detection by exhaled breath condensate. Thorax. 57 (11), 926-929 (2002).
- Jayaraman, S., Song, Y. Airway surface liquid pH in well-differentiated airway epithelial cell cultures and mouse trachea. American Journal of Physiology-Cell Physiology. 281 (5), C1504-C1511 (2001).
- Jayaraman, S., Song, Y., Vetrivel, L., Shankar, L., Verkman, A. S. Noninvasive in vivo fluorescence measurement of airway-surface liquid depth, salt concentration, and pH. Journal of Clinical Investigation. 107 (3), 317-324 (2001).
- Lennox, A. T., et al. ATP12A promotes mucus dysfunction during Type 2 airway inflammation. Scientific Reports. 8 (1), 2109(2018).
- Song, Y., Thiagarajah, J., Verkman, A. S. Sodium and chloride concentrations, pH, and depth of airway surface liquid in distal airways. The Journal of General Physiology. 122 (5), 511-519 (2003).
- Thiagarajah, J. R., Song, Y., Haggie, P. M., Verkman, A. S. A small molecule CFTR inhibitor produces cystic fibrosis-like submucosal gland fluid secretions in normal airways. FASEB Journal. 18 (7), 875-877 (2004).
- Garnett, J. P., et al. Hyperglycaemia and Pseudomonas aeruginosa acidify cystic fibrosis airway surface liquid by elevating epithelial monocarboxylate transporter 2 dependent lactate-H(+) secretion. Scientific Reports. 6, 37955(2016).
- Gorrieri, G., et al. Goblet Cell Hyperplasia Requires High Bicarbonate Transport To Support Mucin Release. Scientific Reports. 6, 36016(2016).
- Randell, S. H., Fulcher, M. L., O'Neal, W., Olsen, J. C. Primary epithelial cell models for cystic fibrosis research. Methods in Molecular Biology. 742, 285-310 (2011).
- Fulcher, M. L., Randell, S. H. Human nasal and tracheo-bronchial respiratory epithelial cell culture. Methods in Molecular Biology. , 109-121 (2013).
- Matsui, H., et al. Evidence for periciliary liquid layer depletion, not abnormal ion composition, in the pathogenesis of cystic fibrosis airways disease. Cell. 95 (7), 1005-1015 (1998).
- Ahmadi, S., et al. Phenotypic profiling of CFTR modulators in patient-derived respiratory epithelia. npj Genomic Medicine. 2, 12(2017).
- Delpiano, L., et al. Esomeprazole Increases Airway Surface Liquid pH in Primary Cystic Fibrosis Epithelial Cells. Frontiers in Pharmacology. 9, 1462(2018).
- Gillies, R. J., Liu, Z., Bhujwalla, Z. 31P-MRS measurements of extracellular pH of tumors using 3-aminopropylphosphonate. American Journal of Physiology. 267 (1 Pt 1), C195-C203 (1994).
- Tannock, I. F., Rotin, D. Acid pH in tumors and its potential for therapeutic exploitation. Cancer Research. 49 (16), 4373-4384 (1989).
- Wike-Hooley, J. L., Haveman, J., Reinhold, H. S. The relevance of tumour pH to the treatment of malignant disease. Radiotherapy and Oncology. 2 (4), 343-366 (1984).
重印与许可
