本文介绍了一种简单的共聚焦成像方法,用于可视化小鼠次级淋巴器官中分泌细胞因子干扰素γ的细胞原位定位。该方案可拓展应用于多种组织中其他细胞因子的可视化研究。
本文内容
摘要
摘要
细胞因子是由细胞分泌的小分子蛋白质,介导细胞间的通讯,在有效的免疫应答中发挥关键作用。细胞因子的一个特征是其多效性,即它们可由多种细胞类型产生,并可作用于多种靶细胞。因此,为了开发更具特异性的治疗手段,不仅需要明确哪些细胞产生细胞因子,还需了解其产生的微环境。本文介绍一种在细菌感染后原位可视化细胞因子产生的方法。该技术依赖共聚焦显微镜,在组织原生环境中对产生细胞因子的细胞进行成像。具体操作中,对组织切片同时进行多种细胞类型的标记以及细胞因子染色。该方法的关键在于,在收获目标组织前,直接在活体(in vivo)阻断细胞因子的分泌,从而使细胞内积累的细胞因子得以被检测。该方法具有多项优势:首先,细胞因子产生的微环境得以保留,有助于进一步揭示细胞因子产生所需的信号以及受其影响的细胞类型;此外,该方法可提供细胞因子在活体内产生位置的信息,且无需依赖体外(in vitro)对产细胞因子细胞进行人工再刺激。然而,该方法无法同时分析接受细胞因子信号的细胞中下游信号通路的激活情况;同样,所观察到的细胞因子信号对应 仅限于细胞因子分泌被阻断的时间窗口。本文描述了小鼠感染胞内细菌后,脾脏中细胞因子干扰素(IFN)gamma 的可视化过程 单核细胞增生李斯特菌, 该方法可能适用于大多数器官中任何细胞因子的可视化。
引言
针对病原体产生有效的免疫应答需要整合来自多种免疫细胞的复杂信号,而这些细胞通常分散在机体各处。为了实现相互通讯,这些细胞会分泌一类具有多种生物学功能的小分子可溶性蛋白质,称为细胞因子,作为免疫调节分子。细胞因子调控细胞的募集、活化和增殖,因此被认为是促进免疫应答的关键参与者1。有效的免疫应答需要细胞因子以高度有序的时空模式释放,从而连接特定细胞并诱导特定信号通路。因此,必须在考虑细胞因子产生微环境的前提下,原位研究其生成及其信号传导过程。
Listeria monocytogenes(L. monocytogenes)是一种革兰氏阳性胞内细菌,常被用作研究小鼠对胞内病原体免疫应答的主要模型。其中一种细胞因子——干扰素γ(IFNγ),在感染L. monocytogenes后24小时内迅速产生。IFNγ对清除病原体至关重要,缺乏IFNγ的小鼠对L. monocytogenes感染极为易感2。IFNγ具有多效性,在感染后可由多种细胞产生3。虽然自然杀伤(NK)细胞产生的IFNγ对于直接发挥抗细菌活性是必需的4,但来自其他来源的IFNγ已被证明具有其他功能。事实上,我们及他人近期发现,CD8+ T细胞产生的IFNγ在直接调控T细胞分化过程中具有特定功能5,6,7。因此,明确哪些细胞产生IFNγ(以及其所处的微环境)对于解析其功能至关重要。
研究细胞因子产生的最常用技术依赖于通过流式细胞术分析的细胞内细胞因子染色。该方法可在单个样本中同时检测多种细胞因子,并结合细胞表面标志物,为研究细胞因子产生提供了极为有用的工具。然而,使用上述技术意味着将丢失任何空间信息。此外,细胞因子的检测通常依赖于体外再刺激,以实现细胞因子的检测。因此,该方法分析的是特定细胞产生细胞因子的能力,而并不一定与体内实际的细胞因子分泌情况相关。其他方法使用报告基因小鼠,其中荧光蛋白的表达与细胞因子的转录相关联,可在单细胞水平上实现可视化8。尽管该方法可在体内追踪细胞因子的转录过程,但目前可用的细胞因子报告基因小鼠种类有限。此外,转录、翻译和分泌过程有时并不完全偶联,且荧光蛋白的半衰期与其所报告的细胞因子不同,使得该方法有时并不适用于体内细胞因子的可视化。
本文介绍了一种利用共聚焦显微镜在单细胞分辨率下原位可视化细胞因子产生的方法。该技术能够实现对组织内细胞来源及其周围微环境的可视化观察。本方案重点描述了在单核细胞增生性李斯特菌(L. monocytogenes)感染小鼠脾脏中IFNγ产生的可视化过程,特别关注自然杀伤(NK)细胞和抗原特异性CD8+ T细胞产生的IFNγ。然而,只要目标细胞因子能够通过细胞内蛋白质转运抑制剂保留在细胞内,该方法即可拓展并适用于其他情境下(如感染、炎症或自身免疫性疾病)任何细胞因子产生的表征研究。
方案
所有涉及小鼠的实验均符合英国1986年《科学程序法案》的规定。
1. 小鼠中抗原特异性CD8+ T细胞的过继转移
- 使用小鼠 CD8+ T 细胞分离试剂盒,按照制造商说明书,从 T 细胞受体转基因小鼠的淋巴结悬液中分离表达绿色荧光蛋白(OTI-GFP)或红色荧光蛋白(OTI-RFP)的卵清蛋白(OVA)特异性 CD8+ T 细胞(OTI)9,10。通过注射器活塞碾压淋巴结制备细胞悬液,方法如前所述11。
- 通过静脉注射,将 OTI-GFP 或 OTI-RFP 细胞(3 × 10⁶ 个细胞)转移至 C57BL/6 野生型小鼠受体,操作方法参照 Cahalan 等人12 的描述。通常使用 6–12 周龄的小鼠。
注意:此步骤为可选步骤,仅在需要追踪抗原特异性 CD8+ T 细胞时才需进行。
2. Listeria monocytogenes 感染
- 按照先前文献14所述方法,在37 °C、轻度振荡条件下,于脑心浸液培养基中将经基因改造表达OVA的L. monocytogenes(LM-OVA)13培养至对数生长期,直至OD600 达到0.08–0.1。
- 使用29 G胰岛素注射器,通过静脉注射将0.1–0.5 LD50的LM-OVA用磷酸盐缓冲液(PBS)稀释后,注入带有OTI-GFP或OTI-RFP细胞的C57BL/6野生型小鼠受体,注射体积为100 µL(最大体积=200 µL),如实验设计所示。
注意:在我们的实验中,0.1 × LD50 LM-OVA相当于2 × 10⁴菌落形成单位(CFU)。表达OVA的基因改造L. monocytogenes用于激活先前转移的OTI CD8+ T细胞,但也可使用其他L. monocytogenes菌株。
3. 使用布雷菲德菌素A(BFA)阻断细胞因子分泌
- 使用29 G胰岛素注射器,在小鼠处死前6小时,将250 µg BFA溶于200 µL PBS中,进行腹腔注射。
注意:冻干BFA首先用二甲基亚砜(DMSO)重悬,配制成25 mg/mL的储存液。然后在室温(RT)下用PBS稀释,以避免注射前发生结晶。抑制细胞因子分泌可导致IFNγ在细胞内积聚,这对细胞因子的检测至关重要。
4. 脾脏的采集
- 使用逐渐增加浓度的 CO2 对小鼠实施安乐死,随后进行颈椎脱位。
注意:应遵循当地机构关于人道处死小鼠的指导原则。 - 用 70% 乙醇清洁腹部,在小鼠左侧 flank(脾脏所在位置)用剪刀做一切口,穿透皮肤形成 1–2 cm 的切口。小心切开腹膜以暴露脾脏,并用镊子取出脾脏。采集脾脏时需注意避免用力夹捏或切割,以防破坏脾脏结构。
5. 使用多聚甲醛(PFA)固定脾脏
- 通过混合 3.75 mL PBS 和 3.75 mL 0.2 M L-赖氨酸来配制固定液。加入 21 mg 高碘酸钠并充分混匀,然后加入 2.5 mL 4% 多聚甲醛(PFA)和 20 µL 12 N NaOH。
注意:固定液需当天配制并使用,多余部分应丢弃,不可储存。如果样品中含有 GFP 等荧光蛋白,此固定步骤尤为重要。请勿使用含有甲醇残留的 PFA,因其会变性荧光蛋白。
注意:PFA 具有毒性,操作时必须小心谨慎。 - 将脾脏完全浸入固定液中,在 4°C 下轻轻振荡固定,时间不少于 4 小时,通常为 16–20 小时。
- 弃去固定液,加入 5 mL PBS,在室温下轻轻振荡洗涤 5 分钟。
- 用 5 mL 新鲜 PBS 替换原有 PBS,在 4 °C 下轻轻振荡孵育 1 小时 。
- 用 5 mL 30% 蔗糖替换 PBS,孵育 12–24 小时。
注意:该方法有助于维持组织形态。经蔗糖溶液孵育后,器官应沉降至孔板底部。
6. 冷冻与切片
- 将干冰放入一个较大的容器中,并在其中放置一个较小的容器,内含约 50 mL 纯甲醇和几块干冰。
- 用无绒布轻轻擦干脾脏。
- 将脾脏放入底部含有少量最佳切割温度(OCT)包埋剂的模具中,注意避免产生气泡。然后在脾脏上方再覆盖一层OCT包埋剂。
- 用镊子将模具放置于甲醇液面上,确保模具不与OCT包埋剂接触,以尽可能快速地冷冻组织,从而减少冰晶伪影的产生。
- 当组织完全冻结后,即可进行切片。
注意:冷冻后的脾脏可在 -80 °C 下保存数月。 - 使用冷冻切片机对组织进行切片。
- 将冷冻切片机舱内温度设定为 -21 °C。根据需要切割适当厚度的切片(通常约为 10 µm)。本方案适用于厚度不超过 30 µm 的切片。
- 将切下的组织片转移至玻璃显微镜载玻片上(参见材料表),并进行肉眼检查。
注意:切片可在 -80 °C 下保存数月。
7. 免疫荧光染色
- 将切片置于室温下平衡。
- 使用液体阻断剂(例如 PAP 笔)在组织切片周围画一圈,注意画在 OCT 包埋介质之外,否则无法有效附着。
- 待其干燥后,将 PBS 滴加至组织切片上,复水 5 分钟。
注意:滴加体积取决于切片大小,通常使用 100–300 µL。复水后切勿让切片干燥。 - 用 PBS 至少冲洗两次,以确保切片牢固粘附于载玻片上。
- 加入封闭液以减少抗体的非特异性结合。
- 按以下配方配制封闭液:含 0.1% Triton X-100、2% 胎牛血清(FCS)和 2.5 µg/mL Fc 受体阻断剂(抗小鼠 CD16/32)的 PBS 溶液。然后根据染色方案中每种二抗的来源物种,加入相应物种的 2–5% 正常血清。
注意:若抗体为直接偶联或生物素标记,则应加入每种一抗来源物种的 5% 正常血清。若一抗与某一二抗来自同一物种(例如兔源一抗和兔抗大鼠二抗),则不应使用该物种的正常血清,以免增加背景信号。 - 轻轻吸去切片上的 PBS,每张样本切片加入 100 µL 封闭液。在加盖湿盒中室温孵育至少 1 小时。
- 按以下配方配制封闭液:含 0.1% Triton X-100、2% 胎牛血清(FCS)和 2.5 µg/mL Fc 受体阻断剂(抗小鼠 CD16/32)的 PBS 溶液。然后根据染色方案中每种二抗的来源物种,加入相应物种的 2–5% 正常血清。
- 使用一抗进行染色。
- 用封闭液将一抗稀释至最佳浓度。通常起始浓度为 5 µg/mL,但需根据每种抗体和组织类型进行优化。
注意:若抗体为直接偶联抗体,使用前需将抗体混合液在 4 °C 下以 17.135 × g(13,500 rpm)离心 15 分钟。荧光染料可能发生沉淀,此步骤可去除沉淀物,防止其非特异性沉积在切片上。 - 弃去封闭液,每张样本切片加入一抗混合液。
- 在加盖湿盒中室温孵育 4 小时,或 4 °C 过夜(OVN)。
- 用封闭液将一抗稀释至最佳浓度。通常起始浓度为 5 µg/mL,但需根据每种抗体和组织类型进行优化。
- 进行洗涤步骤。
- 在 PBS 中加入 2% FCS 配制洗涤缓冲液。
- 用洗涤缓冲液洗涤 4 次:第一次快速冲洗(不孵育),第二次 10 分钟,第三和第四次各 5 分钟。最后用 PBS 洗涤 5 分钟。
- 使用二抗进行染色。
- 用封闭液将目标二抗稀释至最佳浓度,并参照一抗处理方法进行离心。
- 弃去最后一次洗涤液,将二抗混合液滴加至切片上,在加盖湿盒中室温孵育 1–4 小时。
- 用洗涤缓冲液洗涤 4 次:第一次快速冲洗(不孵育),第二次 10 分钟,第三和第四次各 5 分钟。然后 用 PBS 进行最后一次洗涤,持续 5 分钟。
- 弃去最后一次洗涤液,让 PBS 自然蒸发,但避免切片过度干燥。在样本上滴加一滴封片剂,小心地盖上盖玻片,确保封片剂完全覆盖整个组织区域。在避光条件下室温静置过夜使其充分固化。
注意:在加封片剂前,可在载玻片背面组织区域对应位置画一圈标记,以防封片后难以辨识组织位置。 - 将载玻片置于 4 °C 避光保存,待成像时取出。
8. 成像与分析
- 使用共聚焦显微镜对染色样本进行成像。
注意: 在本实验方案中,使用了倒置光谱激光扫描显微镜(参见材料表),并配备10x/NA 0.40或60x/NA 1.4物镜(用于细胞因子亚细胞定位分析)。各荧光染料和荧光蛋白的激发波长与发射波长均在材料表中列出。 - 根据需要使用图像处理软件(例如 Imaris 或 Fiji)进行分析与定量。
结果
单核细胞增生性李斯特菌(Listeria monocytogenes)感染后24小时内产生的干扰素γ(IFNγ)对于控制该病原体的扩散至关重要。利用本方案,我们不仅能够观察哪些细胞正在产生IFNγ,还能确定它们是否位于特定的微环境中。为了帮助我们界定脾脏的结构,我们对标记了脾脏内特定位置的细胞进行了染色。标记物F4/80可标记所有巨噬细胞,并突出显示红髓区域;标记物B220可标记B细胞,并突出显示围绕T细胞区的B细胞滤泡;标记物CD169可标记边缘区巨噬细胞,围绕白髓分布(图1)。大多数OTI细胞,无论其是否表达IFNγ,均存在于白髓中,因此除非特别说明,所有图像均为白髓区域的图像。
该方案中的一个关键步骤是使用布雷菲德菌素A(BFA)抑制细胞因子的分泌。事实上,当小鼠未接受BFA处理时,自然杀伤(NK)细胞分泌干扰素γ(IFNγ)的检测信号显著减弱(图2)。通过本方案,我们发现感染后24小时至少有两种细胞类型可产生IFNγ——即NK细胞和抗原特异性的CD8+ T细胞(图3),这与此前通过流式细胞术所获得的结果相似3。
原位成像显示,产生IFNγ的细胞并非在脾脏中广泛分布,而是集中于某些特定区域(图4)。事实上,我们发现T细胞在整个脾脏中均被激活(以T细胞聚集为标志),但这并不一定与IFNγ的产生相关。一种可能的解释是,IFNγ的产生局限于感染细胞所在的位置15,16,而T细胞的激活(表现为聚集)可由感染细胞(IFNγ阳性)和非感染细胞(IFNγ阴性)两类抗原呈递细胞共同支持。需要其他染色方法来精确定位,并揭示限制IFNγ仅在该区域产生的机制及其与抗原转移的关系。有趣的是,我们发现活化的、聚集的抗原特异性T细胞分布于脾脏白髓的各个区域,但仅在NK细胞与其共存的区域才产生IFNγ(图5)。因此,NK细胞的存在界定了白髓中一种特殊的微环境,在该环境中聚集的T细胞产生IFNγ,而在白髓其他区域的聚集T细胞则不产生IFNγ。这表明,在该时间点,T细胞的激活本身不足以决定IFNγ的产生。
本方案突出的另一个有趣特征是IFNγ在NK细胞与CD8+ T细胞中不同的亚细胞定位5。如图6所示,IFNγ在NK细胞中的定位呈胞质内弥散分布,而在CD8+ T细胞中,IFNγ常被招募至另一个T细胞。
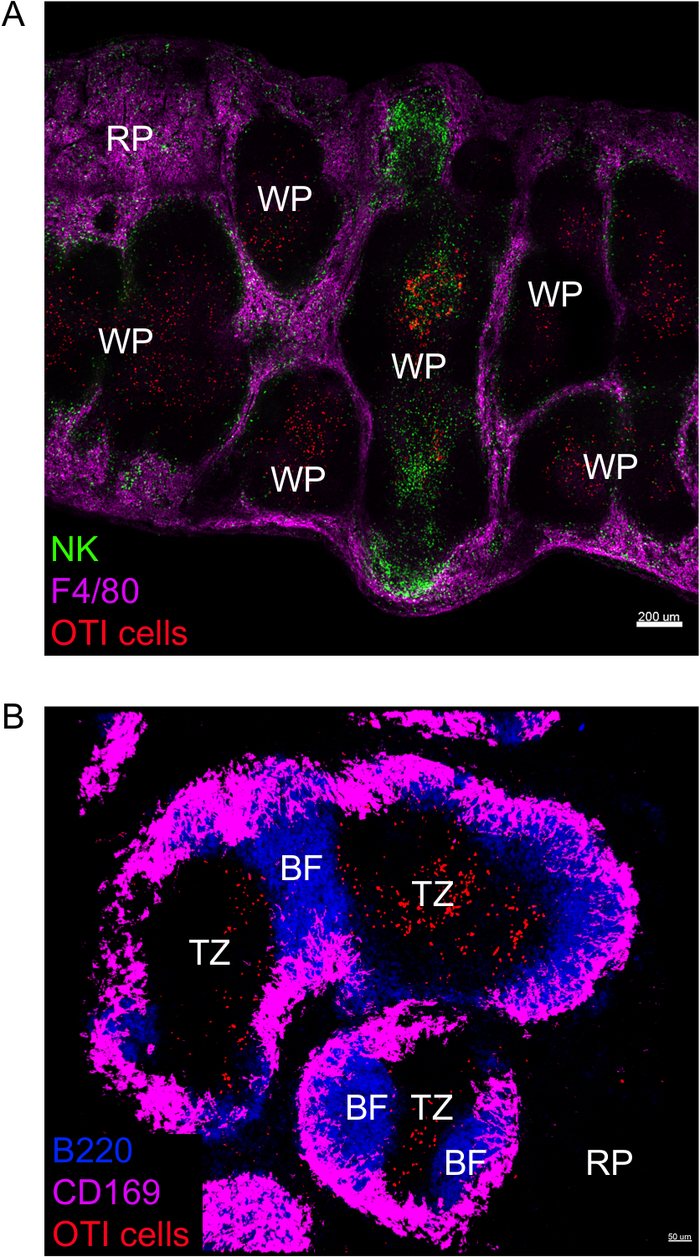
图1:标记显示脾脏结构。 小鼠感染2 × 10⁴ CFU的LM-OVA,在感染后24小时实施安乐死。取出脾脏并按本方案所述方法进行处理。(A) 组织切片经染色显示NK细胞(抗-NCR1抗体,随后使用抗山羊IgG-FITC;绿色)、OTI-RFP细胞(红色)和巨噬细胞(抗-F4/80-APC;品红色)。RP = 红髓;WP = 白髓。比例尺 = 200 µm。(B) 组织切片经染色显示B细胞(抗-B220-Pacific Blue;蓝色)、OTI-GFP细胞(GFP信号显示为红色)和边缘区巨噬细胞(抗-CD169-Alexa647;品红色)。RP = 红髓;BF = B细胞滤泡;TZ = T细胞区。比例尺 = 50 µm。此图为3次独立实验的代表性结果(N = 4)。请点击此处查看该图的放大版本。

图2:BFA处理可实现原位检测细胞内IFNγ。 IFNγ的产生局限于脾脏特定区域。小鼠感染2 × 10⁴ CFU LM-OVA后,经BFA处理(A)或未处理(B),感染后18小时给予BFA。感染后24小时处死小鼠,取出脾脏并按实验方案所述进行处理。切片使用NK细胞抗体(抗NCR1,随后加抗山羊IgG-FITC;绿色)、OTI-RFP细胞(红色)和IFNγ抗体(抗IFNγ-BV421;青色)染色。比例尺 = 5 µm。该图为代表性图像,来自3次独立实验中NK细胞富集区域的结果(N = 3)。请点击此处查看该图的放大版本。
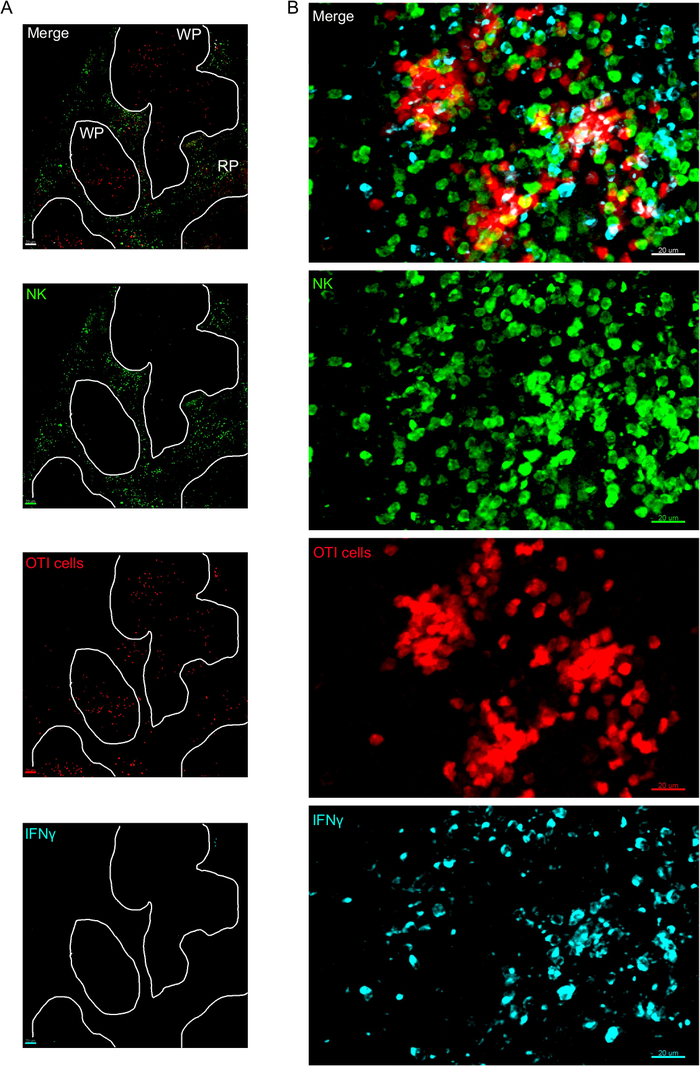
图3:脾脏中产生IFNγ的细胞。如图所示,小鼠感染2 × 10⁴ CFU LM-OVA,并在感染后18小时给予BFA处理。感染后24小时处死小鼠。取出脾脏并按本方案所述方法进行处理。切片经NK细胞染色(抗NCR1抗体,随后使用抗山羊IgG-FITC;绿色)、OTI-RFP细胞(红色)和IFNγ(抗IFNγ-BV421;青色)染色。(A)未感染的 naïve 小鼠脾脏代表性图像,用于显示无IFNγ非特异性染色。白色线条标示白髓区域。WP = 白髓;RP = 红髓。(B)LM-OVA感染小鼠脾脏白髓的代表性图像,显示NK细胞侵入白髓,并由NK细胞、OTI细胞及未标记细胞产生IFNγ。图像来自4次独立实验的代表性结果(N = 4)。比例尺 = 70 µm(A);20 µm(B)。请点击此处查看该图的放大版本。
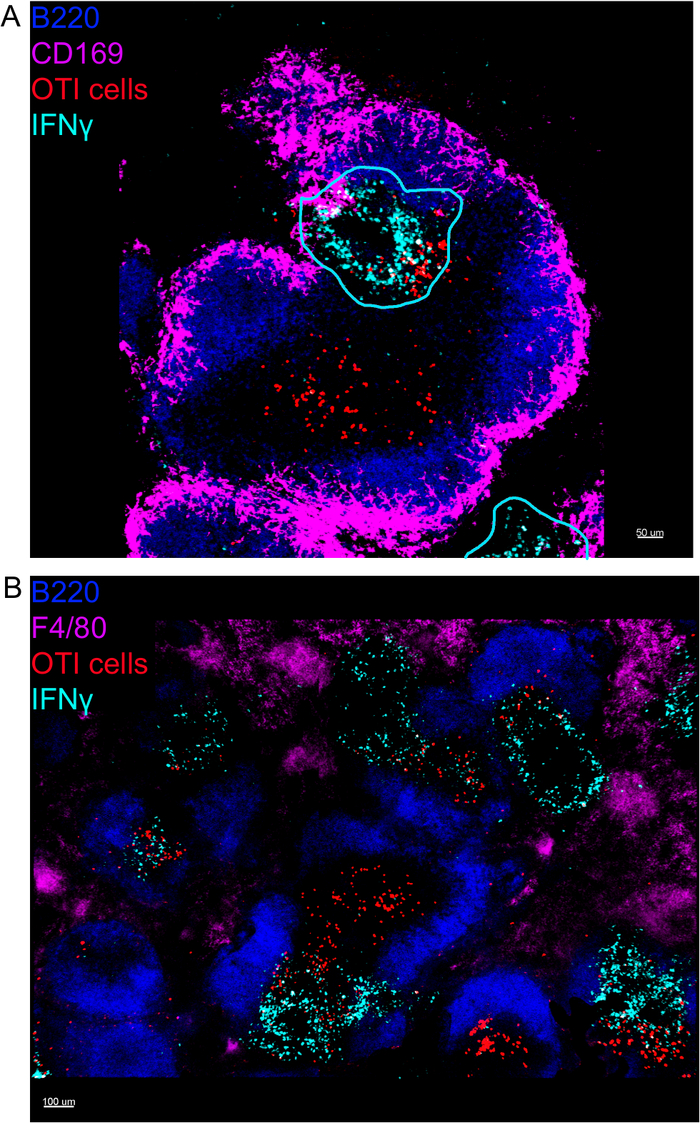
图4:LM-OVA感染后,IFNγ的产生局限于脾脏的特定区域。小鼠感染2 × 10⁴ CFU LM-OVA,并在感染18小时后给予BFA处理。感染后24小时处死小鼠。取出脾脏并按本方案所述方法进行处理。所有切片均进行B细胞(B220-Pacific Blue抗体,蓝色)和IFNγ(抗IFNγ-生物素抗体,随后使用PE标记的链霉亲和素;青色)染色。OTI-GFP细胞(GFP信号显示为红色)。青色线条标示IFNγ高表达区域。这些图像代表4次独立实验的结果(N = 4)。(A) 切片对边缘区巨噬细胞(抗CD169-Alexa 647,品红色)进行染色。比例尺 = 50 µm。(B) 切片对所有巨噬细胞(F4/80)进行染色。比例尺 = 100 µm。 请点击此处查看该图的放大版本。
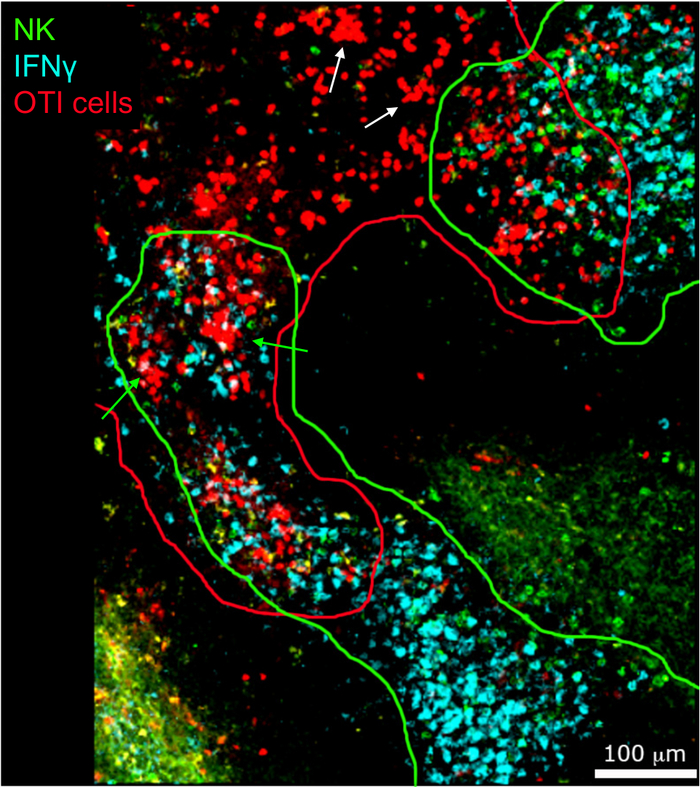
图5:活化的OTI细胞产生IFNγ发生于特定的微环境。小鼠感染2 × 10⁴ CFU LM-OVA,并在感染后18小时给予BFA处理。于感染后24小时处死小鼠。取出脾脏并按本方案所述方法进行处理。组织切片经NK细胞染色(抗NCR1抗体,随后使用抗山羊IgG-FITC抗体;绿色)、OTI-RFP细胞(红色)和IFNγ(抗IFNγ-BV421抗体;青色)染色。绿色和红色线条分别标示NK细胞和OTI细胞区域。白色箭头指示不产生IFNγ的T细胞簇示例。绿色箭头指示产生IFNγ的T细胞簇示例。比例尺 = 100 µm。此图为四次独立实验(N = 4)中的代表性图像。请点击此处查看该图的放大版本。
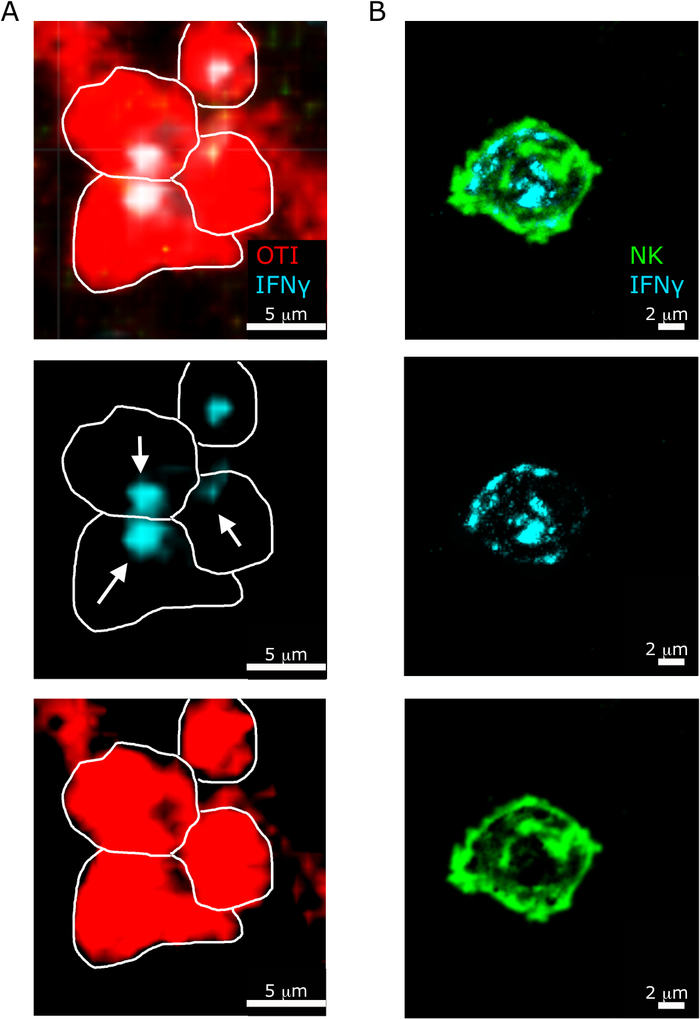
图6:NK细胞和T细胞中IFNγ的亚细胞定位。 小鼠感染2 × 10⁴ CFU LM-OVA,并在感染18小时后给予BFA处理。感染后24小时处死小鼠,取出脾脏并按照本方案所述方法进行处理。所有切片均使用IFNγ抗体(抗IFNγ-BV421;青色)染色。白色线条标示细胞边界,白色箭头指示分泌方向。该图代表两次独立实验的结果(N = 5)。(A)OTI-RFP细胞以红色显示。标尺 = 5 µm。(B)切片经NK细胞染色(抗NCR1抗体,随后使用抗山羊IgG-FITC抗体;绿色)。标尺 = 2 µm。请点击此处查看该图的放大版本。
讨论
在本研究中,我们介绍了一种在小鼠感染L. monocytogenes后可视化脾脏中IFNγ产生的方法。该方案操作简便,可适用于其他组织和细胞因子刺激条件,但需考虑以下方面。细胞通常会迅速分泌其所产生的细胞因子,而这些细胞因子也会被邻近细胞快速摄取,因此在原位检测细胞因子具有较大难度。一种常用的方法是将细胞在体外重新刺激,以快速重启细胞因子的产生,随后通过酶联免疫吸附试验(ELISA)检测培养基中的细胞因子。然而,这种方法会丢失细胞因子产生细胞的空间定位信息。此外,重新刺激后检测到的细胞因子产生情况并不能完全反映体内实际发生的细胞因子生成与分泌过程,而仅表明特定细胞群体产生细胞因子的潜能。因此,上述两种方法提供的信息不同,在实验设计时应明确哪类信息对研究更为重要。
为了检测细胞内细胞因子,本方法采用细胞内蛋白质转运抑制剂,将细胞因子截留在细胞内,从而增强信号检测。然而需要注意的是,这类抑制剂会影响蛋白质从内质网(RE)向高尔基体以及分泌囊泡的正常转运过程,阻碍其释放,可能导致细胞毒性。因此,应仅在较短时间内使用BFA或其他抑制剂,通常不超过数小时。因此,必须在抑制剂剂量与处理时间之间找到恰当的平衡,以在最大限度截留细胞内细胞因子的同时,避免产生严重的细胞毒性效应。这些参数可能因细胞因子种类及BFA给药途径的不同而有所差异。在本研究的感染模型中,BFA通过腹腔注射给药,以实现快速的全身分布,但也可通过静脉注射给药。
最常用的细胞内蛋白质转运抑制剂是本文所使用的布雷菲德菌素A(BFA)和莫能菌素(MN)。这些抑制剂常被不加区分地用于累积和研究细胞因子的产生,但它们的作用机制存在细微差异。MN通过抑制蛋白质在高尔基体内的转运,从而使蛋白质在高尔基体中积累17;而BFA则通过阻止包被蛋白复合物I(coatomer protein complex-I)的募集,抑制蛋白质向内质网(ER)的逆向转运,从而促进细胞因子在内质网中的积累18。因此,选择最佳的细胞内蛋白质转运抑制剂需考虑多种因素,例如待检测的细胞因子类型。例如,已有研究表明,在脂多糖诱导的单核细胞内染色实验中,BFA检测IL-1β、IL-6和TNF细胞因子的效率高于MN19。
本方案通过共聚焦显微镜对细胞因子进行原位可视化,因此可用于研究细胞因子产生细胞及其微环境的标记物种类有限。还需注意的是,蛋白转运抑制剂(如BFA或MN)会干扰多种蛋白的正常表达,因此在研究某些活化细胞表面标记物的同步表达时,使用这些抑制剂需格外谨慎。例如,BFA会阻断小鼠淋巴细胞中CD69的表达,而MN则不会20。尽管存在这一局限性,共聚焦成像仍可实现细胞因子的亚细胞定位,并揭示细胞内细胞因子分泌的方向。采用本方案获得的数据表明,自然杀伤(NK)细胞倾向于以弥散模式分泌IFN-γ,而CD8+ T细胞似乎将IFNγ的分泌定向导向与其直接相互作用的其他CD8+ T细胞5。
总之,该方案适用于在多种刺激(如感染或自身免疫)后,原位可视化多种细胞因子,并鉴定其产生细胞及其微环境。所获得的信息对于理解不同类型细胞及其产生细胞因子在体内的空间协调作用至关重要,而这种协调作用是实现有效免疫应答所必需的。
披露
作者无任何披露信息。
致谢
感谢肯尼迪研究所影像平台工作人员在成像方面的技术支持。本工作获得了肯尼迪信托基金(资助编号:A.G.)以及生物技术和生物科学研究理事会(BB/R015651/1,资助编号:A.G.)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 布雷菲德菌素 A | 剑桥生物科学 | CAY11861 | |
| 多聚甲醛 | Agar 科学 | R1018 | |
| L-赖氨酸二盐酸盐 | Sigma 生命科学 | L5751 | |
| 偏高碘酸钠 | Thermo Scientific | 20504 | |
| D(+)-蔗糖 | VWR 化学品 | 27480.294 | |
| Kimtech 科学精密擦拭纸 | Kimberly-Clark 专业公司 | 75512 | |
| O.C.T. 包埋剂,冷冻切片用封固介质 | VWR 化学品 | 361603E | |
| Fc 封闭剂,纯化抗小鼠 CD16/32,克隆 93 | Biolegend | 101302 | 抗体克隆及使用浓度: 2.5 mg/ml |
| 显微镜载玻片 - Superfrost Plus | VWR 化学品 | 631-0108 | |
| 抗-CD169 - AF647 | Biolegend | 142407 | 抗体克隆及使用浓度: 克隆 3D6.112,1.6 mg/ml 激发波长:650 发射波长:65 |
| 抗-F4/80 - APC | Biolegend | 123115 | 抗体克隆及使用浓度: 克隆 BM8,2.5 mg/ml 激发波长:650 发射波长:660 |
| 抗-B220 - PB | Biolegend | 103230 | 抗体克隆及使用浓度: 克隆 RA3-6B2,1.6 mg/mL 激发波长:410 发射波长:455 |
| 抗-IFNγ - 生物素 | Biolegend | 505804 | 抗体克隆及使用浓度: 克隆 XMG1.2,5 mg/mL |
| 抗-IFNγ - BV421 | Biolegend | 505829 | 抗体克隆及使用浓度: 克隆 XMG1.2,5 mg/mL 激发波长:405 发射波长:436 |
| 抗-Nkp46/NCRI | R&D Systems | AF2225 | 抗体克隆及使用浓度: 山羊源,2.5 mg/mL |
| 抗山羊 IgG-FITC | Novusbio | NPp 1-74814 | 抗体克隆及使用浓度: 1 mg/mL 激发波长:490 发射波长:525 |
| 链霉亲和素 - PE | Biolegend | 405203 | 抗体克隆及使用浓度: 2.5 mg/mL 激发波长:565 发射波长:578 |
| 链霉亲和素 - FITC | Biolegend | 405201 | 抗体克隆及使用浓度: 2.5 mg/mL 激发波长:490 发射波长:525 |
| Fluoromount G | 南方生物技术公司 | 0100-01 | |
| 盖玻片 22 mm × 40 mm | Menzel-Glaser | 12352128 | |
| 液体阻断剂 Super PAP 笔迷你装 | Axxora | CAC-DAI-PAP-S-M | |
| Imaris - 显微图像分析软件 | Bitplane | ||
| 共聚焦显微镜 - Olympus FV1200 激光扫描显微镜 | Olympus | ||
| 冷冻切片机 - CM 1900 UV | Leica | ||
| 一次性基底模具 | 费舍尔科学英国有限公司 | 11670990 | |
| PBS 1× | Life Technologies Ltd | 20012068 | |
| BHI 肉汤 | VWR 品牌 | 303415ZA | |
| GFP | 激发波长:484 发射波长:507 | ||
| RFP | 激发波长:558 发射波长:583 | ||
| 胰岛素注射器,带针头,29 G | VWR 国际公司 | BDAM324824 | |
| C57BL/6 野生型小鼠 | 查尔斯河 |
参考文献
- Iwasaki, A., Medzhitov, R. Control of adaptive immunity by the innate immune system. Nature Immunology. 16 (4), 343-353 (2015).
- Harty, J. T., Bevan, M. J. Specific immunity to Listeria monocytogenes in the absence of IFN gamma. Immunity. 3 (1), 109-117 (1995).
- Kubota, K., Kadoya, Y. Innate IFN-gamma-producing cells in the spleen of mice early after Listeria monocytogenes infection: importance of microenvironment of the cells involved in the production of innate IFN-gamma. Frontiers in Immunology. 2 (26), (2011).
- Dunn, P. L., North, R. J. Early gamma interferon production by natural killer cells is important in defense against murine listeriosis. Infection and Immunity. 59 (9), 2892-2900 (1991).
- Krummel, M. F., et al. Paracrine costimulation of IFN-gamma signaling by integrins modulates CD8+ T cell differentiation. Proceedings of the National Academy of Sciences of the United States of America. 115 (45), 11585-11590 (2018).
- Curtsinger, J. M., Agarwal, P., Lins, D. C., Mescher, M. F. Autocrine IFN-gamma promotes naive CD8+ T cell differentiation and synergizes with IFN-alpha to stimulate strong function. Journal of Immunology. 189 (2), 659-668 (2012).
- Hosking, M. P., Flynn, C. T., Whitton, J. L. Antigen-specific naive CD8++ T cells produce a single pulse of IFN-gamma in vivo within hours of infection, but without antiviral effect. Journal of Immunology. 193 (4), 1873-1885 (2014).
- Croxford, A. L., Buch, T. Cytokine reporter mice in immunological research: perspectives and lessons learned. Immunology. 132 (1), 1-8 (2011).
- Gerard, A., et al. Secondary T cell-T cell synaptic interactions drive the differentiation of protective CD8++ T cells. Nature Immunology. 14 (4), 356-363 (2013).
- Engelhardt, J. J., et al. Marginating dendritic cells of the tumor microenvironment cross-present tumor antigens and stably engage tumor-specific T cells. Cancer Cell. 21 (3), 402-417 (2012).
- Matheu, M. P., Cahalan, M. D. Isolation of CD4+ T cells from mouse lymph nodes using Miltenyi MACS purification. Journal of Visualized Experiments. (9), 409(2007).
- Matheu, M. P., Parker, I., Cahalan, M. D. Dissection and 2-photon imaging of peripheral lymph nodes in mice. Journal of Visualized Experiments. (7), 265(2007).
- Pope, C., et al. Organ-specific regulation of the CD8+ T cell response to Listeria monocytogenes infection. Journal of Immunology. 166 (5), 3402-3409 (2001).
- Jones, G. S., D'Orazio, S. E. Listeria monocytogenes: cultivation and laboratory maintenance. Current Protocols in Microbiology. 31, 1-7 (2013).
- Kang, S. J., Liang, H. E., Reizis, B., Locksley, R. M. Regulation of hierarchical clustering and activation of innate immune cells by dendritic cells. Immunity. 29 (5), 819-833 (2008).
- Chang, S. R., et al. Characterization of early gamma interferon (IFN-gamma) expression during murine listeriosis: identification of NK1.1+ CD11c+ cells as the primary IFN-gamma-expressing cells. Infection and Immunity. 75 (3), 1167-1176 (2007).
- Mollenhauer, H. H., Morre, D. J., Rowe, L. D. Alteration of intracellular traffic by monensin; mechanism, specificity and relationship to toxicity. Biochimica et Biophysica Acta. 1031 (2), 225-246 (1990).
- Helms, J. B., Rothman, J. E. Inhibition by brefeldin A of a Golgi membrane enzyme that catalyses exchange of guanine nucleotide bound to ARF. Nature. 360 (6402), 352-354 (1992).
- Schuerwegh, A. J., Stevens, W. J., Bridts, C. H., De Clerck, L. S. Evaluation of monensin and brefeldin A for flow cytometric determination of interleukin-1 beta, interleukin-6, and tumor necrosis factor-alpha in monocytes. Cytometry. 46 (3), 172-176 (2001).
- Nylander, S., Kalies, I. Brefeldin A, but not monensin, completely blocks CD69 expression on mouse lymphocytes: efficacy of inhibitors of protein secretion in protocols for intracellular cytokine staining by flow cytometry. Journal of Immunology Methods. 224 (1-2), 69-76 (1999).
重印与许可
