甲型流感病毒(IAV)是具有传染性的呼吸道病原体,可引起每年的流行和偶发的大流行。本文介绍了一种利用新型重组荧光素酶和荧光双报告甲型流感病毒(BIRFLU)在活体中追踪病毒感染的实验方案。该方法为研究人员提供了在活体内研究甲型流感病毒的优良工具。
本文内容
摘要
摘要
甲型流感病毒(IAV)可引起人类呼吸道疾病,带来严重的健康和经济后果。与其他病毒类似,研究 IAV 需要使用繁琐的间接方法来检测感染细胞和/或动物感染模型中病毒的存在。这一局限性最近已通过构建表达易于追踪的荧光或生物发光(荧光素酶)报告蛋白的重组 IAV 得到克服。然而,由于 IAV 基因组插入外源序列的能力有限,研究人员此前只能在荧光或荧光素酶报告基因之间进行选择。为克服这一限制,我们构建了一种可复制的双报告基因重组 IAV(BIRFLU),能够稳定表达荧光和荧光素酶两种报告基因,从而便于在体外和体内追踪 IAV 感染。为此,我们对甲型流感病毒 A/Puerto Rico/8/34 H1N1(PR8)的病毒非结构蛋白(NS)和血凝素(HA)基因片段进行了改造,分别编码荧光蛋白 Venus 和生物发光蛋白 Nanoluc 荧光素酶。本文描述了在 IAV 感染小鼠模型中使用 BIRFLU 的方法,并利用活体成像系统检测两种报告基因的表达。值得注意的是,我们观察到两种报告基因的表达与病毒复制之间具有良好的相关性。结合分子生物学、动物研究和成像技术的前沿手段,该工具为流感研究提供了独特的机会,包括病毒与宿主相互作用以及病毒感染动态的研究。更重要的是,通过在不同病毒基因片段中插入两个外源基因以实现病毒基因组的遗传改造,为以下应用开辟了新途径:(i)新型 IAV 疫苗的开发;(ii)构建可作为疫苗载体的重组 IAV,用于防治其他人类病原体感染。
引言
甲型流感病毒(IAV)是一种有包膜的单股负链分段RNA病毒,属于Orthomyxoviridae科1,2,3。世界卫生组织(WHO)估计,全球每年有300万至500万例流感病例,因流感导致的死亡人数超过25万4,5,6。流感的高危人群包括老年人、免疫功能低下者以及儿童7,8,9,10,11。尽管已有疫苗,且疫苗是预防病毒感染最常见且最有效的干预手段,但IAV能够快速进化并逃避免疫系统的识别3,12,13,14,15。2009年大流行性H1N1毒株的再次出现以及致病性IAV的不断出现,再次表明其对全球人类公共卫生构成持续威胁4,16。
在疫情或大流行期间,迅速确定新分离病毒的致病性和传播性至关重要。目前可用的病毒检测技术耗时较长,有时还需采用繁琐的方法,这可能会延迟分析的完成17,18,19,20。此外,现有的病毒检测方法难以实现规模化,而在疫情暴发时规模化检测可能是必需的。最后,目前常使用经验证的动物感染模型(如小鼠、豚鼠和雪貂)来研究流感病毒感染、免疫反应以及新型疫苗和/或抗病毒药物的疗效,这些模型至关重要。然而,由于无法实时观察病毒动态,这些模型存在局限性,使得研究仅限于对病毒感染的静态成像21,22,23,24,25。在这些检测中使用的动物还需被实施安乐死以测定病毒载量,从而增加了完成研究所需的动物数量26。为克服上述所有局限,许多研究人员依赖于使用可复制且表达报告基因的重组流感病毒(IAV),这类病毒能够加速病毒学检测,并实现实时体内病毒载量与扩散的检测26,27,28,29,30,31,32,33,34,35,36,37,38,39,40,41。重要的是,这些表达报告基因的IAV在细胞培养和动物感染模型中的复制能力与野生型(WT)IAV相似33,42。
荧光蛋白和生物发光蛋白是研究人员常用的两种报告系统,因其灵敏度高、稳定性好且使用简便。此外,荧光和生物发光蛋白检测技术得到了广泛的支持与发展43,44,45,46,47,48。荧光蛋白与荧光素酶具有不同的发光特性,主要体现在激发态的产生方式以及发射光的检测方法上存在差异43,44,45,46,47,48。荧光蛋白首先通过吸收能量被激发,随后分子从高能态降至低能态时以不同波长的光形式释放能量43。而生物发光则来源于一种涉及底物、氧气,有时还包括ATP的化学放热反应,从而产生光45。由于这两类报告蛋白的性质不同,在特定研究中可能其中一种更具优势。尽管荧光蛋白被广泛用于观察细胞定位28,41,但其在体内的信号强度不足,且常被活体组织的自发荧光所掩盖49。因此,研究人员依赖荧光素酶来评估活体中病毒的动态变化,尽管在离体研究中更倾向于使用荧光蛋白50,51,52,53。与荧光蛋白不同,荧光素酶更适用于在体研究,在非侵入性方法中更具应用价值26,27,28,29,30,31,32,33,34,35,36,37,38,39,40,41,54。最终,研究人员需根据研究类型在荧光蛋白或荧光素酶报告蛋白之间做出选择,这将导致在功能性和灵敏度之间进行权衡,并严重限制重组报告病毒的实用性。此外,还存在关于使用荧光或荧光素酶系统表达的不同报告基因与病毒复制或传播之间相关性的担忧,这可能影响对表达报告基因的IAVs所获得数据的解释。
我们通过构建一种可复制的双报告基因重组甲型流感病毒(BIRFLU),克服了这一局限性,该病毒在同一病毒基因组中同时编码荧光蛋白和荧光素酶蛋白55(图1)。其中,NanoLuc荧光素酶(Nluc)是一种体积小且亮度高的生物发光蛋白48,被插入至甲型流感病毒A/Puerto Rico/08/1934 H1N1(PR8)株的血凝素(HA)基因节段中HA序列的上游24,33,40,55,56,57。此外,Venus(一种常用单体荧光蛋白)被插入病毒非结构(NS)基因节段32,33,36,41,55。由于BIRFLU同时编码荧光和荧光素酶报告基因,因此可任选一种报告蛋白信号作为读数,用于体外或体内病毒复制与传播的检测55。有关BIRFLU的构建及其体外或体内表征的更多详细信息,请参见我们近期发表的论文55。BIRFLU可用于通过一种新型的基于荧光和生物发光的微量中和实验,评估抗病毒药物或中和抗体的有效性55。此外,BIRFLU也可用于在小鼠感染模型中评估病毒动力学55。在本论文中,我们描述了体外表征BIRFLU55的操作流程,以及如何利用活体成像系统检测体内Nluc信号或离体Venus信号,以研究BIRFLU在小鼠中的感染过程。
分子生物学、动物研究和成像技术的前沿方法相结合,为研究人员提供了利用BIRFLU开展甲型流感病毒(IAV)研究的独特机会,包括研究病毒与宿主的相互作用、病毒感染的动态过程;开发用于治疗IAV感染的新型疫苗策略,或探索将IAV作为疫苗载体用于治疗其他病原体感染的潜力。
方案
所有涉及小鼠的实验方案均已获得罗切斯特大学医学与牙科学院机构动物照护与使用委员会(IACUC)以及机构生物安全委员会(IBC)的批准。在动物身上开展的所有实验均遵循美国国家研究委员会《实验动物照护与使用指南》中的建议58。罗切斯特大学医学与牙科学院的动物实验中心及实验动物医学部门已获得国际实验动物评估和认可委员会(AALAC)的认证,并符合联邦与州法律以及美国国立卫生研究院(NIH)的政策要求。在操作小鼠时,必须穿戴适当的个人防护装备(PPE)。各机构在执行本手稿所述实验时,应实施类似的政策与要求。
1. 小型脊椎动物的使用
- 购买5至7周龄的雌性BALB/c小鼠,并在动物饲养设施中以无特定病原体条件进行饲养。小鼠到达指定设施后,给予4–5天的休息期,使其适应新环境。
- 根据IACUC规程,每笼最多放置5只小鼠。
注意:实验结束时,为确保动物死亡,需采用两种经批准的安乐死方法,其中第二种必须为物理方法。在本研究中,小鼠经BIRFLU感染并进行活体成像后,首先使用致死剂量的2,2,2-三溴乙醇(TBE)实施安乐死,随后通过切断肝静脉作为物理性二次方法,该方法我们此前已有报道23。
2. 生物安全
注意:本研究中,BIRFLU 是基于流感病毒 A/Puerto Rico/08/34 H1N1(PR8)骨架构建的,这是一种常见的适应小鼠的实验室流感病毒 A 型(IAV)毒株23,32,33,56。病毒通过先前报道的基于质粒的反向遗传学方法构建,有关 BIRFLU 的构建及其体外和体内特性的完整描述,详见我们近期的出版物55。所有涉及 IAV 感染(体外或体内)的操作均在生物安全二级(BSL-2)条件下,于生物安全柜内进行。
注意:应根据生物安全风险评估确定适当的生物安全等级。有关开展生物安全风险评估和建立有效生物安全防护措施的更多信息,应咨询实验将要进行的机构。
- 在进行所有实验操作前后,使用70%乙醇或二氧化氯消毒剂清洁生物安全柜。对于小鼠实验,在使用前后对所有解剖器械(如剪刀、解剖镊等)以及Dounce匀浆器进行灭菌处理。
- 根据相应的IBC和IACUC指南,妥善处理实验过程中产生的所有生物材料。
3. BIRFLU 的体外表征(图2)
注意:所有缓冲液和培养基的组成请参见 表 1。
- 通过荧光(图2A)和间接免疫荧光(图2B)分析蛋白表达
- 感染前一天,将Madin-Darby犬肾(Madin-Darby Canine Kidney, MDCK)上皮细胞以每孔1 × 10⁵个细胞(三复孔)接种于24孔板中,加入组织培养基,在37 °C、5% CO2的培养箱中培养。准备足够数量的孔,用于在模拟感染和BIRFLU感染的细胞中评估所有选定的抗体。
注意:建议在开始病毒感染前,在光学显微镜下观察细胞,确认形成单层。建议感染时MDCK细胞达到约90%汇合度。 - 将野生型(WT)或BIRFLU IAV病毒在感染培养基中进行稀释,并以每细胞0.1个空斑形成单位(plaque-forming units, PFU)的感染复数(multiplicity of infection, MOI),在每孔0.25 mL的终体积下感染已接种的MDCK细胞。
- 移除步骤3.1.1中的组织培养基,用1×磷酸盐缓冲液(phosphate-buffered saline, PBS)清洗MDCK细胞两次。将步骤3.1.2中制备的病毒稀释液加入MDCK细胞中,并将培养板置于摇床上,室温孵育1小时,以允许病毒吸附。
注意:模拟感染组细胞仅加入感染培养基,不加入病毒。 - 病毒吸附后(步骤3.1.3),通过抽吸移除病毒接种液,每孔加入含1 μg/mL TPCK处理的胰蛋白酶的1 mL感染后培养基。将细胞在33 °C、5% CO2的湿润培养箱中孵育18小时。
- 感染18小时后,从24孔板中移除组织培养上清液(步骤3.1.4)。每孔加入0.25 mL固定/通透溶液,在室温下固定和通透细胞20分钟。
注意:应在通风橱中配制固定/通透溶液,以避免甲醛暴露。 - 移除步骤3.1.5中的固定/通透溶液,用1× PBS清洗细胞两次,每孔加入0.25 mL封闭液,在室温下孵育1小时。
注意:可立即进行下一步操作,或将细胞在4 °C下用封闭液保存过夜。 - 移除封闭液(步骤3.1.6),每孔加入0.25 mL(1 µg/mL)针对IAV核蛋白(nucleoprotein, NP)的小鼠单克隆抗体(monoclonal antibody, MAb)HB-65,或1:1,000稀释的针对NLuc的兔多克隆抗体(polyclonal antibody, pAb)(见材料表),抗体均用抗体稀释液(1× PBS,2.5% BSA)稀释,37 °C孵育1小时。
- 移除步骤3.1.7中的一抗,用1× PBS清洗细胞三次,每孔加入0.25 mL用抗体稀释液1:200稀释的Texas Red标记的抗小鼠或抗兔二抗(见材料表)。
注意:可在同一二抗溶液中加入0.5 µg/mL的4’,6’-二脒基-2-苯基吲哚(4’,6’-diamidino-2-phenylindole, DAPI)同时对细胞核进行染色。37 °C避光孵育1小时。也可使用其他荧光染料标记的二抗。 - 移除步骤3.1.8中的二抗和DAPI,用1× PBS清洗细胞三次。清洗后,每孔保留0.25 mL的1× PBS。
- 将培养板置于荧光显微镜载物台上,使用适当的荧光滤光片检测Venus和Nluc报告基因的表达以及感染细胞中的NP蛋白。使用荧光显微镜(20倍放大)采集图像,并使用图像编辑软件进行合并(图2A、B)。
- 感染前一天,将Madin-Darby犬肾(Madin-Darby Canine Kidney, MDCK)上皮细胞以每孔1 × 10⁵个细胞(三复孔)接种于24孔板中,加入组织培养基,在37 °C、5% CO2的培养箱中培养。准备足够数量的孔,用于在模拟感染和BIRFLU感染的细胞中评估所有选定的抗体。
- 分析Nluc活性(图2C)和病毒复制情况(图2D)
- 感染前一天,使用组织培养基将MDCK细胞以每孔2 × 10⁵个细胞(三复孔)接种于12孔板中,在37 °C、5% CO2的培养箱中培养,使感染时细胞汇合度约为90%。
注意:感染前应在显微镜下检查细胞,确认MDCK细胞形成单层。 - 感染当天,在感染培养基中稀释野生型(WT)和BIRFLU病毒,以0.001 PFU的MOI、每孔0.5 mL的体积对MDCK细胞(步骤3.2.1)进行三复孔感染。移除组织培养基,并用1× PBS清洗MDCK细胞两次。
- 将病毒稀释液加入MDCK单层细胞中,在摇床上室温孵育1小时以允许病毒吸附。病毒吸附后,移除病毒接种液,每孔加入含1 μg/mL TPCK处理的胰蛋白酶的1.5 mL感染后培养基。将感染细胞置于33 °C、5% CO2的湿润培养箱中孵育,并在步骤3.2.4指定的时间点收集上清液。
- 在感染后24、48、72和96小时(p.i.),从每孔收集150 µL组织培养上清液,将样品置于微量离心管中,于-80 °C保存,用于后续Nluc活性检测和病毒滴度测定。
- 进行Nluc活性检测时,请遵循制造商的操作说明。首先将-80 °C保存的组织培养上清液(步骤3.2.4)置于冰上解冻。
注意:请参考制造商的建议,必要时对检测条件进行优化。 - 通过将Nluc底物用稀释缓冲液1:50稀释,配制荧光素酶检测溶液(见材料表)。在用于荧光素酶检测的白色平底96孔微孔板中,将25 µL荧光素酶检测溶液与10至25 µL收集的组织培养上清液样品混合。混合后孵育2–3分钟,然后使用发光仪检测发光信号(图2C)。
注意:组织培养上清液中是否存在感染性病毒颗粒,可通过荧光免疫焦点检测(Venus)或间接免疫荧光(病毒抗原染色)确定,方法如前所述23,32,33,56。 - 病毒滴度测定前一天,将MDCK细胞以每孔2 × 10⁴个细胞(三复孔)接种于96孔板中,加入组织培养基,在37 °C、5% CO2的培养箱中培养,使感染时细胞汇合度达到约90%。
- 使用在冰上解冻的组织培养上清液样品(步骤3.2.4)。在新的96孔板中,每孔加入90 μL感染培养基,然后向第一排(A排)孔中加入10 μL解冻的组织培养上清液(步骤3.2.4)。使用多通道移液器混匀后,将10 μL从A排转移至B排。每次稀释均更换吸头并充分混匀。
注意:应重复此操作直至最后一排(H排)。建议病毒滴度测定设置三复孔,以准确测定病毒滴度。 - 移除96孔板中MDCK细胞的组织培养基(步骤3.2.7),用1× PBS清洗两次。将含有病毒稀释液的复制96孔板中的上清稀释液(步骤3.2.8),每孔50 µL加入含MDCK细胞的96孔板中。
- 将96孔板置于摇床上,室温孵育1小时以允许病毒吸附。病毒吸附后,移除接种液,每孔加入含1 μg/mL TPCK处理的胰蛋白酶的100 μL感染后培养基。将感染细胞在33 °C、5% CO2的培养箱中孵育12小时。
- 由于BIRFLU表达Venus,可直接使用荧光显微镜计数感染细胞数量。或者,如前所述,可通过间接免疫荧光法使用针对病毒蛋白的抗体测定病毒滴度23,56,57,59。若采用后者,请按照第4.4节所述方法,使用抗NP单抗HB-65对细胞进行固定/通透和染色。
- 使用以下公式通过计数荧光形成单位(fluorescent-forming units, FFU)/mL来确定病毒滴度:(FFU数量)× 20 × 1/稀释倍数(图2D)。
- 感染前一天,使用组织培养基将MDCK细胞以每孔2 × 10⁵个细胞(三复孔)接种于12孔板中,在37 °C、5% CO2的培养箱中培养,使感染时细胞汇合度约为90%。
4. BIRFLU的体内表征(图3 和 图4)
- 小鼠感染
注意:小鼠的鼻内感染操作如先前所述23。有关使用小鼠感染模型进行甲型流感病毒(IAV)体内感染的更详细方案,我们建议观看与先前发表文章相关的视频23。本节仅总结使用BIRFLU感染小鼠所需的步骤。- 检查小鼠的健康状况和整体外观。用1×PBS配制BIRFLU稀释液,使每只小鼠接种总量为30 μL,含1 × 10⁶ PFU的BIRFLU。在接种前将病毒置于冰上保存。
注意:需要设置模拟感染(1×PBS)小鼠作为成像的内部对照。将模拟感染小鼠与BIRFLU感染动物分笼饲养。 - 通过将针头插入腹部右侧后段2/3处,对5至7周龄的雌性BALB/c小鼠腹腔注射240–250 mg/kg的三溴乙醇(TBE)进行麻醉。然后将小鼠放回笼中,等待约5分钟。在接种病毒前,通过检测脚趾夹捏反射是否消失来确认小鼠已完全麻醉。
注意:对于体内流感病毒感染,推荐使用注射类镇静剂而非吸入类镇静剂,因为后者可能改变病毒在呼吸道上皮中的行为和摄取。此外,吸入类镇静剂还可能影响肺部的局部免疫反应,并干扰感染小鼠的活体成像。最后,吸入类镇静剂的作用持续时间较短,这会对感染动物的活体成像造成问题。 - 通过鼻内途径向小鼠接种30 μL已配制好的BIRFLU稀释液。在将小鼠放回笼子前,确认其呼吸正常。
- 检查小鼠的健康状况和整体外观。用1×PBS配制BIRFLU稀释液,使每只小鼠接种总量为30 μL,含1 × 10⁶ PFU的BIRFLU。在接种前将病毒置于冰上保存。
- BIRFLU感染小鼠的生物发光监测(图4A)
注意:本研究中,BIRFLU感染小鼠肺部的Nluc或Venus报告基因表达及病毒复制情况在感染后第3天进行测定。然而,生物发光成像的特性允许在不处死动物的情况下,对单个BIRFLU感染小鼠体内的Nluc表达进行重复监测。执行所述实验程序需要配备异氟烷麻醉系统的活体成像系统。有关成像仪器和用于图像采集与数据分析的图像软件的详细信息,请参见材料表。- 剃除小鼠胸部毛发以增强生物发光信号。打开成像软件并点击初始化。随后设置将使用的参数,包括将成像模式设为生物发光、自动保存、曝光时间设为自动、滤光片设为开放等。
- 当仪器完全初始化后,打开异氟烷麻醉系统。将动物放入麻醉舱中,同时使用氧气和1–2%气化异氟烷的混合气体对小鼠进行轻度麻醉。
- 小鼠麻醉后,使用22 G针头的注射器经眶后途径注射Nluc底物(见材料表),该底物用1×PBS按1:10稀释(最终体积为100 µL/只小鼠)。
- Nluc试剂注射后立即把动物放入成像仪中,胸部朝上,鼻部置于麻醉管路锥形接口内,以在成像期间维持麻醉状态。关闭成像仪门后,立即在软件程序中点击采集(图4A,顶部)。
- 成像完成后,将小鼠放回笼中并监测直至其完全恢复,然后关闭异氟烷蒸发器。接着进行小鼠肺组织的离体成像,以评估Venus报告基因的表达(第4.3节)。
- 使用成像软件工具分析所获得的生物发光数据。使用ROI(感兴趣区域)工具划定特定信号区域,并在感兴趣区域(通常位于胸部附近)进行通量测量(图4A,底部)。尽管ROI形状无关紧要,但通常更倾向于使用较大的ROI以捕获整个信号扩散区域。
- 点击测量。以光子数评估生物发光强度,因为它提供了绝对的光子发射量测量值,可与不同参数或成像仪器输出的测量结果进行比较。
- BIRFLU感染小鼠的荧光分析(图3 和 图4B)
- 如前所述23,在活体成像后采集小鼠肺组织。
- 简要而言,使用致死剂量的TBE(500 mg/kg)处死小鼠。用70%乙醇对切口部位进行消毒。使用手术刀从胸骨处切至腹部基部,然后用剪刀从切口底部向两侧剪开。接着剪断肝静脉(第二种物理性安乐死方法)以放血。
注意:为避免成像过程中背景信号过高,重要的是尽量减少肺组织中的血液含量(见下文)。
- 简要而言,使用致死剂量的TBE(500 mg/kg)处死小鼠。用70%乙醇对切口部位进行消毒。使用手术刀从胸骨处切至腹部基部,然后用剪刀从切口底部向两侧剪开。接着剪断肝静脉(第二种物理性安乐死方法)以放血。
- 将小鼠置于仰卧位,用剪刀剪开胸膜并打开肋骨 cage。随后用镊子轻轻夹住肺组织,用剪刀剪断气管末端以取出肺组织。
- 将肺组织放入含2 mL 1×PBS的六孔板中,并用1×PBS清洗肺组织三次。
注意:为避免样本间交叉污染,每处理一只动物后需清洁并消毒解剖工具。
- 将肺组织放入含2 mL 1×PBS的六孔板中,并用1×PBS清洗肺组织三次。
- 点击初始化启动图像采集软件,并设置成像参数,包括将成像模式设为荧光、启用自动保存、曝光时间设为自动、激发波长(500 nm)和发射波长(540 nm)滤光片。
- 当仪器初始化完成后,将肺组织放置于黑色背景托盘中,确保各组织彼此分离,将托盘放入成像仪,在关闭成像仪门后点击成像系统程序中的采集(图4B,顶部)。
- 成像后立即取出组织,若当天处理样本,则将其置于冰上(4 °C)保存;若需在后续不同日期处理,则应将组织放入管中并用干冰快速冷冻,随后储存在-80 °C。
- 进行图像处理时,选择ROI工具并在每侧肺组织周围绘制ROI。点击测量。然后,利用所得的平均辐射效率测量值,减去模拟感染小鼠的数值(图4B,底部)。
注意:使用BIRFLU时,Nluc和Venus的表达水平及信号分布具有良好相关性。因此,重要的是分析来自同一只动物的Nluc(整只小鼠)和Venus(离体肺组织)表达,并保持相同的方向。
- 如前所述23,在活体成像后采集小鼠肺组织。
- 评估BIRFLU在小鼠肺组织中的复制情况(图3 和 图4C)
- 如前所述23,通过空斑试验对小鼠肺组织进行匀浆以测定病毒滴度。
- 将肺组织放入含1 mL预冷感染培养基的Dounce匀浆器中。在室温下用研杵匀浆1分钟,直至组织完全解离,然后将样品置于4 °C的无菌管中保存。
- 将样品在300 x g条件下离心10分钟,并将上清液收集至无菌管中。若样品当天使用,则置于冰上保存;若需在后续时间测定病毒滴度,则应将其在-80 °C冷冻保存。
注意:每个肺组织样本应使用新的Dounce匀浆器。 - 为进行空斑试验,在进行病毒滴定前一天,用组织培养基在六孔板中接种MDCK细胞(每孔5 × 10⁵个细胞)。在37 °C、5% CO2条件下培养过夜,使细胞次日达到90%汇合度。感染前,在光学显微镜下确认细胞形成单层。
- 用感染培养基对匀浆样品(步骤4.4.1)的上清液进行1:10系列稀释。准备若干微量离心管,每管加入540 µL感染培养基,向第一管中加入60 µL匀浆肺组织样品,通过反复吹打混匀,然后使用新的枪头将60 µL转移至下一管。重复此系列稀释过程直至完成最终稀释。
注意:根据我们的经验,7个稀释梯度足以通过空斑试验测定感染小鼠肺组织中的病毒滴度。 - 用1×PBS清洗MDCK细胞(步骤4.4.3)两次,并将系列稀释后的样品各500 µL加入六孔板的每孔中。将板置于摇床上,在室温下孵育1小时以允许病毒吸附。
- 病毒吸附1小时后,移除病毒接种液,每孔加入2 mL含1 μg/mL TPCK处理的胰蛋白酶的覆盖培养基,然后在33 °C、5% CO2条件下孵育3天。
- 用含4%甲醛的1×PBS在室温下固定感染细胞(步骤4.4.6)2小时,随后小心移除覆盖培养基,并向每孔加入1 mL 1×PBS。为观察Venus表达,使用成像系统对六孔板进行荧光检测成像。
注意:可使用图像编辑软件对病毒空斑进行着色(见材料表)。 - 为评估Nluc表达,使用抗Nluc多克隆抗体(pAb)通过免疫染色观察病毒空斑。具体操作为:移除1×PBS,每孔加入0.5 mL通透液,在室温下通透15分钟。
- 移除通透液,用1×PBS清洗细胞三次,每孔加入0.5 mL封闭液,在室温下封闭1小时。
- 移除步骤4.4.9中的封闭液,每孔加入0.5 mL用稀释液按1:1,000稀释的抗Nluc pAb,在37 °C孵育1小时。
- 按照制造商推荐方法,使用ABC碱性磷酸酶试剂盒和DAB过氧化物酶底物试剂盒对表达Nluc的空斑进行显色。
- 简要而言,将步骤4.4.10的细胞用1×PBS清洗三次,每孔加入0.5 mL生物素化二抗(抗兔IgG),在37 °C孵育1小时。
- 移除二抗,用1×PBS清洗细胞三次,每孔加入ABC溶液,在37 °C孵育1小时。再次用1×PBS清洗三次,使用DAB HRP底物试剂盒显色病毒空斑。使用常规扫描仪扫描免疫染色后的空斑。
注意:也可使用其他类似的免疫染色试剂盒。
- 用结晶紫溶液在室温下染色病毒空斑1小时。弃去结晶紫溶液,用清水清洗板三次,待板干燥后再次扫描。
- 为测定病毒滴度,计数经结晶紫染色后显现的空斑。使用常规扫描仪扫描空斑,并计算病毒滴度,单位为每毫升空斑形成单位(PFU/mL)。
- 为评估BIRFLU在体内的稳定性,通过计数结晶紫染色的空斑数量(即感染性病毒数量,步骤4.4.12)并与Venus和Nluc表达空斑数量(分别为步骤4.4.7和步骤4.4.11)进行比较,计算报告基因表达病毒的比例。
- 将样品在300 x g条件下离心10分钟,并将上清液收集至无菌管中。若样品当天使用,则置于冰上保存;若需在后续时间测定病毒滴度,则应将其在-80 °C冷冻保存。
结果
体外生成与表征BIRFLU(图1和图2)
利用先进的分子生物学和基于质粒的反向遗传学技术,构建了一种表达两种不同报告基因的重组复制型流感病毒(BIRFLU)(图1)。本研究选择使用Nluc,因其相较于其他荧光素酶具有多项优势,包括分子量小、不依赖ATP、发光强度更高以及底物经过优化48,60。将Nluc插入流感病毒PR8株的HA基因片段中,并在其后连接猪捷申病毒(PTV)2A蛋白自切割位点(2A),位于HA开放阅读框(ORF)之前(图1)。HA的开放阅读框中引入了沉默突变,以消除原有的包装信号,避免可能发生的重组。在Nluc前方添加完整的HA包装信号,以确保修饰后的HA基因片段能正确整合至病毒粒子中,并实现Nluc与HA从同一条病毒RNA片段上的共表达(图1)。此外,将荧光蛋白Venus插入经修饰的流感病毒PR8株NS基因片段中,该片段可通过单一转录本编码两种病毒蛋白NS1和NEP32,36,41,54,57。为此,Venus与NS1的C末端融合,而完整的NEP开放阅读框则克隆至PTV 2A切割位点的下游,该切割位点位于NS1-Venus与NEP序列之间(图1)。最终,将上述修饰的HA和NS病毒质粒构建体与其余IAV PR8反向遗传学质粒共同使用,以生成BIRFLU病毒(图1)。BIRFLU的体外和体内特性此前已有描述55。
在图2中,我们通过荧光检测和间接免疫荧光方法测定Venus、Nluc和NP的表达水平,对BIRFLU在体外的特性进行了表征(图2A、B)。将MDCK细胞培养至形成融合单层后,分别用野生型(WT)或BIRFLU PR8病毒(感染复数MOI为0.1)感染,或进行模拟感染。感染后18小时,通过荧光显微镜直接评估Venus的表达(图2A,B)。Nluc(图2A)和NP(图2B)的表达则通过针对各自蛋白的特异性抗体进行间接免疫荧光检测。正如预期,Venus和Nluc仅在BIRFLU感染的细胞中被检测到,而在野生型PR8病毒感染的细胞中未检测到。此外,间接免疫荧光显微镜结果显示,NP在野生型和BIRFLU PR8感染的细胞中均有表达。如预期,在模拟感染的细胞中未检测到Venus、Nluc或NP的表达(图A,B)。
为了在体外评估 Nluc 的表达水平,使用野生型(WT)或 BIRFLU PR8 病毒(感染复数 MOI 为 0.001)感染 MDCK 细胞,并在感染后 24、48、72 和 96 小时检测组织培养上清液中的 Nluc 活性(图 2C)。仅在感染 BIRFLU 的 MDCK 细胞的组织培养上清液中检测到 Nluc 活性(图 2C)。在感染后 24 小时即可检测到组织培养上清液中的 Nluc 活性,且在感染后 96 小时表达水平更高,这很可能是因为病毒感染诱导的细胞病变效应(CPE)释放了原本保留在细胞内的 Nluc 蛋白。为了评估 BIRFLU 在培养细胞中的适应性,还分析了野生型和 BIRFLU PR8 病毒的生长动力学(图 2D),并通过免疫灶点实验测定组织培养上清液中是否存在具有感染性的病毒(图 2D)。值得注意的是,BIRFLU 的复制动力学与野生型 PR8 病毒相似,尽管其复制略有延迟,且未达到野生型 PR8 病毒的相同病毒滴度。然而,BIRFLU 能够达到 5 × 10⁷ PFU/mL 的滴度(图 2D),表明在病毒基因组中表达两个报告基因不会显著干扰 BIRFLU 在 MDCK 细胞中的复制。
在小鼠中追踪 BIRFLU 感染(图 3 和 图 4)
图3 是在流感病毒(IAV)感染小鼠模型中评估BIRFLU动态的示意图流程。将5至7周龄的雌性BALB/C小鼠用1×PBS进行假感染,或通过鼻内接种1×106 PFU的BIRFLU进行感染。感染后第3天,用异氟烷麻醉小鼠,随后经眼后静脉注射Nluc底物。所有小鼠立即放入IVIS仪器中,使用IVIS在活体状态下检测Nluc信号。接着,处死小鼠并取出肺组织。切除的肺组织随后使用活体成像仪进行离体分析,通过Venus表达测定荧光强度。最后,将小鼠肺组织匀浆,通过空斑实验测定病毒滴度和稳定性。空斑通过Venus的直接荧光、针对Nluc的特异性抗体免疫染色以及结晶紫染色进行检测。
此前报道的具有复制能力的报告基因表达型 IAV 仅表达单一报告基因,最常见的是荧光蛋白或生物发光蛋白,用以替代指示病毒感染与复制。然而,BIRFLU 能够在病毒感染后同时表达这两类报告基因。为评估 BIRFLU 感染后生物发光(活体成像)与荧光(离体成像)之间的相关性,将 5 至 7 周龄的雌性 BALB/c 小鼠以 1× PBS 进行假感染,或经鼻接种 BIRFLU(106 PFU)。在感染后第 3 天,通过眼眶后注射 Nluc 底物,并使用活体成像仪器检测 Nluc 活性(图 4A)。我们选择在第 3 天检测生物发光,因为先前研究表明 IAV(包括 PR8 毒株)的复制高峰出现在感染后第 2 至第 4 天24,54。生物发光信号被监测(图 4A,上图),并用于计算平均总通量(Flux(log10 p/s))(图 4A,下图)。如预期所示,接种 BIRFLU 的小鼠表现出强烈的生物发光信号,而假感染小鼠未检测到任何信号。随后,采集感染小鼠的肺组织,通过离体成像检测 Venus 表达(图 4B,上图)。此外,还计算了荧光平均辐射效率(图 4B,下图)。同时将切除的小鼠肺组织进行匀浆处理,以测定病毒滴度及 BIRFLU 在体内的遗传稳定性(图 4C、D)。通过噬斑实验分析 BIRFLU 的遗传稳定性,利用从小鼠肺组织中分离的病毒进行噬斑形成,并结合荧光显微镜(Venus,上图)、免疫染色(Nluc,中图)和结晶紫染色(下图)进行分析。从小鼠肺组织中回收的 BIRFLU 能够形成噬斑,并稳定表达两种报告基因(图 4C)。值得注意的是,我们观察到生物发光与荧光信号均与病毒复制水平具有良好的相关性。
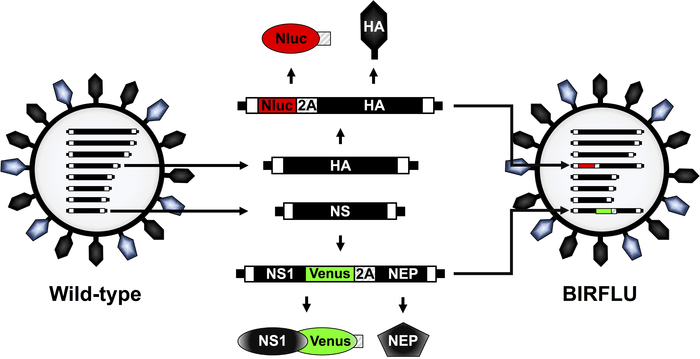
图1:IAV PR8 野生型与BIRFLU病毒颗粒结构及基因组片段的示意图。 IAV被含有两种主要病毒糖蛋白血凝素(HA;黑色)和神经氨酸酶(NA;蓝色)的脂双层包被。IAV包含八个单链负义RNA片段(PB2、PB1、PA、HA、NP、NA、M 和 NS)。每个病毒片段在3’和5’端均含有非编码区(NCR)(黑色方框)。此外,在病毒(v)RNA的3’和5’端还存在包装信号,负责将vRNA高效地包裹进新生病毒颗粒中(白色方框)。IAV PR8的HA和NS病毒片段及其表达产物以黑色表示。Nluc、Venus和PTV 2A的序列分别以红色、绿色和条纹方框表示。图中还示出了BIRFLU病毒中分别表达Nluc和Venus的修饰后HA和NS片段的示意图。本图改编自Nogales 等人55。请点击此处查看此图的放大版本。

图 2:BIRFLU 的体外表征。(A、B)通过直接荧光和免疫荧光分析蛋白表达。MDCK 细胞经模拟感染或以 PR8 WT 或 BIRFLU 病毒感染(MOI 0.1)。感染后 18 小时固定细胞,通过直接荧光显微镜直接观察 Venus 表达,并利用特异性抗体通过间接免疫荧光检测 Nluc(A)和病毒 NP(B)的表达。细胞核用 DAPI 染色。展示代表性图像(20 倍放大)。比例尺 = 100 μm。(C、D)PR8 WT 与 BIRFLU 的生长动力学。在感染后指定时间点检测以 WT 和 BIRFLU PR8 病毒感染(MOI 0.001)的 MDCK 细胞培养上清液中的 Nluc 活性(C)和病毒滴度(D)。数据表示三次重复的平均值 ± 标准差。病毒滴度通过免疫焦点法(FFU/mL)测定。虚线表示检测下限(200 FFU/mL)。本图改编自 Nogales 等人55。请点击此处查看此图的放大版本。
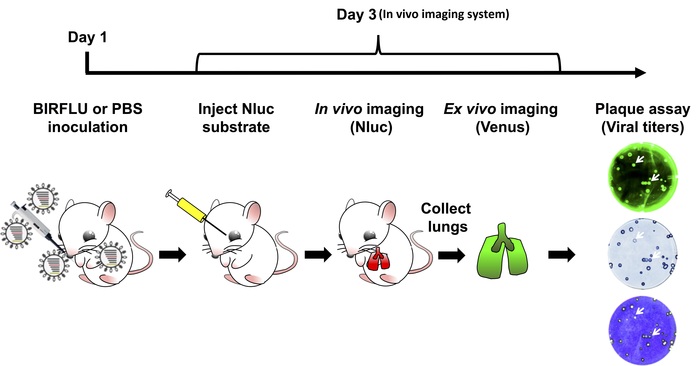
图3:BIRFLU在小鼠体内研究的示意图。 通过活体或离体成像,检测了感染1 × 10⁶ PFU BIRFLU的小鼠体内Nluc和Venus报告基因的表达。简言之,在第1天,将5至7周龄的雌性BALB/c小鼠分为两组,一组以1×PBS进行假感染,另一组通过鼻内接种1 × 106 PFU的BIRFLU病毒。感染后第3天,使用异氟烷对小鼠进行轻度麻醉,并通过眼眶后注射Nluc底物。随后利用活体成像直接评估Nluc信号。成像后立即处死小鼠,通过离体成像分析完整摘除肺组织中Venus的表达。取出的肺组织被匀浆化,用于通过蚀斑实验评估病毒复制能力与稳定性。箭头表示荧光(Venus)、免疫染色(Nluc)与结晶紫染色之间的对应关系。请点击此处查看该图的放大版本。
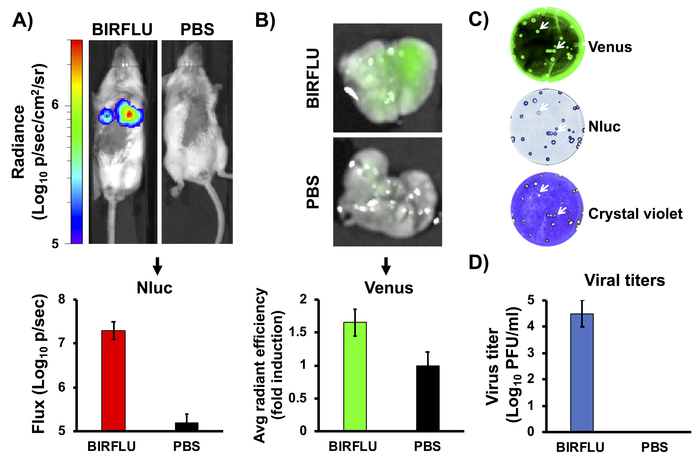
图 4:体内生物发光与荧光表达。 使用 1× PBS 假感染或经鼻接种 1 × 10⁶ PFU BIRFLU 病毒的 5 至 7 周龄雌性 BALB/c 小鼠,在感染后第 3 天检测整只小鼠的 Nluc 活性(A)。图中显示单只小鼠的代表性图像,颜色标尺表示辐射通量(p/sec/cm2/sr)。对生物发光辐射值进行定量分析,并展示平均总通量(Flux (Log10 p/s))。Nluc 成像完成后,取小鼠肺组织进行离体成像(B)。图中显示完整肺组织的代表性图像。为定量 Venus 表达水平,将感兴趣区域(ROIs)的平均值标准化至假感染小鼠肺组织的自发荧光,并计算倍数变化。为分析 BIRFLU 在体内的遗传稳定性,从感染小鼠肺组织中回收病毒,通过噬斑实验结合荧光显微镜(Venus,上图)、免疫染色(Nluc,中图)和结晶紫染色(下图)进行分析(C)。图中显示来自一只小鼠的代表性图像。为评估病毒复制能力,成像后将整肺组织匀浆,用于感染 MDCK 细胞,并通过噬斑实验测定病毒滴度(PFU/mL)(D)。箭头指示荧光(Venus)、免疫染色(Nluc)与结晶紫染色结果之间的对应关系。柱状图表示肺组织病毒滴度的均值 ± 标准差(SD)。本图改编自 Logales 等人55。请点击此处查看该图的放大版本。
| 组织培养基与溶液 | 成分 | 储存条件 | 用途 |
| 组织培养基:Dulbecco 改良 Eagle 培养基(DMEM),10% 胎牛血清(FBS),1% 青霉素-链霉素-L-谷氨酰胺(PSG)(DMEM 10% FBS 1% PSG)。 | 445 ml DMEM,50 mL FBS 和 5 mL 100x PSG。 | 4 °C | MDCK 细胞的维持培养 |
| 感染后培养基:DMEM 0.3% 牛血清白蛋白(BA),1% PSG(DMEM 0.3% BA 1% PSG)。 | 491 ml DMEM,4.2 ml 35% BA 和 5 ml 100x PSG | 4 °C | 病毒感染后 MDCK 细胞的维持 |
| 10x 磷酸盐缓冲液(PBS) | 80 g NaCl,2 g KCl,11.5 g Na2HPO4·7H2O,2 g KH2PO4,加 ddH2O 至 1 L,调节 pH 至 7.3 | 室温 | 用于配制 1x PBS |
| 1x PBS | 将 10x PBS 用 ddH2O 稀释 | 室温 | 洗涤细胞 |
| 感染用培养基:1x PBS,0.3% 牛血清白蛋白(BA),1% 青霉素-链霉素(PS)(PBS/BA/PS)。 | 487 mL 无菌 1x PBS,4.2 mL 35% BA 和 5 mL 100x 1% PS(100 U/mL) | 4 °C | 病毒感染实验 |
| 固定/透化溶液:4% 甲醛,0.5% Triton X-100,溶于 1x PBS。 | 400 mL 10% 中性缓冲甲醛,5 mL Triton X-100 和 595 mL 1x PBS | 室温 | MDCK 细胞的固定与透化 |
| 封闭液:1x PBS 中含 2.5% 牛血清白蛋白(BSA)。 | 2.5 g BSA 溶于 97.5 mL 1x PBS | 4 °C | 免疫荧光与蚀斑实验的封闭液 |
| 抗体稀释液(1% BSA 溶于 1x PBS) | 1 g BSA 溶于 99 mL 1x PBS | 4 °C | 一抗与二抗的稀释 |
| 0.1% 结晶紫溶液 | 1 g 结晶紫溶于 400 mL 甲醇,加入 600 mL ddH2O | 室温 | 蚀斑实验中 MDCK 细胞的染色 |
| 经 TPCK 处理的胰蛋白酶(TPCK-treated trypsin) | 用 ddH2O 配制成 1,000 倍浓缩液,浓度为 1 mg/mL | -20 °C | 用于病毒感染实验 |
表1:组织培养基与溶液。
讨论
研究人员一直依赖表达报告基因的重组病毒作为重要的分子工具,以加深并拓展对病毒复制和致病机制的现有认知26,27,28,29,30,31,32,33,34,35,36,37,38,39,40,41,54。其中最常选用的报告基因是荧光素酶和荧光蛋白,主要得益于这些基因在鉴定、改良变体开发以及成像技术检测方面的技术进步43,44,45,46,47,48。重组报告病毒常被用于加速病毒学检测,研究病毒在体外和体内感染的动态过程,以及评估已获批或新型疫苗与治疗策略的有效性26,27,28,29,30,31,32,33,34,35,36,37,38,39,40,41,54。然而,对于甲型流感病毒(IAV),以往的研究仅限于表达单一报告基因,这限制了可开展的研究类型26,27,28,29,30,31,32,33,34,35,36,37,38,39,40,41,54。为克服这一局限,我们构建了一种具有复制能力的双报告基因IAV,可同时表达Nluc荧光素酶和Venus荧光蛋白(BIRFLU)。
本报告中,我们描述了BIRFLU的体外表征及其在流感病毒A(IAV)感染小鼠模型中用于追踪病毒感染的体内实验方法。BIRFLU的Nluc和Venus表达水平与病毒滴度呈正相关。此外,从感染小鼠肺组织中回收的BIRFLU仍保持稳定,并持续表达两种报告基因。该方法为研究人员提供了在培养细胞和动物模型中研究IAV的优良机会,包括鉴定和开发治疗IAV感染的新治疗策略。
尽管BIRFLU是使用PR8的骨架构建的,但也可采用相同的实验方法,利用不同型别、亚型或病毒株骨架来生成其他重组IAV。同样,本报告中描述了在小鼠IAV模型中使用BIRFLU的实验步骤。然而,BIRFLU也可能成为评估其他动物模型中IAV感染的一项重要技术。
披露
作者无任何利益冲突需要披露。
致谢
LM-S实验室对流感病毒的研究部分由纽约流感卓越中心(NYICE)(美国国立卫生研究院 272201400005C)资助,该中心隶属于美国国家过敏与传染病研究所流感研究与监测卓越中心(CEIRS)合同编号HHSN272201400005C(NYICE),并得到美国国防部(DoD)同行评审医学研究计划(PRMRP)基金W81XWH-18-1-0460的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 12孔细胞培养板 | Greiner Bio-one | 665102 | |
| 24孔细胞培养板 | Greiner Bio-one | 662160 | |
| 6孔细胞培养板 | Greiner Bio-one | 657160 | |
| 96孔细胞培养板 | Greiner Bio-one | 655-180 | |
| Adobe Photoshop CS4 | Adobe | 该软件用于3.1.10和4.4.7 | |
| 牛血清白蛋白溶液(BA) | Sigma-Aldrich | A7409 | 4 °C保存 |
| 牛血清白蛋白(BSA) | Sigma-Aldrich | A9647 | 4 °C保存 |
| 100 mm细胞培养皿 | Greiner Bio-one | 664-160 | |
| ChemiDoc MP成像系统 | BioRad | 该仪器用于4.4.7 | |
| 结晶紫 | Thermo Fisher Scientific | C581-100 | 室温保存 |
| Dounce组织研磨器 | Thomas Scientific | 7722-7 | |
| Dulbecco’s改良Eagle’s培养基(DMEM) | Corning Cellgro | 15-013-CV | 4 °C保存 |
| 胎牛血清(FBS) | Seradigm | 1500-050 | -20 °C保存 |
| 5至7周龄雌性BALB/c小鼠 | 国家癌症研究所(NCI) | 555 | |
| 异氟烷 | Baxter | 1001936040 | 室温保存 |
| IVIS Spectrum | PerkinElmer | 124262 | 该仪器用于活体成像(4.2和4.3) |
| IX81电动倒置显微镜 | Olympus | Olympus IX81 | |
| Living Image 4.7.2软件 | PerkinElmer | 该软件用于活体成像(4.2和4.3) | |
| Lumicount | Packard | 该仪器用于定量检测荧光素酶活性(3.2.6) | |
| Madin-Darby犬肾(MDCK)上皮细胞 | ATCC | CCL-34 | |
| 单克隆抗体抗甲型流感病毒NP HB-65 | ATCC | H16-L10-4R5 | -20 °C保存 |
| Nano-Glo荧光素酶检测试剂 | Promega | N1110 | 该试剂用于检测Nluc活性。-20 °C保存 |
| 10%中性缓冲福尔马林 | EMD | 65346-85 | 室温保存 |
| Nunc MicroWell 96孔微孔板 | Thermo Fisher Scientific | 269620 | |
| 青霉素/链霉素(PS)100倍浓缩液 | Corning | 30-00-CI | -20 °C保存 |
| 青霉素/链霉素/L-谷氨酰胺(PSG)100倍浓缩液 | Corning | 30-009-CI | -20 °C保存 |
| Retiga 20000R Fast1394相机 | Qimaging | Retiga 2000R | |
| 扫描仪 | HP | ||
| 德克萨斯红标记的抗小鼠/抗兔二抗 | Jackson | 715-075-150 | -20 °C保存 |
| TPCK处理的胰蛋白酶 | Sigma-Aldrich | T8802 | -20 °C保存 |
| Triton X-100 | J.T.Baker | X198-07 | 室温保存 |
| Vmax动力学微孔板读数仪 | Molecular Devices |
参考文献
- Palese, P., Shaw, M. L. Orthomyxoviridae: The Viruses and Their Replication. Fields Virology. Knipe, D. M., Howley, P. M., Griffin, D. E., Lamb, R. A., Martin, M. A. , 5th edition, Lippincott Williams and WIlkins. (2007).
- Martinez-Sobrido, L., Peersen, O., Nogales, A. Temperature Sensitive Mutations in Influenza A Viral Ribonucleoprotein Complex Responsible for the Attenuation of the Live Attenuated Influenza Vaccine. Viruses. 10 (10), (2018).
- Nogales, A., Martinez-Sobrido, L. Reverse Genetics Approaches for the Development of Influenza Vaccines. International Journal of Molecular Sciences. 18 (1), (2016).
- Neumann, G., Noda, T., Kawaoka, Y. Emergence and pandemic potential of swine-origin H1N1 influenza virus. Nature. 459 (7249), 931-939 (2009).
- Louie, J. K., et al. A review of adult mortality due to 2009 pandemic (H1N1) influenza A in California. PLoS One. 6 (4), e18221(2011).
- Barr, I. G., et al. Epidemiological, antigenic and genetic characteristics of seasonal influenza A(H1N1), A(H3N2) and B influenza viruses: basis for the WHO recommendation on the composition of influenza vaccines for use in the 2009-2010 Northern Hemisphere season. Vaccine. 28 (5), 1156-1167 (2010).
- Simonsen, L., et al. Impact of influenza vaccination on seasonal mortality in the US elderly population. A.M.A. archives of internal medicine. 165 (3), 265-272 (2005).
- McLean, H. Q., Peterson, S. H., King, J. P., Meece, J. K., Belongia, E. A. School absenteeism among school-aged children with medically attended acute viral respiratory illness during three influenza seasons, 2012-2013 through 2014-2015. Influenza and Other Respiratory Viruses. 11 (3), 220-229 (2017).
- Principi, N., Esposito, S. Protection of children against influenza: Emerging problems. Human Vaccines and Immunotherapeutics. , 1-8 (2017).
- Falsey, A. R., Treanor, J. J., Tornieporth, N., Capellan, J., Randomized Gorse, G. J. double-blind controlled phase 3 trial comparing the immunogenicity of high-dose and standard-dose influenza vaccine in adults 65 years of age and older. Journal of Infectious Diseases. 200 (2), 172-180 (2009).
- Fuller, J. D., et al. Influenza vaccination of human immunodeficiency virus (HIV)-infected adults: impact on plasma levels of HIV type 1 RNA and determinants of antibody response. Clinical Infectious Diseases. 28 (3), 541-547 (1999).
- Carrat, F., Flahault, A. Influenza vaccine: the challenge of antigenic drift. Vaccine. 25 (39-40), 6852-6862 (2007).
- Doherty, P. C., Kelso, A. Toward a broadly protective influenza vaccine. Journal of Clinical Investigation. 118 (10), 3273-3275 (2008).
- Fiore, A. E., et al. Prevention and control of influenza with vaccines: recommendations of the Advisory Committee on Immunization Practices (ACIP), 2010. MMWR Recommendations and Reports. 59 (RR-8), 1-62 (2010).
- Pica, N., Palese, P. Toward a universal influenza virus vaccine: prospects and challenges. Annual Review of Medicine. 64, 189-202 (2013).
- To, K. K., Chan, J. F., Chen, H., Li, L., Yuen, K. Y. The emergence of influenza A H7N9 in human beings 16 years after influenza A H5N1: a tale of two cities. Lancet Infectious Diseases. 13 (9), 809-821 (2013).
- Baker, S. F., Nogales, A., Santiago, F. W., Topham, D. J., Martinez-Sobrido, L. Competitive detection of influenza neutralizing antibodies using a novel bivalent fluorescence-based microneutralization assay (BiFMA). Vaccine. 33 (30), 3562-3570 (2015).
- He, W., Mullarkey, C. E., Miller, M. S. Measuring the neutralization potency of influenza A virus hemagglutinin stalk/stem-binding antibodies in polyclonal preparations by microneutralization assay. Methods. , (2015).
- Kayali, G., et al. Testing human sera for antibodies against avian influenza viruses: horse RBC hemagglutination inhibition vs. microneutralization assays. Journal of Clinical Virology. 43 (1), 73-78 (2008).
- Stephenson, I., et al. Reproducibility of serologic assays for influenza virus A (H5N1). Emerging Infectious Diseases. 15 (8), 1252-1259 (2009).
- Maher, J. A., DeStefano, J. The ferret: an animal model to study influenza virus. Lab Animal (NY). 33 (9), 50-53 (2004).
- Webster, R. G., Cox, N., Stoehr, K. WHO/CDS/CSR/NCS/2002.5 Rev. 1. , (2002).
- Rodriguez, L., Nogales, A., Martínez-Sobrido, L. Influenza A Virus Studies in a Mouse Model of Infection. Journal of Visualized Experiments. (127), (2017).
- Cox, A., Baker, S. F., Nogales, A., Martínez-Sobrido, L., Dewhurst, S. Development of a mouse-adapted live attenuated influenza virus that permits in vivo analysis of enhancements to the safety of live attenuated influenza virus vaccine. Journal of Virology. 89 (6), 3421-3426 (2015).
- Steel, J., Lowen, A. C., Mubareka, S., Palese, P. Transmission of influenza virus in a mammalian host is increased by PB2 amino acids 627K or 627E/701N. PLoS Pathogens. 5 (1), e1000252(2009).
- Tran, V., Moser, L. A., Poole, D. S., Mehle, A. Highly sensitive real-time in vivo imaging of an influenza reporter virus reveals dynamics of replication and spread. Journal of Virology. 87 (24), 13321-13329 (2013).
- Fukuyama, S., et al. Multi-spectral fluorescent reporter influenza viruses (Color-flu) as powerful tools for in vivo studies. Nature Communications. 6, 6600(2015).
- Manicassamy, B., et al. Analysis of in vivo dynamics of influenza virus infection in mice using a GFP reporter virus. Proceedings of the National Academy of Sciences U S A. 107 (25), 11531-11536 (2010).
- Perez, J. T., Garcia-Sastre, A., Manicassamy, B. Insertion of a GFP reporter gene in influenza virus. Current Protocols in Microbiology. , Chapter 15 Unit 15G 14 (2013).
- Reuther, P., et al. Generation of a variety of stable Influenza A reporter viruses by genetic engineering of the NS gene segment. Scientific Reports. 5, 11346(2015).
- Tran, V., et al. Multi-Modal Imaging with a Toolbox of Influenza A Reporter Viruses. Viruses. 7 (10), 5319-5327 (2015).
- Breen, M., Nogales, A., Baker, S. F., Perez, D. R., Martinez-Sobrido, L. Replication-Competent Influenza A and B Viruses Expressing a Fluorescent Dynamic Timer Protein for In Vitro and In Vivo Studies. PLoS One. 11 (1), e0147723(2016).
- Nogales, A., Baker, S. F., Martinez-Sobrido, L. Replication-competent influenza A viruses expressing a red fluorescent protein. Virology. , 206-216 (2014).
- Nogales, A., et al. Replication-competent fluorescent-expressing influenza B virus. Virus Research. 213, 69-81 (2015).
- Avilov, S. V., et al. Replication-competent influenza A virus that encodes a split-green fluorescent protein-tagged PB2 polymerase subunit allows live-cell imaging of the virus life cycle. Journal of Virology. 86 (3), 1433-1448 (2012).
- Breen, M., Nogales, A., Baker, S. F., Martínez-Sobrido, L. Replication-Competent Influenza A Viruses Expressing Reporter Genes. Viruses. 8 (7), (2016).
- Eckert, N., et al. Influenza A virus encoding secreted Gaussia luciferase as useful tool to analyze viral replication and its inhibition by antiviral compounds and cellular proteins. PLoS One. 9 (5), e97695(2014).
- Karlsson, E. A., et al. Visualizing real-time influenza virus infection, transmission and protection in ferrets. Nature Communications. 6, 6378(2015).
- Czako, R., et al. In Vivo Imaging of Influenza Virus Infection in Immunized Mice. MBio. 8 (3), (2017).
- Harding, A. T., Heaton, B. E., Dumm, R. E., Heaton, N. S. Rationally Designed Influenza Virus Vaccines That Are Antigenically Stable during Growth in Eggs. MBio. 8 (3), (2017).
- DiPiazza, A., et al. Pandemic 2009 H1N1 Influenza Venus reporter virus reveals broad diversity of MHC class II-positive antigen-bearing cells following infection in vivo. Scientific Reports. 7 (1), 10857(2017).
- Yan, D., et al. Replication-Competent Influenza Virus and Respiratory Syncytial Virus Luciferase Reporter Strains Engineered for Co-Infections Identify Antiviral Compounds in Combination Screens. Biochemistry. 54 (36), 5589-5604 (2015).
- Shaner, N. C., Patterson, G. H., Davidson, M. W. Advances in fluorescent protein technology. Journal of Cell Science. 120 (Pt 24), 4247-4260 (2007).
- Shaner, N. C., Steinbach, P. A., Tsien, R. Y. A guide to choosing fluorescent proteins. Nature Methods. 2 (12), 905-909 (2005).
- Kelkar, M., De, A. Bioluminescence based in vivo screening technologies. Current Opinion in Pharmacology. 12 (5), 592-600 (2012).
- Welsh, D. K., Noguchi, T. Cellular bioluminescence imaging. Cold Spring Harbor Protocols. 2012 (8), (2012).
- Zhao, H., et al. Emission spectra of bioluminescent reporters and interaction with mammalian tissue determine the sensitivity of detection in vivo. Journal of Biomedical Optics. 10 (4), 41210(2005).
- Stacer, A. C., et al. NanoLuc reporter for dual luciferase imaging in living animals. Molecular Imaging. 12 (7), 1-13 (2013).
- Vintersten, K., et al. Mouse in red: red fluorescent protein expression in mouse ES cells, embryos, and adult animals. Genesis. 40 (4), 241-246 (2004).
- Stacer, A. C., et al. NanoLuc reporter for dual luciferase imaging in living animals. Mol Imaging. 12 (7), 1-13 (2013).
- Schoggins, J. W., et al. Dengue reporter viruses reveal viral dynamics in interferon receptor-deficient mice and sensitivity to interferon effectors in vitro. Proc Natl Acad Sci U S A. 109 (36), 14610-14615 (2012).
- Pan, W., et al. Visualizing influenza virus infection in living mice. Nat Commun. 4, 2369(2013).
- Heaton, N. S., et al. In vivo bioluminescent imaging of influenza a virus infection and characterization of novel cross-protective monoclonal antibodies. J Virol. 87 (15), 8272-8281 (2013).
- Nogales, A., Baker, S. F., Martínez-Sobrido, L. Replication-competent influenza A viruses expressing a red fluorescent protein. Virology. 476, 206-216 (2015).
- Nogales, A., et al. A novel fluorescent and bioluminescent Bi-Reporter influenza A virus (BIRFLU) to evaluate viral infections. Journal of Virology. , (2019).
- Nogales, A., et al. Influenza A Virus Attenuation by Codon Deoptimization of the NS Gene for Vaccine Development. Journal of Virology. 88 (18), 10525-10540 (2014).
- Nogales, A., DeDiego, M. L., Topham, D. J., Martinez-Sobrido, L. Rearrangement of Influenza Virus Spliced Segments for the Development of Live-Attenuated Vaccines. Journal of Virology. 90 (14), 6291-6302 (2016).
- National Research Council (U.S.). Committee for the Update of the Guide for the Care and Use of Laboratory Animals., Institute for Laboratory Animal Research (U.S.) & National Academies Press (U.S.). Guide for the care and use of laboratory animals. , 8th edn, National Academies Press. (2011).
- Nogales, A., Martinez-Sobrido, L., Chiem, K., Topham, D. J., DeDiego, M. L. Functional Evolution of the 2009 Pandemic H1N1 Influenza Virus NS1 and PA in Humans. Journal of Virology. 92 (19), (2018).
- Hall, M. P., et al. Engineered luciferase reporter from a deep sea shrimp utilizing a novel imidazopyrazinone substrate. ACS Chemical Biology. 7 (11), 1848-1857 (2012).
重印与许可
