本实验方案的目的是在未使用厌氧培养箱的情况下,检测本地采购食品中不同类型的产气荚膜梭菌(Clostridium perfringens)毒素型,特别是产生ε毒素的B型和D型菌株。
方法文章
富集与检测 产气荚膜梭菌 零售食品样品中的毒素型
* These authors contributed equally
本文内容
摘要
摘要
产气荚膜梭菌 (产气荚膜梭菌是一种高效的毒素生产者,可在多种宿主中引起多种疾病。 C. perfringens 根据是否携带四种主要毒素基因,可将该菌分为A至E五种不同的毒素型。这些不同毒素型的流行情况与分布特征研究尚不充分,尤其是在美国市售食品中的普遍存在情况。我们特别关注产生ε毒素的B型和D型菌株,这种毒素具有极强的致死性,被认为可能是人类多发性硬化症的环境诱发因素。为评估不同毒素型的存在情况 C. perfringens 在不同食品样品中检测产气荚膜梭菌的毒素型时,我们开发了一种简便的方法,仅通过三个培养步骤即可选择性地培养这些细菌,且无需使用厌氧容器系统。食品样品购自当地杂货店,并在常温条件下运送至实验室。样品经剪碎后接种至改良的快速产气荚膜培养基(RPM)中,于37 °C在密封的密闭锥形管中过夜培养。过夜培养物随后接种至固体胰胨硫酸盐环丝氨酸(TSC)琼脂底层,并覆盖一层熔化的TSC琼脂上层,形成双层琼脂结构 "夹心状",厌氧环境。琼脂平板在37 °C下培养过夜,然后观察是否出现黑色的亚硫酸盐还原菌落。 C. perfringens-使用无菌滴管从TSC琼脂上挑取可疑菌落,接种于RPM培养基中,并在密闭锥形管内于37 °C过夜培养。从RPM二次培养物中提取DNA,随后检测其是否存在 C. perfringens 通过聚合酶链式反应(PCR)检测毒素基因。根据所采样的食品类型,通常有15–20%的样品检测结果呈阳性 C. perfringens.
引言
Clostridium perfringens(C. perfringens)是一种革兰氏阳性、厌氧、产芽孢、杆状的细菌,广泛存在于环境中。该细菌含有编码超过17种毒素的基因,传统上根据四种不同毒素基因(α、β、ε 和 ι 毒素基因)的存在与否,将其分为五种毒素型(A–E)(表1)1。最近有研究提出,该分型体系应扩展至包括F型和G型,分别携带C. perfringens肠毒素(CPE)和NetB毒素2。然而,在该分类系统被正式采纳之前,仍需更多研究加以验证。α毒素基因严格位于染色体上,而CPE基因则既可存在于染色体上,也可位于质粒上。相比之下,其余毒素基因均位于大小不同的多种质粒上。我们尤其关注C. perfringens B型和D型的流行情况,因为这些菌株可产生ε毒素——一种极强效的成孔毒素,已有研究提示其可能在人类多发性硬化症(MS)的发病机制中起一定作用3,4,5,6,7。目前尚不清楚人类如何感染或定植这些菌株。一种可能的解释是通过摄入受污染的食品。为帮助解答这一问题,我们旨在确定美国食品样品中不同C. perfringens毒素型的流行情况。
存在 C. perfringens 美国食品样本中的毒素型研究不足,通常需要使用厌氧容器系统以及多次传代培养步骤8,9,10,11尽管获得纯化分离物需要多次传代培养,但该方法可能导致质粒随着时间的推移而丢失12,13,14,可能影响质粒携带的毒素基因(包括ε毒素基因)的检测。我们旨在开发一种更简便的方法,减少传代培养步骤,以选择性地培养 C. perfringens 无需使用厌氧培养箱、厌氧罐或厌氧袋。简言之,将食品样品接种至快速产气荚膜梭菌培养基(RPM)中,过夜(ON)培养,然后 "夹入TSC琼脂中,过夜培养。疑似为 C. perfringens 然后将细胞转接至RPM培养基中,再次过夜培养。提取DNA并进行PCR以确定基因型(图1)。我们选择使用 RPM,因为它已被证明能够提高回收率 C. perfringens 与其它更常用培养基相比,从食品样品中分离的菌株15此外,RPM 已成功用于从一名多发性硬化症患者中分离出一株产生ε毒素的B型菌株4我们采用改良版的RPM而非原始版本,以方便DNA提取。尽管该方法可轻松鉴定样本中的毒素基因,但单个样本中仍可能存在多个 C. perfringens 毒素型。由于我们的方法未通过多轮纯化分离出纯化的菌株,因此无法从一个样本中鉴定出多种毒素型。然而,可以在本实验方案结束时应用标准的纯化技术(通常是在TSC平板或血琼脂平板上划线)以获得纯培养物。
方案
注意:C. perfringens 被归类为生物安全等级2(BSL2)的生物体。尽管并非所有食品样本都含有 C. perfringens,但所有培养样本均应按此级别处理。操作时必须始终采取适当的预防措施并穿戴个人防护装备(PPE)。所有材料在丢弃前须进行去污处理。
1. 准备改良的RPM4,15
- 在去离子水中加入30 g/L流体巯基乙酸盐培养基、60 g/L明胶、5 g/L蛋白胨、5 g/L葡萄糖、5 g/L磷酸氢二钾、3 g/L酵母提取物、1.5 g/L氯化钠、0.5 g/L硫酸亚铁,搅拌至均匀分散。我们通常配制1 L的批次。
- 在121 °C下高压灭菌15分钟。
- 冷却至约40 °C。
- RPM冷却后,加入D-环丝氨酸,使其终浓度为440 mg/L。
注意:可将D-环丝氨酸溶于无菌水配制成50 mg/mL的储存液,于-20 °C保存以供后续使用。 - 无菌条件下将10 mL RPM转移至15 mL锥形管中。RPM可批量制备,并在4 °C保存最多一个月。
- 使用前将RPM预热至37 °C。
2. 样品采集与RPM孵育
- 在1小时内将食品在常温下运送至实验室。食品可置于原始包装或无菌容器中运输。若不立即检测,可将食品储存于-20 °C直至使用。根据包装标签(如可获取)记录食品类型及原产国,以及其他任何相关信息。
- 取约1.0–2.0 g食品,转移至无菌培养皿或等效容器中,用无菌剃刀或手术刀仔细切碎。
- 将样品接种于15 mL锥形管中的10 mL磷酸盐缓冲液(PBS)中,充分混匀。
- 为筛选营养细胞,将5 mL PBS-食品混合物转移至另一含有10 mL RPM的15 mL锥形管中,拧紧管盖。
- 为筛选芽孢,将剩余的5 mL PBS-食品混合物于85 °C加热15分钟,随后转移至含有10 mL RPM的15 mL锥形管中,拧紧管盖。
- 涡旋振荡并倒置食品-RPM培养物,确保充分混匀。
- 将锥形管 tightly 密封,并用石蜡膜或塑料封口膜包裹管盖,以确保厌氧环境。
- 于37 °C过夜(ON)培养。
- 次日早晨观察RPM管中是否存在浑浊或发酵现象。
3. 结节性硬化症复合体 "“三明治”铺板
- 将ON RPM培养物接种于TSC琼脂,采用“三明治”技术(图2如下所述。
- 按照生产商说明书制备TSC琼脂。
- 通过将10 mL熔化的TSC琼脂转移至无菌培养皿中制备TSC平板的底层,静置使其凝固。可提前制备并置于4 °C保存。使用前确保平板恢复至室温。
- 对于TSC平板的上层,将剩余的熔融TSC琼脂保持在40 °C。
注意:尽管琼脂的熔点高于 85 °C,但熔融琼脂在约 32–45 °C 时即凝固。
- 小心取出过夜培养的 RPM 培养物,转移 100 µL 至 TSC 琼脂基础培养基。由于发酵作用,部分培养物可能处于压力状态。务必穿戴所有适当的个人防护装备。
- 使用无菌玻璃珠或细胞涂布器涂布RPM接种物。
- 让 RPM 保持 "在室温下吸收至TSC琼脂中5–10分钟。
- 使用血清移液管将20 mL熔融的40 °C TSC琼脂小心转移至平板中。
- 更换培养皿盖,于室温下静置,直至TSC琼脂完全凝固。
- 倒置培养皿,37 °C 过夜培养。
- 若需进行系列稀释,应在接种至TSC琼脂前,将过夜培养的RPM菌液用新鲜的预热RPM培养基进行稀释。
4. 亚培养亚硫酸盐还原菌落
- 次日早晨,从培养箱中取出培养皿,检查细菌生长情况。好氧细菌可能生长在琼脂表面,而厌氧细菌则会嵌入琼脂内部生长。亚硫酸盐还原菌会使周围琼脂变黑。疑似C. perfringens的菌落呈黑色并嵌于琼脂内部。
- 疑似C. perfringens的菌落因具有亚硫酸盐还原活性而呈黑色,并嵌于琼脂中。使用无菌一次性滴管,用"挑取”法从琼脂中挑取黑色菌落,转移至15 mL锥形管中的10 mL新鲜RPM培养基中。在插入琼脂前,务必先排出滴管内的空气。
- 若培养皿表面存在大量好氧细菌生长,可使用无菌细胞刮刀去除选定区域的菌落。可从同一块TSC培养基上挑取多个疑似C. perfringens的菌落,分别接种至不同的RPM培养物中。
- 拧紧锥形管盖,并用石蜡膜或塑料膜包裹密封。在37 °C下过夜培养。
5. DNA 提取
- 移除 ON RPM 培养物,观察是否有生长迹象,包括浑浊度和发酵现象。
- 轻轻倒置RPM培养液以分散任何已沉降的细菌,并小心打开。将1 mL培养液转移至微量离心管中。
- 以最高速离心(约 15,000 x g) 10 分钟以沉淀细菌。
- 用1 mL无菌PBS洗涤沉淀。
- 在某些情况下,未消化的明胶会沉积在菌体沉淀物上方。为去除明胶, "用移液枪轻轻吹打PBS,将明胶上的“絮状物”去除。这将 "在保持细菌沉淀完整的同时,轻轻搅动明胶使其蓬松。
- 用移液枪轻轻吸除PBS-明胶混合液。用1 mL新鲜PBS重悬剩余的菌体沉淀。
- 将重悬的细菌沉淀在最高速度下离心10分钟,并小心吸除上清液。
- 立即使用专为从革兰氏阳性菌中提取DNA而设计的DNA提取试剂盒及相应方案进行DNA提取(参见 材料表).
- 立即使用提取的DNA,或于-20 °C保存直至进行PCR分析。
6. 通过PCR基因分型检测C. perfringens
- 确定培养物是否呈阳性 C. perfringens 毒素型,通过PCR检测提取的DNA中不同的毒素基因。
注意:由于我们最关注的是产生ε毒素的B型和D型菌株 C. perfringens,我们检测α、β和ε毒素基因的存在。引物列于 表2. 16S核糖体DNA引物用作DNA提取的对照。其他引物可用于检测毒素型A至G,相关引物序列可在已发表的文献中查得2,12,13. - 使用先前提取的 C. perfringens DNA 作为阳性对照。该对照可确保 PCR 反应中的所有组分均正常工作。我们使用从 C. perfringens 以B型(ATCC 3626)作为阳性对照。将ATCC 3636在RPM培养基中37 °C过夜培养,并按照步骤5.1–5.7所述方法提取DNA。提取的DNA于-20 °C保存,直至使用。
- PCR反应条件设置如下:94.0 °C 预变性3 min;94.0 °C 变性30 s;47.9 °C 退火30 s;72.0 °C 延伸1 min(重复第2–4步35个循环);72.0 °C 最终延伸10 min。
- 为验证PCR产物,使用标准技术将PCR反应产物在1.8 g/100 mL琼脂糖凝胶上电泳。预期的PCR产物大小列于 表2典型的PCR结果展示于 图3.
结果
采用该方法检测时,我们采样的食品中有15–20%呈C. perfringens阳性。尽管大多数菌株为A型毒素型,但我们已在食品样本中成功检测到B型和D型。在先前发表的一篇论文中,我们共检测了从纽约零售商店购买的216份食品样本16(表3)。这些样本包括多种肉类(牛肉、羊肉、猪肉)、禽类(鸡和火鸡)以及海产品(鳕鱼、鲑鱼、贝类、红鲷鱼、比目鱼、鱿鱼、罗非鱼、金枪鱼及其他多种鱼类)。同时检测了农产品和乳制品样本。在216份样本中,34份(16%)C. perfringens检测呈阳性。在34份C. perfringens阳性样本中,31份(91.2%)含有α毒素,1份(2.9%)含有α、β和ε毒素,2份(5.9%)含有α和ε毒素。
有趣的是,我们还发现 C. perfringens 与芽孢相比,营养细胞的检出更为普遍。对25个样本进行了检测,以比较营养细胞的存在情况 C. perfringens 细胞或孢子。通过将样品进行热激处理来筛选孢子 85 °C 15分钟。在检测的25个样本中,16%的样本对营养体呈阳性 C. perfringens 菌株的检出率为4%,而孢子为4%。这表明仅检测营养细胞而非两者都检测可能更具成本效益。
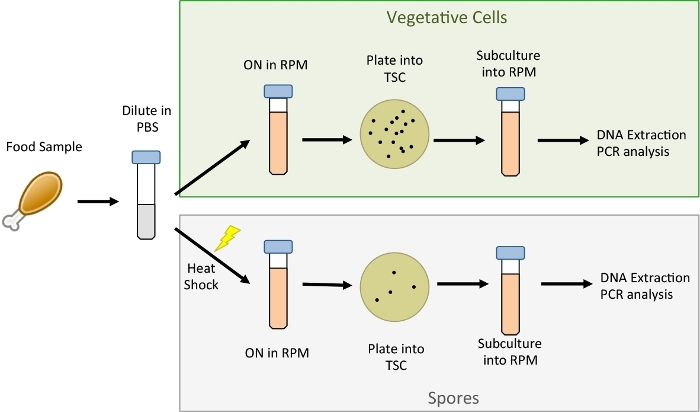
图1:实验流程概览。
食品样品经切碎后,稀释于无菌PBS中。将一半的PBS-食品样品接种至RPM培养基中,以筛选营养细胞;剩余的PBS-食品样品则在接种至RPM前,于85 °C热激处理15分钟,以选择性富集芽孢。培养物在37 °C过夜(ON)培养后,转接至TSC琼脂平板。TSC琼脂在37 °C过夜(ON)培养,出现黑色、可还原亚硫酸盐的菌落时,将其再次转接至新鲜RPM培养基中。再次转接的RPM培养物在37 °C过夜(ON)培养后,提取DNA,用于PCR基因分型分析。请点击此处查看本图的高清版本。
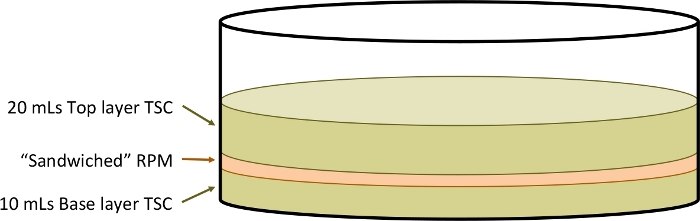
图 2:TSC琼脂三明治法示意图。
将含有C. perfringens细菌的RPM培养基置于两层TSC琼脂之间,以促进厌氧环境的形成。请点击此处查看该图的放大版本。
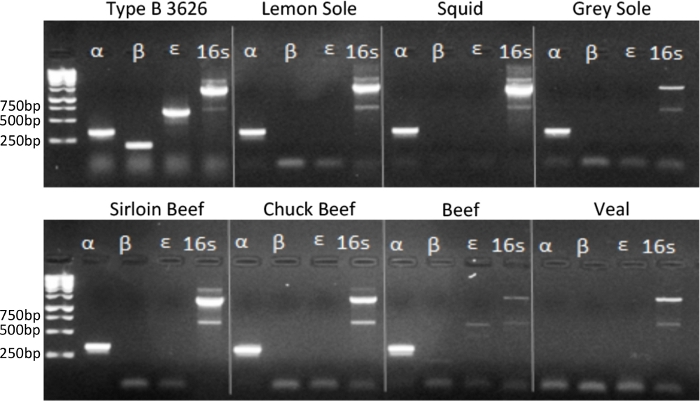
图3:部分PCR结果。
基因分型结果的示例图像 C. perfringens 来自七种不同类型的食物,以及一个阳性对照 C. perfringens B型。每个凝胶的第一泳道使用分子量标记物(DNA Ladder)来估算PCR产物的大小,单位为碱基对(bp)。 请点击此处以查看此图的放大版本。
| 毒素型 | α | β | ε | ι | CPE | NetB | |
| 已确立 | A | + | - | - | - | - | - |
| B | + | + | + | - | - | - | |
| C | + | + | - | - | + | - | |
| D | + | - | + | - | + | - | |
| E | + | - | - | + | + | - | |
| 建议 | F | + | - | - | - | + | - |
| G | + | - | - | - | - | + | |
| + 存在 - 不存在 +/- 可能存在也可能不存在 | |||||||
表1:C. perfringens 基因型概述。 各种 C. perfringens 毒素型所产生的毒素组合图表。
| 靶标 | 引物对 | 预期 PCR 产物 (bp) |
| alpha | F: GCT AAT GTT ACT GCC GTT GA R: CCT CTG ATA CAT CGT GTA AG | 325 |
| beta | F: GCG AAT ATG CTG AAT CAT CTA R: GCA GGA ACA TTA GTA TAT CTT C | 196 |
| epsilon | F: GCG GTG ATA TCC ATC TAT TC R: CCA CTT ACT TGT CCT ACT AAC | 655 |
| 16s RNA | F: AGA GTT TGA TCC TGG CTC A R: GGT TAC CTT GTT ACG ACT T | ~1300 |
表2:选定毒素基因的引物及预期PCR产物。 PCR基因分型步骤中使用的引物。
| 食品类型 | 类型 A | 类型 B | 类型 C | 类型 D | C. perf + | |||||||
| α 毒素阳性 | α、β 和 ε 毒素阳性 | α 和 β 毒素阳性 | α 和 ε 毒素阳性 | |||||||||
| n | n | % | n | % | n | % | n | % | n | % | ||
| 肉类 | 牛肉 | 38 | 8 | 21% | 1 | 3% | 0 | 0% | 0 | 0% | 9 | 24% |
| 羊肉 | 10 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | |
| 猪肉 | 15 | 2 | 13% | 0 | 0% | 0 | 0% | 0 | 0% | 2 | 13% | |
| 混合肉 | 1 | 1 | 100% | 0 | 0% | 0 | 0% | 0 | 0% | 1 | 100% | |
| 小计 | 64 | 11 | 17% | 1 | 2% | 0 | 0% | 0 | 0% | 12 | 19% | |
| 禽类 | 鸡肉 | 19 | 5 | 26% | 0 | 0% | 0 | 0% | 0 | 0% | 5 | 26% |
| 火鸡 | 7 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | |
| 小计 | 26 | 5 | 19% | 0 | 0% | 0 | 0% | 0 | 0% | 5 | 19% | |
| 海鲜 | 鳕鱼 | 4 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% |
| 混合海鲜 | 1 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | |
| 三文鱼 | 11 | 2 | 18% | 0 | 0% | 0 | 0% | 0 | 0% | 2 | 18% | |
| 贝类 | 32 | 1 | 3% | 0 | 0% | 0 | 0% | 0 | 0% | 1 | 3% | |
| 红鲷鱼 | 4 | 3 | 75% | 0 | 0% | 0 | 0% | 0 | 0% | 3 | 75% | |
| 比目鱼 | 12 | 4 | 33% | 0 | 0% | 0 | 0% | 0 | 0% | 4 | 33% | |
| 鱿鱼 | 4 | 1 | 25% | 0 | 0% | 0 | 0% | 0 | 0% | 1 | 25% | |
| 罗非鱼 | 21 | 2 | 10% | 0 | 0% | 0 | 0% | 2 | 10% | 4 | 19% | |
| 金枪鱼 | 3 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | |
| 其他 | 8 | 1 | 13% | 0 | 0% | 0 | 0% | 0 | 0% | 1 | 13% | |
| 小计 | 100 | 14 | 14% | 0 | 0% | 0 | 0% | 2 | 2% | 16 | 16% | |
| 乳制品 | 牛 | 3 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% |
| 山羊 | 4 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | |
| 牛奶 | 3 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | |
| 小计 | 10 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | |
| 农产品 | 蔬菜 | 12 | 1 | 8% | 0 | 0% | 0 | 0% | 0 | 0% | 1 | 8% |
| 水果 | 1 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | |
| 香草 | 3 | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | 0 | 0% | |
| 小计 | 16 | 1 | 6% | 0 | 0% | 0 | 0% | 0 | 0% | 1 | 6% | |
| 总计 | 216 | 31 | 14% | 1 | 0.50% | 0 | 0% | 2 | 0.90% | 34 | 16% | |
表3:216份食品样本中不同产气荚膜梭菌(C. perfringens)毒素型的检出率。 使用本方法检测市售食品中产气荚膜梭菌(C. perfringens)所得结果的一个示例。本表格改编自先前发表的文献Regan等16。
讨论
在此,我们描述了一种用于鉴定的方法 产气荚膜梭菌 零售食品样品中有限传代培养且不使用厌氧培养箱系统条件下的检出率。该方法结合多种技术以提高鉴定能力 C. perfringens 从食品样品中分离。通过使用改良的RPM培养基,我们实现了目标微生物的选择性生长 C. perfringens通过将接种的RPM夹在TSC琼脂层之间,我们能够鉴定并分离出具有亚硫酸盐还原特性的厌氧菌 产气荚膜梭菌. 以确认是否存在 C. perfringens,亚硫酸盐还原菌落被转接至新鲜的RPM培养基中。改良版RPM培养基使我们能够从培养物中便捷地提取DNA,从而通过PCR确认特定毒素基因。确认 C. perfringens 在三天内即可完成对受污染食品样本的检测。
在早期实验中,仅将食品样品直接接种到RPM培养基中,并从过夜培养物中提取DNA。该方法仅在少数样品中检测到C. perfringens(数据未显示)。尽管RPM培养基对C. perfringens的生长具有选择性,但并非 exclusively 专属于C. perfringens的生长。其他革兰氏阳性、D-环丝氨酸耐药的细菌仍可在RPM中生长。我们推测,其他细菌物种的污染可能降低了PCR分析的灵敏度,从而导致我们在首次过夜RPM培养中对C. perfringens菌株的检出率下降。提高C. perfringens检出率的关键步骤是引入TSC琼脂“三明治”技术。该技术使我们能够区分并筛选出具有C. perfringens特征的厌氧、亚硫酸盐还原菌落。此过程中的关键步骤是确保熔融TSC琼脂上层温度为40 °C。尽管某些C. perfringens菌株可在较高温度(46–48 °C)下生长15,16,但在较高温度下加入熔融琼脂会显著减少可回收的培养物数量,最可能的原因是细胞死亡所致。
该方法存在一些潜在的局限性。如前所述,RPM 和 TSC 琼脂均不能选择性地或区分性地针对 产气荚膜梭菌 专一性,允许食品样本中其他细菌物种的生长。这可能会降低该检测方法对目标菌的选择灵敏度 C. perfringens 仅此而已。然而,这几乎是所有培养技术中普遍存在的局限性。对纯化分离物进行基因分型验证是明确鉴定的最可靠方法 C. perfringens 以及其他细菌种类。本研究的另一个局限性在于我们未对分离物进行纯化培养。我们有意采取这种方法,以减少传代培养次数,因为反复传代可能引起质粒丢失。由于未进行纯化分离,可能存在多种 C. perfringens 毒素型可能存在于同一样本或亚培养物中。如果研究人员希望获得纯化的分离株,可对本方法中所述的最后一次RPM培养物采用标准纯化方法;该过程通常需要使用厌氧舱。尽管最初用于分离 C. perfringens 从食物中,该方法可用于鉴定和分离 C. perfringens 来自多种来源。具体而言,该方法的一个应用是检测疑似感染个体(人类或动物)的粪便样本 C. perfringens 并对细菌进行毒素分型,以更好地了解感染来源。
致谢
本研究未从公共、商业或非营利部门获得任何特定资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| D-环丝氨酸 | Sigma-Aldrich | C6880 | |
| 葡萄糖 | Sigma生命科学 | D9434-250G | |
| 一次性移液管 | 任何品牌 | 选择尖端较细的移液管,例如 Thermo Scientific 一次性转移移液管 137116M/EMD | |
| DNeasy 血液 & 组织试剂盒 | Qiagen | 69504 | 注意:已评估多种DNA和质粒提取试剂盒,该试剂盒结果最为理想。 |
| 干式培养箱 | 任何品牌 | ||
| 流体硫乙醇酸盐培养基 | Remel | R453452 | |
| 猪皮明胶 | Sigma生命科学 | G1890-500G | |
| 单个引物 | Invitrogen | ||
| 七水合硫酸亚铁 | Sigma生命科学 | F8633-250 G | |
| 来自鸡蛋清的溶菌酶 | Sigma-Aldrich | L6876 | DNA 提取所需,但试剂盒中未提供 |
| 微量离心管 | 任何品牌 | ||
| Parafilm 或塑料薄膜 | 任何品牌 | ||
| 酪蛋白及其他动物蛋白胨 | Sigma-Aldrich | 70173-100G | |
| Perfringens 琼脂基础培养基(TSC + SFP) | Oxoid | CM0587 | 根据说明书制备TSC琼脂 |
| 磷酸氢二钾 | Sigma-Aldrich | P2222-100G | |
| 氯化钠 | Sigma-Aldrich | S-7653 | |
| 无菌细胞刮刀 | 任何品牌 | ||
| 无菌细胞涂布棒 | 任何品牌 | ||
| 无菌培养皿 | 任何品牌 | ||
| 凝胶电泳所需的耗材与设备 | 任何品牌 | ||
| 台式离心机 | 任何品牌 | ||
| Taq PCR预混液试剂盒 | Qiagen | 201443 | |
| PCR反应用热循环仪 | 任何品牌 | ||
| 水浴锅 | 任何品牌 | ||
| 酵母提取物 | Sigma-Aldrich | 70161-100G |
参考文献
- Petit, L., Gibert, M., Popoff, M. R. Clostridium perfringens: toxinotype and genotype. Trends in Microbiology. 7, 104-110 (1999).
- Rood, J. I., et al. Expansion of the Clostridium perfringens toxin-based typing scheme. Anaerobe. , (2018).
- Murrell, T. G., O'Donoghue, P. J., Ellis, T. A review of the sheep-multiple sclerosis connection. Medical Hypotheses. 19, 27-39 (1986).
- Rumah, K. R., Linden, J., Fischetti, V. A., Vartanian, T. Isolation of Clostridium perfringens type B in an individual at first clinical presentation of multiple sclerosis provides clues for environmental triggers of the disease. PLoS One. 8, 76359(2013).
- Wagley, S., et al. Evidence of Clostridium perfringens epsilon toxin associated with multiple sclerosis. Multiple Sclerosis. , 1352458518767327 (2018).
- Linden, J. R., et al. Clostridium perfringens Epsilon Toxin Causes Selective Death of Mature Oligodendrocytes and Central Nervous System Demyelination. MBio. 6, 02513(2015).
- Popoff, M. R. Epsilon toxin: a fascinating pore-forming toxin. FEBS Journal. 278, 4602-4615 (2011).
- Lee, C. A., Labbe, R. Distribution of Enterotoxin- and Epsilon-Positive Clostridium perfringens Spores in U.S. Retail Spices. Journal of Food Protection. 81, 394-399 (2018).
- Wen, Q., McClane, B. A. Detection of enterotoxigenic Clostridium perfringens type A isolates in American retail foods. Applied and Environmental Microbiology. 70, 2685-2691 (2004).
- Cooper, K. K., Bueschel, D. M., Songer, J. G. Presence of Clostridium perfringens in retail chicken livers. Anaerobe. 21, 67-68 (2013).
- Strong, D. H., Canada, J. C., Griffiths, B. B. Incidence of Clostridium perfringens in American foods. Applied and Environmental Microbiology. 11, 42-44 (1963).
- Buogo, C., Capaul, S., Hani, H., Frey, J., Nicolet, J. Diagnosis of Clostridium perfringens type C enteritis in pigs using a DNA amplification technique (PCR). Journal of Veterinary Medicine, Series B. 42, 51-58 (1995).
- Yamagishi, T., Sugitani, K., Tanishima, K., Nakamura, S. Polymerase chain reaction test for differentiation of five toxin types of Clostridium perfringens. Microbiology and Immunology. 41, 295-299 (1997).
- Johansson, A., Engstrom, B. E., Frey, J., Johansson, K. E., Baverud, V. Survival of clostridium perfringens during simulated transport and stability of some plasmid-borne toxin genes under aerobic conditions. Acta Veterinaria Scandinavica. 46, 241-247 (2005).
- Erickson, J. E., Deibel, R. H. New medium for rapid screening and enumeration of Clostridium perfringens in foods. Applied and Environmental Microbiology. 36, 567-571 (1978).
- Regan, S. B., et al. Identification of epsilon toxin-producing Clostridium perfringens strains in American retail food. Anaerobe. 54, 124-127 (2018).
重印与许可
