本文介绍了一种利用CRISPR-Cas9系统降低成年蜜蜂脑中蛋白质表达以验证抗体特异性的实验方案。
方法文章
利用 CRISPR-Cas9 技术在蜜蜂脑切片中进行抗 RDL 和抗 mGlutR1 受体抗体检测
* These authors contributed equally
本文内容
摘要
摘要
成簇规律间隔短回文重复序列(CRISPR)/CRISPR 相关蛋白 9(Cas9)是一种广泛用于基因功能研究的基因编辑技术。本研究中,我们采用该方法验证针对昆虫 γ-氨基丁酸A 型受体亚基“对狄氏剂抗性蛋白”(RDL)以及代谢型谷氨酸受体 mGlutR1(mGluRA)所开发抗体的特异性。这些抗体是利用果蝇(Drosophila melanogaster)和蜜蜂(Apis mellifera)特异的偶联肽段在兔体内制备获得的。我们已在蜜蜂脑切片中使用这些抗体,研究上述受体在蜜蜂脑中的分布情况。抗体经对应肽段亲和纯化后,通过免疫印迹及经典的肽段偶联物预吸附方法进行检测,结果表明这些抗体仅特异性识别其对应的免疫原性肽段偶联物。本文中,我们建立了 CRISPR-Cas9 技术体系,通过设计针对相应受体的引导 RNA,在注射 CRISPR-Cas9 后 48 小时检测脑组织中靶蛋白表达水平是否降低。当需要对成年蜜蜂的一个或多个基因进行修饰时,CRISPR-Cas9 技术亦可用于行为学分析。
引言
最近发现的CRISPR/Cas9系统是一种强大的工具,已被用于在多种模式系统和生物体中改变基因组DNA。该系统使基因组编辑比以往方法更高效、更可靠,从而加速了生物医学研究和重大技术突破1。该系统源自S. pyogenes细菌,依赖于Cas9核酸酶,其活性可在DNA中引起双链断裂(DSBs),以及向导RNA(gRNA),后者将Cas9蛋白引导至特定的、序列依赖性位点2。CRISPR/Cas9产生的双链断裂可通过非同源末端连接(NHEJ)进行修复,这是一种易出错的过程,可能导致移码突变;或者在存在供体模板时,通过同源定向修复进行修复。gRNA本身由靶点特异性的CRISPR RNA(crRNA)和通用的反式激活crRNA(tracrRNA)组成,可化学合成,并与纯化的Cas9核酸酶共同递送,形成核糖核蛋白复合物(RNP)2,3。对gRNA或Cas9核酸酶进行荧光标记,可借助荧光显微镜实现分子组分的检测和细胞内可视化4。
在本研究中,我们利用 CRISPR-Cas9 系统降低成年蜜蜂脑组织中的蛋白质水平。我们研究了代谢型谷氨酸受体(mGluR)及其抗 mGlutR1 受体抗体,以及 GABAA 受体亚基 RDL 和抗 RDL 抗体。我们建立了一种简单的方法,用于减少成年蜜蜂脑内的蛋白质含量,并利用该方法进一步验证针对相应蛋白质开发的抗体。通过监测 CRISPR-Cas9 的荧光信号,我们得以评估参与蛋白质减少的脑区及细胞范围。
利用该方法,我们还表征了兔子针对偶联肽产生的抗mGlutR1抗体。蜜蜂基因组编码一种高度保守的代谢型谷氨酸受体AmGluRA(根据NCBI命名法称为mGlutR1)5。根据NCBI数据库,蜜蜂mGlutR1基因有四种预测的剪接变体。已有报道表明,该基因在蜜蜂蛹期和成虫期的中枢神经系统(CNS)中均有表达,并参与长期记忆的形成5。针对mGlutR1开发的抗体可成为研究蜜蜂学习与记忆过程中谷氨酸能系统的重要工具。
在我们的研究中,我们还表征了利用与肽偶联物免疫兔所制备的抗RDL抗体 Apis mellifera RDL受体亚基。蜜蜂 Rdl 基因, AmRdl (XM_006565102.3,NCBI数据库)具有14种预测的剪接变体。NCBI数据库中已报道过一段部分克隆的片段AF094822.1。RDL受体的功能及其生理特性在昆虫中已有深入研究6,7,8,包括蜜蜂9,10,11针对抗RDL产生的抗体可作为研究蜜蜂学习与记忆过程中GABA能系统的重要工具。
早期关于章胺和酪胺受体作用的研究采用将RNAi注射入脑部,随后通过蛋白质印迹法检测蛋白含量12,13。然而,RNAi存在一些显著的局限性。在注射RNAi后,蛋白水平下降的时间窗口较短13。最近,CRISPR-Cas9技术已被用于蜜蜂胚胎,以实现对整个个体基因的删除或修饰14,15,16。我们报道了利用CRISPR-Cas9技术降低成年蜜蜂体内蛋白含量的方法。我们针对蜜蜂开发了这一方法,因其可与在受控实验室条件下进行的学习与记忆行为研究相结合17。
在本研究中,我们针对两种受体开发了抗体,并在通过CRISPR-Cas9注射降低蛋白质表达后,对成年蜜蜂脑切片进行了检测。同时,我们建立了一种实验设计,使得该方法可用于行为学实验。
方案
本方案遵循亚利桑那州立大学的动物护理指南。
1. 从大脑中提取总蛋白 Apis mellifera
注意:使用 Apis mellifera 本实验使用未知年龄的新世界卡尼奥兰采集蜂。
- 在蜂巢入口处放置一个铝网筛,以捕捉采集蜂17。将每只蜜蜂捕获到带有小孔瓶盖的小瓶中。将装有蜜蜂的小瓶置于冰上,以降低其体温并使其固定。蜜蜂在冰上放置时间不得超过3分钟。
- 将已固定的蜜蜂固定在预先准备好的金属夹具中。确保金属夹具的结构能够使用小块胶带将蜜蜂固定,同时仍使其背部的胸部、翅膀和头部暴露在外。
注意:在将蜜蜂放入夹具前,必须确保其已完全固定。 - 使用5 mL注射器向蜜蜂喂食1 M蔗糖溶液,直至其不再饥饿。将已固定的蜜蜂放入一个装有湿润纸巾的盒子中,以确保环境湿度。
- 使用Barraquer Iris剪刀(见材料表)迅速切断蜜蜂头部,并用剪刀从前方打开头部,以解剖蜜蜂脑组织。
- 将脑组织从头壳中切除,用#5镊子取出脑组织,并将其放入100 μL的冷裂解缓冲液(4–8 °C)中。裂解缓冲液成分为:120 mM Tris-HCl、2%十二烷基硫酸钠(SDS)、5%甘油、0.2 mM二硫苏糖醇、1% Triton X-100,以及1–5 µg/mL的蛋白酶抑制剂PMSF(苯甲基磺酰氟)、抑肽酶和苯甲脒(pH 6.8),缓冲液温度为4 °C。用研杵在裂解液中研磨脑组织约2分钟,使其充分匀浆。
- 将样品在12,000 x g条件下离心20分钟。吸取90 μL上清液,弃去沉淀。
- 取1 μL上清液,使用荧光计测定总蛋白浓度。每只蜜蜂脑组织的总蛋白浓度约为2–3 mg/mL。取10 μL上清液,加入10 μL裂解缓冲液和10 μL 6x Laemmli缓冲液18。短暂离心后,在沸水中加热3分钟,随后在冰上冷却。在10,000 x g条件下离心1分钟,以去除所有杂质。十分之一只蜜蜂脑组织所含总蛋白量约为25 ng。
2. 蛋白质印迹法19
- 配制30 mL含12.15 mL超纯水、7.5 mL 1.5 M Tris-HCl(pH 8.8)、0.3 mL 10% SDS、10 mL 30%丙烯酰胺-双丙烯酰胺溶液、0.15 mL 10%过硫酸铵(APS)和20 μL四甲基乙二胺(TEMED)的10%分离胶。
- 在由间隔条隔开的两块玻璃板之间灌胶。
- 配制20 mL浓缩胶,包含12.1 mL超纯水、5.0 mL 0.5 M Tris-HCl(pH 6.8)、0.2 mL 10% SDS、2.6 mL丙烯酰胺-双丙烯酰胺溶液、0.1 mL 10% APS和20 μL TEMED。
- 待分离胶凝固后,倒入浓缩胶。小心插入塑料梳子以形成加样孔,避免产生气泡。静置15–30分钟,直至胶完全凝固。
- 开始上样,每泳道加入5 μL蛋白标准品。每泳道加入20 μL步骤1.8所得的裂解液混合物,相当于约1/15个蜜蜂脑组织或每泳道约16 ng总蛋白。在浓缩胶中以16 mA电流电泳,在分离胶中以32 mA电流继续电泳,总时间为3.5–4小时。当染料迁移出凝胶时停止电泳。
- 在转膜缓冲液(25 mM Tris-HCl、192 mM甘氨酸、15%甲醇)中,于4 °C、0.45 mA条件下将蛋白转印至硝酸纤维素膜上,持续1小时30分钟。
- 为在免疫印迹前评估SDS-PAGE后蛋白转印效率,加入丽春红S染色液(将0.1 g丽春红S和5 mL冰醋酸溶于水中,定容至100 mL),4 °C孵育1分钟,随后用蒸馏水快速漂洗。
- 用圆珠笔标记各泳道,将含有两道脑匀浆样品和一道蛋白标记物的膜剪下,分别放入Western blot孵育盒中。用含0.1% Tween 20的磷酸盐缓冲液(PBS-Tw)洗涤3次,每次5分钟。
- 在Western blot孵育盒中用10%正常山羊血清(NGS)(1 mL正常山羊血清加入10 mL PBS-Tw)封闭膜1小时。配制抗-mGlutR1抗体稀释液(5 μL抗体加入10 mL 10% NGS)。配制抗-RDL1和抗-RDL2抗体稀释液(每种抗体各取5 μL加入10 mL 10% NGS)。将各孵育盒中的封闭液替换为相应稀释的一抗溶液,4 °C孵育过夜(16–24小时)。
- 用PBS-Tw洗涤膜3次,每次5分钟。室温下用1:10,000稀释的HRP标记抗兔IgG二抗在10% NGS PBS-Tw中孵育膜2小时。用PBS-Tw洗涤3次,再用PBS洗涤1次。
- 使用化学发光HRP底物检测条带。在室温下将两种底物按1:1(v/v)混合,将所有膜放入同一容器中,加入底物混合液覆盖膜,避光(暗室红光下)孵育2分钟。随后使用X射线胶片进行蛋白检测,采用不同曝光时间。通常在一个含有相同稀释度脑匀浆样品(两到三个泳道)和一个分子量标记物泳道的膜上测试一种抗体。
3. 免疫细胞化学实验步骤
- 为进行免疫细胞化学实验而解剖蜜蜂脑组织时,先将蜜蜂置于冰上固定30秒。蜜蜂被固定后,用剪刀将其头部剪下,并将头放入含4%多聚甲醛的PBS溶液中。操作需在通风橱内进行。
注意:身体部分必须小心处理,因为即使在去头后,腹部仍可能蜇人。 - 使用Barraquer Iris剪刀小心而迅速地去除触角、复眼,并沿头部顶端外骨骼周围完全剪开。将头部在固定液中静置10分钟。随后去除头部其余的外骨骼,并切断所有残留的气管。
- 将每个脑组织放入含有至少1 mL 4%多聚甲醛溶液的1.5 mL微量离心管中,在4–8 °C下过夜孵育。
- 在锥形瓶中将3.8 g琼脂糖与50 mL蒸馏水混合,配制7.6%琼脂糖溶液。将溶液放入微波炉加热,直至琼脂糖完全溶解。
注意:可在锥形瓶口覆盖一小片纸巾,以防止加热过程中琼脂糖溶液溢出。 - 将固定好的蜜蜂脑组织(3–4个脑)放入35 mm培养皿中,用纸巾吸去多余的固定液。将液态琼脂糖溶液倒入培养皿,覆盖脑组织。调整脑组织在琼脂糖中的方向,使触角叶朝上。待琼脂糖冷却并凝固。
- 琼脂糖完全凝固后,将含有脑组织的琼脂糖块逐一切下。
- 为进行振动切片,准备一个24孔板,每孔中放置底部带有疏水性网膜的篮子,并向每孔加入600 µL PBS溶液。
- 使用振动切片机将每个琼脂糖块切成70 µm厚的横切片,并将切片放入含PBS的篮子中。
注意:确保来自同一脑组织的切片置于同一个篮子中。 - 用PBS-TX溶液对脑切片进行6次洗涤,每次10分钟,以确保彻底去除残留固定剂。将多孔板置于旋转摇床上,以210 rpm速度洗涤脑组织。每次洗涤前需更换新鲜的PBS-TX溶液。在最后一次洗涤期间,使用1%正常驴血清进行封闭。
- 为检测抗-mGlutR1一抗,取80 µL抗-mGlutR1抗体加入9 mL PBS-TX溶液中,于15 mL离心管中配制1:112稀释的工作液。短暂涡旋混匀。抗体工作稀释度由预实验确定。
- 为检测抗-RDL一抗,取30 µL抗-RDL肽1、30 µL抗-RDL肽2与6 mL PBS-TX溶液加入15 mL离心管中,配制1:100稀释的工作液。短暂涡旋混匀。抗体工作稀释度由预实验确定。
- 向每孔中加入800 µL抗体溶液。盖好板盖,并用铝箔包裹多孔板,防止光照导致抗体降解。将包裹好的多孔板置于旋转摇床上,以210 rpm振荡2小时,随后在室温下静置过夜。
- 脑切片孵育过夜后,用PBS-TX溶液洗涤10分钟,重复洗涤6次。
- 配制二抗(驴抗兔IgG)工作液:取40 µL二抗加入9 mL PBS-TX溶液中,制成1:225稀释液。
- 向每孔加入800 µL二抗稀释液。盖好板盖,并用铝箔包裹。将多孔板置于旋转摇床上,以210 rpm振荡2小时,随后在室温下静置过夜。
- 用PBS-TX溶液洗涤脑切片3次,每次10分钟;再用普通PBS溶液洗涤3次。
- 为将切片封固于载玻片上,按Rodriguez等20的方法改良配制封片介质/甘油封固液:将5 g封片介质加入20 mL PBS中,使用磁力搅拌器搅拌16小时。加入10 mL甘油,继续搅拌16小时。在4,000 x g条件下离心15分钟,取上清液,分装至1 mL离心管中,于-20 °C保存。
- 用步骤3.17配制的封片介质取一滴,将切片封固于载玻片上,确保每张载玻片上的切片来自同一个脑组织。
- 使用偶联肽进行免疫染色的预吸附对照实验
- 对于抗-RDL抗体与偶联肽,将抗-RDL抗体工作液与相应肽偶联物在室温下于摇床上孵育过夜:条件1)500 μg通过戊二醛与钥孔血蓝蛋白(KLH)偶联的肽;条件2)不加任何偶联物。
- 将两种混合物分别在10,000 x g条件下离心10分钟,收集上清液(步骤3.19.1)。
- 用两种条件所得上清液分别孵育蜜蜂脑组织的连续切片,并按上述方法使用二抗进行后续处理。连续切片指在振动切片过程中依次切下的切片,以确保脑组织的相同区域分别接受阳性与阴性对照处理。
- 对于抗-mGlutR1抗体与偶联肽,将抗-mGlutR1抗体工作液在室温下与含10-4 M肽的KLH偶联肽(条件1)或无任何偶联物(条件2)共同孵育。
- 将两种混合物分别在10,000 x g条件下离心10分钟,收集两种对照的上清液。
- 用两种条件所得上清液分别孵育蜜蜂脑组织的连续切片,并按步骤3.14–3.15使用二抗进行后续处理。
- 使用封片介质(步骤3.17)将两种条件的切片分别封固于载玻片上。
4. 注射相应的CRISPR-Cas9系统后,通过免疫细胞化学(第3节)检测蜜蜂脑中RDL和mGlutR1蛋白的表达
- 使用在线 CRISPR-Cas9 设计工具21,基于 AmRdl(XM_006565102.3)和 mGlutR1(XM_006566244.3)的基因组 DNA 序列设计向导 RNA(见表1)。订购带有 5' 端荧光染料 ATTO550 标记的 Cas9 crRNA 和 Cas9 tracrRNA。同时订购 Cas9 核酸酶 V3(参见材料表)。
- 使用无核酸酶水配制每种向导 crRNA 和 tracrRNA 的 100 µM 储存液。分装后于 -20 °C 保存。通过将 2.5 µL 的 Cas9 核酸酶 V3(10 mg/mL)加入 47.5 µL 无核苷酸缓冲液中,配制工作浓度的 Cas9 溶液,最终浓度为 0.5 µg/µL。制备用于显微注射的 gRNA 和 RNP 复合物。
- 分别制备每种向导 RNA 的 gRNA 复合物(guideRNA:tracrRNAATTO550)
- 用 gRNA 名称标记一支离心管,加入 92 µL 无核苷酸缓冲液、4 µL 的 100 µM CRISPR-Cas9 tracrRNA-5'ATTO550 以及 4 µL 的向导 crRNA 溶液。轻轻混匀后离心。
注:RDL 向导 RNA 管的标记示例:GRDL1、GRDL2、GRDL3(对应于表1中的 RDL 向导 RNA)。mGlutR1 向导 RNA 管的标记示例:GMGL1、GMGL2、GMGL3(表1)。 - 将溶液在 95 °C 加热 5 分钟以形成 gRNA,随后在室温冷却 10 分钟。
- 用 gRNA 名称标记一支离心管,加入 92 µL 无核苷酸缓冲液、4 µL 的 100 µM CRISPR-Cas9 tracrRNA-5'ATTO550 以及 4 µL 的向导 crRNA 溶液。轻轻混匀后离心。
- 制备 RNP 复合物(gRNA:S.p Cas9 核酸酶)、递送混合物及对照组。
- 用 RNP 名称标记一支离心管,加入 6 µL gRNA 溶液和 6 µL 的 0.5 µg/µL S.p Cas9 核酸酶 V3。轻轻混匀后,在 37 °C 孵育 10 分钟,随后用于显微注射。
注:RNP 管标记示例:RRDL1、RRDL2、RRDL3。 - 制备 RNPRDLmix 混合液。将来自 RDL 的每种 RNP 各取 4 µL 混合,得到最终用于注射的混合液:RNP/RDL mix = 4 µL RRDL1 + 4 µL RRDL2 + 4 µL RRDL3。
- 制备 RNPmGlutR1mix 混合液。将来自 mGlutR1 的每种 RNP 各取 4 µL 混合,得到最终用于注射的混合液(RNPmGlutR1mix)= 4 µL RMG1 + 4 µL RMG2 + 4 µL RMG3。
注:RNP 管标记示例:RMG1、RMG2、RMG3。 - 制备无向导 RNA 的对照溶液:在未加入向导 RNA 的情况下(见步骤 4.3),将 4 µL tracrRNA、92 µL 缓冲液和 4 µL 水混合。取 6 µL 该无向导 RNA 溶液与 6 µL 的 0.5 µg/µL Cas9 核酸酶 V3(步骤 4.4.1)混合,制得对照注射溶液。
- 用 RNP 名称标记一支离心管,加入 6 µL gRNA 溶液和 6 µL 的 0.5 µg/µL S.p Cas9 核酸酶 V3。轻轻混匀后,在 37 °C 孵育 10 分钟,随后用于显微注射。
5. 注射操作步骤
- 按照步骤 1.3 所述固定每只蜜蜂,并按照步骤 1.4 进行饲喂。接着准备两组木质盒子,用于注射后释放蜜蜂:一个白色盒子(实验条件)和一个黑色盒子(对照)。每个盒子内应放置一小段蜂巢和一个饲喂用培养皿。每个盒子的一侧为玻璃材质,以便观察。
- 制备饲喂用培养皿。取一个 35 mm 培养皿的皿盖,在其内表面放入石蜡,再将培养皿底部置于石蜡上固定。将该培养皿牢固地安装在盒子中。
- 使用 5 mL 注射器,将 1M 蔗糖溶液注入培养皿皿盖与底部之间。蜜蜂可迅速将喙伸入两层之间取食,并在 48 小时的孵育期间保持干燥。每个盒子中放入一个培养皿。
- 准备显微注射系统时,用矿物油填充毛细管,确保无任何气泡。将毛细管装入显微注射系统的注射器固定架中。为将所需注射溶液装入毛细管,先将疏水膜置于平坦表面,并将溶液滴加其上。从毛细管中推出矿物油,并用相应的 RNP 混合液替换。
- 使用显微注射系统,将 345 nL 的 RNP 混合溶液直接注射至每只蜜蜂的中单眼。
- 对于 RDL-CRISPR-Cas9 注射,使用步骤 4.4.2 所述方法制备的 RNPRDLmix 混合液对八只蜜蜂进行注射。注射后饲喂 1M 蔗糖溶液。将它们释放至装有小段蜂巢和饲喂用培养皿的白色盒子(实验组)中,孵育 48 小时。另取八只蜜蜂作为对照组,不进行任何注射,饲喂后释放至黑色盒子(对照组)中。
- 对于 mGlutR1 CRISPR-Cas9 实验,使用步骤 4.4.3 所述方法制备的 RNPmGlutR1mix 混合液对九只蜜蜂进行注射。对照组则使用步骤 4.4.4 所述方法制备的不含向导 RNA 的混合液(RNAmix_noguide)对八只蜜蜂进行注射。注射后饲喂 1M 蔗糖溶液。将蜜蜂从固定装置中释放至如 5.1 节所述准备的白色盒子(实验条件)或黑色盒子(对照)中。
- 将盒子放入内含湿润纸巾的聚苯乙烯容器中以维持湿度。蜜蜂孵育 48 小时,每天观察两次,确保其食物充足且湿度适宜。
- 在 48 小时后解剖每只蜜蜂的大脑(步骤 3.1),并按照第 3 节所述进行免疫细胞化学处理。抗 mGlutR1 免疫染色采用步骤 3.11,抗 RDL 免疫染色采用步骤 3.12。
- 进行共聚焦成像,以评估免疫染色脑切片中的荧光强度水平。
- 为评估免疫标记大脑中蛋白水平的降低情况,需对对照组和注射组的大脑使用相同的增益水平进行共聚焦图像采集。
6. 基于qPCR的脱差检测法评估CRISPR Cas9 RNPRDLmix注射后48小时基因组RDL DNA的修饰情况
- 设计引物、对照探针和drop-off探针,以评估经CRISPR-Cas9注射后DNA的修饰程度。每个引物的设计应使其至少侧翼包含一个CRISPR-Cas9向导序列,扩增子大小为132 bp。所用引物和探针如下:
RDL1_For: CTCGGAGTGACCACCGT
RDL1_Rev: CAACGAGGCGAACACCAT
RDL1_control_probe: /5HEX/CGA+C+G+TTT+A+C+CT/3IABkFQ/
RDL1_Drop-off_probe: /56-FAM/CCTA+C+G+T+CA+A+GT/3IABkFQ/- 确保引物对应于该区域特异的唯一序列。确保drop-off探针设计在与RDL-CRISPR-Cas9向导序列重叠的区域。
- 为检测向导序列区域的基因组DNA是否发生修饰,使用第5.3.1步所述的RNP_RDL混合物向12只蜜蜂的单眼中注射,并以8只未注射的蜜蜂作为对照。
- 注射后48小时解剖取出蜜蜂脑组织(不含视叶),并使用试剂盒按照制造商说明书提取每只注射组和对照组蜜蜂脑组织(不含视叶)的基因组DNA(见材料表)。
- 使用分光光度计评估所提取基因组DNA的浓度、质量和纯度。
- 采用基于qPCR的drop-off方法和实时PCR仪定量分析AmRDL基因组DNA的相对修饰水平。
- 将寡核苷酸重悬至100 µM,将引物稀释至10 µM,探针稀释至5 µM。
- 在96孔板中设置PCR反应体系,单个gDNA样本(设3个重复)如下:10 µL预混液(见材料表),1 µL正向引物,1 µL反向引物,1 µL对照探针,1 µL drop-off探针,2 µL gDNA(50 ng),4 µL无核酸酶水,最终反应体积为20 µL。
注:对照组使用溶液替代样本,用水替代探针。 - 为实时PCR仪设置如下扩增程序:95 °C预变性3分钟,随后进行40个循环(95 °C变性15秒,60 °C退火延伸1分钟)。
- 采用2-ΔΔCt法计算相对基因修饰水平,其中
 和

7. 注射RNPRDLmix后48小时RDL RNA的相对定量
- 为了检测RDL mRNA是否减少,按照步骤5.3.1所述方法,向20只蜜蜂的单眼注射RNP_RDL混合物,并以12只未注射的蜜蜂作为对照组。注射后48小时解剖取出蜜蜂脑组织(不含视叶),从每只注射过的蜜蜂中提取总mRNA,并按照试剂盒说明书进行分离(参见材料表)。
- 使用去DNA试剂盒去除样品中残留的DNA(参见材料表)。
- 使用分光光度计评估提取RNA的质量和纯度。
- 采用市售的荧光绿色RT-PCR试剂盒(材料表),在实时荧光定量PCR仪上按照说明书对384孔板进行操作,定量检测AmRDL的表达水平。
注意:本实验使用了先前已发表的引物序列。AmRDL基因引物为AmRDL_F GGTCGATGGGCTACTACCTG;AmRDL_R TCGATCGACTTGACGTAGGA22,以肌动蛋白基因作为内参基因(AmActin_F TGCCAACACTGTCCTTTCTG;AmActin_R GAATTGACCCACCAATCCA)23。相对基因表达量通过2-ΔΔCt法计算(步骤6.6)。
8. 基于 qPCR 的降落式检测法评估 RNPmGlutR1mix 注射后 48 小时的基因组 DNA 修饰情况
- 设计引物、对照探针和脱落探针,以评估经CRISPR-Cas9注射后DNA的修饰程度。引物设计应使其扩增子至少包含一个CRISPR-Cas9向导序列,且扩增子大小为96 bp。
mGlutR1_For: GGTGAAACGAACGACGGA
AmGlurR1_Rev: GGAGAGAGGGAGCGAGAA
AmGlurR1_control_probe: /5HEX/CGAGG+G+AAA+CGA+GT/3IABkFQ/
AmGlurR1_Drop-off_probe: /56-FAM/CGA+C+A+C+CG+TC/3IABkFQ/
注意:确保引物对应于唯一且特异于预期修饰区域的序列。脱落探针应设计在与CRISPR-Cas9向导序列重叠的区域。 - 为检测向导序列区域gDNA是否发生修饰,按照步骤5.3.1所述方法,向12只蜜蜂的单眼注射RNP_GlutR1混合物,并以8只未注射蜜蜂作为对照组。
- 注射后48小时解剖取出蜜蜂脑组织(不含视叶),并按照试剂盒说明书(见材料表)分别提取每只注射组和对照组蜜蜂脑组织(不含视叶)的基因组DNA(gDNA)。
- 使用分光光度计评估所提取gDNA的浓度、质量和纯度。
- 按照步骤6.5所述实时荧光定量PCR(qPCR)脱落法检测程序,在实时PCR仪上定量分析gDNA中AmGlutR1位点的相对修饰水平。
- 采用2-ΔΔCt法评估相对基因修饰水平,其中
 和

9. 注射 RNPmGlutR1mix 后 48 小时 mGlutR1 RNA 的定量
- 为检测 mGlutR1 RNA mRNA 是否减少,按照步骤 5.3.2 所述方法,用 RNP_RDL 混合物向六只蜜蜂的单眼内注射,并以六只未注射的蜜蜂作为对照。注射后 48 小时解剖取出蜜蜂脑组织(不含视叶),提取每只注射蜜蜂的总 mRNA,并按照试剂盒说明书的 RNA 分离方案进行分离(见材料表)。
- 使用去 DNA 试剂盒去除样品中残留的 DNA(见材料表)。
- 使用分光光度计评估提取 RNA 的质量和纯度。
- 采用 SYBR Green RT-PCR 试剂盒(见材料表),在实时荧光定量 PCR 仪上按照 384 孔板试剂盒提供的操作程序,定量检测mGlutR1 的表达水平。使用以下 mGlutR1 引物(mGlut_F CCTCCTCAACGTCTCCTTCATA;mGlut_R TGCCGTTGTGTTCCGATTT)以及以肌动蛋白引物作为内参基因 [AmActin_F TGCCAACACTGTCCTTTCTG;AmActin_R GAATTGACCCACCAATCCA]。采用 2-ΔΔCt 法计算相对基因表达量(步骤 8.6)。
结果
抗 RDL 抗体检测
抗体是针对 RDL 多肽偶联物制备的,如图 1A所示。表征抗 RDL 抗体的第一步是使用 Western blot 检测从蜜蜂脑组织提取的蛋白匀浆,所用一抗为抗 RDL 抗体,二抗为 HRP 标记的山羊抗兔 IgG(图 1A,插图)。两种抗 RDL 抗体均识别出位于约 50–60 kD 的条带(箭头所示),该分子量与 RDL 亚基异构体蛋白的预测大小相符。为了证明抗 RDL 抗体能够识别脑切片中的多肽,我们采用了预先吸附对照实验(图 1B,C)。当抗体在使用前与偶联多肽预先孵育时,切片上无染色信号。这表明抗 RDL 抗体特异性识别其对应的免疫原性偶联多肽。为了进一步验证抗 RDL 抗体在固定脑组织中识别目标蛋白的能力,我们利用 CRISPR-Cas9 技术敲除了细胞中编码 RDL 蛋白的 RDL 基因。图 1D1-3显示的是未注射 RDL-CRISPR-Cas9 RNP 的对照组蜜蜂前脑切片,经抗 RDL 抗体标记后的结果。图 1D1中,抗 RDL 抗体标记了蜜蜂前脑切片中的神经毡结构;而在图 1D2的同一前脑切片中,由于未注射 RDL-CRISPR-Cas9 复合物,ATTO550 荧光信号缺失。
图1E1-E3 显示了一只蜜蜂脑切片,该蜜蜂被注射了 RDL-CRISPR-Cas9,随后使用的抗体用量与 图1D1-D3 中对照组蜜蜂脑组织相同。注射后48小时,全脑的抗RDL染色显著减少,脑内ATTO550染色的分布(图1E2)表明RDL-CRISPR-Cas9成功注入蜜蜂中单眼。脑内多个分散的细胞显示出ATTO550信号。成功注射RDL-CRISPR-Cas9后,与对照组相比,蛋白表达水平降低(图1E1-3)。在八只免疫染色的蜜蜂脑组织中,仅有一只脑组织在蘑菇体、前脑和触角叶细胞中显示出高水平的RDL-CRISPR-Cas9分布,而其余脑组织仅在蘑菇体萼、中央复合体中有ATTO550细胞染色,但在触角叶中未见染色。值得注意的是,在这些蜜蜂中,抗RDL免疫染色的减少程度不如 图1E1 所示脑组织中那样显著。
接下来,为了评估蜜蜂在注射 RDL-CRISPR-Cas9 后 48 小时内 RDL 基因组 DNA(gDNA)的修饰水平,我们进行了 qPCR 缺失检测,其中缺失探针被设计为与其中一个 RDL gRNA 区域匹配。在这些实验中,注射了 RDL-CRISPR-Cas9 的蜜蜂脑组织中,荧光信号的相对降低程度对应于样本中被修饰的 gDNA 数量。在我们的检测中,与未注射的蜜蜂相比,12 只注射了 RDL-CRISPR-Cas9 的蜜蜂其 gDNA 中该向导 RNA 对应区域的信号为 64% ±(均值 ± 30% 标准差)(图 3A)。
接下来,为了评估蜜蜂在注射后48小时RDL RNA的水平,我们在另一组蜜蜂中进行了qRT-PCR实验(图3B)。我们将注射了RDL-CRISPR-Cas9的蜜蜂(n = 19)与未注射的蜜蜂(n = 12)的RDL RNA水平进行了比较。在这些实验中,与未注射蜜蜂的RNA水平相比,RDL mRNA的相对减少量为59% ±(平均值 ± 15% 标准误差)。当我们单独检测每只蜜蜂的RDL RNA水平时,发现19只蜜蜂中仅有13只表现出RNA的显著降低。这些数据表明,通过单眼注射RDL-CRISPR-Cas9可能并非总能到达大量脑细胞,这与RDL免疫染色的RDL-CRISPR-Cas9注射蜜蜂的实验结果一致。在这些样本中,8只蜜蜂中仅有1只在多个脑区(蘑菇体、前脑和触角叶)检测到广泛的RDL CRISPR-Cas9分布;而在其他蜜蜂脑组织中,RDL-CRISPR-Cas9的分布主要集中在前脑区域的细胞(蘑菇体萼部和中央复合体),而未见于触角叶(图4A-D)。
抗mGluR1抗体检测
我们使用了兔源性抗mGluR1抗体,该抗体针对与特定肽段偶联的抗原产生 黑腹果蝇 (图2A)。该肽序列与蜜蜂肽(CLSDKTRFD)具有94%的同源性YFARTVPPD) 图2A首先,我们使用免疫印迹法检测了针对蜜蜂脑蛋白的抗体。将蜜蜂脑匀浆物通过10% SDS-PAGE分离后,电泳转移至硝酸纤维素膜,并用抗mGlutR1抗体进行染色。插图中 图2A 显示两条估计分子量分别为103和83 kD的条带,对应于两种同工型。当我们用该抗体检测蜜蜂脑组织时,发现其可标记蜜蜂脑切片中的神经毡结构和细胞,如图所示。 图2B,D. 用偶联的 mGluR1 肽预吸附抗 mGluR1 抗体后,蜜蜂脑切片中的特异性染色消失(图2C)。这证实了抗mGluR1抗体能够识别该肽段图2C)。接下来,我们在中单眼注射了 mGlutR1-CRISPR-Cas9 混合物,并使用了无向导RNA作为对照。在对照组蜜蜂(n = 7)中,ATTO550 的荧光未在细胞内集中,部分脑组织显示出弥散分布的 ATTO550 荧光标记。因此,对照组样本中的制备 图2D1-3 显示脑部存在抗-mGlutR1染色,但无ATTO550荧光。当将mGlutR1-CRISPR-Cas9注射至眼点并被大量细胞摄取后,摄取功能性mGlutR1RNP区域的二抗荧光强度显著降低图2E1-3)。蜜蜂被监测了48小时,每种实验条件下各有一只蜜蜂死亡。因此,本实验共检测了七只对照组蜜蜂和八只CRISPR-Cas9处理组蜜蜂。所有注射了CRISPR-Cas9的蜜蜂均存在摄取mGlutR1-CRISPR-Cas9的细胞,这些细胞主要位于蘑菇体萼、中央复合体和后侧前脑。七只蜜蜂中仅有两只在蘑菇体、中央复合体和触角叶的多个细胞中显示出ATTO550标记。其中一只蜜蜂的示例如图所示 图2E这些样本中mGlutR1染色水平的降低具有显著性。其余五只蜜蜂在蘑菇体和后侧前脑中显示出ATTO550标记,表明mGlutR1 CRISPR-Cas9成功递送,但在触角叶中未见标记。
接下来,为了评估蜜蜂在注射后48小时时mGlutR1基因组DNA的修饰水平,我们进行了基于qPCR的drop-off检测,其中drop-off探针设计在mGlutR1向导序列附近的区域。在这些实验中,注射了mGlutR1-CRISPR-Cas9的蜜蜂脑组织中,12只蜜蜂的基因组DNA相对修饰水平为59% ± 33%(均值 ± 标准差),与未注射的蜜蜂相比(图3A)。
这些结果在另一组蜜蜂中通过qRT-PCR检测得到了验证,我们在注射RNPmGlutR1mix后48小时,利用qRT-PCR估测了蜜蜂体内mGlutR1 RNA的水平(图3B)。我们将注射了mGlutR1-CRISPR-Cas9的蜜蜂(n = 6)与未注射的蜜蜂(n = 6)体内的mGlutR1 RNA水平进行了比较。在这些实验中,与未注射的蜜蜂相比,注射组蜜蜂mGlutR1 mRNA的相对减少量为53% ±(平均值 ± 18% 标准误)(图3B)。
在蘑菇体的肯扬细胞中表达RNP RDL-CRISPR-Cas9的四只不同蜜蜂的切片如图4A-D所示。蘑菇体和触角叶中具有ATTO550荧光信号的蜜蜂示例见图4E,F。
| 向导序列 | 序列 | gRNA | RNP |
| [guideRNA:tracrRNA] | [gRNA:Cas9 核酸酶] | ||
| RDL_Guide1 | ACCGTAACGCGACCCCCGCT | GRDL1 | RRDL1 |
| RDL_Guide2 | AACGTCGATCGACTTGACGT | GRDL2 | RRDL2 |
| RDL_Guide3 | CCATGACGAAACACGTGCCC | GRDL3 | RRDL3 |
| mGlu_Guide 1 | CGAAAGTTATCTGACGGTGT | GMGL1 | RMGL1 |
| mGlu_Guide 2 | TTCAACGAGAGCAAGTTCAT | GMGL2 | RMGL2 |
| mGlu_Guide 3 | GCAAACGTCGGTAGGAGTGA | GMGL3 | RMGL3 |
表1:RDL 和 mGlutR1 基因设计的向导核苷酸序列。
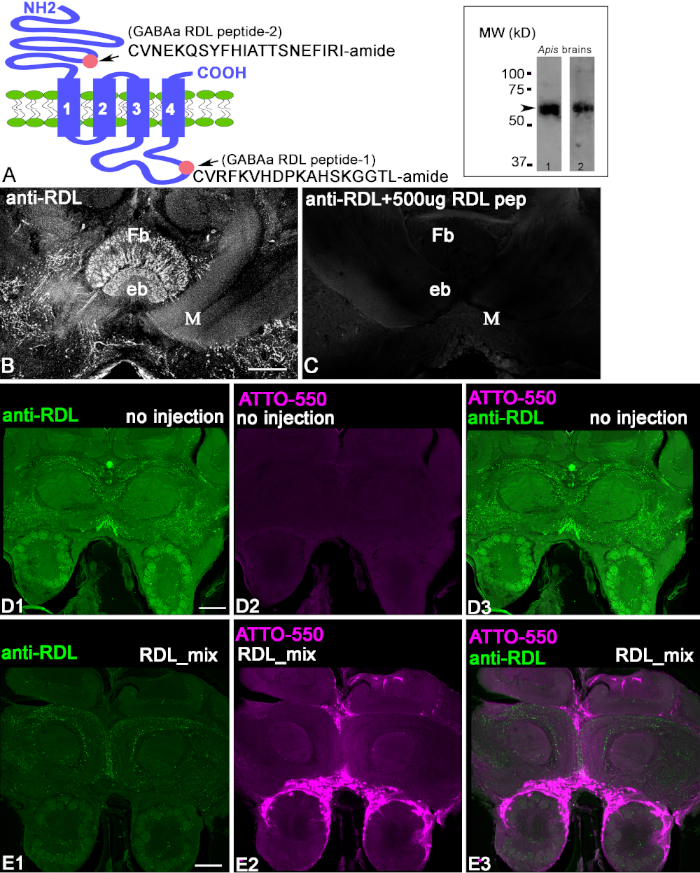
图1:抗RDL抗体的表征。(A)RDL亚基示意图,其中粉色圆圈表示肽段2(胞外区CVNEKQSYFHIATTSNEFIRI-酰胺)位于N端,肽段1(胞内区CVRFKVHDPKAHSKGGTL-酰胺)位于C端。A图插图显示使用相应抗RDL抗体(分别使用抗RDL pep1和抗RDL pep2)处理蜜蜂脑提取物后在Western blot中出现的条带。每条免疫印迹显示蛋白质的表观分子量约为50–60 kD,与RDL亚基各种亚型的估计分子量相符。(B,C)使用偶联肽1对抗RDL抗体进行预先吸附。图C显示当抗体预先与偶联肽1孵育后,切片中的染色信号减弱。扇形体(Fb)和椭球体(eb)是脑内中央复合体的结构。M = 蘑菇体的内侧叶。(D1–3)注射前对照蜜蜂脑切片在48小时后的抗RDL染色结果。绿色表示脑内抗RDL阳性信号。(D2)该蜜蜂未注射,不含ATTO550荧光信号。(D3)D1与D2图像的合并结果。(E1–3)注射RDL-CRISPR-Cas9后48小时,抗RDL染色信号减少。(E2)细胞核中的ATTO550荧光表明RDL-CRISPR-Cas9成功递送。(E3)抗RDL(绿色)与ATTO550(红色)的合并图像。比例尺 = 100 μm(B–E)。请点击此处查看该图的放大版本。
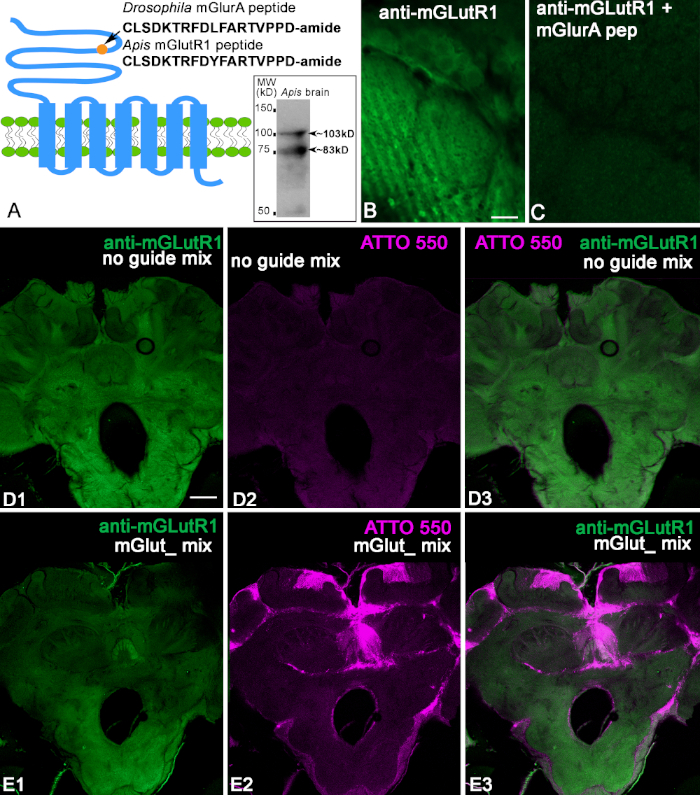
图2:抗-mGluR1抗体的表征。(A)mGluR受体(GCPR家族)的示意图,显示用于免疫的Drosophila melanogaster多肽序列;为作比较,下方同时展示了Apis mellifera的对应多肽序列。圆圈表示该多肽位于mGluR1受体胞外域N端的位置。图A插图显示,抗-mGluR1抗体在蜜蜂脑组织的Western blot中识别出两条条带,分子量分别约为103 kD和83 kD,与已知异构体的预测分子量相符。(B,C)抗-mGluR1抗体在触角叶小球连续切片上的预吸附对照实验。图C显示,在使用抗-mGluR1多肽预先孵育抗体后,抗-mGluR1信号明显减弱。该处理导致抗体从溶液中沉淀,从而消除染色,与图B(对照组,预孵育中未加多肽)形成对比。(D1)在中单眼注射对照溶液后,蜜蜂脑切片中抗-mGluR1的染色情况。该注射未包含可介导CRISPR-Cas9敲低mGluR1受体的mGluR1 gRNA,因此抗-mGluR1抗体的染色未减弱(绿色)。(D2)ATTO550荧光的缺失表明脑组织中无功能性CRISPR-Cas9存在。(D3)抗-mGluR1与ATTO550的合并图像。(E1-E3)显示在中单眼注射mGluR1-CRISPR-Cas9后48小时,mGluR1受体被永久敲除的脑切片中抗-mGluR1的染色情况。因此,由于mGluR1在多种细胞中成功敲除,该脑组织中的染色显著减弱。(E2)蜜蜂脑组织多个细胞核中出现ATTO550染色,表明mGluR1-CRISPR-Cas9注射成功。(E3)ATTO550(红色)与抗-mGluR1(绿色)的合并图像。比例尺 = 10 μm(B,C);100 μm(D,E)。请点击此处查看该图的高清版本。
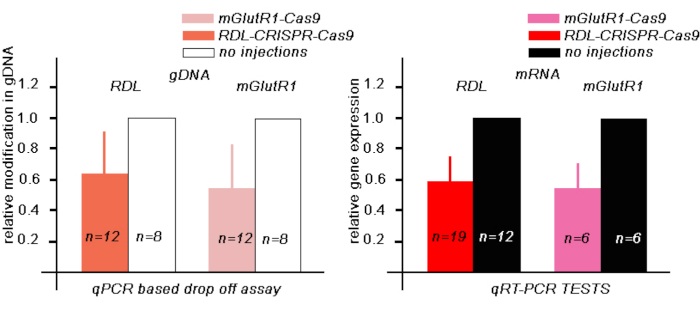
图3:注射345 nL相应RPN CRISPR-Cas9后48小时蜜蜂脑组织中RDL和mGlutR1基因组DNA修饰及mRNA表达的评估。(A)采用基于qPCR的下降检测法,通过2-ΔΔCt法计算发生修饰的gDNA含量,并以未注射的对照组脑组织为基准进行归一化处理。数据以均值 ± 标准差(SD)表示。(B)采用qRT-PCR检测注射CRISPR-Cas9与未注射蜜蜂中mRNA的含量,以内参基因AmActin进行标准化,相对基因表达量通过2-ΔΔCt法计算,并以未注射的对照组脑组织为基准进行归一化。数据以均值 ± 标准误(SE)表示。请点击此处查看该图的高清版本。
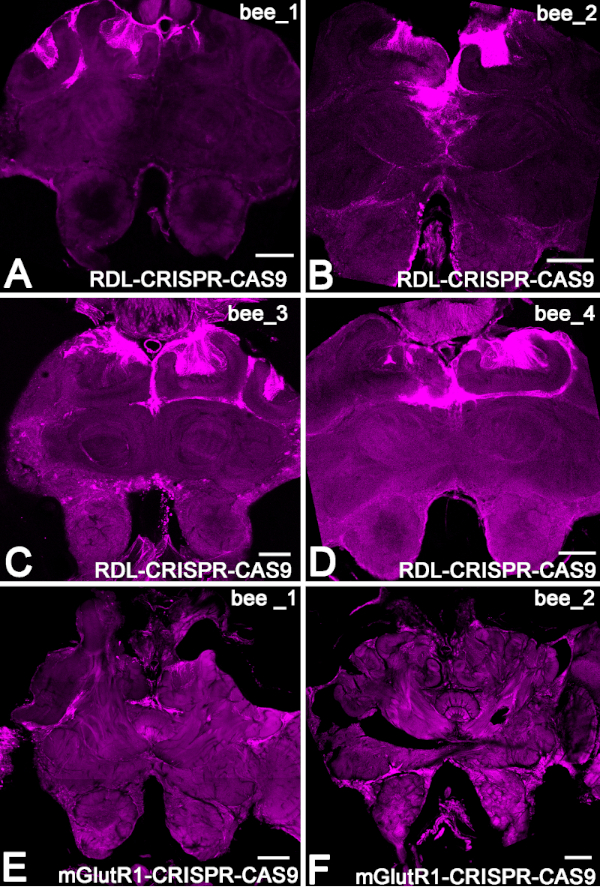
图4:通过ATTO550荧光显示RNP CRISPR-Cas9在蜜蜂脑中分布的示例。(A-D)来自四只不同蜜蜂的脑切片,这些蜜蜂在蘑菇体的肯扬细胞中表达了RNP RDL-CRISPR-Cas9。(E,F)注射RNPmGlutR1 CRISPR-Cas9后48小时的两个脑组织示例。比例尺 = 150 μm(A-F)。请点击此处查看该图的高清版本。
讨论
抗RDL和抗mGlutR1抗体的表征
首先,我们通过免疫印迹和在固定蜜蜂脑切片上的预吸附实验对抗RDL和抗mGlutR1抗体进行了表征。每种抗体均可识别其所有已知的同工型,Western印迹分析显示,它们识别的条带与其预测的分子量相符。随后,在蜜蜂脑组织切片上,通过与制备抗体所用的偶联肽进行阻断实验,证实这两种抗体的信号均可被特异性抑制。
本研究的首要目标之一是验证针对特定偶联肽产生的抗体在固定脑组织中对其相应蛋白具有特异性。为此,我们利用了CRISPR-Cas9系统。我们针对蜜蜂的RDL和mGlutR1基因设计了特异性引导序列,并将每条引导序列用于构建带有荧光探针ATTO550标记的CRISPR-Cas9复合物。对于每种受体,我们将三种不同的CRISPR-Cas9核糖核蛋白混合物注射至小眼器官中,以在成年蜜蜂脑组织中降低目标蛋白的表达量,其机制是通过使摄取了我们设计的Cas9系统的细胞中相应基因被敲除。在本研究中,我们成功完成了这一关键步骤。
这些实验成功的关键步骤之一是设计合适的向导RNA。我们建议设计多达五条向导RNA,分别位于基因序列的起始、中间和末端区域。在初步研究中,我们在三到五只蜜蜂上以不同组合对这些向导RNA进行了测试。我们还尝试了不同的注射浓度、注射后的不同时间点,以及注射液中核糖核蛋白(RNP)的不同混合比例。通过解剖获取蜜蜂脑组织,并使用抗RDL和抗mGlutR1抗体进行处理。在这些初步测试中,我们确定了合适的组合方式、注射后取样时间,以及用于注射的CRISPR-Cas9的浓度和用量。这些初步实验为本文详细描述的实验方案的建立奠定了基础。
目的有两个:1)在蜜蜂中证明经过 CRISPR-Cas9 处理后,我们的抗体染色信号有所减弱;2)优化行为学研究的最佳实验条件。因此,我们发现,若在注射后 48 小时有大量细胞核含有 CRISPR-Cas9,则抗 RDL 和抗 mGlutR1 染色信号的减弱具有显著性。此外,该结果表明所测试的抗体可特异性识别蜜蜂脑组织中的 mGlut1 和 RDL 蛋白,可用于蜜蜂脑内蛋白定位研究。
用于行为学研究的 CRISPR-Cas9 实验设置
接下来,我们设计实验,使 CRISPR-Cas9 可用于行为学研究。每组实验分别采集 8 至 9 只蜜蜂用于对照组和实验组处理。在注射前后对蜜蜂进行行为学测试,随后对其脑组织进行 ATTO550 和/或免疫细胞化学处理,以确定目标蛋白表达降低的脑区。需要特别注意的是,每轮实验中对照组和实验组所用蜜蜂数量均限制在不超过 8 至 9 只,以便在同一天内完成两组的测试。此外,一旦配制好用于注射的 CRISPR-Cas9 混合液,我们从不将其冷冻保存。该混合液在连续使用 3 天并保存于 4–8 °C 条件下时,其活性未见变化。但我们未对超过 3 天后的混合液进行测试。
正如我们在结果部分针对两组实验注射和两种抗体所描述的,16只受试蜜蜂中仅有3只在蘑菇体、前脑和触角叶中显示出广泛的ATTO550分布。在其余所有蜜蜂中,CRISPR-Cas9的分布仅限于蘑菇体、中央复合体和/或后部前脑。对于任何行为学研究而言,关键的一点是:采用本注射方法,大多数蜜蜂中靶蛋白的减少仅局限于蘑菇体,不会扩展至触角叶或咽下神经节。因此,我们所使用的注射技术适用于在行为实验中研究蘑菇体和中央复合体中受体减少的影响,而若要研究其他脑区,则需要采用不同的CRISPR-Cas9导入方法。
总之,我们的研究证明了CRISPR-Cas9在脑组织抗体染色对照中的成功应用。对于两种抗体(抗RDL和抗mGlutR1),当mGlutR1-CRISPR-Cas9或RDL-CRISPR-Cas9成功进入细胞后,相应抗体的染色水平也显著降低。此外,需要注意的是,向小眼(ocelli)注射导致CRISPR-Cas9在脑内的分布并不均匀,其分布范围从仅限于小眼和蘑菇体周围的小区域,到遍布整个脑部的多个细胞不等。细胞对mGlutR1-CRISPR-Cas9或RDL-CRISPR-Cas9的摄取差异可能源于注射操作本身的变异。我们的数据表明,CRISPR-Cas9系统在蜜蜂中是有效的,但注射方法仍需改进,以减少不同蜜蜂脑组织间CRISPR-Cas9摄取的变异性。在克服这些限制的前提下,目前已有可能应用该技术在成年蜜蜂中进行基因操作,以开展行为学实验。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了以下资助:BHS 收到了人类前沿科学计划(Human Frontiers Science Program)、美国国立卫生研究院普通医学科学研究所(NIH NIGMS,项目号 R01 GM113967)以及美国国家科学基金会 Ideas Lab(项目号 1556337)的资助。用于 DmGluRA 的多肽和抗体由 Serge Birman 博士(法国马赛,Luminy)的实验室设计,当时 IS 受到法国医学研究基金会(Fondation pour la Recherche Medicale)紧急资助计划/博士后项目(UFP20060306548)的支持。我们感谢 Integrated DNA Technology(IDT)的 Daniela Junqueira Marosi 和 Alex Hanter 在 RDL 引物及 qPCR 下降检测实验设计方面提供的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乙酸 | Sigma-Aldrich | A6283_100 mL | western blotting |
| 丙烯酰胺-双丙烯酰胺 | Bio-Rad | 500 mL 1610156 | western blotting |
| 琼脂糖 | Sigma-Aldrich | A0169-250g | 与蒸馏水一起使用,用于将蜜蜂脑组织固定成块 |
| Alexa Fluor 488 AffiniPure F(ab')2 片段驴抗兔 IgG (H+L) | Jackson Research Laboratories | 711-546-152 | 用于显示兔来源的一抗的二抗 |
| Alt-R CRISPR-cas9 tracrRNA-5'ATTO | IDT | 1075934 | 与设计的引导RNA结合,形成gRNA |
| Alt-R S.p. Cas9 核酸酶 V3 | IDT | 1081058 | 用于制备CRISPR系统的核糖核蛋白复合物的酶 |
| 过硫酸铵 | Bio-RAD | 10 g 1610700 | western blotting |
| 抗mGlutR1抗体 | Covalab (FRANCE)/21st Century Biochemical | 由本文作者表征 | 用于蜜蜂中mGlut1的一抗孵育 |
| 抗RDL抗体 | 21st Century Biochemical | 由本文作者表征 | 用于蜜蜂中RDL的一抗孵育 |
| 抑肽酶 | Sigma-Aldrich | Y0001154 | 蛋白酶抑制剂 |
| Barraquer虹膜剪刀 7mm刀片 尖端锋利 | World Precision Instruments | 14128-G | 用于蜜蜂脑组织解剖 |
| 苯甲脒 | Sigma-Aldrich | 12072 | 蛋白酶抑制剂 |
| 刀片(可折断)用于刀片夹持器 | Fine Science Tool | 10050-00 | 用于western blotting的解剖 |
| 刀片夹持器和折断器 | Fine Science Tool | 15309 | 用于western blotting的解剖 |
| 硼硅酸盐玻璃毛细管 | World Precision Instruments | 1B100 F | 用于注射操作 |
| 化学发光western blot检测底物 | Bio-Rad | 1705062 | western blotting |
| 氯仿 | Sigma-Aldrich | 472476-50mL | RNA分离 |
| 二硫苏糖醇 | Bio-Rad | 1610611 | western blotting |
| DNA easy试剂盒 | QIAGEN | 69504 | DNA提取 |
| DNA-free试剂盒 | INVITROGEN | AM1907 | 用于去除DNA |
| Eppendorf Research plus移液器,三件套 | Sigma-Aldrich | Z683884 | |
| Falcon 24孔聚苯乙烯多孔板 | Falcon | 351147 | 多孔板 |
| 平底包埋胶囊,聚乙烯材质 | Electron Microscopy Science | 70021 | 脑切片用篮子 |
| Dumont #5镊子(一对) | Fine Science Tool | 11254-20 | 用于从头部解剖蜜蜂脑组织 |
| Dumont #5S镊子(一对) | Fine Science Tool | 11252-00 | 在解剖前清除脑组织周围的气管 |
| 基因表达主混合液 | Integrated DNA Technologies | 1055770 | qPCR滴定检测 |
| 戊二醛 | EMS | 16220 | 用于制备对照吸收实验的肽偶联物 |
| 甘油 | Sigma-Aldrich | G5516-500 mL | western blotting,包埋介质 |
| 甘氨酸 | Bio-Rad | 1610718 | western blotting |
| 疏水性过滤尼龙网 | Spectrum Labs | 145910 | 用于脑切片篮子的底部 |
| 异丙醇 | Sigma-Aldrich | I9030-50mL | RNA分离 |
| 钥孔血蓝蛋白 | Sigma-Aldrich | H7017 | 用于制备对照用偶联物 |
| LSM800共聚焦显微镜 | Zeiss | ||
| mGlu_Guide 1 | IDT | 为CRISPR-Cas9设计的引导RNA。靶向mGlutR1基因组序列 | |
| mGlu_Guide 2 | IDT | 为CRISPR-Cas9设计的引导RNA。靶向mGlutR1基因组序列 | |
| mGlu_Guide 3 | IDT | 为CRISPR设计的引导RNA。靶向mGlutR1基因组序列 | |
| 甲醇 | Sigma-Aldrich | 34860 | western blotting |
| 96孔PCR微孔板 | Applied biosystem | 4346907 | qPCR滴定检测和qRT-PCR |
| 384孔PCR微孔板 | Sigma-Aldrich | Z374911 | qRT-PCR |
| 矿物油 | Sigma-Aldrich | M5904_500mL | 用于注射操作 |
| Model p87 Flaming Brown微电极拉制仪 | Sutter Instrument Co. | 毛细管制备 | |
| Mowiol 4-88 | Sigma-Aldrich | 81381 | 用于包埋溶液 |
| Nanoliter 2000 | World Precision Instruments Nanoliter | 注射装置 | |
| 正常驴血清 | Jackson Research Laboratories | AB_2337258 | 免疫细胞化学的封闭剂 |
| 非免疫山羊血清 | Invitrogen | 50-062Z 100 mL | 免疫印迹的封闭剂 |
| 无核酸酶缓冲液 | IDT | 1072570 | 用于CRISPR-Cas9注射液制备的无核酸酶缓冲液 |
| 无核酸酶水 | IDT | AM9337 | 用于CRISPR-Cas9系统制备的无核酸酶水 |
| OrbitalShaker Mp4 | Genemate | ||
| 多聚甲醛 | Sigma-Aldrich | 158127-500 g | 与PBS混合用于制备蜜蜂脑组织的固定液 |
| 苯甲基磺酰氟(PMSF) | Sigma-Aldrich | P7626-250 mg | 蛋白酶抑制剂 |
| 磷酸盐缓冲液 | Sigma-Aldrich | P4417-100TAB | 与多聚甲醛一起用作固定剂;抗体缓冲液 |
参考文献
- Harms, D. W., et al. Mouse Genome Editing Using the CRISPR/Cas System. Current Protocols in Human Genetics. 83 (15), 7-27 (2014).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Kouranova, E., et al. CRISPRs for Optimal Targeting: Delivery of CRISPR Components as DNA, RNA, and Protein into Cultured Cells and Single-Cell Embryos. Human Gene Therapy. 27 (6), 464-475 (2016).
- Schubert, M., et al. Fluorescently labeled tracrRNA provides efficient genome editing while allowing cellular microscopy and FACS analysis. Genome Editing. , www.idtdna.com 1-3 (2017).
- Kucharski, R., Mitri, C., Grau, Y., Maleszka, R. Characterization of a metabotropic glutamate receptor in the honeybee (Apis mellifera): implications for memory formation. Invertebrate Neuroscience. 7 (2), 99-108 (2007).
- Aronstein, K., Auld, V., Ffrench-Constant, R. Distribution of two GABA receptor-like subunits in the Drosophila CNS. Invertebrate Neuroscience. 2 (2), 115-120 (1996).
- Thompson, M., Steichen, J. C., ffrench-Constant, R. H. Conservation of cyclodiene insecticide resistance-associated mutations in insects. Insect Molecular Biology. 2 (3), 149-154 (1993).
- Chung, B. Y., Kilman, V. L., Keath, J. R., Pitman, J. L., Allada, R. The GABA(A) receptor RDL acts in peptidergic PDF neurons to promote sleep in Drosophila. Current Biology. 19 (5), 386-390 (2009).
- Taylor-Wells, J., Hawkins, J., Colombo, C., Bermudez, I., Jones, A. K. Cloning and functional expression of intracellular loop variants of the honeybee (Apis mellifera) RDL GABA receptor. Neurotoxicology. 60, 207-213 (2017).
- Jones, A. K., Sattelle, D. B. The cys-loop ligand-gated ion channel superfamily of the honeybee, Apis mellifera. Invertebrate Neuroscience. 6 (3), 123-132 (2006).
- Dupuis, J. P., et al. Homomeric RDL and heteromeric RDL/LCCH3 GABA receptors in the honeybee antennal lobes: two candidates for inhibitory transmission in olfactory processing. Journal of Neurophysiology. 103 (1), 458-468 (2010).
- Farooqui, T., Robinson, K., Vaessin, H., Smith, B. H. Modulation of early olfactory processing by an octopaminergic reinforcement pathway in the honeybee. Journal of Neuroscience. 23 (12), 5370-5380 (2003).
- Guo, X., Wang, Y., Sinakevitch, I., Lei, H., Smith, B. H. Comparison of RNAi knockdown effect of tyramine receptor 1 induced by dsRNA and siRNA in brains of the honeybee, Apis mellifera. Journal of Insect Physiology. 111, 47-52 (2018).
- Roth, A., et al. A genetic switch for worker nutrition-mediated traits in honeybees. PLOS Biology. 17 (3), e3000171(2019).
- Kohno, H., Suenami, S., Takeuchi, H., Sasaki, T., Kubo, T. Production of Knockout Mutants by CRISPR/Cas9 in the European Honeybee, Apis mellifera L. Zoological Science (BIOONE). 33 (5), 505-512 (2016).
- Hu, X. F., Zhang, B., Liao, C. H., Zeng, Z. J. High-Efficiency CRISPR/Cas9-Mediated Gene Editing in Honeybee Apis mellifera Embryos. G3: Genes, Genomes, Genetics. 9 (5), 1759-1766 (2019).
- Smith, B. H., Burden, C. M. A Proboscis Extension Response Protocol for Investigating Behavioral Plasticity in Insects: Application to Basic, Biomedical, and Agricultural Research. Journal of Visualized Experiments. (91), e51057(2014).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Protein Blotting Guide. , BIO-RAD. http://www.bio-rad.com/webroot/web/pdf/lsr/literature/Bulletin_2895.pdf (2019).
- Rodriguez, J., Deinhardt, F. Preparation of a semipermanent mounting medium for fluorescent antibody studies. Virology. 12, 316-317 (1960).
- Custom Alt-R® CRISPR-Cas9 guide RNA. , Integrated DNA Technologies. https://www.idtdna.com/site/order/designtool/index/CRISPR_CUSTOM (2019).
- Bonnafe, E., et al. Effect of a thymol application on olfactory memory and gene expression levels in the brain of the honeybee Apis mellifera. Environmental Science and Pollutant Research (International). 22 (11), 8022-8030 (2015).
- Wang, Y., et al. Regulation of behaviorally associated gene networks in worker honeybee ovaries. Journal of Experimental Biology. 215 (Pt 1), 124-134 (2012).
重印与许可
