本方案介绍了如何制备和装载细菌样品以进行活体三维成像,以及如何从这些图像中重建大肠杆菌(E. coli)的三维形态。
本文内容
摘要
摘要
细菌的形态对其生理功能具有重要意义。细胞形态可影响细胞运动性、捕食行为以及生物膜形成等多种生理特性。细菌细胞是三维(3D)结构,尽管在研究中很少被当作三维对象处理。大多数显微镜技术仅能获得二维(2D)图像,导致与真实三维细胞形态及蛋白质定位相关的数据丢失。某些形态参数(例如高斯曲率,即两个主曲率的乘积)只能在三维条件下测量,因为二维图像无法同时获取两个主曲率。此外,并非所有细胞在制片时都能平展放置,对弯曲细胞进行二维成像可能无法准确反映其真实形态。在三维空间中精确测量蛋白质定位有助于确定蛋白质的空间调控机制及其功能。目前已开发出一种前向卷积技术,利用显微镜的模糊函数来重建三维细胞形态并实现蛋白质的精确定位。本文介绍了一种用于活体细菌三维成像的样品制备与制片实验方案,旨在重建准确的细胞形态并实现蛋白质定位。该方法基于简单的样品制备、荧光图像采集以及基于MATLAB的图像处理。许多高质量的荧光显微镜均可经过简单改装后用于此类测量。这些细胞三维重建过程计算量较大,建议但不强制要求具备高通量计算资源。该方法已成功应用于多种细菌物种及其突变株、不同的荧光成像模式以及不同厂商的显微镜系统。
引言
所有类型的细胞都会调节其形态以实现特定功能。例如,神经元的形态与血细胞不同,其功能也各异。同样,细菌细胞也具有多种多样的形态和大小,尽管这些形态的功能并不总是明确1,2。因此,准确测定细菌细胞的形态至关重要。本文所述方法提供了一种易于实施的技术,可用于收集适用于大多数活体或固定细菌细胞三维分析的数据。
本文所述方法能够对细菌细胞进行三维成像,以准确呈现样品的三维细胞形态,并精确定位蛋白质在这些形态中的位置。传统的显微镜技术仅能获取二维图像,这在研究具有异常或非对称形状的细胞时存在局限性,例如大肠杆菌(Escherichia coli)的突变体,或弧菌属(Vibrio cholerae)和幽门螺杆菌(Helicobacter pylori)等弯曲形态的细菌。尽管高分辨率的三维图像是该方法的关键输入数据,但该方法并不输出分辨率增强的图像。相反,该方法利用主动轮廓模型和显微镜的表观模糊函数,通过前向卷积算法重建细胞的三维表面坐标与形态3(图1)。该方法已被用于研究大肠杆菌(E. coli)中的细菌肌动蛋白同源蛋白MreB4,5,6,7、霍乱弧菌(V. cholerae)中的新型周质骨架元件CrvA8,以及幽门螺杆菌(Helicobacter pylori)中假定的巴克托菲林蛋白CcmA9(图2)。
蛋白质的定位有助于揭示其功能。例如,参与细胞分裂的蛋白质通常定位于细胞中部10,11。已有高通量研究致力于定位细菌中的全部蛋白质,以期深入了解其功能12。然而,这些研究采用的是二维成像及一维或二维分析方法,因此无法测量蛋白质定位的某些特定方面,例如蛋白质向细胞几何特征结构的定位。
例如,MreB 是一种动态蛋白,对许多细菌的杆状形态至关重要,据推测其作用机制是通过指导细胞壁合成的定位来实现的,且其定位模式与细胞壁合成的定位相一致。7,13多种物种的 MreB 表现出几何富集现象4,6,7,14,15动态表面聚合物(如 MreB)可能将表面几何形状与时间平均富集分布耦合起来16 并通过最小化与膜结合相关的能量,可能能够定向于特定的几何构型17尽管MreB在扭曲、成束、弯曲及动态行为方面的重要性尚未完全阐明,但需要注意的是,准确测量表面的两个主曲率需要对细胞进行完整的三维表征。因此,为了最精确地测量蛋白质定位所对应的曲率,优先采用三维成像而非二维成像。三维成像避免了在二维图像中无法直接测量曲率而需通过计算估算的步骤,而这种估算在不对称细胞中可能并不准确。18.
尽管细胞的二维成像速度更快,且不需要进行大量的成像后计算处理,但三维成像能够更准确地呈现细胞结构,并能够测量表面特征(例如曲率),而这些特征在二维成像中无法测量。因此,随着三维成像技术日益普及,将有望获得关于细胞形态和蛋白质定位的新见解。
方案
1. 样品制备
- 通过基因工程使E. coli表达细胞质荧光蛋白6 ,或使用膜染料5,使其在成像时呈现荧光。也可使用其他细菌种类替代 E. coli。
- 通过电穿孔将编码细胞质mCherry荧光蛋白的质粒转入细胞。
注意:也可使用其他颜色的不同荧光蛋白。 - 在含有适当抗生素的LB平板上,于37 °C培养转化子。获取单菌落,并通过显微镜鉴定阳性克隆。在显微镜下呈红色的抗性菌落即含有携带mCherry的质粒。
- 通过电穿孔将编码细胞质mCherry荧光蛋白的质粒转入细胞。
- 在37 °C振荡培养箱中,用含适当抗生素的LB液体培养基培养2 mL过夜培养物。接种物可选用平板上的单菌落或少量冻存菌种。
注意:应使用适合实验所选细菌细胞的培养基。 - 将过夜培养物按1:1,000比例转接到5 mL新鲜LB培养基中,在37 °C振荡培养箱中培养3−4小时,使细胞生长至对数期。测定细胞OD600以确认其处于对数生长期(即OD600 = 0.2−0.4)。
注意:成像可在不同生长阶段进行,具体取决于实验需求。
2. 载玻片制备
注意:必须使用自发荧光较低的培养基。任何自发荧光较低的培养基均可使用。本实验中,需使用1%琼脂糖M63最低培养基垫,并用VaLaP19密封,以实现细胞的三维成像。
- 在20 mL最小培养基中制备1%的琼脂糖溶液。
- 将溶液放入微波炉中加热,直至琼脂糖完全溶解且溶液变得澄清。
- 将溶液置于60 °C水浴中,待用。
注意:该溶液可根据需要反复凝固与融化,也可分装成小份后按需融化。多次使用后培养基可能变色,应予以更换。
- 在80−100 °C的加热板上融化VaLaP封片剂。
注意:制备VaLaP封片剂的方法是将凡士林、羊毛脂和石蜡各50 g置于烧杯中,在加热板上以80−100 °C共同加热融化。大量制备的VaLaP可在室温下长期保存,足以用于>500张载玻片。若加热温度>100 °C,会导致其降解并颜色加深。 - 在载玻片两端各放置由三片20 mm × 20 mm盖玻片叠成的堆(共六片盖玻片)。
- 用移液器将200 µL琼脂糖垫溶液滴加到载玻片上。
注意:若未使用工程化荧光染料,可在本步骤前向琼脂糖垫溶液中添加膜染料。将染料溶于水中,并加入至1 mL琼脂糖垫溶液中,终浓度为5 µg/mL。 - 立即用力将另一张载玻片压在盖玻片堆上,使琼脂压平,并在室温下静置1分钟使其凝固。
- 小心地滑动移除上方的载玻片。
- 使用200 µL移液器吸头的粗端在载玻片上切割出单个凝胶垫(直径约5 mm),并丢弃形状不规则或不需要的凝胶。
注意:若需对多个菌株或条件进行成像,则每种情况需使用独立的凝胶垫。若仅成像一个菌株,应制备3−4个凝胶垫以支撑盖玻片。 - 反复吹打细胞悬液多次,以打散细胞团块并确保培养物充分混匀。从步骤1.3中取1 µL亚培养物滴加至凝胶垫上。
注意:细胞形态重建需要单个细胞且彼此不接触。若使用静止期或高细胞密度的培养物,可能需要在滴加至凝胶垫前将样品稀释1:10。 - 让样品在空气中干燥5−10分钟。确保液滴完全被凝胶垫吸收。若仍有液体残留,细胞将在液体中移动,无法成像。
- 将盖玻片覆盖在凝胶垫上方。
- 用棉签轻轻蘸取熔化的VaLaP,在盖玻片边缘涂抹以密封 。注意避免涂抹到盖玻片顶部与物镜接触的区域。VaLaP将在数秒内硬化,完成样品密封。
- 立即对样品进行成像。
注意:应在载玻片制备完成后尽快成像。细胞可在凝胶垫上继续生长,若发生分裂将增加形态重建的难度。
3. 成像要求
- 确保显微镜的 z 轴(聚焦轴)能够实现小于 50 nm 的精确移动。请使用研究级显微镜上配备的 z 向压电载物台(参见材料表),因为普通的电动聚焦装置无法达到此精度。
注意:根据奈奎斯特-香农采样准则20,需具备移动最小期望步长 0.5 倍的能力,即期望空间频率的 2 倍。本实验方案中需要 100 nm 的步进,因此要求载物台的精度达到 50 nm 或更高。 - 确保显微镜配备数值孔径(NA)不低于 1.45 的 100 倍物镜。
- 采集 200−400 个不同细胞的 z 层切图像,以确保获得足够数量的细胞用于后续分析。
注意:所需细胞数量取决于目标样本的内在变异性。在此阶段采集的部分细胞可能无法通过后续重建步骤。
- 采集 200−400 个不同细胞的 z 层切图像,以确保获得足够数量的细胞用于后续分析。
- 若检测第二荧光通道(如蛋白、代谢标记物等),需确保 z 层切图像的设置与形态学通道所用参数一致。
4. 成像
- 将密封的载玻片放入显微镜中,并静置5分钟,使其温度与周围环境平衡,因为显微镜室的温度可能与样品制备室不同。
- 对样品采集荧光z轴层扫图像。
注意: z轴层扫应完全覆盖样品,z轴步进间距应小于景深。对于1.45数值孔径(NA)的100倍物镜和约1 μm厚的E. coli细胞,每步100 nm、共40步效果良好。对于较大的细胞或未能完全平贴于表面的细胞,可能需要50步或更多。应包含足够的步数,并确保样品在上下方向完全模糊。- 使用与显微镜配套的软件(参见材料表)来控制显微镜。
- 使用显微镜的调焦旋钮将焦点置于细胞中部。在ND采集选项下勾选Z轴框以进行z轴层扫。点击Home按钮,将细胞中部设为起始点。将步进大小设为0.1 µm,范围设为4 µm。确保Z轴装置设置为压电载物台。
- 在Lambda窗口下将荧光通道设置为所成像荧光分子的相应参数。本实验中使用了GFP和mCherry。
注意: 若需获取额外荧光通道的三维分布,应在第二个颜色通道中使用相同的步进大小和范围再采集一组z轴层扫图像。本实验中使用胞质mCherry确定细胞形态,MreB-GFP作为第二荧光通道21。 - 确保实验顺序设置为“lambda(z序列)”,以便在切换通道前完成每个颜色通道的完整z轴层扫。
- 点击立即运行开始图像采集,并在完成一个或两个z轴层扫后保存文件。
- 移动至垫片上的新区域,重复步骤4.2.2–4.2.5。
5. 细胞重建
- 裁剪单个细胞,并将图像保存为堆叠的 TIFF 文件,确保每个文件仅包含一个细胞。确保该细胞与其他任何细胞充分分离(即在 xy 平面上的距离约为模糊函数半高宽的 5 倍左右。
注意:此操作可使用免费的图像分析软件完成(参见材料表)。- 在单个细胞周围绘制一个方框,然后将该细胞复制两次,每个通道一次。确保选中“复制超堆栈”选项框,并将通道更改为通道 1 或通道 2,同时确保切片包含完整的 z 堆栈。
注意:如果仅对细胞形态成像而不包括额外的荧光蛋白,则仅存在一个通道。 - 当两个堆栈均可用后,前往图像 | 堆栈 | 工具 | 合并,将蛋白通道图像置于前、形态通道图像置于后进行合并。
- 将新图像保存为 TIFF 文件。
- 在单个细胞周围绘制一个方框,然后将该细胞复制两次,每个通道一次。确保选中“复制超堆栈”选项框,并将通道更改为通道 1 或通道 2,同时确保切片包含完整的 z 堆栈。
- 使用亚衍射极限荧光微球测量显微镜的模糊函数22。此步骤需针对每台显微镜及其物镜单独进行,但可在对目标样本成像之前或之后完成。
- 使用可用软件(参见材料表)对手动选取的多个独立微球进行平均处理。
注意:最终结果应为一个三维模糊函数图像,其 xyz 间距需与目标样本一致。
- 使用可用软件(参见材料表)对手动选取的多个独立微球进行平均处理。
- 使用可用软件运行前向卷积细胞形态重建脚本。这些脚本的最新版本可从 https://github.com/PrincetonUniversity/shae-cellshape-public 免费下载。
- 在桌面上创建一个文件夹,并在其内部创建子文件夹,用于存放裁剪后的图像以及来自 shae-cellshape-public/exampleData_tri 的 cell_shape_settings_tri.txt 文件。
- 编辑 cell_shape_setting_tri.txt 文件,使其包含目标实验的正确设置。本实验中,该设置文件包含以下内容:
nm_per_pixel 70
Z_scale 0.65
stack_z_size 41
stack_t_size 1
Fstack_z_size 41
Fstack_t_size 1
stack_seperation_nm 100
Fstack_seperation_nm 100
psfScript -999 osuPSF20180726
gradient 1
注意:该文本文件分为多个部分,每部分被解析为独立变量。尽管许多设置在不同实验间无需更改,但必须确保 z 堆栈大小(形态通道为 stack_z_size,目标蛋白通道为 Fstack_z_size)、z 堆栈间距(stack_seperation_nm、Fstack_seperation_nm)、显微镜的相对焦平面偏移(Z_scale)23、xy 方向的像素尺寸(nm_per_pixel)以及加载显微镜模糊函数的脚本名称(psfScript)与实验条件一致。gradient 字段应在形态通道为胞质填充时设为 1,若为膜染色对象则设为 0。 - 运行 Cell_shape_detector3dConvTriFolder 函数(shae-cellshape-public/CellShapeDetectorTri/),输入参数依次为文件夹路径、起始细胞编号及需处理的 细胞数量。
注意:输入示例格式如下:Cell_shape_detector3dConvTriFolder ('裁剪图像文件夹路径', 文件夹中起始索引, 细胞数量)。单个典型细胞的重建通常需要 5−20 分钟以实现收敛并完成。
- 对细胞重建结果进行筛选,确保其准确性,然后方可用于后续统计分析。
- 运行 ScreenFits(shae-cellshape-public/shae-fitViewerGui/)以可视化地筛查单个细胞重建结果。
- 图形用户界面(GUI)打开后,点击“选择文件夹”按钮,然后选择步骤 5.3 中生成的包含重建数据文件(TRI.mat)的文件夹。
- 若某细胞重建结果出现形变或未完全收敛(图 3),则勾选其对应的复选框。此类情况可能表现为细胞出现孔洞、扁平侧面或异常分支。系统将自动在文件名后添加“FLAG”标记,以便在后续分析中排除该样本。
注意:可将重建后的细胞与原始图像进行比对。若细胞来源于形态异质性较高的群体,此步骤尤为重要。
- 运行 enrichmentSmoothingSpline(shae-cellshape-public/)以生成目标蛋白相对浓度随表面高斯曲率变化的富集曲线。
- 选择步骤 5.3.3 中生成的每个包含 TRI.mat 文件的文件夹。
- 选择新生成的(5.5.1)curve.mat 文件。
注意:在 5.5.1 中选择的每个文件夹将生成一个 curve.mat 文件。 所有富集曲线将显示在同一张图中。若需单独绘图,则应对每个文件夹分别执行步骤 5.5。
注意:除精确定位荧光蛋白的几何分布外,还可通过多种方式分析第二通道数据,包括对目标的数量、大小和取向进行统计4。
结果
细菌具有多种多样的形状和大小,这些形态特征可能决定其在自然界中的功能1。本实验方法的最终结果是通过z轴图像堆栈的前向卷积,获得细胞的精确三维(3D)表征(图1)。当研究弯曲的细胞(图2)或形态异常的细胞(图4A)时,该方法尤为重要,因为二维(2D)表征无法准确反映细胞的曲率。为了应用前向卷积方法(图1A),细胞需进行周边染色或细胞质染色(图2B 左图与右图对比)。
图4展示了 MreB 在细胞内的定位。为了研究 MreB(一种细菌肌动蛋白)在野生型和突变型 E. coli 细胞中的精确定位,构建了 GFP 融合蛋白214。由于 MreB 与细胞膜相关联,因此需要三维成像以准确再现其在细胞内的位置。通过进行三维测量,我们能够重建野生型和 rodZ 突变型细胞的形态(图4A)。结果显示,MreB 的定位富集于较小的高斯曲率区域,这是一种仅能在三维条件下测量的几何特征,且该富集依赖于 RodZ(图4B)。
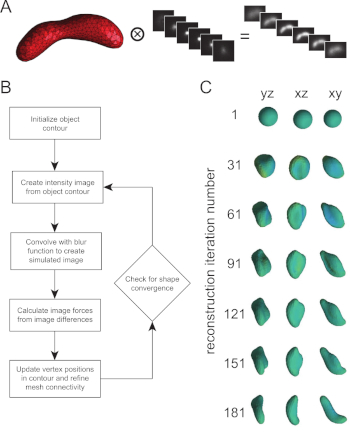
图1:前向卷积方法无需细胞形态的先验知识即可重建细胞。 (A该方法的最终输出结果是通过将测试形状与显微镜的校准模糊函数进行比较,获得的三维细胞重建图像。通过比对观测到的z层序列图像与假设的三维图像,直至二者匹配。此处所示图像为一个细胞重建结果的渲染图 C. crescentus 细胞。B重建流程根据观测到的图像堆栈,迭代更新表面单元的估计位置。有关该方法的完整算法细节,请参见 Nguyen3. (C) 重建流程从无开始 先验的 了解细胞的形状,并更新表面顶点的位置和数量以匹配观察到的 z 层序列。在三维重建过程中,每隔 30 步的代表性图像从三个不同角度展示了一个 V. cholerae 细胞。该形状的表面位置被更新,以最小化模拟堆栈与观测堆栈之间的差异。 请点击此处以查看此图的放大版本。

图 2:三种不同形态细菌物种的代表性三维重建。 可基于细胞膜被染色的细胞(左)或细胞质内填充荧光染料的细胞(右)进行三维重建。起始细胞的形态和曲率并不重要,因为弯曲杆状、扭曲杆状或直杆状均能被准确重建。重建表面根据其局部高斯曲率进行着色。比例尺 = 1 µm。 请点击此处查看该图的放大版本。

图 3:重建结果可能因多种原因失败。 必须对细胞进行筛选,以确保重建算法收敛至合理的结果。左侧 = 通过质量控制的代表性野生型(上方)和 rodZ 突变型(下方)E. coli 细胞。右侧 = 未能正确重建且未通过质量控制的细胞。图中展示了五类重建失败的情况:(i) 细胞过于靠近裁剪区域边缘,导致出现明显的边界;(ii) 细胞过于靠近其他细胞;(iii) 细胞产生凹陷;(iv) 细胞未能超出初始起始点;(v) 其他未知错误。请点击此处查看该图的放大版本。

图4:代表性数据,显示蛋白质定位于特定的细胞几何结构。 (A野生型和突变型细胞的三维重建 rodZ 大肠杆菌 显示具有高斯曲率和 MreB 荧光强度的细胞。比例尺 = 1 µm. (B野生型和突变型中MreB的富集图 rodZ 大肠杆菌 细胞。数值 >1 显示富集及数值 <1 显示与细胞均匀覆盖相比,MreB 在这些细胞区域的耗竭。阴影区域表示均值的平均值 ±90% 自助法置信区间。每种菌株的曲线均为三次平滑样条曲线,并使用极端曲率概率阈值 p 进行截断 > 5 × 10⁻³该图已根据(Bratton 等人)修改。4. 请点击此处以查看此图的放大版本。
讨论
本方案中的一个关键步骤是获取高质量的图像。为了正确重建细胞,细胞上下方必须有足够的模糊区域。因此,所采集的z轴堆栈必须覆盖足够大的距离。在图像采集过程中,步数可根据每种菌株进行调整。例如,缺失rodZ基因的E. coli细胞更宽,所需步数更多,因此需要比野生型细胞更大的成像距离。如果在图像采集过程中样品发生漂移,重建结果可能会出现严重误差。因此,在成像前应让载玻片与显微镜达到热平衡,以避免z轴堆栈采集过程中的漂移。细胞应在自发荧光较低的垫片上成像。培养基成分(如常用的LB培养基中的成分)具有自发荧光,可能在细胞重建时造成干扰。成像垫片上的细胞密度至关重要,因为重建过程是对每个细胞独立进行的。细胞过少会增加获取足够数量细胞图像所需的时间,而细胞过多则会导致成像视野过于密集,难以单独裁剪出单个细胞。由于并非所有细胞都能成功重建,因此在采集阶段应额外成像一些细胞,并在进行统计分析之前对所有输出结果进行筛选(图3)。
该方法的许多局限性属于技术层面。所使用的显微镜必须配备高数值孔径的物镜(通常>1.4),因为这能够实现细菌尺度上的光学切片。此外,显微镜需要配备压电载物台,以便在z方向上进行微小而精确的步进移动。另外,虽然并非必需,但建议使用高性能计算资源来运行图像分析软件,这将显著缩短细胞重建所需的处理时间。
该方法的一个概念性局限在于,必须选择合适的能量尺度,以权衡重构的平滑性与图像信噪比之间的关系。为了验证参数选择的合理性,应采用独立的方法(如透射电子显微镜(TEM)或原子力显微镜(AFM))测量细胞的大小和形状。作为原理验证,可在原子力显微镜(AFM)上进行细胞的三维重构,以检测其z轴精度(<50 nm),或在透射电子显微镜(TEM)载网上进行重构,以检测其xy平面精度(<30 nm)3。此类关联分析方法耗时且成本较高。一种更简便的方法是成像标准样品,例如野生型细胞或直径为1 µm的球形微珠。通过分析重构结果的直径和球形度,可确保重构过程中所使用的尺寸和能量尺度设置正确。
这并非唯一一种试图从荧光显微镜图像中提取高分辨率空间信息的方法。许多综述文章描述了超分辨率显微技术领域的最新进展24,25。去卷积显微技术26、转盘共聚焦显微技术27、像素重分配28以及结构光照明显微技术(SIM)29等提升分辨率的技术,旨在提高显微镜所获取图像的分辨率。这些方法与本文所述方法并不冲突。最近,该方法已被改进以支持将基于SIM的图像作为输入9。尽管前向卷积方法在某些理论基础上与去卷积显微技术相似,但其输出结果完全不同:去卷积显微等方法旨在提升图像分辨率,而本方法并不生成图像,而是重建出精度约为50 nm的细胞形态。基于稀疏标记样本的单分子主动控制显微技术可实现比本方法更高的空间精度。但在许多情况下,这些单分子方法需要优化荧光探针构建,并且可能需要较长的采集时间,因而难以用于活细胞或动态样本。上述每种方法都存在一种或多种本方法所不具备的局限性。例如,转盘共聚焦显微技术所宣称的优势在细菌细胞单层样本中并不显著,因为此类样本中离焦光信号较少。此外,本方法提供了一条无需任何特殊荧光染料即可获取精确三维细胞形态和蛋白质定位信息的分析流程。该方法对硬件要求极低(例如仅需z轴压电平台和高数值孔径物镜),且每个时间点仅需数十张图像,因此可轻松用于研究动态三维结构6。
研究细菌细胞在三维结构中排列方式的方法日益增多。其中包括一些在概念上与此类似、利用高质量三维荧光图像的方法30,31,32。该方法要求细胞分离良好,且不对细胞几何形态做任何先验假设。然而,在研究致密的细胞聚集体或生物膜时,需假设细胞呈杆状。这种较低分辨率的观察仍可用于分析细胞的排列堆积方式,但由于生物膜中细胞密度较高,无法对特定因子的亚细胞定位进行分析。
未来,开发一个将单分子和宽场方法与这种三维重建技术相结合的框架可能会很有意义。此外,或许可以将这种前向卷积方法与机器视觉分割工具32相结合,以实现对更密集细胞簇的重建。
细胞为何演化成特定形态是一个复杂的问题,这必然反映了细胞所处环境的复杂性。要理解细胞形态的演化及其功能,就需要对这些形态进行精确且准确的测量,而本方法正是提供了这种测量手段。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢 Jeffrey Nguyen 和 Joshua Shaevitz 在本方法开发过程中提供的帮助。
资助:RMM - NIH F32 GM103290-01A1,BPB - Glenn 衰老研究中心和美国国家科学基金会 PHY-1734030。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 50 nm 荧光微球 | Invitrogen | F8795 | 用于测量显微镜的模糊函数 |
| 琼脂糖 | sigma-Aldrich | A9539 | |
| 棉签 | Puritan Medical Products Company LLC | S304659 | 用于涂抹 VaLaP |
| 盖玻片 | VWR | 16004-302 | |
| Fiji | ImageJ | https://fiji.sc | 用于裁剪细胞图像 |
| FM4-64 | Invitrogen | LST3166 | 用于细胞染色的膜染料 |
| Huygens 软件 | Scientific Volume Imaging | Huygens essential 或 professional | 用于测量显微镜的模糊函数 |
| 羊毛脂 | Sigma-Aldrich | L7387 | 与石蜡和凡士林混合制备 VaLaP |
| LB 培养基 | BD Difco | DF0446173 | |
| M63 培养基 | US Biological | M1015 | |
| MATLAB | Mathworks | 运行前向卷积脚本所需 | |
| 显微镜载玻片 | Fisher | 12-550-133 | |
| NIS Elements | Nkon | ||
| 石蜡 | Sigma-Aldrich | 327212 | |
| 凡士林 | Equate | 49035-038-27 | |
| 压电 Z 轴载物台 | Nikon | 77011589 | |
| 移液器吸头 -p200 | USA Scientific | 1111-0730 | |
| 移液器吸头 -p10 | USA Scientific | 1111-3730 |
参考文献
- Young, K. D. The Selective Value of Bacterial Shape. Microbiology and Molecular Biology Reviews. 70 (3), 660-703 (2006).
- Persat, A., Stone, H. A., Gitai, Z. The Curved Shape of Caulobacter crescentus Enhances Surface Colonization in Flow. Nature Communications. 5, 3824(2014).
- Nguyen, J. P., Bratton, B. P., Shaevitz, J. W. Bacterial Cell Wall Homeostasis: Methods and Protocols. Hong, H. J. , Springer. New York. 227-245 (2016).
- Bratton, B. P., Shaevitz, J. W., Gitai, Z., Morgenstein, R. M. MreB Polymers and Curvature Localization are Enhanced by RodZ and Predict E. coli's Cylindrical Uniformity. Nature Communications. 9 (1), 2797(2018).
- Ouzounov, N., et al. MreB Orientation Correlates with Cell Diameter in Escherichia coli. Biophysical Journal. 111 (5), 1035-1043 (2016).
- Morgenstein, R. M., et al. RodZ links MreB to Cell Wall Synthesis to Mediate MreB rotation and Robust Morphogenesis. Proceedings of the National Academy of Sciences. , 12510-12515 (2015).
- Ursell, T. S., et al. Rod-Like Bacterial Shape is Maintained by Feedback Between Cell Curvature and Cytoskeletal Localization. Proceeding of the National Academy of Science U.S.A. 111 (11), E1025-E1034 (2014).
- Bartlett, T. M., et al. A Periplasmic Polymer Curves Vibrio cholerae and Promotes Pathogenesis. Cell. 168 (1-2), 172-185 (2017).
- Taylor, J. A., et al. Distinct Cytoskeletal Proteins Define Zones of Enhanced Cell Wall Synthesis in Helicobacter pylori. bioRxiv. , 545517(2019).
- Egan, A. J. F., Vollmer, W. The Physiology of Bacterial Cell Division. Annals of the New York Academy of Science. 1277 (1), 8-28 (2013).
- Adams, D. W., Errington, J. Bacterial Cell Division: Assembly, Maintenance and Disassembly of the Z ring. Nature Reviews Microbiology. 7 (9), 642-653 (2009).
- Werner, J. N., Gitai, Z., Melvin, I. S., Brian, R. C., Alexandrine, C. High-Throughput Screening of Bacterial Protein Localization. Methods in Enzymology. 471, 185-204 (2010).
- de Pedro, M. A., Quintela, J. C., Höltje, J. V., Schwarz, H. Murein Segregation in Escherichia coli. Journal of Bacteriology. 179 (9), 2823-2834 (1997).
- Hussain, S., et al. MreB Filaments Align Along Greatest Principal Membrane Curvature to Orient Cell Wall Synthesis. eLife. 7, e32471(2018).
- Wong, F., et al. Mechanical Strain Sensing Implicated in Cell Shape Recovery in Escherichia coli. Nature Microbiology. 2, 17115(2017).
- Wong, F., Garner, E. C., Amir, A. Mechanics and Dynamics of Translocating MreB Filaments on Curved Membranes. eLife. 8, e40472(2019).
- Quint, D. A., Gopinathan, A., Grason, G. M. Shape Selection of Surface-Bound Helical Filaments: Biopolymers on Curved Membranes. Biophysical Journal. 111 (7), 1575-1585 (2016).
- Colavin, A., Shi, H., Huang, K. C. RodZ Modulates Geometric Localization of the Bacterial Actin MreB to Regulate Cell Shape. Nature Communications. 9 (1), 1280(2018).
- Valap Sealant. , Cold Spring Harbor Protocols. http://cshprotocols.cshlp.org/content/2015/2/pdb.rec082917 (2015).
- Shannon, C. E. Communication in the Presence of Noise. Proceedings of the IRE. 37 (1), 10-21 (1949).
- Billings, G., et al. De Novo Morphogenesis in L-Forms Via Geometric Control of Cell Growth. Mol Microbiol. 93 (5), 883-896 (2014).
- Sturrman, N. Measuring a Point Spread Function. , iBiology. https://www.ibiology.org/talks/measuring-a-point-spread-function (2012).
- Bratton, B. P., Shaevitz, J. W. Simple Experimental Methods for Determining the Apparent Focal Shift in a Microscope System. PLOS ONE. 10 (8), e0134616(2015).
- Moerner, W. E., Shechtman, Y., Wang, Q. Single-molecule Spectroscopy and Imaging over the decades. Faraday Discussions. 184, 9-36 (2015).
- Sahl, S. J., Hell, S. W., Jakobs, S. Fluorescence Nanoscopy in Cell Biology. Nature Reviews Molecular Cell Biology. 18, 685(2017).
- Sarder, P., Nehorai, A. Deconvolution Methods for 3-D Fluorescence Microscopy Images. IEEE Signal Processing Magazine. 23 (3), 32-45 (2006).
- Oreopoulos, J., Berman, R., Browne, M. Methods in Cell Biology. Waters, J. C., Wittman, T. 123, Academic Press. 153-175 (2014).
- Huff, J. The Airyscan detector from ZEISS: confocal imaging with improved signal-to-noise ratio and super-resolution. Nature Methods. 12, 1205(2015).
- Gustafsson, M. G. L. Surpassing the Lateral Resolution Limit by a Factor of Two Using Structured Illumination Microscopy. Journal of Microscopy. 198 (2), 82-87 (2000).
- Lee, M. K., Rai, P., Williams, J., Twieg, R. J., Moerner, W. E. Small-Molecule Labeling of Live Cell Surfaces for Three-Dimensional Super-Resolution Microscopy. Journal of the American Chemical Society. 136 (40), 14003-14006 (2014).
- Yan, J., Sharo, A. G., Stone, H. A., Wingreen, N. S., Bassler, B. L. Vibrio cholerae Biofilm Growth Program and Architecture Revealed by Single-Cell Live Imaging. Proceedings of the National Academy of Sciences. 113 (36), E5337-E5343 (2016).
- Wang, J., et al. Bact-3D: A level set segmentation approach for dense multi-layered 3D bacterial biofilms. 2017 IEEE International Conference on Image Processing (ICIP). , 330-334 (2017).
重印与许可
