本文介绍了一种利用表型标记进行波动试验并估算微生物突变率的实验方案。该方案可使研究人员在多种微生物和不同环境中检测突变,从而确定基因型和生态背景对自发突变率的影响。
本文内容
摘要
摘要
波动试验广泛用于估算在液体环境中生长的微生物的突变率。将数千个对某种可进行表型检测的选择性标记物敏感的细胞分别接种到多个培养物中,这些平行培养物在不存在该表型标记物的条件下生长许多代。其中一部分培养物用于估算可能发生突变的细胞总数(即生长结束时的群体大小,记为 Nt)。其余培养物则被涂布于选择性琼脂平板上。通过数学模型,利用平行培养物中观察到的抗性突变体的分布情况,估算出预期的突变事件数 m。将 m 除以 Nt,即可得到每代每个位点的突变率估计值。该试验有三个关键因素:所选的表型标记物、平行培养物的体积,以及确保选择性琼脂表面在培养前完全干燥。该方法成本相对较低,仅需常规实验室设备,且比其他方法(如突变累积试验和单细胞试验)更省力。该试验适用于快速经历多代生长的生物体,其结果依赖于对标记物的适合度效应及细胞死亡情况的假设。然而,近年来开发的工具和理论研究使得这些问题现在可以通过分析方法加以解决。该试验可用于估算在单独生长或群落中共存的不同基因型细胞中,针对不同表型标记物的突变率。通过并行开展多个试验,可研究生物体所处环境背景如何影响其自发突变率,这对于理解抗菌药物耐药性、致癌作用、衰老及进化过程具有重要意义。
引言
1901年,荷兰植物学家雨果·德弗里斯(Hugo de Vries)提出了“突变”这一术语1。26年后的1927年,赫尔曼·约瑟夫·穆勒(Hermann Joseph Muller)发现了X射线的诱变作用2,此时突变已被视为推动进化的关键力量之一。然而,突变的本质仍不明确。为了回答突变是自发产生(即自发突变)还是在选择压力下产生(即诱导突变)这一根本性问题,人们需要一种能够观察突变事件的方法。这种方法应能测量每次细胞分裂所产生的突变预期数量,也就是当时已知的突变率3,4。

图1:在96孔深孔板中对微生物菌株进行波动试验的操作示意图。 (A)在含有五种不同环境的50 mL试管中接种并适应细胞(“红色”、“蓝色”、“绿色”、“紫色”和“橙色”试验)。 (B)在96孔深孔板中接种少量敏感细胞,制备平行培养物。“红色”试验包含20个平行培养物,而“蓝色”、“绿色”、“紫色”和“橙色”试验各包含19个平行培养物。平行培养物在96孔深孔板上的位置是随机的。可使用补充材料中的LayoutGenerator.R脚本或其他工具进行随机化。右上角为随机化结果示意图。 (C)培养96孔深孔板,使细胞分裂并发生自发突变。深孔A1、B1、C1、E1、F1和G1中的六个培养物展示了突变体数量的波动情况:在第三次细胞分裂后,分别出现4、0、2、2、1和4个红色细胞。突变体数量的差异不仅源于自发突变次数的不同(如第一个红色细胞所示为0、1或2次),还取决于耐药突变在培养周期中出现的时间(第1、2或3次细胞分裂时)。 (D)培养结束后,通过铺板81个平行培养物来确定突变体数量。图中布局中无加粗边框的圆圈代表这些培养物。每个平行培养物整体接种于一个6孔板的单孔中,孔内含选择性琼脂。 (E)剩余15个培养物被稀释后铺于非选择性琼脂平板上,用于测定平均细胞数量(Nt)。图中布局中标记为Ntwells的孔具有加粗边框。每种试验的Nt值由三个平行培养物取平均。右下角为一个培养皿,其中非选择性琼脂平板上生长了来自深孔D1(属于“绿色”试验)稀释培养物的25个菌落形成单位(CFU)。 (F)选择性6孔板培养后,计数观察到的突变体数量,并使用最大似然估计法估算预期的突变事件数m。 (G)已知突变数m和每次试验的细胞数Nt,突变率估算为m/Nt。 请点击此处查看该图的放大版本。
1943年,Salvador Luria 和 Max Delbrück 通过波动试验(fluctuation assay)5(见图1)巧妙地解决了这一问题。该试验从多个起始于少量微生物细胞的群体(称为平行培养物)开始(图1A,B)。在良性的非选择性环境中培养增殖后(图1C),将平行培养物转移至含有选择性标记物(如噬菌体、抗生素等)的平板上,其中只有携带抗性突变的细胞才能存活并形成菌落(图1D)。如果抗性突变是由外界因素诱导产生的,则各群体中携带突变的细胞数量应呈泊松分布,即均值等于方差。然而,Luria 和 Delbrück 在波动试验中发现,突变体数量在不同群体间存在极大波动,且突变体数量的方差显著大于均值。因此,他们证明了突变是自发产生的。他们指出,DNA 复制过程中会自发产生突变,而突变体的数量取决于突变在群体生长过程中发生的时机。参见图1C,其中六个群体(每个起始于一个蓝色微生物细胞)分别发生了零次、一次或两次单突变。A1、E1 和 F1 群体均只发生了一次单突变(第一个红色细胞),但由于单次突变在培养周期中的不同时间点随机发生,最终观察到的突变体数量差异显著(分别为四个、两个和一个)。另一方面,C1 和 G1 群体尽管经历了两次突变事件而非一次,最终观察到的突变体数量却与 E1 和 A1 相同。不同群体间观察到的突变体数量的波动不仅赋予了该试验名称,也表明突变频率(即突变细胞所占比例)并不能准确反映突变率。
波动试验的总体目标是估算特定基因型的细菌或其他单细胞生物在特定液体环境中生长时的自发突变率。波动试验仍然是研究微生物突变率环境依赖性的最合适工具,能够实现快速且低成本的突变率估算。其他突变率估算方法,如最大深度测序6、群体测序7、突变累积实验8,或比较子代与亲代的基因组序列9,均更加耗时费力,因此难以有效检测环境依赖性。然而,突变产生与修复过程中的动态特征,对于波动试验或上述任何突变率检测方法而言,在很大程度上仍难以观测。要研究突变数量在时间、空间或群体内单个细胞间的动态变化,必须采用单细胞研究方法11,12,这些方法不仅比波动试验更耗时,还需要高度专业化的技能和设备。
实际操作中,波动试验通过计数在缺乏选择压力的环境中因突变而获得表型标记的细胞来实现。对数百项已发表试验的荟萃分析10显示,自1943年该试验创立以来,至少已使用过39种不同的表型标记。波动试验可用于比较在宽松环境中生长的实验室菌株、临床菌株、非高突变菌株和高突变菌株之间突变率的平均值及其对环境的依赖性。该试验能够在最小或丰富培养基中,对具有不同遗传背景的细胞进行突变率估算。该试验不仅适用于单一种群培养的群体,还可用于研究细胞间相互作用对突变率的影响11。当目标菌株与第二种菌株共培养,并使用中性标记区分两种菌株时,可在同一试管中同时测定两种菌株的突变率。
波动试验表明,自发突变率取决于细胞的基因型及其所处环境12,并且突变率本身也是一种可进化的性状13。当某一特定基因型的突变率随环境发生变化时,这种现象被称为突变率可塑性11。目前对突变率可塑性的研究主要集中在胁迫诱导的诱变(SIM)方面14。此外,通过波动试验最近发现,细胞群体生长达到的密度(通常为达到环境容纳量的批量培养)与细菌及单细胞真核生物中的突变率密切相关。在高密度群体中,每基因组每代的突变率可降低达23倍之多10,11。这种与密度相关的突变率可塑性(DAMP)可能依赖于群体感应系统15,并且可独立于SIM发挥作用16。
本文提供了一种用于研究大肠杆菌(Escherichia coli)K-12 菌株在葡萄糖最低培养基环境中获得利福平耐药性的波动试验(fluctuation assay)的详细实验方案。然而,该方案应被视为一种基本模板,通过简单调整培养条件和突变的表型标记,即可用于研究多种多样的微生物。该方案自最初建立以来5,17,18,19,20,21,22,23,24,25,26,27,28,29,已广泛应用于多种微生物乃至癌细胞的研究30,并经过改进以提高通量,这对于准确检测微生物突变率的环境依赖性至关重要10,11,16。本文所述方案并未涵盖波动试验中所有已被文献充分讨论的方法学与分析问题,特别是耐药突变的适合度效应31、表型延迟32、细胞死亡33,以及用于估算突变率的各种算法的适用性26,34。例如,适合度效应的环境依赖性可能导致突变率估算出现错误的变异35,这一点可能非常重要。然而,我们指出,本研究所采用的分析工具能够处理突变体适合度和细胞死亡的变异。如本文注释与讨论部分所述,建议同时考虑多个适合度效应不太可能受相同环境因素影响的表型标记。本方案将使研究人员能够常规地检测多种微生物菌株和环境中突变率的环境依赖性。在不同环境条件下对突变进行检测尚未得到充分验证,而一旦考虑种群密度因素,波动试验可提供更精确的突变率估算值10。本方案将推动更多波动试验的开展,这对于揭示突变率背后的机制至关重要,而这些机制本身又对理解进化、致癌作用、衰老以及抗菌药物耐药性具有重要意义。
方案
1. 第1天:培养物的接种与适应
- 接种3 mL液体溶菌肉汤(LB,参见 补充表1)用冰刮取 E. coli MG1655 甘油菌种保存液(18% 甘油,-80 °C)。在 37 °C 下以 120 rpm 振荡培养 LB 培养液约 7 小时 37 °C.
注意: 在本实验中, E. coli 使用在LB培养基中培养的K12 MG1655,但本实验也可适用于任何其他菌株 E. coli 菌株或任何其他可培养的微生物物种。培养温度、培养时间以及培养基的营养水平均可能因物种或菌株的不同而有所差异。 - 用生理盐水将培养物稀释2,000倍。加入 100 µL 将稀释后的溶液各取适量加入三个50 mL带螺旋盖的锥底聚合物管(50 mL管)中,每管加入10 mL液体Davis最低培养基(DM,参见 补充表1),分别含有 80 mg/L、125 mg/L 或 250 mg/L 的葡萄糖。该培养基即为后续用于估算突变率的相同培养基(即环境)。将培养物在 120 rpm 条件下振荡培养过夜,温度为 37 °C.
注意: 培养基的选择因物种、品系或研究问题的不同而有所差异。
2. 第2天:在平行培养物中产生突变体
- 首先,准备用于培养细菌的环境。每次配制量应比实际需求多出10%(例如,20个1 mL的培养液需配制22 mL)。在五个50 mL离心管中分别配制22 mL的以下培养基:1)含80 mg/L葡萄糖的DM培养基,2)含125 mg/L葡萄糖的DM培养基,3)含250 mg/L葡萄糖的DM培养基,4)含80 mg/L葡萄糖的DM培养基,以及5)含250 mg/L葡萄糖的DM培养基。分别标记为GLC-80A、GLC-125、GLC-250A、GLC-80B和GLC-250B。
- 为不同环境制备接种物。确保每1 mL环境中的接种物含有1,000−5,000个细胞。按以下步骤操作。
- 测量过夜培养物(来自步骤 1.2)在 600 nm 处的光密度(OD)。
- 将每种过夜培养物稀释,使其在含葡萄糖的DM中最终密度达到每毫升1,000–5,000个细胞。在我们的实验条件下,若2.2.1中测得的OD值为0.3,则需将过夜培养物用生理盐水稀释100倍,然后加入 11µl 将该溶液加入22 mL环境中。
- 制备平行培养物。
注意: 本方案适用于一个96孔深孔板,在三种环境中进行五次波动试验(在单个96孔板上可合理开展的最大试验次数)。具备经验后,可平行运行多个深孔板。- 为一个96深孔板创建平行培养的随机布局。该 补充 R 脚本 LayoutGenerator.R (参见布局于 图1B) 可用于此目的。根据布局将每个平行培养物放置在96孔深孔板中。
注意: 运行 LayoutGenerator.R 可确保第一个检测具有 20 个平行培养,而第二、第三、第四和第五个检测各自具有 19 个平行培养。 - 根据随机化布局,将1 mL接种后的培养基转移至96深孔板的每个孔中。
- 用胶带固定深孔板的盖子。不要将盖子封得太紧,因为培养物的生长对通气量较为敏感。
- 称量带盖和胶带的整个培养皿,并在250 rpm条件下振荡培养24 h 37 °C在培养箱中放置2 L蒸馏水,以稳定各实验组之间的蒸发量。
- 为一个96深孔板创建平行培养的随机布局。该 补充 R 脚本 LayoutGenerator.R (参见布局于 图1B) 可用于此目的。根据布局将每个平行培养物放置在96孔深孔板中。
- 通过平板接种确定接种量大小 10 µL 每种接种培养基在非选择性四氮唑(TA)琼脂平板上的表现(参见 补充表1)。使用无菌的L型涂布棒涂布,直至琼脂表面干燥。将TA琼脂平板倒置(盖子朝下),在37°C下过夜培养。 37 °C.
注意: TA 琼脂是一种富含营养的琼脂,含有糖类 L-阿拉伯糖以及水溶性染料 2,3,5-三苯基四氮唑氯化物(TTC),该染料在氧化状态下无色。当细菌将染料还原时,会因生成甲臜而呈现红色。在 TA 琼脂上不能利用 L-阿拉伯糖的菌落呈深红色,而其他菌株(如 MG1655)则呈淡粉色。建议使用 TA 琼脂而非标准 LB 琼脂,因为有色菌落更易于观察,从而使菌落计数更可靠且更快速。 - 在6孔板中制备含利福平的选择性TA琼脂。将5 mL选择性TA琼脂移入6孔板的每个孔中。在加入TA琼脂前立即配制抗生素利福平。
注意: 当使用环丝氨酸作为筛选标记时,采用含250 mg/L葡萄糖的戴维斯最低培养基,并添加琼脂、L-阿拉伯糖和2,3,5-三苯基四氮唑氯化物作为选择性琼脂。即,TA琼脂不仅筛选对环丝氨酸具有抗性的细胞,因为胰蛋白胨和酵母提取物(均为TA琼脂的关键组分)含有D-丙氨酸。该氨基酸可拮抗环丝氨酸的抗菌作用,从而允许 全部 细胞形成菌落。- 将选择性平板和剩余的非选择性平板置于室温下避光保存(例如放入盒子中)。
3. 第3天:在选择性和非选择性琼脂平板上接种培养物
- 计数非选择性琼脂平板上的菌落形成单位(CFU),并通过将CFU乘以100来确定接种量的大小。该数值对应于平行培养液体积(1 mL = 1,000 µL)与涂布体积(10 µL)之间的比例。
注意:若非选择性平板已冷藏保存,CFU可在后续进行计数。 - 培养24小时后,称量整个深孔板以确定蒸发量。蒸发量通常约为10%。
- 使用初始体积 V[0h] = 1,000 µL,并结合平板重量换算为微升(µL)的数值,计算培养24小时后每份平行培养液的平均体积(V[24h]),其中生长培养基的密度以 mg/µL 表示。本研究采用的密度为 1 mg/µL:
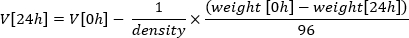
- 将每次测定中随机选取的三份培养物(共15份,在图1B的布局中以黑色圆圈标出)转移至已标记的微量离心管中。将其置于实验台上备用(见步骤3.6),用于测定最终种群数量(即 Nt)。
- 将深孔板中剩余的81份平行培养物接种至含利福平的选择性TA琼脂平板上。从96孔深孔板中取一整份平行培养物,移入6孔板的一个孔中。确保每个6孔板中包含来自多个波动试验的平行培养物。
- 移除选择性琼脂平板的盖子,并在无菌条件下保持敞口状态,使选择性TA琼脂表面的液体完全干燥。
注意:琼脂必须完全干燥,但不可过度干燥,以免琼脂开裂。
- 移除选择性琼脂平板的盖子,并在无菌条件下保持敞口状态,使选择性TA琼脂表面的液体完全干燥。
- 在选择性TA琼脂平板干燥期间(可能需要数小时),使用菌落形成单位(CFU)测定步骤3.4中准备的15份培养物的 Nt 值。
- 通过稀释微量离心管中的培养物来测定CFU。进行五次10倍梯度稀释,每次将100 µL培养物与900 µL生理盐水混合并充分涡旋混匀。取最后一次稀释液(稀释倍数为105)40 µL,涂布于非选择性TA琼脂平板上,37 °C倒置培养过夜。
注意:可在96孔板中使用多通道移液器完成稀释系列操作,以提高该步骤的操作速度。
- 通过稀释微量离心管中的培养物来测定CFU。进行五次10倍梯度稀释,每次将100 µL培养物与900 µL生理盐水混合并充分涡旋混匀。取最后一次稀释液(稀释倍数为105)40 µL,涂布于非选择性TA琼脂平板上,37 °C倒置培养过夜。
- 当6孔板中所有孔内的培养液完全蒸发后,盖上盖子,并将6孔板倒置放置于实验台上,直至所有6孔板完全干燥。全部干燥后,于37 °C倒置培养44–48小时。
注意:对于其他筛选标记(如萘啶酸、环丝氨酸、潮霉素B或5-FOA),培养时间为68–72小时。确保培养箱内湿度较高。在培养期间,必须防止选择性琼脂平板干燥。
4. 第4天:测定培养物中的细胞数量
- 计数非选择性琼脂平板上的菌落形成单位(CFU)。通过将CFU乘以稀释倍数(105),再乘以计算所得的平均体积 V[24h](微升,见步骤3.3)与涂布体积(40 µl)的比值,估算培养物中活细胞的数量:
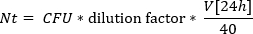
- 特定基因型在特定环境中生长的Nt值,为三个培养物所得数值的平均值。
5. 第5天:突变率的估算
- 计数选择性 TA 琼脂平板上对抗生素具有抗性的菌落数量(即在第 2−3 天深孔板中通过自发突变产生的抗性细胞数量)。记录特定实验中各平行培养物中观察到的突变体数量的分布情况(例如,16 或 17 个数值,包括零值)。
注意:若选择性平板已冷藏保存,则可在后续时间对抗生素抗性菌落进行计数。- 使用 R 软件包 flan36,基于每个分布估算突变事件的数量 m。
注意:也可使用功能类似的 R 软件包 rSalvador29。 - 将一次实验中观察到的突变体分布数据以单列形式保存为文本文件。
- 使用 R 软件包 flan36,基于每个分布估算突变事件的数量 m。
- 使用 Shinyflan 软件(http://shinyflan.its.manchester.ac.uk/)按以下步骤估算 m 值。
- 在 假设检验 选项卡中,保持默认设置(即勾选 未知适合度,估算方法 = 最大似然法(ML),突变体存活时间分布 = 指数分布(LD 模型),Winsor 参数 = 1,024,突变数量与适合度 = 1,置信水平 = 0.95,类别数与最大值 = 100)。
- 点击 浏览,选择包含观察到的突变体分布的文本文件。可先尝试使用补充数据文件进行测试。
- 上传文件后,点击 执行检验。在右侧 检验结果 区域下的 单样本 ML 检验(LD 模型)中,查找 突变数量,该值即为 m,即预期的突变事件数量。
- 在 突变数量的 95% 置信区间 下查找 m 的上限与下限。
- 当获得 m 和 Nt(通过 CFU 测定)后,可估算特定基因型在特定环境下的突变率,计算公式为
 。将 m 的上下限分别除以 Nt,以生成突变率的置信区间(注意:此方法未考虑 Nt 的不确定性)。
注意:结果以每代每个 rpoB 位点的突变率表示。每碱基对的突变率可通过将每个 rpoB 位点的突变率除以 79 获得,该数值基于目前对 rpoB 基因内可导致利福平抗性的点突变数量的认识37。将每个核苷酸的突变率乘以染色体大小(E. coli K-12 MG1655 = 4,639,675 bp),可得每基因组的突变率。 - 对剩余的四个波动实验重复步骤 5.1−5.3。
结果
通过报告的方案,在四个不同的周次中由三名不同的研究人员分别收集结果,每周使用一块96孔深孔板生成五个突变率估计值。共计三块96孔深孔板生成了15个突变率估计值(±95% 置信区间,CI), E. coli K-12 MG1655图2A,如方案中所用),同时使用一个96深孔板进行五次估算(± 95% CI) E. coli K-12 BW25113 ΔmutT 突变体(图2B)。在 图2 估计的中位精确度及四分位距 m 为17.5%(1.00%−28.9%,n = 20)。精密度是预期突变事件数的变异系数(m)计算为 σm / m x 100%(其中 σ 如前所述进行计算38)。原始数据用于 图2 在……中可获取 补充数据文件 “Krasovec_etal_JoVE_data.csv”。 补充数据文件 附带一个 R 脚本用于生成 图2。另见 补充表 2 有关细菌菌株的更多详情,以及 补充表格 3,其中解释了数据文件中的各列。使用利福平和萘啶酸获得的数据点此前已发表于 Krašovec 等人的研究中。10 并且在此处的 ID 与首次发布时相同。
在图2A中展示了MG1655对三种不同表型标记物——环丝氨酸、利福平和萘啶酸的突变率。此处,在Davis最低培养基中分别添加80、125和250 mg/L葡萄糖的条件下测定了突变率,具体方法如实验方案所述。在一种情况下使用了1,000 mg/L的葡萄糖(图1B)。实际操作中,可使用任意初始葡萄糖浓度。如预期所示,环丝氨酸抗性的突变率最高,萘啶酸抗性最低,利福平抗性突变率居中。这与这三种抗性已知的靶标大小一致,其中环丝氨酸的靶标最大,而萘啶酸的靶标最小。相关讨论及图3详细说明了如何利用靶标大小、平行培养物的体积以及环境中营养物质的水平,优化通过波动试验测定微生物突变率的方法。
波动试验可明确显示哪种菌株为组成型突变株,以及哪种菌株具有正常的突变率。ΔmutT菌株对萘啶酸抗性的突变率比MG1655高出约50倍(图2B)(图2A)。然而,为了确定特定基因型在不同环境中的突变率,建议每种环境每种基因型至少进行五次重复实验,并仅使用一种表型标记。有关此前用于分析此类实验的统计方法的详细说明,请参见Krašovec等10的补充信息。
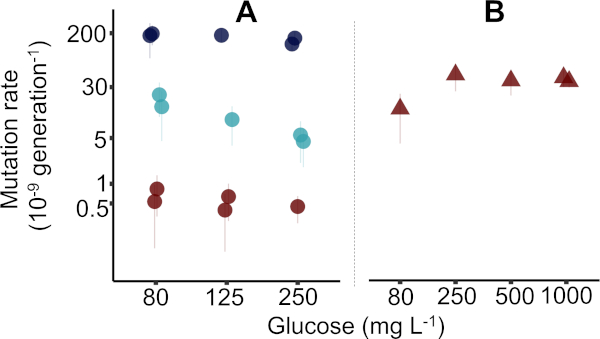
图2:通过波动试验估算的突变率的代表性结果 大肠杆菌 种群。 (A) 根据报道的方案测定的野生型MG1655中的突变率(圆圈)。图中显示了对利福平(浅蓝色圆圈)、萘啶酸(红色圆圈)和环丝氨酸(深蓝色圆圈)耐药情况下的突变率。对于萘啶酸,使用了较大的10 mL培养体积(参见 补充数据文件)。利福平和萘啶酸的数据系重新绘制自 图2a 在 Krašovec 等人研究中10. (B) 氨基喹啉酸抗性突变率在Keio中的情况39 ΔmutT 突变体(红色三角形)。注意突变率轴的对数刻度。误差棒 = 按协议中所述方法计算的95%置信区间。数据重新绘制自 图 4a 在 Krašovec 等人的研究中10. 请点击此处以查看此图的放大版本。

图3:波动试验故障排除流程图。 本流程图从顶部开始依次执行,依次回答黄色菱形框中的三个问题,根据所得绿色框中的内容调整实验方案,并按照红色椭圆框中所示实施该方案。有关故障排除的更多详细信息,请参见讨论部分的前三段。 请点击此处查看此图的放大版本。
补充表1:本方案中所用培养基的配方。 请点击此处查看该表格(右键单击可下载)。
补充表2:细菌菌株。 请点击此处查看该表格(右键单击可下载)。
补充表3:原始数据文件 Krasovec_etal_JoVE_data.csv 中各列的详细说明。 请点击此处查看该表格(右键单击可下载)。
补充数据文件。 请点击此处下载这些文件。
讨论
任何突变率的估算都需要尽可能提高精确度,以确保研究内部及研究之间的可重复性和再现性34。对于波动试验,有三个关键考虑因素。前两个因素已在本方案中设定,但如果将该方案调整用于不同菌株或环境时,则可能需要进行故障排查(见图3)。第一个因素是选择合适的表型标记。对于细菌,建议在两个标记位点之一——rpoB 或 gyrA——估算突变率,这两个位点分别赋予对利福平和萘啶酸的抗性。在这两个位点产生抗生素抗性突变的靶标大小不同。已知分别有79种和20种独特的突变可导致对利福平37和萘啶酸40的抗性。实际操作中这意味着利福平抗性突变体通常更频繁地被观察到。因此,需要回答的第一个问题(图3中的Q1)是该菌株是否为突变株。当研究组成型高突变株(即预期会观察到大量突变菌落)时,最好使用靶标较小的标记(例如萘啶酸)。参见图2B,其中使用萘啶酸作为标记估算了组成型高突变株 E. coli K-12 BW25113 ΔmutT 的突变率。当处理具有野生型(即正常)突变率的非高突变菌株时,利福平是更优的选择(见图2A)。如果由于某种原因需要观察到更多的突变体,则可选用环丝氨酸抗性作为相关标记。对于该标记,抗性突变可在十个以上的基因中发生41,意味着其靶标大小甚至大于利福平。在研究酵母和古菌时,建议在25S核糖体蛋白和URA3位点估算突变率,这两个位点分别赋予对潮霉素B和5-氟乳清酸(5-FOA)的抗性。
第二个关键考虑因素是平行培养的体积。所使用的体积取决于实际观察到的突变体数量。预期观察到的突变体数量受所选表型标记的靶标大小、菌株修复和避免突变的能力(平均突变率)以及环境承载能力的影响,而环境承载能力又受到培养基种类和培养体积的共同影响。如果所有平行培养中均未出现对利福平耐药的突变菌落,则应改用环丝氨酸,或增加涂布的细胞数量。这可以通过在最低培养基中添加更多葡萄糖,或在更丰富(或完全)的环境中培养细胞来实现。然而,在许多情况下,种群密度的这种增加常伴随突变率的降低,导致观察到的突变菌落数量增加有限,甚至不增加10。如果增加营养成分不可行,则可通过增加每个平行培养的体积来提高细胞数量。当培养环境为仅含糖作为唯一碳源和能源的最低盐培养基时(即图3中问题2的答案为"最低培养基"),应使用0.5至1.5 mL之间的体积。如果培养环境为丰富培养基,则平行培养的体积应在0.35−1 mL之间。最后一个问题涉及耐药菌落的中位数。如果观察到的突变菌落过少(即图3中问题3的答案为0)且不打算改变培养环境,则应增加平行培养的体积,或使用靶标更大的抗生素(例如环丝氨酸)。相反,如果在所有选择性平板上均观察到大量突变菌落(每板超过约150个,见图3),则应减少涂布的细胞数量,通常意味着使用更小的培养体积,或更换为靶标更小的抗生素(例如萘啶酸)。
确定体积后,最好使同一块96深孔板上的所有平行培养物体积保持一致。这有助于通过称量整块板的重量来更精确地确定平行培养物的实际体积。当比较特定基因型在不同环境中的突变率时,同样建议在所有环境中使用相同体积的平行培养物。如果使用萘啶酸来估计野生型(即正常)突变率,或使用比萘啶酸靶标更小的其他表型标记物,则必须进一步增加培养体积。一种选择是在50 mL离心管中进行平行培养,体积可高达15 mL。例如,在估计大肠杆菌(E. coli)K-12 MG1655对萘啶酸的突变率时,采用了10 mL的平行培养物,并置于50 mL离心管中(见图2A)。随后将这些10 mL的平行培养物接种到选择性TA琼脂平板上,并倾注于直径150 mm的大培养皿中,而非标准的90 mm培养皿。在50 mL离心管中进行平行培养的主要缺点是通量显著低于使用96深孔板测定突变率的方法。一种解决方案是减少平行培养物的数量,但这会影响对参数m估计的精确度,而该精确度取决于预期的突变事件数量和平行培养物的数量26。使用14−17个平行培养物获得观察到的突变体分布(如图2所示),在较高的通量与可接受的20%精确度水平之间达到了良好平衡26。17.5%的中位精确度与基于更大数据集计算出的中位精确度(四分位距为16.4%,范围为5.7%−38.9%,n = 580)相似10。因此,建议在使用96深孔板或50 mL离心管制备平行培养物时,至少应设置14个平行培养物以获得突变体的分布情况。当在不同环境中估计突变率时,建议通过多板实验评估精确度水平,即在同一块板上的96个平行培养物均在相同环境下培养。此外,在制备平行培养物时,至关重要的一点是接种物中的细胞数量必须较低,以降低接种物中存在任何耐药细胞的可能性。接种物中不应含有预先存在的耐药突变体,因为这些细胞会在选择性平板上增殖并形成菌苔,从而导致无法准确估计突变率。例如,在大多数非突变倾向型的E. coli群体中,对利福平耐药的突变率约为~10-8。因此,为了避免将预先存在的耐药突变体接种入培养物,接种细胞数必须少于108个(例如,103−104个细胞)。最后一个关键步骤是确保在将选择性琼脂平板放入培养前,其表面完全干燥。例如,当使用6孔板且每个平行培养物初始体积为1 mL时,无法使用涂布棒。必须在无菌条件下将平板敞口放置,使表面液体自然蒸发干燥。干燥所需时间可能差异较大,取决于环境条件和培养皿本身的状态。应尽量缩短该时间,但有时可能长达数小时。
波动试验具有内在的局限性。该试验仅能检测基因组中一小部分区域的突变表型标记。因此,该试验需要足够大的种群,并经历足够多的世代,才能观察到足够数量的突变,从而估算出突变率。这意味着波动试验只能用于能够快速经历大量世代的生物体,例如细菌、酿酒酵母42或液体培养的哺乳动物细胞30。此外,突变是稀有事件,发生在特定细胞特定的生化环境中。由于波动试验是在长时间内对大量细胞群体进行观察,这些环境条件可能存在显著差异。因此,利用该试验难以研究特定种群从迟滞期到早期和晚期对数生长期,最终进入稳定期过程中突变率的动态变化。种群内单个细胞之间突变率的任何差异在波动试验中均完全无法被检测到。单细胞水平的突变动态可通过单分子追踪DNA修复蛋白MutS43,或通过计数积累的MutL蛋白焦点44来进行研究。近年来高通量测序技术的进步也使得直接从亲子三联体9,45以及多世代家系46中直接估算突变率成为可能。这些方法学上的进展正逐步实现对单个世代内发生突变的直接计数。然而,这种直接方法需要昂贵且先进的技术,如荧光显微镜、微流控技术或全基因组测序。相比之下,波动试验成本相对较低,仅需常规实验室设备即可完成。开展更多的波动试验还将有助于提出新的科学假说,这些假说随后可借助更直接的单细胞方法进行验证。
人们对突变研究有着长期的兴趣,因此波动试验很可能仍将是广泛使用的方法。Luria 和 Delbrück 的开创性论文5在最近四年(2015–2018年)的每年引用次数均位列该论文历年引用量的前五位。然而,由于正确实施一次波动试验需要大量精确的手工操作,大多数研究仅进行少量几次波动试验。但这种方法不足以揭示突变率对环境条件的依赖性。通过本文所述的使用多孔板来简化波动试验流程,目前可实现的最大通量为并行处理11块深孔板(共55次波动试验)。若将两组波动试验错开一天并行运行,则每周最多可完成110次试验。若能将目前完全手动的波动试验流程中的各个步骤实现自动化,还有望进一步大幅提升通量。此外,在研究突变率的环境依赖性时,还需考虑种群密度的影响。先前的研究结果10表明,当已知影响突变率的因素被校正后,若对种群密度进行控制,突变率估计值的变异可降低超过90%。为了控制密度,我们建议用于估计突变率的 Nt 应独立于种群密度测定方法进行测定。在细菌中,Nt 可通过菌落形成单位(CFU)测定,而种群密度则例如可通过基于ATP的发光检测法10来测定。
在研究生物体的生态背景如何影响其自发突变率时,高通量和密度控制均至关重要。了解突变率可塑性的存在具有重要意义,但若要将突变率可塑性纳入更广泛的生物学背景中,关键挑战在于阐明其成因与效应。波动试验是一种极为有效的工具,可用于检验多种假设,因其结果获取迅速,且相对于其他方法成本低廉。例如,目前已有条件研究细菌群落和微生物组中突变率的环境依赖性。将波动试验应用于共培养体系,可检验一个假设:菌株之间是否通过小分子相互影响彼此的突变率。开展数千次共培养条件下的波动试验,可确定不同菌株在改变彼此突变率的能力以及在自身突变率被其他菌株改变的敏感性方面是否存在差异。菌株间在突变率调控敏感性上的差异,或许可归因于特定的遗传变异。这可能会改变我们对复杂群落中进化机制的理解,尤其是在抗菌药物耐药性产生等具有广泛重要意义的实例中。
披露
作者无任何利益冲突需要披露。
致谢
RK 获得了 BB/M020975/1 项目和曼彻斯特大学生物科学学院的支持。HR 获得了 BB/J014478/1 项目的支持。GG 获得了英国生物技术和生物科学研究理事会博士培训项目(BBSRC Doctoral Training Partnership)BB/M011208/1 的支持。DRG 获得了英国研究与创新署(UKRI)资助编号 MR/R024936/1 的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 微量离心管 | Starlab International GmbH | S1615-5550 | |
| 2,3,5-三苯基氯化四氮唑 | Sigma-Aldrich | T8877-10g | |
| 6孔板 | Greiner Bio-One | REF 657102 | |
| 90 mm 三重通气培养皿 | 赛默飞世尔科技 | 参考文献 120189 | |
| 96孔深孔板(Masterblock 2 mL) | Greiner Bio-One | REF 780270 | |
| 硫酸铵 | Fisher Chemical | A/6440/53 | |
| Bacto 琼脂 | Becton, Dickinson and Company | REF 214010 | |
| 酵母提取物(Bacto) | Becton, Dickinson and Company | REF 212750 | |
| 环丝氨酸 | Sigma-Aldrich | 1158005-250MG | 仅用于检测另一种表型标志物 |
| D-葡萄糖无水物 | Fisher Chemical | G/0500/61 | |
| 50 mL 离心管 | 康宁 | REF 430828 | |
| L-(+)-阿拉伯糖 | Sigma-Aldrich | A3256-500g | |
| 七水硫酸镁 | Fisher Chemical | M/1050/53 | |
| 萘啶酸 | Sigma-Aldrich | N8878-5G | 仅用于检测替代性表型标志物 |
| 磷酸氢二钾三水合物 | Sigma-Aldrich | P5504-500g | |
| 磷酸二氢钾 | Sigma-Aldrich | P0662-500g | |
| 利福平 | EMD Millipore Corp,美国 | 557303-1GM | |
| 氯化钠 | Fisher Chemical | S/3160/60 | |
| 分光光度计 | Jenway | 6320D | |
| 盐酸硫胺 | Sigma-Aldrich | T4625-25g | |
| 二水合柠檬酸三钠 | Sigma-Aldrich | S1804-500g | |
| 胰蛋白胨 | Fisher Chemical | 1278-7099 |
参考文献
- de Vries, H. Die mutationstheorie. Versuche und beobachtungen über die entstehung von arten im pflanzenreich. 1, Leipzig, Veit. (1901).
- Muller, H. J. Artificial transmutation of the gene. Science. 66 (1699), (1927).
- Muller, H. J. The measurement of gene mutation rate in Drosophila, its high variability, and its dependence upon temperature. Genetics. 13 (4), 279-357 (1928).
- Sturtevant, A. H. Essays on evolution. I. On the effects of selection on mutation rate. The Quarterly Review of Biology. 12 (4), 464-467 (1937).
- Luria, S. E., Delbrück, M. Mutations of bacteria from virus sensitivity to virus resistance. Genetics. 28 (6), 491-511 (1943).
- Jee, J., et al. Rates and mechanisms of bacterial mutagenesis from maximum-depth sequencing. Nature. 534 (7609), 693-696 (2016).
- Fusco, D., Gralka, M., Kayser, J., Anderson, A., Hallatschek, O. Excess of mutational jackpot events in expanding populations revealed by spatial Luria-Delbrück experiments. Nature Communications. 7, (2016).
- Halligan, D. L., Keightley, P. D. Spontaneous mutation accumulation studies in evolutionary genetics. Annual Review of Ecology Evolution and Systematics. 40 (1), 151-172 (2009).
- Jónsson, H., et al. Parental influence on human germline de novo mutations in 1,548 trios from Iceland. Nature. 549, (2017).
- Krašovec, R., et al. Spontaneous mutation rate is a plastic trait associated with population density across domains of life. PLoS Biology. 15 (8), (2017).
- Krašovec, R., et al. Mutation rate plasticity in rifampicin resistance depends on Escherichia coli cell-cell interactions. Nature Communications. 5, 3742(2014).
- Massey, R. C., Buckling, A. Environmental regulation of mutation rates at specific sites. Trends in Microbiology. 10 (12), 580-584 (2002).
- Lynch, M., et al. Genetic drift, selection and the evolution of the mutation rate. Nature Review Genetics. 17 (11), 704-714 (2016).
- Foster, P. L. Stress-induced mutagenesis in bacteria. Critical Reviews in Biochemistry and Molecular Biology. 42 (5), 373-397 (2007).
- Krašovec, R., et al. Where antibiotic resistance mutations meet quorum-sensing. Microbial Cell. 1 (7), 250-252 (2014).
- Krašovec, R., et al. Opposing effects of final population density and stress on Escherichia coli mutation rate. The ISME Journal-Multidisciplinary Journal of Microbial Ecology. 12, 2981-2987 (2018).
- Lea, D., Coulson, C. The distribution of the numbers of mutants in bacterial populations. Journal of Genetics. 49 (3), 264-285 (1949).
- Armitage, P. The statistical theory of bacterial populations subject to mutation. Journal of the Royal Statistical Society. Series B (Methodological. 14 (1), 1-40 (1952).
- Koch, A. L. Mutation and growth rates from Luria-Delbrück fluctuation tests). Mutation Research/Fundamental and Molecular Mechanisms of Mutagenesis. 95 (2-3), 129-143 (1982).
- Cairns, J., Overbaugh, J., Miller, S. The origin of mutants. Nature. 335 (6186), 142-145 (1988).
- Stewart, F. M., Gordon, D. M., Levin, B. R. Fluctuation analysis: the probability distribution of the number of mutants under different conditions. Genetics. 124 (1), 175-185 (1990).
- Drake, J. W. A constant rate of spontaneous mutation in DNA-based microbes. Proceedings of the National Academy of Sciences. 88 (16), 7160-7164 (1991).
- Ma, W. T., Sandri, G. V., Sarkar, S. Analysis of the Luria-Delbrück distribution using discrete convolution powers. Journal of Applied Probability. 29 (2), 255-267 (1992).
- Shapiro, J. A. Adaptive mutation - Who's really in the garden. Science. 268 (5209), 373-374 (1995).
- Matic, I., et al. Highly variable mutation rates in commensal and pathogenic Escherichia coli. Science. 277 (5333), 1833-1834 (1997).
- Rosche, W. A., Foster, P. L. Determining mutation rates in bacterial populations. Methods. 20 (1), 4-17 (2000).
- Rosenberg, S. M. Evolving responsively: Adaptive mutation. Nature Reviews Genetics. 2 (7), 504-515 (2001).
- Lynch, M. Evolution of the mutation rate. Trends in Genetics. 26 (8), 345-352 (2010).
- Zheng, Q. A new practical guide to the Luria-Delbrück protocol. Mutation Research. 781, 7-13 (2015).
- Boesen, J. J. B., Niericker, M. J., Dieteren, N., Simons, J. How variable is a spontaneous mutation-rate in cultured-mammalian-cells. Mutation Research. 307 (1), 121-129 (1994).
- Melnyk, A. H., Wong, A., Kassen, R. The fitness costs of antibiotic resistance mutations. Evolutionary Applications. 8 (3), 273-283 (2015).
- Sun, L., et al. Effective polyploidy causes phenotypic delay and influences bacterial evolvability. PLoS Biology. 16 (2), (2018).
- Frenoy, A., Bonhoeffer, S. Death and population dynamics affect mutation rate estimates and evolvability under stress in bacteria. PLoS Biology. 16 (5), (2018).
- Foster, P. L. Methods for determining spontaneous mutation rates. Methods in Enzymology. , 195-213 (2006).
- Wrande, M., Roth, J. R., Hughes, D. Accumulation of mutants in "aging" bacterial colonies is due to growth under selection, not stress-induced mutagenesis. Proceedings of the National Academy of Sciences of the United States of America. 105 (33), 11863-11868 (2008).
- Adrien, M., Rémy, D., Stéphane, D., Bernard, Y. flan: An R package for inference on mutation models. The R Journal. 9. 334, (2017).
- Garibyan, L., et al. Use of the rpoB gene to determine the specificity of base substitution mutations on the Escherichia coli chromosome. DNA Repair. 2 (5), 593-608 (2003).
- Stewart, F. M. Fluctuation tests: how reliable are the estimates of mutation rates? Genetics. 137 (4), 1139-1146 (1994).
- Baba, T., et al. Construction of Escherichia coli K-12 in-frame, single-gene knockout mutants: the Keio collection. Molecular Systems Biology. 2 (1), (2006).
- Yamagishi, J. -I., Yoshida, H., Yamayoshi, M., Nakamura, S. Nalidixic acid-resistant mutations of the gyrB gene of Escherichia coli. Molecular and General Genetics MGG. 204 (3), 367-373 (1986).
- Chen, J., et al. Identification of novel mutations associated with cycloserine resistance in Mycobacterium tuberculosis. Journal of Antimicrobial Chemotherapy. 72 (12), 3272-3276 (2017).
- Lang, G. I., Murray, A. W. Estimating the per-base-pair mutation rate in the yeast Saccharomyces cerevisiae. Genetics. 178 (1), 67-82 (2008).
- Uphoff, S., et al. Stochastic activation of a DNA damage response causes cell-to-cell mutation rate variation. Science. 351 (6277), 1094-1097 (2016).
- Robert, L., et al. Mutation dynamics and fitness effects followed in single cells. Science. 359 (6381), 1283-1286 (2018).
- Kong, A., et al. Rate of de novo mutations and the importance of father/'s age to disease risk. Nature. 488 (7412), 471-475 (2012).
- Narasimhan, V. M., et al. Estimating the human mutation rate from autozygous segments reveals population differences in human mutational processes. Nature Communications. 8 (1), 303(2017).
重印与许可
