两阶段皮肤致癌过程由两种外用化学物质诱导。致突变剂7,12-二甲基苯并[a]蒽可导致表皮细胞发生突变,而持续应用促生长剂12-O-十四烷酰佛波醇-13-乙酸酯则可加速皮肤乳头瘤的形成。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
使用二甲基苯并[a]蒽和12-O-十四烷酰佛波醇-13-乙酸酯(DMBA-TPA)建立化学诱导皮肤癌变模型
* These authors contributed equally
本文内容
摘要
摘要
癌症是最具破坏性的人类疾病之一。实验性癌症模型对于深入了解不同类型细胞和基因在促进肿瘤进展中的复杂相互作用至关重要,同时也为测试不同治疗策略的有效性提供了平台。最常用的实验性炎症性癌症模型之一是DMBA-TPA两阶段皮肤癌发生模型。该模型通过局部应用两种不同的化学物质——7,12-二甲基苯并[a]蒽(DMBA)和12-O-十四烷酰佛波醇-13-乙酸酯(TPA)——诱导皮肤乳头状瘤的形成。由于主要结局是皮肤中乳头状瘤的形成,该模型成为研究肿瘤起始(无瘤生存期)和肿瘤进展(可见肿瘤的数量和大小)的理想、可靠且可重复的方法。DMBA-TPA处理的作用通过炎症机制传递,这使得该模型特别适用于研究免疫系统在肿瘤形成中的作用。然而,该模型仅限于皮肤及其他可直接施加化学物质的表面。本文提供了一套详细的实验操作方案,以确保该模型的成功应用。
引言
癌症是全球主要的死亡原因之一。因此,迫切需要开发可靠的实验性疾病模型,以更深入地理解疾病机制并探索潜在的治疗策略。在研究皮肤癌发生过程中,最常用的实验性体内模型之一是化学诱导的两阶段皮肤癌变模型1,2。该模型可用于研究肿瘤的启动、促进和进展过程,以及免疫细胞浸润和血管生成等特定事件。
使用两阶段皮肤致癌模型时,需用两种不同的化学物质处理小鼠背部皮肤,以共同诱导肿瘤形成。该模型首先以低剂量的致突变剂DMBA启动,随后进行长期的肿瘤促进剂TPA处理3(图1)。DMBA通过与表皮细胞及主要角质形成细胞干细胞的DNA形成共价加合物,随机诱导DNA突变4,5,6,7。部分随机突变发生在原癌基因(如Hras1)中(也可检测到Kras和Nras的突变),在适当刺激下,原癌基因转化为癌基因,从而驱动肿瘤形成。TPA则是最常用的肿瘤生长促进剂,其分子靶点为蛋白激酶C(PKC)8。TPA还可激活对模型中肿瘤形成至关重要的Wnt/β-catenin信号通路9。反复且长期暴露于促进剂可导致细胞信号增强、生长因子产生增加以及局部炎症反应,这些变化可通过处理皮肤中DNA合成增加和炎性细胞浸润而明显观察到。
DMBA-TPA 模型中的关键炎症介质已被鉴定10。白细胞介素-17A(IL-17A)在该模型中具有显著的促肿瘤作用11,12。它与白细胞介素6(IL-6)协同作用,并参与巨噬细胞和中性粒细胞的募集13,14。此外,CD4+ T 细胞和中性粒细胞在 DMBA-TPA 模型中也已被证实具有促肿瘤活性。最后,巨噬细胞在该模型中同样可促进肿瘤发生15,16,17。
在促癌阶段,突变细胞的增殖能力增强,并维持表皮的持续性增生1这会导致皮肤在10至20周内形成乳头状瘤,随后乳头状瘤开始转化为恶性肿瘤,即鳞状细胞癌(SCCs)。2然而,仅有不到10%的乳头状瘤会进展为恶性肿瘤,尽管这一比例也取决于小鼠的遗传背景2,18几十年来,人们一直不清楚导致肿瘤恶变的最初发生突变的细胞类型,尽管一些研究已报道恶性肿瘤与良性乳头状瘤相比具有明显不同的特征。19,20然而,近期的研究极大地增进了我们对DMBA-TPA模型中肿瘤形成克隆起源的理解21.22.23结果表明,骨髓来源的上皮细胞和毛囊干细胞均参与肿瘤的形成。22特定发育阶段的谱系追踪研究揭示,良性乳头状瘤为单克隆起源,但会招募新的上皮细胞群体21,23然而,只有一个细胞克隆发挥致癌驱动作用;该克隆含有 Hras 突变23向癌形成的进展与克隆清除相关23.
致癌物DMBA可启动乳头状瘤的形成,而TPA则促进肿瘤生长。因此,在TPA处理阶段开始前终止实验,即可将肿瘤起始阶段与促进阶段分开进行独立研究。由于肿瘤进展是按周进行观察的,这为整个研究过程中肿瘤生长的详细分析提供了极佳的机会。由于这些肿瘤是由外源性化学物质诱导产生的,因此无需生殖系中的致癌突变。因此,研究遗传背景(例如基因敲除/转基因与野生型)对肿瘤发生的影响变得十分直接简便2。总之,DMBA/TPA皮肤癌模型是研究免疫系统在肿瘤进展中作用的特别有用的方法,同时也可用于独立或关联地评估肿瘤起始与促进的各个阶段。
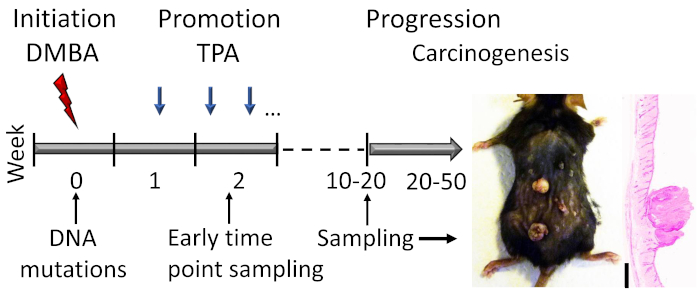
图1:DMBA-TPA诱导的皮肤致癌模型示意图。 在模型的启动阶段,通过局部应用致癌物DMBA以诱导DNA突变。在促进阶段,每周给予促生长剂TPA两次,以增强细胞增殖,从而导致皮肤上乳头状瘤的形成。当乳头状瘤反应达到平台期后,通常在第15至20周之间(具体时间取决于小鼠的遗传背景),将动物处死。其中一小部分乳头状瘤可在20至50周内进一步发展为鳞状细胞癌(SCC)。为了研究启动及早期促进阶段的早期事件,可在此期间采集样本(例如,在第二次TPA处理后不久)。图中显示了经19周处理后,C57BL/6小鼠皮肤上乳头状瘤的代表性照片及其苏木精-伊红染色横切面。比例尺 = 0.1 mm。 请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
本方案已获得芬兰国家动物伦理委员会批准(方案编号 ESAVI/23659/2018)。
1. 实验动物、试剂与设备
- 使用年龄和性别匹配的小鼠。在7–9周龄时开始实验,因为大多数小鼠的皮肤在此年龄段处于休止期(telogen)2。
- 在实验过程中观察动物行为,若发现其发生争斗(雄性小鼠中较为常见),应将它们单独饲养。争斗可能导致皮肤破损,从而促进肿瘤形成。由于雌性小鼠攻击性较低,因此更推荐使用。典型的实验组每组动物数量为8–20只24,25,26,27。
注意:基于前期研究中观察到的生物学变异进行功效计算,有助于选择足够大的样本量。本文示例中使用的小鼠品系包括Balb/c和C57BL/6,但其他多种小鼠品系(如SENCAR和FVB)以及Wistar和Sprague-Dawley大鼠也已在DMBA-TPA模型中应用2,28,29。实验开始前需获得国家或地方动物实验伦理委员会的许可。除一般福利考虑外,该模型的特异性终点通常为鳞状细胞癌(SCC)和皮肤感染。由于在皮肤上涂抹致瘤化学物质(溶于丙酮)后常引起瘙痒而导致抓痕,这是常见现象,但除此之外动物不应表现出任何不适迹象。定期称重(例如每月两次)有助于评估动物福利状况。 - 使用DMBA和TPA,两者均用丙酮稀释。DMBA的工作浓度为250 g/L,每只动物的剂量为200 µL丙酮中含有50 µg DMBA。TPA的储备液浓度为125 g/L,处理浓度为25 g/L,每只动物的TPA剂量为200 µL丙酮中含有5 µg TPA。
注意安全:DMBA吞食有害,可能致癌。丙酮易挥发且易燃,可能引起头晕并对眼睛产生刺激。操作时应佩戴呼吸面罩和/或在通风橱内进行。接触上述化学品后应及时更换手套。使用独立通风笼具可防止小鼠饲养期间化学品扩散。使用后应收集接触过DMBA的移液器吸头,并作为危险废物处理。
注意:DMBA需避光保存。稀释后的TPA应储存于-20 °C,最好也避光保存。 - 准备以下设备:天平、普通毛发剃刀、合适规格的移液器及吸头、普通直尺、数码相机、记录乳头状瘤所用的笔记本和笔或计算机、吸入式麻醉系统或顶部后方带开口的小鼠固定器,以及用于处死小鼠的二氧化碳麻醉系统。
2. 皮肤乳头瘤的诱导与促发
- 剃除背部皮肤的毛发并称量动物体重。之后根据需要剃毛,但化学暴露时不得剃毛。
注意:剃毛时需小心避开乳头状瘤区域,避免皮肤产生任何切割伤。每2周称量每只动物体重一次,以监测是否出现潜在的体重下降。 - 在剃毛后48小时,使用移液器将50 µg DMBA溶于200 µL丙酮中,局部涂抹于剃毛区域。如有需要,可通过轻度吸入麻醉或使用小鼠固定器固定动物。
- 7天后给予首次TPA剂量。将5 µg TPA溶于200 µL丙酮中,使用移液器每周局部涂抹两次,建议安排在周一和周四,或周二和周五。
- 每周计数、记录并拍摄乳头状瘤。若可触及的肿块直径大于1 mm且持续存在超过1周,则认定为乳头状瘤。在图谱上标记每个独立的乳头状瘤,并每周记录其大小。保存数字照片。
3. 动物安乐死与样本采集
- 持续治疗直至肿瘤反应达到平台期。通常,乳头瘤负荷在诱导后10–20周开始增加,具体时间取决于所使用的小鼠品系。平台期预计出现在15–20周。少数乳头瘤(低于3%)可能在20–50周内发展为鳞状细胞癌(SCC)2。
- 在最后一次TPA处理后24小时处死动物。可采用二氧化碳麻醉联合颈椎脱位或其他合适的方法。
- 根据研究问题,从动物体内采集适当的样本材料30,31。
- 例如,在处死前采集血液样本并分离血浆。
- 切取皮肤组织用于免疫组织化学(IHC)染色(如苏木精和伊红染色、增殖细胞或炎症细胞染色)。
- 使用皮肤活检打孔器采集含有乳头瘤组织或非乳头瘤(处理过)皮肤的样本,用于基因表达分析(如qPCR)和/或蛋白质分析(如Western blot或ELISA)。
- 如需对免疫细胞群体进行更详细的分析,可采集脾脏和皮肤引流淋巴结用于流式细胞术分析。也可进一步分离表皮和真皮层用于其他分析。
4. 统计学
- 绘制无乳头瘤生存时间的Kaplan-Meier生存曲线,并使用Mantel-Cox log-rank检验进行生存分析。绘制每周乳头瘤数量的线性曲线。由于这是计数数据,应采用非线性回归模型。如有需要,请咨询统计学家。
访问受限。请登录或开始试用以查看此内容。
结果
主要结局是治疗组或基因型组之间的生存(即无乳头瘤)时间。次要结局是每组每周的乳头瘤数量(图2)。预期结果为实验组(两个或以上)之间在无乳头瘤时间和乳头瘤数量上存在统计学显著差异。建议在促癌(TPA)阶段统计乳头瘤数量并绘制曲线,以初步了解各组在此阶段的差异。过早终止实验可能掩盖统计学显著差异。

图2:DMBA-TPA诱导的皮肤癌发生模型的主要结果。 小鼠皮肤上乳头瘤的代表性图像及其两项主要结果。数据来自四项独立实验的合并结果。注意:Balb/C和C57BL/6小鼠的实验是分别进行的。(...
访问受限。请登录或开始试用以查看此内容。
讨论
DMBA-TPA诱导的皮肤癌是最常用的癌症模型之一,因其具有高度可重复性,并能提供从肿瘤起始到恶性发展的全过程信息。关键的观察指标——乳头状瘤的形成,可简便且可靠地进行定量分析。该模型可同时评估肿瘤的起始(无瘤生存期)和进展(肿瘤数量和大小)。该模型适用于研究不同化合物(如潜在治疗药物)以及在基因修饰动物中单个基因对肿瘤进展的影响。在将该模型应用于任何特定小鼠品系时,建议查阅现有文献,以了解该品系在该模型中的反应特征(例如,首个乳头状瘤出现的速度)。使用基因修饰小鼠时,始终推荐使用野生型同窝小鼠作为对照。关于是否应增设其他对照组(例如用丙酮替代DMBA或TPA,或两者均替代),目前存在很大争议,因为已知去除DMBA或TPA,或颠倒其给药顺序,极不可能诱导乳头状瘤的形成34。当必须单独研究肿瘤起始阶段(即仅给予DMBA)时,可在给予DMBA剂量后处死动物进行分析。在研究转基因或基因敲除背景下单个基因的作用时,建议采集未经处理动物的样本,以检测基因工程小鼠与野生型小鼠在肿瘤形成前可能存在的差异30,
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本工作由芬兰科学院(资助号 25013080481 和 25013142041(I.J.),286377 和 295814(M.P.),287907(T.J.))、Päivikki 和 Sakari Sohlberg 基金会(M.P.,T.J.)、芬兰医学基金会(T.P.)、坦佩雷大学医院专家责任区竞争性国家研究资助(资助号 9V049 和 9X044(M.P.),9X011 和 9V010(T.J.))、Fimlab 实验室专家责任区竞争性国家研究资助(资助号 X51409(I.J.))、Tays 支持基金会(I.J.,M.P.,T.J.)、坦佩雷结核病基金会(I.J.,M.P.,T.J.)、芬兰文化基金会(M.V.)、Paulo 基金会(T.P.)、芬兰癌症协会(M.P.)以及 Emil Aaltonen 基金会(T.P.)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1000 µl RPT XL 带刻度滤芯吸头(无菌),补充装 | Starlab | S1182-1730-C | |
| 300 µl RTP 带刻度滤芯吸头(无菌),补充装 | Starlab | S1180-9710-C | |
| 7,12-二甲基苯并[a]蒽(DMBA) | Sigma | D3254-100MG | 吞咽有害,可能致癌。需避光保存。 |
| 丙酮 | Sigma | 1000141011 | 易挥发且易燃。 |
| Attane vet 1000 mg/g | Piramal Critical Care Limited | 吸入用液态异氟烷 | |
| 电池驱动剃毛器 Isis | Albert Kerlb GmbH | GT421 | 用于剃除毛发 |
| CONTRAfluran-废气过滤器 | ZeoSys GmbH | 用于麻醉 | |
| Linex Nature N1030 尺子 30 cm | Staples Business Advantage | 60383 | 用于测量乳头状瘤 |
| 中型 CO₂ 室 300 × 200 × 200 mm - 红色 | VetTech Solutions Ltd | AN045AR | 用于安乐死 |
| Mekasoft | Mekalasi | 23008 | 台面覆盖物 |
| 小鼠(Balb/c JRj) | Janvier labs | 其他品系亦可使用 | |
| 小鼠(C57BL/6JRj) | Janvier labs | 其他品系亦可使用 | |
| Panasonic Lumix DMC-FS5 数码相机 | Panasonic | ||
| 多聚甲醛 | Merck | 30525-89-4 | 用于组织学样本 |
| 佛波醇-12-十四烷酰-13-乙酸酯(TPA),又称佛波醇-12-肉豆蔻酸-13-乙酸酯 | Enzo | BML-PE160-0001 | |
| 精密天平 PLJ-C/PLJ-G | KERN & SOHN GmbH | PLJ 600-3CM | |
| Pre-Set CO₂ 双室系统-不锈钢外壳 | VetTech Solutions Ltd | AN044BX | 用于安乐死 |
| RNAlater | Qiagen | 76104 | 用于核酸样本 |
| Tacta 移液器 100–1000 µl | Sartorius | LH-729070 | |
| Tacta 移液器 20–200 µl | Sartorius | LH-729060 | |
| UNO 麻醉剂加注钥匙 | Scintica Instrumentation Inc. | 用于麻醉 | |
| UNO 小鼠面罩 | Scintica Instrumentation Inc. | 用于麻醉 | |
| UNO FM2200 流量计 | Scintica Instrumentation Inc. | 用于麻醉 | |
| UNO 气体排空装置 | Scintica Instrumentation Inc. | 用于麻醉 | |
| UNO 诱导箱 | Scintica Instrumentation Inc. | 用于麻醉 | |
| UNO200VAP 蒸发器 | Scintica Instrumentation Inc. | 用于麻醉 |
参考文献
- DiGiovanni, J. Multistage carcinogenesis in mouse skin. Pharmacology & Therapeutics. 54 (1), 63-128 (1992).
- Abel, E. L., Angel, J. M., Kiguchi, K., DiGiovanni, J. Multi-stage chemical carcinogenesis in mouse skin: fundamentals and applications. Nature Protocols. 4 (9), 1350-1362 (2009).
- Perez-Losada, J., Balmain, A. Stem-cell hierarchy in skin cancer. Nature Reviews. Cancer. 3 (6), 434-443 (2003).
- Bonham, K., et al. Activation of the cellular Harvey ras gene in mouse skin tumors initiated with urethane. Molecular Carcinogenesis. 2 (1), 34-39 (1989).
- Quintanilla, M., Brown, K., Ramsden, M., Balmain, A. Carcinogen-specific mutation and amplification of Ha-ras during mouse skin carcinogenesis. Nature. 322 (6074), 78-80 (1986).
- Nelson, M. A., Futscher, B. W., Kinsella, T., Wymer, J., Bowden, G. T. Detection of mutant Ha-ras genes in chemically initiated mouse skin epidermis before the development of benign tumors. Proceedings of the National Academy of Sciences of the United States of America. 89 (14), 6398-6402 (1992).
- Morris, R. J. A perspective on keratinocyte stem cells as targets for skin carcinogenesis. Differentiation. 72 (8), 381-386 (2004).
- Chung, Y. W., Kim, H. K., Kim, I. Y., Yim, M. B., Chock, P. B. Dual function of protein kinase C (PKC) in 12-O-tetradecanoylphorbol-13-acetate (TPA)-inducec manganese superoxide dismutase (MnSOD) expression: activation of CREB and FOXO3a by PKC-alpha phosphorylation and by PKC-mediated inactivation of Akt, respectively. The Journal of Biological Chemistry. 286 (34), 29681-29690 (2011).
- Su, Z., et al. Tumor promoter TPA activates Wnt/β-catenin signaling in a casein kinase 1-dependent manner. Proceedings of the National Academy of Sciences of the United States of America. 115 (32), 7522-7531 (2018).
- Swann, J. B., et al. Demonstration of inflammation-induced cancer and cancer immunoediting during primary tumorigenesis. Proceedings of the National Academy of Sciences of the United States of America. 105 (2), 652-656 (2008).
- Wang, L., Yi, T., Zhang, W., Pardoll, D. M., Yu, H. IL-17 enhances tumor development in carcinogen-induced skin cancer. Cancer Research. 70 (24), 10112-10120 (2010).
- He, D., et al. IL-17 mediated inflammation promotes tumor growth and progression in the skin. PLoS One. 7 (2), 32126(2012).
- Roussel, L., et al. IL-17 promotes p38 MAPDK-dependent endothelial activation enhancing neutrophil recruitment to sites of inflammation. Journal of Immunology. 184 (8), 4531-4537 (2010).
- Wanqiu, H., Young-Hee, J., Hyun, S. K., Byung, S. K. Interleukin-6 (IL-6) and IL-17 synergistically promote viral persistence by inhibition cellular apoptosis and cytotoxic T cell function. Journal of Virology. 88 (15), 8479-8489 (2014).
- Yusuf, N., et al. Antagonistic roles of CD4+ and CD8+ T-cells in 7,12-dimethylbenz(a)anthracene cutaneous carcinogenesis. Cancer Research. 68 (10), 3924-3930 (2008).
- Gong, L., et al. Promoting effect of neutrophils on lung tumorigenesis is mediated by CXCR2 and neutrophil elastase. Molecular Cancer. 12 (1), 154(2013).
- Vestweber, D., Wessel, F., Nottebaum, A. F. Similarities and differences in the regulation of leukocyte extravasation and vascular permeability. Seminars in Immunopathology. 36 (2), 177-192 (2014).
- Woodworth, C. D., et al. Strain-dependent differences in malignant conversion of mouse skin tumors is an inherent property of the epidermal keratinocyte. Carcinogenesis. 25 (9), 1771-1778 (2004).
- Tennenbaum, T., et al. The suprabasal expression of alpha 6 beta 4 integrin is associated with a high risk for malignant progression in mouse skin carcinogenesis. Cancer Research. 53 (20), 4803-4810 (1993).
- Hennings, H., Shores, R., Mitchell, P., Spangler, E. F., Yuspa, S. H. Induction of papillomas with a high probability of conversion to malignancy. Carcinogenesis. 6 (11), 1607-1610 (1985).
- Auto, Y., et al. Time-Series Analysis of Tumorigenesis in a Murine Skin Carcinogenesis Model. Scientific Reports. 8 (1), 12994(2018).
- Park, H., et al. Bone marrow-derived epithelial cells and hair follicle stem cells contribute to development of chronic cutaneous neoplasms. Nature Communications. 9 (1), 5293(2018).
- Reeves, M. Q., Kandyba, E., Harris, S., Del Rosario, R., Balmain, A. Multicolour lineage tracing reveals clonal dynamics of squamous carcinoma evolution from initiation to metastasis. Nature Cell Biology. 20 (6), 699-709 (2018).
- Dao, V., et al. Prevention of carcinogen and inflammation-induced dermal cancer by oral rapamycin includes reducing genetic damage. Cancer Prevention Research. 5, Philadelphia Pa. 400-409 (2015).
- Yeong, L. T., Abdul Hamid, R., Saiful Yazan, L., Khaza’ai, H., Mohtarrudin, N. Low dose triterpene-quinone fraction from Ardisia crispa root precludes chemical-induced mouse skin tumor promotion. BMC Complementary and Alternative Medicine. 15 (1), 431(2015).
- Kong, Y. H., Xu, S. P. Salidroside prevents skin carcinogenesis induced by DMBA/TPA in a mouse model through suppression of inflammation and promotion of apoptosis. Oncology Reports. 39 (6), 2513-2526 (2018).
- Jung, M., Bu, S. Y., Tak, K. H., Park, J. E., Kim, E. Anticarcinogenic effect of quercetin by inhibition of insulin-like growth factor (IGF)-1 signaling in mouse skin cancer. Nutrition Research and Practice. 7 (6), 439-445 (2013).
- Hu, Y. Q., Wang, J., Wu, J. H. Administration of resveratrol enhances cell-cycle arrest followed by apoptosis in DMBA-induced skin carcinogenesis in male Wistar rats. European review for medical and pharmacological sciences. 13, 2935-2946 (2016).
- Schweizer, J., Loehrke, H., Hesse, B., Goerttler, K. 7,12-Dimethylbenz[a]anthracene/12-O-tetradecanoyl-phorbol-13-acetate-mediated skin tumor initiation and promotion in male Sprague-Dawley rats. Carcinogenesis. 3 (7), 785-789 (1982).
- Vähätupa, M., et al. T-cell-expressed proprotein convertase FURIN inhibits DMBA/TPA-induced skin cancer development. Oncoimmunology. 5 (12), 1245266(2016).
- May, U., et al. Resistance of R-Ras knockout mice to skin tumour induction. Scientific Reports. 5, 11663(2015).
- Krajewska, M., et al. Image analysis algorithms for immunohistochemical assessment of cell death events and fibrosis in tissue sections. The Journal of Histochemistry and Cytochemistry. 57 (7), 649-663 (2009).
- Järvinen, T. A., Ruoslahti, E. Target-seeking antifibrotic compound enhances wound healing and suppresses scar formation in mice. Proceedings of the National Academy of Sciences of the United States of America. 107 (50), 21671-21676 (2010).
- Schwarz, M., Münzel, P. A., Braeuning, A. Non-melanoma skin cancer in mouse and man. Archives of Toxicology. 87 (5), 783-798 (2013).
- Slaga, T. J. SENCAR mouse skin tumorigenesis model versus other strains and stocks of mice. Environmental Health Perspectives. 68, 27-32 (1986).
- Goerttler, K., Loehrke, H., Schweizer, J., Hesse, B. Systemic two-stage carcinogenesis in the epithelium of the forestomach of mice using 7,12-dimethylbenz(a)anthracene as initiator and the phorbol ester 12-O-tetradecanoylphorbol-13-acetate as promoter. Cancer Research. 39 (4), 1293-1297 (1979).
- Topping, D. C., Nettesheim, P. Promotion-like enhancement of tracheal carcinogenesis in rats by 12-O-tetradecanoylphorbol-13-acetate. Cancer Research. 40, 4352-4355 (1980).
- Wille, J. J. Circadian rhythm of tumor promotion in the two-stage model of mouse tumorigenesis. Cancer Letters. 190 (2), 143-149 (2003).
- Lee, Y. S., et al. Inhibition of skin carcinogenesis by suppression of NF-κB dependent ITGAV and TIMP-1 expression in IL32γ overexpressed condition. Journal of Experimental & Clinical Cancer Research. 37 (1), 293(2018).
- Kiss, A., et al. Cell type-specific p38δ targeting reveals a context-, stage-, and sex-dependent regulation of skin carcinogenesis. International Journal of Molecular Sciences. 20 (7), 1532(2019).
- Tomo-o, I., et al. Positron emission tomography imaging of DMBA/TPA mouse skin multi-step tumorigenesis. Molecular Oncology. 4 (2), 119-125 (2010).
- Mantovani, A., Allavena, P., Sica, A., Balkwill, F. Cancer-related inflammation. Nature. 454 (7203), 436-444 (2008).
- Crusz, S. M., Balkwill, F. R. Inflammation and cancer: advances and new agents. Nature Reviews. Clinical Oncology. 12 (10), 584-596 (2015).
- Hennings, L., et al. Malignant conversion and metastasis of mouse skin tumors: a comparison of SENCAR and CD-1 mice. Environmental Health Perspectives. 68, 69-74 (1986).
- Gómez-Cuadrado, L., Tracey, N., Ma, R., Qian, B., Brunton, V. G. Mouse models of metastasis: progress and prospects. Disease Models & Mechanisms. 10 (9), 1061-1074 (2017).
- Ouhtit, A., Ananthaswamy, H. N. A model for UV-induction of skin cancer. Journal of Biomedicine and Biotechnology. 1 (1), 5-6 (2001).
- Day, C. -P., Marchalik, R., Merlino, G., Michael, H. T. Mouse models of UV-induced melanoma: genetics, pathology, and clinical relevance. Laboratory Investigation. 97 (6), 698-705 (2017).
访问受限。请登录或开始试用以查看此内容。
重印与许可
