我们介绍一种将膜蛋白纯化和重组到肽盘中的过程结合在一起的单步层析方法。利用生物素化支架,通过生物膜层干涉技术直接进行表面固定并测量蛋白质-配体相互作用。
本文内容
摘要
摘要
膜蛋白,包括转运蛋白、通道蛋白和受体蛋白,约占细胞蛋白质组的四分之一,且超过半数为当前药物作用靶点。然而,在学术或工业研究中,对其表征和应用的主要障碍在于,大多数生化、生物物理及药物筛选策略均要求这些蛋白处于水溶性状态。本实验室近期开发了“肽盘”(peptidisc),这是一种模拟膜环境的工具,可普适性地解决膜蛋白溶解性问题。本文介绍一种简化流程,将蛋白纯化与肽盘重组整合为单一色谱步骤。该工作流程称为PeptiQuick,可省去透析及与聚苯乙烯微球孵育等环节,从而显著减少去垢剂暴露、蛋白变性及样品损失。当使用生物素化支架进行PeptiQuick时,所获得的样品可直接固定于链霉亲和素包被的表面,无需对目标膜蛋白进行生物素化或任何修饰。本文以膜受体FhuA与抗菌配体大肠杆菌素M(colicin M)为例,结合生物层干涉技术,展示PeptiQuick在精确测定二者相互作用动力学中的应用。结果表明,PeptiQuick是一种便捷、高效地制备并分析膜蛋白-配体相互作用的方法 在无去污剂环境中放置一天。
引言
由于膜蛋白在脂双层环境之外容易发生聚集,尤其是在存在去污剂的情况下,因此常常被排除在药物或抗体发现研究项目之外1。近年来,为克服这一问题,已开发出多种膜模拟物(称为支架),以实现在完全无去污剂的环境中分离和研究膜蛋白(例如纳米盘、SMALPs、两亲性聚合物等)2,3,4,5,6。然而,将膜蛋白重构到这些模拟物中通常需要大量优化,耗时较长,且常伴随蛋白回收率的降低7,8。为克服这些局限性,我们实验室近期开发出一种“通用型”制剂,称为肽盘(peptidisc)9。肽盘由多个拷贝的4.5 kDa设计型两亲性双螺旋肽结合至目标膜蛋白的疏水表面而形成。在去除去污剂后,肽盘可实现膜蛋白的稳定重构,将内源性脂质和溶解的膜蛋白包裹形成水溶性颗粒。这些稳定的颗粒现可用于多种下游应用。
肽盘法具有多项优势;例如,由于肽盘支架与靶标结合由蛋白质模板自身引导,因此重建过程简单直接9,10。肽的化学计量比也由系统自决,无需添加外源性脂质。肽盘的形成仅需通过简单的去垢剂稀释即可实现,相较于透析或聚苯乙烯微珠吸附等方法具有显著优势,后者常因非特异性表面结合和聚集而导致蛋白得率较低11,12,13。最终形成的肽盘组装体具有高度热稳定性,且在不同缓冲液中或存在二价阳离子(如 Ni2+)时均保持可溶。支架的纯度和结构均一性也较高(例如无内毒素),并且可在肽的不同位置定制功能基团。
本文介绍一种名为PeptiQuick(也称为磁珠上重组)的实验流程9。该方案将膜蛋白纯化与peptidisc重组整合为一步操作,并在同一层析载体上完成。顾名思义,PeptiQuick相较于其他重组方法更为快速,同时显著缩短了蛋白与去垢剂的接触时间。去垢剂的负面影响(如蛋白去折叠和聚集)通常具有时间依赖性,因此最大限度减少去垢剂暴露对于维持蛋白天然构象至关重要14,15。这对于依赖蛋白相互作用及配体结合亲和力检测的实验方法的准确性尤为关键。
在开发本方案的过程中,我们提出了一种新型生物素标记的peptidisc支架,称为Bio-Peptidisc。该支架上的生物素功能基团可使目标膜蛋白固定于链霉亲和素包被的表面。由于生物素标记仅限于支架部分,目标膜蛋白上的结合位点保持不变。利用Bio-Peptidisc ,可测定细菌膜受体FhuA与抗菌肽colicin M(ColM)之间的结合动力学16。该亲和力通过生物膜干涉技术(BLI)进行测量,该技术基于传感器尖端反射的白光干涉图样,实时分析分子间的相互作用。
通过使用本方案,BLI分析过程中无需使用去污剂,这是一个重要的进展,因为去污剂可能破坏分子间的相互作用。该方法能够快速测定结合亲和力,结果与先前使用纳米盘和等温滴定 calorimetry(ITC)所报道的结果相当16。本文展示了PeptiQuick工作流程中的关键步骤并进行了讨论,包括蛋白质制备、去污剂稀释、多肽添加以及重组过程,同时提供了在BLI实验中解决配体与分析物结合问题的建议。采用PeptiQuick工作流程,可在 一天内实现膜蛋白在多肽盘中的捕获及其相互作用的测定。
方案
1. 膜受体FhuA的制备与溶解
- 在大肠杆菌(Escherichia coli)菌株AW740中表达带有His6标签的FhuA。在M9培养基(表1)中于37 °C培养18小时。详细的表达方案参见Mills等人的研究16。
- 通过离心(5,000 × g,10分钟,4 °C)收集细胞,并将其重悬于50 mL Tris-盐-甘油(TSG)缓冲液(表1)中。使用Dounce匀浆器处理重悬的细胞,并在裂解前立即加入苯甲基磺酰氟(PMSF),使其终浓度为1 mM。
注意:PMSF具有毒性和腐蚀性。 - 使用微流化器(15,000 psi,通过三次)或French压榨机(8,000 psi,通过三次)裂解细胞。通过低速离心(5,000 × g,10分钟,4 °C)沉淀未裂解的细胞及其他不溶性物质。
- 将上清液进行超速离心(200,000 × g,40分钟,4 °C),以分离粗制膜组分。弃去上清液,将膜沉淀物用少量TSG缓冲液重悬,并使用玻璃或金属Dounce匀浆器进行匀浆,以确保均匀性。
- 进行Bradford法测定重悬后粗制膜的蛋白浓度。在溶解前,用TSG缓冲液将粗制膜稀释至终浓度为3 mg/mL。
- 加入终浓度为1%(v/v)的去垢剂Triton X-100,在4 °C轻柔振荡孵育1小时,选择性溶解细菌内膜。通过超速离心(200,000 × g,40分钟,4 °C)沉淀不溶性物质(外膜组分)。
- 弃去含有可溶化膜的上清液,将沉淀物用TSG缓冲液重悬至终浓度为3 mg/mL。向重悬的外膜组分中加入终浓度为1%(v/v)的月桂基二甲基氧化胺(LDAO),在4 °C轻柔振荡孵育1小时以进行溶解。
- 进行最后一次离心以沉淀所有不溶性物质(200,000 × g,40分钟,4 °C)。
注:所得上清液含有已溶解的外膜蛋白,包括目标His标签FhuA蛋白。
2. 使用PeptiQuick工作流程纯化和重建FhuA
- 用两倍柱体积的固定化金属亲和层析(IMAC)洗涤缓冲液(表1)预平衡预装镍柱(Ni-NTA柱,树脂体积5 mL)。
- 使用TSG将溶解的外膜中LDAO浓度从1%稀释至0.04%,然后加入咪唑至终浓度为5 mM。
警告:咪唑具有毒性和腐蚀性。 - 将溶解后的外膜蛋白上样至Ni-NTA树脂中,并收集穿流液。将穿流液重新上样至树脂以提高FhuA的树脂结合效率,并收集二次穿流液。
注意:保留20 µL溶解后的样品作为后续十二烷基硫酸钠聚丙烯酰胺凝胶电泳(SDS-PAGE)分析的参照样本。 - 用250 mL IMAC洗涤缓冲液洗涤树脂,并收集前50 mL洗脱液。将洗涤缓冲液排至树脂床高度,关闭层析柱活塞。
- 向柱中加入1 mL浓度为10 mg/mL的浓缩Bio-Peptidisc肽溶液(表1)。随后加入50 mL溶于TSG中浓度为1 mg/mL的稀释Bio-Peptidisc肽溶液,并用玻璃棒搅拌树脂,使珠粒在TSG中充分重悬。
- 完成肽盘(peptidisc)捕获后,静置使树脂沉降,并让过量的1 mg/mL Bio-Peptidisc溶液通过树脂排出。
- 用50 mL TSG洗涤与Ni-NTA结合的肽盘颗粒。使用含600 mM咪唑的TSG IMAC洗脱缓冲液(表1)共15 mL洗脱肽盘颗粒。收集1 mL的组分,并立即向每管中加入10 µL 0.5 M EDTA以螯合渗漏的镍离子。
警告:EDTA为刺激性物质。
3. PeptiQuick 重构的评估
- SDS-PAGE 分析
- 取起始材料、流穿液、洗涤液以及 PeptiQuick 重建产物的洗脱组分各 10 µL,上样至 12% SDS 变性凝胶中,在 60 mA 恒定电流下电泳 30 分钟。
- 用考马斯亮蓝染料对凝胶进行染色,脱色后在扫描仪上成像观察。
- 尺寸排阻色谱(SEC)
- 根据 PeptiQuick 重建产物的 12% SDS-PAGE 分析结果,分离并合并相关组分,并使用 30 kDa 截留分子量的离心浓缩管进行浓缩。
注:在配套视频中,F3–F7 组分被合并并浓缩至 1 mL 以下(SEC 仪器进样环体积)。 - 将约 1 mL 合并后的 IMAC 洗脱组分以 0.25 mL/min 的流速注入 S200(300/10)凝胶过滤柱,使用 TSG 缓冲液洗脱,每管收集 1 mL 组分,并将各组分上样至 12% SDS 凝胶进行电泳,以确定需合并的 SEC 组分并进行浓缩。
注:洗脱的 PeptiQuick 组分也可不经过浓缩直接合并,取部分样品直接上样 SEC 以检测重建质量。这对于可能在离心浓缩过程中易发生聚集的膜蛋白而言是一项重要的对照措施。
- 根据 PeptiQuick 重建产物的 12% SDS-PAGE 分析结果,分离并合并相关组分,并使用 30 kDa 截留分子量的离心浓缩管进行浓缩。
4. 生物层干涉技术
- BLI 实验设置
- 手动设置 96 孔板。
注意:所有孔的最终体积均为 200 µL。 - 在第 1 列 A−E 行中加入 200 µL 动力学缓冲液,使探针尖端达到平衡并形成基线信号。
- 将配体(Bio-Peptidisc 中的 FhuA)用动力学缓冲液稀释至 2.5 µg/mL 的浓度(表 1)。将 200 µL 该稀释液加入第 2 列 A−D 行。
- 仅向 E2(参考传感器)中加入 200 µL 动力学缓冲液。
- 向第 3 列 A−E 行加入 200 µL 动力学缓冲液,以洗去探针尖端上多余的 FhuA。
- 在第 4 列中,对分析物(ColM)进行两倍系列稀释,从 A4 到 D4。起始浓度为 A4 中 28 nM(8*Kd),至 D4 中 3.5 nM(1*Kd)。
- 向 E4 中加入 28 nM ColM,用于测量非特异性结合(所用最高 ColM 浓度)。
- 向第 5 列 A−E 行加入 200 µL 动力学缓冲液。
注意:此处 ColM 将从探针尖端解离,并测量其解离过程。 - 将设置好的板放入 BLI 仪器中。
- 将传感器探针托盘放入 BLI 仪器中。
- 打开 BLI 数据采集软件,在软件向导中选择 新建动力学实验。
- 使用“板定义”选项卡将 96 孔板的布局输入软件中。
注意:含有配体 FhuA 的孔应输入为“加载”(Load);仅含缓冲液的孔应输入为“缓冲液”(Buffer);含有分析物 ColM 的孔应输入为“样品”(Sample)。 - 使用“检测定义”选项卡定义实验中每一步的时间长度和板旋转速度。
注意:实验步骤设置如下:1)基线:60 秒;2)加载:250 秒;3)基线2:300 秒;4)结合:450 秒;5)解离:900 秒。摇动速度保持默认(1,000 rpm)。通过选择所需步骤并在每一列上右键单击 添加检测步骤,将上述步骤分别分配给 96 孔板中的每一列。 - 通过右键单击第一列并选择 开始新检测 来分配第一步。使用右下角窗口确认基线步骤已正确分配,并根据需要使用下拉菜单进行更改。
- 通过沿板右键单击并选择 添加检测步骤,将后续步骤分配给每一列。将这些步骤分配给第 4.1.13 步中设定的相应列。
- 使用“传感器分配”选项卡,确保 Octet 仪器从传感器托盘中的正确位置取用 BLI 探针。
注意:在“传感器分配”选项卡中,仅 A1−E1 应显示为蓝色高亮。确保传感器托盘中这些位置有探针尖端,并确保 F1−H1 为空。 - 在屏幕上高亮 F1−H1,然后右键选择 移除 以标记为空。勾选 使用后将传感器放回托盘 以保留已使用的传感器。
- 在“查看实验”选项卡中(该选项卡提供执行前实验的最终概览),检查实验步骤,确保整个设置正确无误。
- 在“运行实验”选项卡中,选择文件保存位置以保存方法文件。
- 将板温更改为室温。
- 选择 开始 运行实验。
- 手动设置 96 孔板。
- BLI 数据分析
- 打开 Octet BLI 数据分析软件。
- 使用“数据选择”选项卡定位实验并检查实验摘要。从第 4.1.19 步定义的保存位置导入项目文件。
- 通过选择每次实验的传感器信息,输入分析物(此处为 ColM)的浓度。
- 将 E1 中的探针指定为参考探针。
- 使用“处理”选项卡从实验数据中减去参考信号(E1)。检查参考探针的原始数据是否存在分析物的非特异性结合。若未观察到,则继续下一步。
注意:这是一个重要的阴性对照。若观察到非特异性结合,将在第 4.2.7 步中予以校正。 - 将 y 轴对齐至第二个基线步骤。不要勾选“跨步连接”。选择 Savitzky-Golay 滤波。选择 处理数据!。
- 在“分析”选项卡中,选择图表下方表格中的实验数据,查看已减去参考传感器信号的结合与解离曲线。
- 选择 1:1 结合模型并选择部分曲线拟合。选择 拟合曲线!。
- 分析残差图以检查曲线拟合情况。
- 滚动查看表格以查看计算得到的 Kd 值。
- 选择 保存报告… 以保存一份电子表格文档,其中包含实验设置、原始数据和分析数据的图表,以及计算得到的解离常数。
结果
膜受体 FhuA 在实验室 E. coli 菌株中表达。通过离心收集外膜组分,并使用两步去垢剂提取法溶解蛋白质。将溶解的膜蛋白上样至装有 Ni-NTA 琼脂糖珠的塑料层析柱中,随后按照本实验方案所述进行 PeptiQuick 操作流程。通过尺寸排阻色谱法进行质量控制后,将 Bio-Peptidisc 颗粒固定在链霉亲和素包被的针上。利用 BLI 分析检测 FhuA 与 ColM 之间相互作用的动力学。该实验的示意图见图 1。
通过SDS凝胶电泳分析IMAC柱洗脱后FhuA Bio-Peptidisc颗粒的重建质量(图2)。将对应于上样起始、穿流、洗涤及洗脱组分的等分试样上样至SDS凝胶,以评估PeptiQuick方法的成功程度。穿流组分中FhuA的减少与洗脱组分中的富集相对应,表明蛋白质纯化有效。在洗脱组分中观察到少量杂质蛋白条带。通过SDS凝胶分析确定在进行SEC分析前应合并哪些组分。同时对洗脱的FhuA Bio-Peptidisc颗粒进行天然凝胶电泳,以确认FhuA的可溶性(补充图1)。重建蛋白在天然凝胶中的迁移表明该蛋白在无去垢剂环境中具有可溶性。
通过SEC分析来评估peptidisc颗粒的溶解性。图3A所示的色谱图显示了一个在约14 mL处洗脱的单一、对称峰(在凝胶过滤S200 10/300柱上的空体积8.0 mL之后6 mL)。该峰位于空体积之后,证实了FhuA Bio-Peptidisc颗粒的可溶性。作为参考,图3B展示了一种理论上的次优peptidisc制备情况。在此情况下,色谱图显示在空体积处出现一个较大的蛋白质峰,表明存在蛋白质聚集体。在主peptidisc峰之后稍晚洗脱的小峰对应于过量的peptidisc肽。
在将肽盘(peptidiscs)固定到链霉亲和素包被的传感器后,测定 FhuA 与分析物 ColM 的相互作用。首先将传感器尖端在动力学缓冲液中平衡,然后转移至含有 FhuA 生物素化肽盘(Bio-Peptidiscs)的缓冲液中。FhuA 生物素化肽盘的浓度及其与传感器尖端孵育的时间在此实验前已进行优化(补充图 1)。在完成加载和洗涤步骤后,通过将传感器尖端与四种不同浓度的嗜铁素 M(colicin M)接触来测量其结合过程。随后将传感器尖端移回缓冲液,引发解离过程,并通过检测从尖端反射的白光波长偏移来测定该过程。
图4A展示了本实验的原始数据传感图输出结果。在上样和基线阶段,所有曲线均呈现一致,唯独黄色的参考曲线除外。参考探针未负载配体,但会暴露于分析物中,以检测非特异性结合,这是重要的阴性对照。为了对结果进行更详细的分析,需从实验探针的曲线中减去参考探针的信号,以校正非特异性结合的影响。数据已对齐至结合阶段的起始点,以便进行直接的视觉比较,如图4B所示。该比较显示,随着大肠杆菌素M(colicin M)浓度的增加,波长偏移量也随之增加。曲线拟合结果显示符合典型的1:1结合模型。
残差图(图 4B,底部)显示了拟合数据与实验数据之间的差异,其中 ColM 最高浓度(28 nM)的拟合效果相较于三个较低浓度较差。该曲线本身的轮廓缺乏典型结合实验中结合位点饱和所特有的结合曲线平台期。缺乏平台期提示存在非均一性结合,这可能是由于 ColM 浓度过高所致的人为假象。因此,在分析中排除该最高 ColM 浓度的数据,仅使用其余三个浓度来确定解离常数(图4C,D)。双尾学生t检验 t在95%的置信水平下进行的检验发现,本实验测得的解离常数与使用不同技术获得的数值之间无显著差异图4E)16.
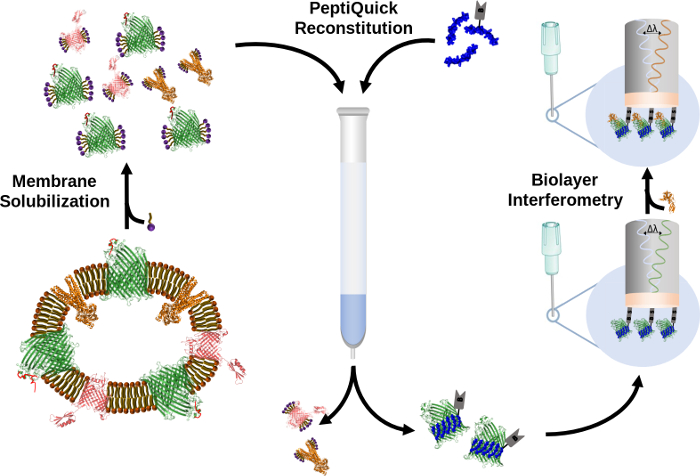
图1:使用 Bio-Peptidisc 和BLI分析进行PeptiQuick工作流程的概览。 请点击此处查看本图的放大版本。
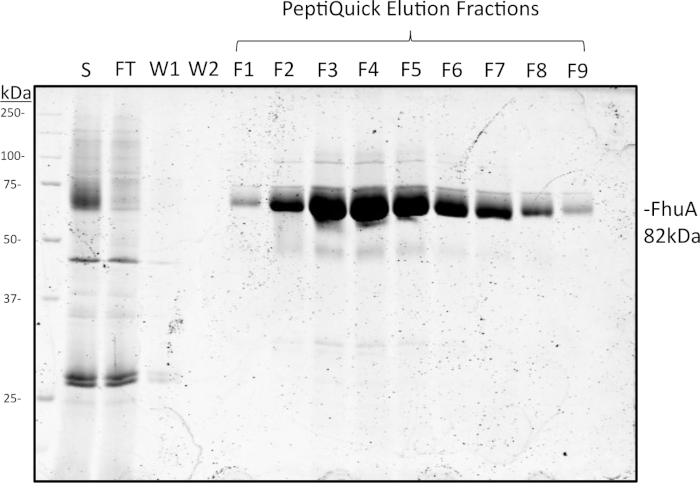
图 2:通过 PeptiQuick 操作流程收集的起始样品、穿流组分、洗涤组分和洗脱组分的 SDS 凝胶分析(12%)。每个泳道上样约 10 µL,在恒定电流 60 mA 条件下电泳 30 分钟。凝胶经考马斯亮蓝染色、脱色后,使用凝胶成像系统进行观察。请点击此处查看该图的放大版本。
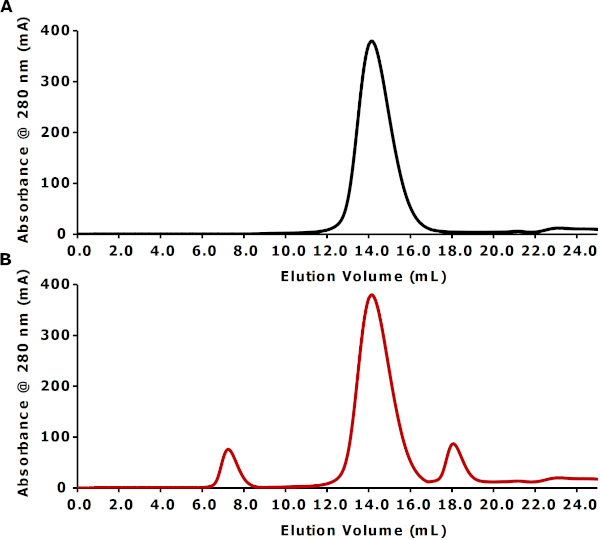
图3:分别代表最佳与次优重建效果的实验与理论SEC谱图。(A)在Bio-Peptidiscs中通过PeptiQuick重建的FhuA(~82 kDa)的实验SEC谱图。IMAC洗脱组分F3−F7被合并,并使用截留分子量为30 kDa的离心浓缩器浓缩至约1 mL。将浓缩后的样品以0.25 mL/min的流速注入TSG缓冲液中的S200(10/300)凝胶过滤柱。(B)次优PeptiQuick重建的理论SEC谱图。请点击此处查看该图的放大版本。

图4:利用生物肽盘重建FhuA研究ColM与FhuA的相互作用。 (A)原始数据传感图,参考传感器信号以黄色显示。B,C)上图:部分1:1结合曲线拟合的结合与解离步骤。下图:残差图,显示实验数据与计算拟合之间的差异。C) 重新绘制 (B)但排除 ColM 的最高浓度。D) 观察到的结合与解离速率(k在 和 k关闭,分别)和解离常数(Kd). (E) 肽盘法与BLI(本实验)、肽盘法与微尺度热泳法(Saville,未发表数据)以及纳米盘法与等温滴定 calorimetry 测得的 FhuA-ColM 解离常数比较16误差线表示一个标准差的不确定性,n.s. 表示在 95% 置信水平下无显著差异。 请点击此处以查看此图的放大版本。
| M9 培养基(每升) |
| 200 mL M9 盐溶液 |
| 800 mL dH2O |
| 10 mL 40% 葡萄糖 |
| 80 µL 1 M CaCl2 |
| 2.5 mL 1 M MgSO4 |
| 300 µL 15 mg/mL 硫胺素 |
| TSG 缓冲液 |
| 50 mM Tris-HCl, pH 7.8 |
| 50 mM NaCl |
| 10% 甘油 |
| IMAC 洗涤缓冲液 |
| 50 mM Tris-HCl, pH 7.8 |
| 50 mM NaCl |
| 10% 甘油 |
| 0.04% LDAO |
| 5 mM 咪唑 |
| Bio-Peptidisc 溶液 |
| 将即用型 Bio-Peptidisc(纯度 >95%)溶解于无菌 dH2O 中。肽溶液的浓度和体积取决于重组过程中的具体步骤。 |
| 50 mM Tris-HCl, pH 7.8 |
| 50 mM NaCl |
| 注意:该 Bio-Peptidisc 肽原液在 4 °C 下可稳定保存一个月以上。 |
| IMAC 洗脱缓冲液 |
| 50 mM Tris-HCl, pH 7.8 |
| 50 mM NaCl |
| 10% 甘油 |
| 600 mM 咪唑 |
| 动力学缓冲液 |
| 50 mM Tris-HCl, pH 7.8 |
| 50 mM NaCl |
| 0.002% Tween-20 |
| 0.1% BSA |
表1:培养基与溶液配制配方。
补充图1:PeptiQuick实验流程洗脱组分的4%–16%透明天然凝胶分析。 每个泳道上样约10 µL,于30 mA恒定电流下电泳40分钟。凝胶经考马斯亮蓝染色、脱色后,使用扫描仪成像。请点击此处下载该图。
补充图2:使用单个探针进行配体浓度优化。(A)在Bio-Peptidisc中测试的六种不同浓度的FhuA,用于与单个链霉亲和素包被的探针结合。实验在96孔板中进行,配体浓度之间的孔中加入缓冲液(实验设置方案详见补充文件1)。(B)配体优化实验的原始数据传感图。该探针在第4个浓度(即2.5 µg/mL)时产生最大响应信号,并达到饱和状态。请点击此处下载该图。
补充文件 1。 请点击此处查看该文件(右键单击以下载)。
讨论
尽管去垢剂仍是提取和纯化膜蛋白最简单的方法,但这些表面活性剂可能对蛋白质的稳定性、功能及后续分析产生诸多不良影响1,2,3,4,5,6,7,8,9。这些困难推动了膜模拟体系的发展,旨在尽可能减少去垢剂的使用,并最大程度地模拟天然膜环境2,3,4,5,6。然而,大多数重建方法都需要 对重建条件进行大量优化,且通常需要 额外的纯化步骤,从而降低最终产率7,8。肽盘(peptidisc)能够自发适应目标膜蛋白,相对而言,所需优化工作较少,且后续纯化步骤简单9,10。在本方案中,PeptiQuick 被提出作为一种简便方法,用于简化膜蛋白重建流程,以利于后续的蛋白质-蛋白质相互作用分析。
尽管该方法较为直接,但仍有一些实验注意事项可能导致重组失败。其中最常见的问题是蛋白质聚集。因此,进行尺寸排阻色谱以监测重组过程至关重要。例如,尺寸排阻色谱中在空体积处洗脱的峰提示存在蛋白质聚集体(图3B)17,18。膜蛋白聚集体通常在重组前长期暴露于非最优去垢剂条件下形成。特别是已发现,使用离心式超滤装置通过超滤浓缩去垢剂中的膜蛋白时,容易导致聚集。在此情况下,可采用真空超滤法对敏感的膜蛋白进行浓缩,该方法更为温和且浓度更均匀,因为蛋白质在滤膜上的吸附显著减少。
通常,为避免蛋白质浓度过高,应合并洗脱的IMAC组分,并取部分样品注入尺寸排阻色谱柱,以检测其重组质量。需要注意的是,未结合的游离肽在主要peptidisc峰之后立即洗脱(图3B)。游离支架蛋白不一定会影响后续实验。然而,如有需要,可通过尺寸排阻色谱法去除该过量成分。另一种方法是,在重组过程中、从IMAC树脂洗脱前增加洗涤体积,即可有效去除大部分游离的peptidisc肽。因此,建议将尺寸排阻色谱法作为一种快速简便的方法用于评估重组质量。
BLI 实验需要仔细优化配体和分析物的浓度。配体结合必须足够以获得清晰的信号,但过量会导致信号饱和,从而在探针表面因过度拥挤和空间位阻而产生数据伪影。因此,必须针对每种蛋白质样品优化配体浓度以及探针在配体溶液中的孵育时间(补充图 2)。分析物浓度也需要优化。如果已知解离常数,此步骤将更容易,因为可以估算浓度范围。进行该分析的一个良好起点是使用蛋白质浓度在预期 Kd 的 0.1 至 20 倍之间19。
完成BLI数据采集后,必须仔细进行数据分析,以避免误读结果。解离常数的计算依赖于结合曲线的拟合。除非已知结合化学计量比,否则初始拟合应采用经典的1:1双分子相互作用模型。需要注意的是,异质性结合曲线通常是由分析物浓度过高引起的伪影或非理想行为所致,可能被误判为复杂的结合模型。因此,降低分析物浓度直至传感器图谱显示1:1结合化学计量比,有助于区分异质性结合与更复杂的相互作用。任何残余的异质性结合数据均应予以排除,如图420所示。
本报告中,FhuA与ColM相互作用的解离常数为2.28 ± 0.74 nM 进行测量。该值与我们研究组先前分别使用等温滴定量热法(ITC)或微量热泳动法(MST)在纳米盘或肽盘体系中测定的解离常数一致(图 4E)16这种一致性增强了人们对使用peptidisc重建和BLI分析来确定相互作用动力学的信心。需要特别注意的是,蛋白质通常通过生物素化学交联或利用特定位点添加的方式固定在链霉亲和素生物传感器上 E. coli 生物素连接酶 BirA21显然,对肽碟(peptidisc)支架进行生物素标记而非对目标膜蛋白进行标记具有诸多优势。支架的生物素化可节省时间,并最大限度地减少对重要蛋白结合位点造成干扰的可能性。我们还发现,PeptiQuick 方法适用于多种类型的靶蛋白,包括G蛋白偶联受体(GPCRs)、离子通道以及β-桶状膜蛋白。总体而言,需注意膜蛋白从初始去垢剂提取到无聚集体状态的过程至关重要,而立即在肽碟中进行重组可有效减少后续的蛋白聚集问题。鉴于该方法的简便性,预计 PeptiQuick 将可拓展应用于其他基于链霉亲和素的结合检测技术,例如表面等离子共振(SPR)、ELISA 检测以及利用链霉亲和素磁珠的亲和 pull-down 实验。
披露
FD 是 Peptidisc Biotech 的创始人,该公司致力于向学术界分发 peptidisc 肽类产品。Peptidisc Biotech 还与工业生物技术和制药公司合作,将 peptidisc 技术应用于其药物发现工作流程中。本文的开放获取出版由 FortéBio 赞助。
致谢
感谢加拿大自然科学与工程研究理事会。JS 获得了加拿大卫生研究院的 CGS-M 奖学金。LT 受南西部生物科学博士培训合作项目资助,该项目由生物技术和生物科学研究理事会资助 [培训资助编号 BB/M009122/1]。FD 担任加拿大研究主席二级讲席。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 30 kDa 截留分子量离心浓缩管 | Millipore Sigma | C7715 | - |
| 氨苄青霉素 | BioShop | 69-52-3 | 钠盐 |
| Bio-Peptidisc 肽 | Peptidisc Biotech | https://peptidisc.com | - |
| 牛血清白蛋白(BSA) | Sigma | 9048-46-8 | 冻干粉末 |
| CaCl2 | Fisher Chemical | 10035-04-8 | 符合 ACS 认证标准 |
| EDTA | BioShop | 6381-92-6 | 生物技术级 |
| Ettan LC (AKTA) | Amersham Pharmacia Biotech | 18-1145-58 | - |
| 葡萄糖 | BioShop | 50-99-7 | 无水,试剂级 |
| 甘油 | Fisher Chemical | 56-81-5 | 符合 ACS 认证标准 |
| 咪唑 | BioShop | 288-32-4 | 生物技术级 |
| 十二烷基二甲基氧化胺(LDAO) | Sigma | 101822204 | ~30% 水溶液(H2O) |
| MgSO4 | Fisher Chemical | 10034-99-8 | 符合 ACS 认证标准 |
| 微流化器 | Microfluidics | M-110L | 配备 F20Y 75µ 破碎腔 |
| Ni-NTA 树脂 | Gold Biotechnology | H-320-50 | - |
| 非结合型 96 孔 BLI 板 | Greiner Bio-one | 655076 | 微孔板,聚苯乙烯材质,96 孔,F 型底(烟囱型孔),黑色,Fluotrac,中等结合力 |
| Octet Red96 | FortéBio | OCTET RED96E-GxP | Octet RED96e 仪器、Octet CFR 软件、台式计算机、LC 显示器、配件套件、IQ/OQ 套件、PQ 套件及一年保修服务 |
| 苯甲基磺酰氟(PMSF) | Sigma | P-7626 | - |
| 蛋白检测试剂染料—浓缩液 | Bio-Rad | 5000006 | 用于 Bradford 法测定蛋白质浓度,5 倍浓缩液 |
| 氯化钠(NaCl) | BioShop | 7647-14-5 | 生物技术级 |
| 链霉亲和素(SA)生物传感器 | ForteBio | 18-5019 | 一盘 96 个链霉亲和素包被的生物传感器,用于定量、筛选或动力学分析 |
| Superdex S200 (300/10) | Amersham Pharmacia Biotech | 175175-01 | - |
| 硫胺素 | Merck | 69271 | - |
| Tris-HCl | BioShop | 77-86-1 | 试剂级 |
| Triton X-100 | BioShop | 900998-1 | 生物技术级 |
| Tween-20 | BioShop | 56-40-6 | 试剂级 |
| 超速离心机 | Beckman Coulter | 365668 | - |
参考文献
- Rawlings, A. E. Membrane proteins: always an insoluble problem. Biochemical Society Transactions. 44 (3), 790-795 (2016).
- Popot, J. L. Amphipols, Nanodiscs, and Fluorinated Surfactants: Three Non Conventional Approaches to Studying Membrane Proteins in Aqueous Solutions. Annual Review of Biochemistry. 79, 737-775 (2010).
- Lee, S. C., et al. A Method for Detergent-Free Isolation of Membrane Proteins in their Local Lipid Environment. Nature Protocols. 11, 1149-1162 (2016).
- Frauenfeld, J., et al. A Saposin-Lipoprotein Nanoparticle System for Membrane Proteins. Nature Methods. 13, 345-351 (2016).
- Bayburt, T. H., Grinkova, Y. V., Sligar, S. G. Assembly of Single Bacteriorhodopsin Trimers in Bilayer Nanodiscs. Archives of Biochemistry and Biophysics. 450, 215-222 (2006).
- Denisov, I. G., Grinkova, Y. V., Lazarides, A. A., Sligar, S. G. Directed Self-Assembly of Monodisperse Phospholipid Bilayer Nanodiscs with Controlled Size. Journal of the American Chemical Society. 126, 3477-3487 (2004).
- Denisov, I. G., Sligar, S. G. Nanodiscs for Structural and Functional Studies of Membrane Proteins. Nature Structural, Molecular Biology. 23, 481-486 (2016).
- Hagn, F., Etzkorn, M., Raschle, T., Wagner, G. Optimized Phospholipid Bilayer Nanodiscs Facilitate High-Resolution Structure Determination of Membrane Proteins. Journal of the American Chemical Society. 135, 1919-1925 (2013).
- Carlson, M. L., et al. The Peptidisc, A Simple Method for Stabilizing Membrane Proteins in Detergent-Free Solution. eLife. 7, 34085(2018).
- Carlson, M. L., et al. Profiling the E. coli Membrane Interactome Captured in Peptidisc Libraries. eLife. 8, 46615(2019).
- Serdakowski, A., et al. A novel method to determine residual detergent in biological samples post endotoxin reduction treatment and evaluation of strategies for subsequent detergent removal. International Immunopharmacology. 37, 16-22 (2016).
- Smith, S. M. Strategies for the Purification of Membrane Proteins. Protein Chromatography. 681, 485-496 (2011).
- Lin, S. H., Guidotti, G. Purification of Membrane Proteins. Methods in Enzymology. 463, 619-629 (2009).
- Wolfe, A. J., Gugel, J. F., Chen, M., Movileanu, L. Kinetics of Membrane Protein-Detergent Interactions Depend on Protein Electrostatics. Journal of Physical Chemistry B. 122 (41), 9471-9481 (2018).
- Montigny, C., et al. Slow Phospholipid Exchange between a Detergent-Solubilized Membrane Protein and Lipid-Detergent Mixed Micelles: Brominated Phospholipids as Tools to Follow Its Kinetics. PLoS ONE. 12 (1), 0170481(2017).
- Mills, A. T., Le H, T., Coulton, J. W., Duong, F. FhuA Interactions in a Detergent-Free Nanodisc Environment. Biochimica et Biophysica Acta - Biomembranes. 1838 (1), 364-371 (2014).
- Hong, P., Koza, S., Bouvier, E. S. P. Size-Exclusion Chromatography for the Analysis of Protein Biotherapeutics and their Aggregates. Journal of Liquid Chromatography Related Technologies. 35 (20), 2923-2950 (2012).
- Mahler, H. C., Friess, W., Grauschopf, U., Kiese, S. Protein aggregation: Pathways, induction factors and analysis. Journal of Pharmaceutical Sciences. 98 (9), 2909-2934 (2009).
- FortéBio. Octet System Data Acquisition User Guide, Release 7.1. . , Available from: http://www.biophysics.bioc.cam.ac.uk/wp-content/uploads/2014/01/Data-Acquisition-Octet.pdf (2014).
- FortéBio. Octet System Data Analysis User Guide, Release 7.1. . , Available from: http://www.biophysics.bioc.cam.ac.uk/wp-content/uploads/2011/02/Data-Analysis-Octet.pdf (2011).
- Trinkle-Mulcahy, L. Recent advances in proximity-based labeling methods for interactome mapping. F1000Research. 8, 135(2019).
重印与许可
