本方案描述了一种高效的电穿孔方法,可用于将较大质粒(最大达10 kB)转染至四种不同的胃肠道类器官实体。该方法可在一天内完成,无需 extensive 准备或特殊且成本较高的电穿孔缓冲液。
本文内容
摘要
摘要
电穿孔是一种通过电穿孔使细胞质膜通透化,从而实现多种分子转染的常用方法。近年来,类器官作为原代患者组织培养方法的应用日益广泛,因此迫切需要在这一三维培养体系中实现高效的遗传工程组分导入方法。对于类器官而言,基因操作的效率取决于转染是否成功。因此,本方案旨在促进类器官的电穿孔操作,并验证其在不同类器官体系中的通用功能。本研究成功对人结直肠癌、胰腺癌、肝癌和胃癌类器官进行了小质粒和大质粒的电穿孔转染。基于编码绿色荧光蛋白(GFP)的载体,通过流式细胞术(FACS)测定转染效率。该方法无需对细胞进行复杂预处理,也无需使用特殊且昂贵的电穿孔缓冲液,整个实验可在一天内完成。
引言
近年来,一种称为类器官(organoids)的新型三维细胞培养系统已被开发用于多种正常组织和癌组织。类器官在功能和形态上均与其来源组织高度相似。它们可来源于不同物种,易于扩增,基因组稳定且可进行遗传修饰,因此成为遗传学研究的理想模型系统1,2,3。利用CRISPR(成簇规律间隔短回文重复序列)/Cas9等基因工程技术可实现多种遗传操作。克隆筛选可通过特定的培养基条件实现,例如通过撤除WNT配体来筛选APC(结肠腺瘤性息肉病基因)敲除克隆4,5。或者,也可通过靶向载体的同源定向修复引入筛选标记6,7。由于通常需要导入多个质粒,高效的转染成为关键参数。此外,为了减少非特异性的脱靶效应,理想的策略是实现Cas9核酸酶的瞬时表达8。
电穿孔是一种相对简单的方法,可用于将DNA、RNA、蛋白质或其他大分子转染到细胞中。通过施加电脉冲,细胞膜的通透性增加,从而促进大分子的摄取9。在先前发表的结肠类器官电穿孔方案中,使用piggyBac介导表达GFP(绿色荧光蛋白)的质粒(7.4 kB),在四天的实验流程中实现了30%的转染效率10。本方案旨在实现对癌性或正常胃肠道类器官高效转染,尤其适用于携带单导向RNA(sgRNA)和Cas9内切酶序列的大质粒(例如9.3 kb的px458载体)。整个电穿孔过程可在一天内完成,无需特殊电穿孔缓冲液,并且在不同类型的胃肠道类器官中均能达到至少相当的转染效率,包括胰腺导管腺癌(PDAC)、结直肠癌(CRC)、胆管癌(CCC)和胃癌(GC)类器官。
方案
伦理批准由德累斯顿工业大学伦理委员会(#EK451122014)批准获得。
1. 电穿孔前类器官培养与准备
- 按照先前所述方法通过组织消化建立类器官,并在基底膜基质中使用相应的类器官特异性培养基进行扩增(概述见表1和材料表)11,12,13,14,15,16,17。
注意:使用人体组织样本需获得知情同意,并经伦理委员会批准研究方案。 - 将48孔板预热至37 °C,用于电转染后接种。
- 准备不含抗生素的基础培养基以及不含抗生素的类器官特异性培养基(见表1),其中包含10 µM Y-27632和3 µM CHIR99021。
注意:去除抗生素有助于减少毒性作用;Y-27632和CHIR99021可改善细胞复苏10。 - 类器官的制备(见图1)
- 每份电转染样品在48孔板中培养5个孔的类器官,使用类器官培养基。
注意:应使用处于增殖状态的类器官(通常为上次传代后约2-3天)。 - 每孔准备含10 µM Y-27632的消化试剂230 µL(见材料表)。
- 吸除各孔中的培养基,用230 µL预配的消化液对类器官进行机械解离。将每份电转染样品对应的5个孔合并至一个15 mL离心管中。
- 涡旋混匀,于37 °C孵育5-15分钟,直至形成含10-15个细胞的细胞团。期间需在显微镜下观察解离情况。加入不含抗生素的基础培养基至10 mL以终止消化。
注意:此步骤极为关键!孵育时间过短会降低电转染效率,而过度消化则会降低细胞存活率。 - 室温下以450 × g离心5分钟,弃上清,用4 mL电转染缓冲液(见材料表)洗涤两次。
- 每份电转染样品在48孔板中培养5个孔的类器官,使用类器官培养基。
2. 电穿孔
注意:以下方案适用于能够产生方波以及独立的穿孔脉冲和转移脉冲序列的电穿孔仪(参见图2)。可选地,可测量阻抗值以及传递到样品中的电压、电流和能量,以作为实验可重复性的对照。
- 将类器官沉淀重悬于含有 30 µg 质粒 DNA 的 100 µL 电穿孔缓冲液中(参见材料表)。
注意:所用质粒 DNA 的浓度应超过 5 µg/µL,以确保电穿孔过程中最佳的盐浓度。因此,建议使用无内毒素大提质粒试剂盒(参见材料表)制备载体。最多可使用 45 µg DNA,且不会产生细胞毒性效应。 - 将全部 DNA-类器官混合液转移至间隙宽度为 2 mm 的电穿孔比色皿中,避免产生气泡。
- 根据 Fujii 等人10 设置电穿孔参数(参见表 2、图 2)。
- 用手指轻弹比色皿,轻微混匀细胞,避免起泡。将比色皿放入比色皿室中。
- 按下电穿孔仪的 Ω 按钮,并记录阻抗值。
注意:阻抗在 30–40 Ω 范围内时结果最佳,通常应保持在 30–55 Ω 之间。若不在该范围,请检查以下方面:所用比色皿的间隙宽度、电穿孔仪的电缆连接、是否存在气泡、电穿孔混合液体积是否正确以及盐浓度是否合适。 - 按下开始按钮执行电穿孔程序,并监控显示的电流、电压和能量数值。
注意:测得的电压、电流和能量值应与设定的电穿孔参数一致。为便于重复实验之间的比较,建议记录这些数据。 - 电穿孔后,立即加入 500 µL 不含抗生素的培养基(含 CHIR99021 和 Y-27632;参见步骤 1.3),通过上下吹打混匀,以解离白色泡沫。
注意:电穿孔后会出现白色泡沫,大量细胞会附着其上,因此充分解离泡沫对防止细胞损失至关重要。 - 使用配套电穿孔比色皿的移液器将样品完全从比色皿转移至新的 15 mL 离心管中(参见材料表)。建议用基础培养基再次冲洗比色皿,以回收残留细胞。
- 为促进细胞恢复,于室温下孵育 40 分钟。
3. 细胞接种
- 在室温下以 450 × g 离心 5 分钟,弃去上清液。
- 将沉淀重悬于 100 µL 基底膜基质中,并在预热的 48 孔板中接种 20 µL 液滴(参见步骤 1.2)。于 37 °C 培育 10 分钟以促进凝胶聚合,随后加入 250 µL 培养基,培养基中需添加 Y-27632 和 CHIR99021,直至类器官下次传代(约 5–7 天)。
4. 转染效率的测定
注意:通常建议电穿孔一个携带荧光标记的载体,作为额外的转染对照。根据所选标记及其发色团成熟情况,转染后约 24–48 小时内可观察到荧光18。
- 转染对照组在转染后24-48小时,通过荧光显微镜观察荧光表达情况(见图4B)。
- 荧光激活细胞扫描(FACS)
- 参照步骤1.4.2-1.4.4的方法收获细胞,消化约10-20分钟,直至获得单细胞悬液。加入最多10 mL磷酸盐缓冲液(PBS)。
- 室温下以450 × g 离心5分钟,弃去上清液。
- 如需区分活细胞:将细胞沉淀重悬于1 mL磷酸盐缓冲液(PBS)中,并加入适当的抗体(见材料表)或碘化丙啶(PI)。仅通过轻弹管壁充分混匀,避光室温孵育30分钟。用10 mL PBS洗涤,离心后弃去上清液。
- 将细胞沉淀重悬于200 µL PBS中,必要时通过100 µm细胞筛网过滤至FACS管中。
- 使用FACS仪器,采用适当的设门策略(见图3;图4A)分析细胞,并测定转染效率。
结果
四种不同癌症类型的类器官(CRC、CCC、PDAC、GC)至少进行了3次电穿孔处理 30 µg 一种小质粒(pCMV-EGFP,4.2 kb)或一种大质粒(px458,9.3 kb)的转染效率。两种载体均携带GFP表达盒,可在电穿孔后48小时通过流式细胞术测定转染效率。为仅分析活细胞,在检测前使用活死细胞抗体进行染色。门控策略如图所示 图3.
在全部四种类器官中,4.2 kB大小的质粒转染效率均高于较大的质粒(见图4)。其中,胰腺导管腺癌(PDAC)类器官对小质粒的转染效率最高,GFP阳性细胞比例达92.1 ± 5.2 %,而大质粒的转染效率为46.7 ± 3.7 %(均值 ± 标准差,n = 3)。与胰腺癌类器官相比,大质粒在结直肠癌(CRC)类器官中的转染效率更高,平均效率为53.4 ± 11.7 %,而小质粒的平均转染效率为84.3 ± 5.8 %。胃癌类器官是最难转染的类型:无论大质粒还是小质粒,其转染效率在此类器官中均为最低,分别为32.3 ± 12.7 %和74.1 ± 5.5 %。胆管癌(CCC)类器官中小质粒的平均转染效率为83.0 ± 13.1 %,大质粒的转染效率为39.5 ± 10.4 %。
作为概念验证,将编码 Cas9、GFP 和两条靶向TP53的 sgRNA 的 px458_Conc2 质粒通过电穿孔法导入人正常胃类器官。Cas9 在第 8 外显子上诱导的双链断裂通过非同源末端连接(NHEJ)方式进行修复,导致移码突变,从而实现基因敲除(见补充图 1)。
表1:基础培养基、消化混合液和培养基的组成。 请点击此处查看该文件(右键点击可下载)。

表 2:根据 Fujii 等人10 的电穿孔设置。

图1:电穿孔准备流程。 首先,类器官应解离为包含10–15个细胞的细胞团,并去除抗生素。电穿孔后,需将产生的白色泡沫解离。细胞在室温下恢复40分钟后即可接种。 请点击此处查看该图的放大版本。

图 2:两步电穿孔。 两个成孔脉冲具有较高电压和短持续时间(分别为175 V和157.5 V,各持续5 ms,间隔50 ms,电压衰减10%),可诱导细胞膜形成孔道。随后的转移脉冲将DNA导入细胞:五个正向转移脉冲(分别为20 V、12 V、7.2 V、4.32 V和2.592 V,各持续50 ms,间隔50 ms,电压衰减40%),接着是五个极性反转的转移脉冲(分别为20 V、12 V、7.2 V、4.32 V和2.592 V,各持续50 ms,间隔50 ms,电压衰减40%)。 请点击此处查看该图的放大版本。

图 3:CCC 类器官展示的代表性设门策略。 所有电穿孔后的类器官均在电穿孔后 48 小时进行流式细胞术分析。未使用质粒 DNA 进行电穿孔的细胞作为阴性对照。设门方式如下:(A)根据细胞形态设门,(B、C)单细胞设门(排除双联体),(D)活细胞设门(使用凋亡细胞抗体染色),以及(E、F)最后对 eGFP 表达细胞设门(FITC 通道)。FSC = 前向散射;SSC = 侧向散射。请点击此处查看该图的放大版本。

图4:四种类器官的电穿孔转染效率。(A)流式细胞术分析(n = 34,显示平均值±标准差及每个单独数值);(B)荧光显微镜下的直观比较。比例尺 = 1,000 µm。BF = 明场;CCC = 胆管癌;CRC = 结直肠癌;GC = 胃癌;PDAC = 胰腺导管腺癌。请点击此处查看该图的放大版本。

补充图1:利用CRISPR/Cas9技术在正常人胃类器官中敲除TP53基因的示例。px458_Conc2载体(见材料表)通过将2个gRNA串联载体(由Bon-Kyoung Koo慷慨提供19)与px45820连接构建而成,最终获得的质粒可编码2个sgRNA、Cas9蛋白和GFP。通过Golden Gate克隆方法(参照Andersson-Rolf等人的方法19),将两个靶向TP53基因的sgRNA插入px458_Conc2载体中。将10 µg质粒DNA通过电穿孔法转入正常人胃类器官中(A)。通过Nutlin3处理筛选克隆(B),并利用TOPO TA克隆及等位基因测序验证TP53基因的敲除效果,此处展示其中一个克隆的结果(C)。参考序列中sgRNA靶序列以下划线标出。比例尺 = 200 µm。BF = 明场。 请点击此处查看该图的放大版本。
讨论
本方案提供了针对不同类器官实体进行电穿孔的详细操作说明,该方法高效、快速且易于实施。除本文所述的胰腺导管腺癌(PDAC)、结直肠癌(CRC)、胆管癌(CCC)和胃癌(GC)肿瘤类器官外,该方法同样适用于来源于健康组织的类器官。本方案可在一天内完成。已发表的类器官转染方案中,整个流程通常持续四天,包括使用多种培养基进行为期两天的准备工作10,21。而在本方案中,无需特殊的预处理步骤。通过在电穿孔前使用电穿孔缓冲液洗涤,可去除培养基中的抗生素成分,并调节盐浓度以达到最佳阻抗值。然而,为确保电穿孔成功,仍需注意以下几个关键因素:
细胞
根据Fujii等人10的电穿孔实验方案,建议将类器官解离为单细胞,并通过20 µm细胞筛进行过滤。然而在我们的实验中,将类器官完全解离为单细胞会显著降低细胞存活率。正如Merenda等人21所建议的,我们将类器官解离为包含10–15个细胞的细胞团,在电穿孔效率方面未观察到与单细胞解离相比的明显下降。电穿孔后,一个非常关键的步骤是充分吹散产生的白色泡沫,以避免细胞团块附着而导致细胞损失。
对于二维细胞培养,已有研究表明,电穿孔后超过10分钟至最多40分钟的恢复时间可提高细胞存活率和转染效率,尤其是对于大片段质粒22。在预实验中,类器官也观察到了相同现象,因此本实验方案中在电穿孔后设置了40分钟的孵育步骤。为了增强类器官在电穿孔后的恢复能力,我们使用Rho相关蛋白激酶(ROCK)抑制剂Y-27632培养5至7天23。同样,额外添加糖原合成酶激酶3(GSK3)抑制剂CHIR99021旨在帮助单个细胞恢复10。
设置
所用电穿孔仪的一个优点是可在电穿孔前测量阻抗,以获得最佳条件。根据制造商说明,阻抗值应在 30–55 Ω 范围内。在我们的实验中,30–40 Ω 的阻抗值表现出最佳的转染效率。在初步实验中,我们通过调整穿孔脉冲的不同电压和脉冲时长,以寻找效率与细胞存活率之间的最佳比例。综上所述,我们能够验证 Fujii 等人10所描述的数值在本文所述的各种条件下均适用。
DNA
不同DNA用量的效果在预实验中进行了测试,每份样品最高使用45 µg DNA。未检测到细胞毒性作用。转染效率随剂量增加而提高,并呈现饱和趋势 > 30 µg。因此,在最终方案中我们每份样品使用30 µg,但当然也可以根据需要增加(例如,同时电穿孔转染多个质粒)。此外,DNA的纯度和浓度似乎非常重要。浓度超过5 µg/µL时,转染效率最佳。
正如预期,9.3 kB 质粒的转染效率低于较小的 4.2 kB 质粒(见图 4)。使用大于 10 kB 的质粒预计会进一步降低转染效率。在未来的应用中,测试迷你环状 DNA 作为载体可能具有意义,因为这类基因载体不含质粒的细菌骨架,因而体积更小24,这应能提高转染效率。此外,对于类器官的 CRISPR 基因编辑操作,可将与 Cas9 蛋白结合形成的单导向 RNA(sgRNA)以核糖核蛋白(RNP)复合物的形式直接进行电穿孔,这可能是一种替代或补充方法25。
披露
作者无任何利益冲突需要披露。
致谢
感谢 Juliane Fohgrub、Ann-Christin Meinecke 和 Max Heiduk 提供出色的技术支持。本研究由德国癌症援助基金会(Deutsche Krebshilfe,编号 111350 和 70112925)、Sander 基金会(编号 2014.104.1)、Hector 基金会(编号 M65.2)以及欧洲联盟(欧洲研究委员会 ERC 编号 639050)提供资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 建立与培养基 | |||
| [Leu15] Gastrin | Sigma-Aldrich | G9145 | |
| A83-01 | Tocris Bioscience | 2939 | |
| Advanced DMEM/F-12 | Invitrogen | 12634010 | |
| B27 | Invitrogen | 17504044 | |
| B27 Supplement, minus vitamin A | Thermo Fisher Scientific | 12587010 | |
| CHIR99021 | Stemgent | 04-0004 | |
| Collagenase II | Life Technologies | 17101-015 | |
| Collagenase XI | Sigma-Aldrich | C9407-100MG | |
| Collagenase D | Roche | 11088866001 | |
| Dispase II | Roche | 4942078001 | |
| Dnase I | Sigma-Aldrich | D5319 | |
| D-sorbitol | Roth | 6213.1 | |
| Dithiothreitol | Thermo Scientific | 1859330 | |
| EDTA | Roth | 8040 | |
| Forskolin | Tocris Bioscience | 1099 | |
| Glutamax | Life Technologies | 35050061 | |
| Hepes | Thermo Fisher Scientific | 15630106 | |
| hFGF-10 | Preprotech | 100-26 | |
| KCl | Sigma-Aldrich | P9541 | |
| KH2PO4 | Roth | 3904.2 | |
| Matrigel | Corning | 356231 | 基底膜基质 |
| mEGF | Invitrogen | PMG8043 | |
| N2 | Invitrogen | 17502048 | |
| NaCl | Roth | 3957.1 | |
| Na2HPO4 | Roth | K300.2 | |
| N-Acetyl-L-Cystein | Sigma-Aldrich | A9165 | |
| Nicotinamid | Sigma-Aldrich | N0636 | |
| Noggin | n.a. | n.a. | 由HEK293细胞产生的条件培养基(Hek293-mNoggin-Fc) |
| PBS | Gibco | 14190169 | |
| Penicillin Streptomycin | Life Technologies | 15140122 | |
| Primocin | InvivoGen | ant-pm-1 | |
| Prostaglandin E2 | Tocris Bioscience | 2296 | |
| Recombinant Human HGF | Preprotech | 100-39H | |
| Rspondin | n.a. | n.a. | 由HEK293细胞产生的条件培养基(HA-Rspo1-Fc-293T) |
| SB202190 | Sigma-Aldrich | S7067 | |
| Sucrose | VWR | 27,480,294 | |
| TrypLE Express | Gibco | 12604021 | 解离试剂 |
| Wnt3A | n.a. | n.a. | 由L-Wnt3a细胞产生的条件培养基(来自Sylvia Boj) |
| Y-27632 | Sigma-Aldrich | Y0503 | |
| 耗材 | |||
| Cell Strainer 100 µm | Falcon | 352360 | |
| 48孔板 | Corning | 3548 | |
| Nepa Electroporation Cuvettes 2mm gap w/pipettes | Nepa Gene Co., Ltd. | EC-002S | |
| 15 ml离心管 | Greiner | 188271 | |
| 15 ml低吸附离心管 | Eppendorf | 30122208 | FACS制备用管 |
| 设备 | |||
| Electroporator Nepa21 | Nepa Gene Co., Ltd. | n.a. | |
| EVOS FL Auto | Invitrogen | AMAFD1000 | 荧光显微镜 |
| LSRFortessa | BD Bioscience | 647800E6 | FACS |
| 试剂与质粒 | |||
| 可固定活/死细胞蓝色染色试剂盒 | Invitrogen | L34962 | 包含用于FACS分析的活/死细胞染色抗体 |
| EndoFree 质粒大提试剂盒 | Qiagen | 12362 | |
| Nutlin-3 | Selleckchem | S1061/07 | |
| Opti-MEM | Gibco | 31985047 | 电穿孔缓冲液 |
| 2 gRNA concatemer 载体 | AddGene | 84879 | |
| pCMV-EGFP | Nepa Gene Co., Ltd. | n.a. | |
| px458 质粒 | AddGene | 48138 | 编码sgRNA和Cas9 |
| px458_Conc2 质粒 | AddGene | 134449 | 含有两个U6启动子以表达两种不同sgRNA的px458质粒 |
| sgRNA_hTP53_1a | Eurofins Genomics | n.a. | 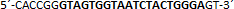 |
| sgRNA_hTP53_1b | Eurofins Genomics | n.a. | 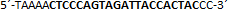 |
| sgRNA_hTP53_2a | Eurofins Genomics | n.a. | 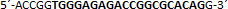 |
| sgRNA_hTP53_2b | Eurofins Genomics | n.a. | 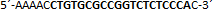 |
参考文献
- Huch, M., et al. Long-term culture of genome-stable bipotent stem cells from adult human liver. Cell. 160 (1-2), 299-312 (2015).
- Werner, K., Weitz, J., Stange, D. E. Organoids as Model Systems for Gastrointestinal Diseases: Tissue Engineering Meets Genetic Engineering. Current Pathobiology Reports. 4 (1), 1-9 (2016).
- Olayanju, A., Jones, L., Greco, K., Goldring, C. E., Ansari, T. Application of porcine gastrointestinal organoid units as a potential in vitro tool for drug discovery and development. Journal of applied toxicology. 39 (1), 4-15 (2019).
- Drost, J., et al. Sequential cancer mutations in cultured human intestinal stem cells. Nature. 521 (7550), 43-47 (2015).
- Matano, M., et al. Modeling colorectal cancer using CRISPR-Cas9-mediated engineering of human intestinal organoids. Nature Medicine. 21 (3), 256-262 (2015).
- Schwank, G., et al. Functional repair of CFTR by CRISPR/Cas9 in intestinal stem cell organoids of cystic fibrosis patients. Cell Stem Cell. 13 (6), 653-658 (2013).
- Drost, J., et al. Use of CRISPR-modified human stem cell organoids to study the origin of mutational signatures in cancer. Science. 358 (6360), 234-238 (2017).
- Zhang, X. H., Tee, L. Y., Wang, X. G., Huang, Q. S., Yang, S. H. Off-target Effects in CRISPR/Cas9-mediated Genome Engineering. Molecular Therapy Nucleic Acids. 4, e264(2015).
- Tsong, T. Y. Electroporation of cell membranes. Biophysical journal. 60 (2), 297-306 (1991).
- Fujii, M., Matano, M., Nanki, K., Sato, T. Efficient genetic engineering of human intestinal organoids using electroporation. Nature Protocols. 10 (10), 1474-1485 (2015).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Bartfeld, S., et al. In vitro expansion of human gastric epithelial stem cells and their responses to bacterial infection. Gastroenterology. 148 (1), 126-136 (2015).
- Boj, S. F., et al. Organoid models of human and mouse ductal pancreatic cancer. Cell. 160 (1-2), 324-338 (2015).
- Broutier, L., et al. Culture and establishment of self-renewing human and mouse adult liver and pancreas 3D organoids and their genetic manipulation. Nature Protocols. 11 (9), 1724-1743 (2016).
- Broutier, L., et al. Human primary liver cancer-derived organoid cultures for disease modeling and drug screening. Nature Medicine. 23 (12), 1424-1435 (2017).
- Hennig, A., et al. CFTR Expression Analysis for Subtyping of Human Pancreatic Cancer Organoids. Stem Cells Int. 2019, 1024614(2019).
- Seidlitz, T., et al. Human gastric cancer modelling using organoids. Gut. 68 (2), 207-217 (2019).
- Stepanenko, O. V., Verkhusha, V. V., Kuznetsova, I. M., Uversky, V. N., Turoverov, K. K. Fluorescent proteins as biomarkers and biosensors: throwing color lights on molecular and cellular processes. Current protein & peptide science. 9 (4), 338-369 (2008).
- Andersson-Rolf, A., et al. Simultaneous paralogue knockout using a CRISPR-concatemer in mouse small intestinal organoids. Dev Biol. 420 (2), 271-277 (2016).
- Ran, F. A., et al. Genome engineering using the CRISPR-Cas9 system. Nature Protocols. 8, 2281(2013).
- Merenda, A., et al. A Protocol for Multiple Gene Knockout in Mouse Small Intestinal Organoids Using a CRISPR-concatemer. Journal of Visualized Experiments. (125), (2017).
- Lesueur, L. L., Mir, L. M., Andre, F. M. Overcoming the Specific Toxicity of Large Plasmids Electrotransfer in Primary Cells In Vitro. Molecular Therapy Nucleic Acids. 5, e291(2016).
- Watanabe, K., et al. A ROCK inhibitor permits survival of dissociated human embryonic stem cells. Nature Biotechnology. 25 (6), 681-686 (2007).
- Darquet, A. M., Cameron, B., Wils, P., Scherman, D., Crouzet, J. A new DNA vehicle for nonviral gene delivery: supercoiled minicircle. Gene Therapy. 4 (12), 1341-1349 (1997).
- Jacobi, A. M., et al. Simplified CRISPR tools for efficient genome editing and streamlined protocols for their delivery into mammalian cells and mouse zygotes. Methods. 121-122, 16-28 (2017).
重印与许可
