遗传密码扩展技术被用于在载体蛋白的特定位置引入带有生物正交功能基团的非天然氨基酸。该生物正交功能基团可进一步用于碳水化合物抗原的位点选择性偶联,从而制备均一的糖缀合疫苗。
本文内容
摘要
摘要
遗传密码扩展是一种强大的工具,可用于将非天然氨基酸(UAAs)引入蛋白质,以修饰其特性、研究或创造新的蛋白质功能,或获得蛋白质偶联物。终止密码子抑制技术,特别是琥珀密码子抑制,已成为在特定位点基因编码非天然氨基酸的最常用方法。本文将该方法应用于制备一种携带含有生物正交功能基团的非天然氨基酸的载体蛋白。该反应性基团随后可用于特异性且高效地接枝合成寡糖半抗原,从而制备均一的糖偶联疫苗。本方案限于制备碳水化合物半抗原与载体蛋白比例为1:1的糖偶联物,但可适用于多种生物正交功能基团组合。糖偶联疫苗的均一性是确保其完整理化表征的重要标准,从而满足药品监管机构日益严格的要求,而传统偶联策略难以达到这一标准。此外,本方案可精确调控实际偶联疫苗的结构,为研究结构与免疫原性之间的关系提供有力工具。
引言
糖结合疫苗是可用于传染病预防治疗的疫苗武器库中的重要组成部分。它们安全性高、耐受性良好,适用于包括婴幼儿在内的广泛年龄群体。糖结合疫苗可为由荚膜细菌(如脑膜炎球菌、肺炎球菌或b型流感嗜血杆菌)引起的感染提供最佳防护1。糖结合疫苗由纯化的细菌多糖组成,这些多糖构成细菌的荚膜,或由模拟这些表面表达多糖的合成寡糖组成2,并通过共价键连接至载体蛋白。载体蛋白的存在对于促进针对碳水化合物抗原所表达抗原决定簇的保护性体液免疫应答至关重要3。除了对抗原性碳水化合物抗原的精心筛选与制备外,已知影响糖结合疫苗效力的因素还包括:载体蛋白的性质、偶联化学方法(包括所用连接臂的性质与长度)、以及多糖/蛋白比例3。显然,多糖与蛋白偶联的位置及其连接位点的数量也与免疫原性密切相关。迄今为止,这两个参数的研究仍十分有限,因为糖结合物的制备在很大程度上仍依赖经验性方法。其合成通常依赖于载体蛋白序列中赖氨酸残基的氨基或天冬氨酸/谷氨酸残基的羧基官能团,因此得到的并非单一产物,而是一类结构异质的糖结合物混合物。
利用蛋白质中氨基酸残基的反应性、可及性或分布特性,可获得结构更明确的糖缀合物,从而更可靠地记录糖链/蛋白质连接方式的影响4。实现这一目标的一个进步是应用蛋白质糖链偶联技术,这是一种重组工艺,可在细胞工厂中生产结构可控的糖缀合疫苗5,6。然而,该糖基化仅发生在D/EXNYS/T序列基序内的天冬酰胺残基上(其中X为20种天然氨基酸中的任意一种),而该基序在载体蛋白中并不存在。
位点选择性突变,特别是引入半胱氨酸以利用其高度特异性的反应活性,是一种可行的替代策略7,8在载体蛋白序列中引入非天然氨基酸(UAAs)可为均一性糖缀合疫苗的制备提供更大的灵活性。目前已开发出100多种非天然氨基酸,并已成功整合至多种蛋白质中。9,10许多此类分子含有通常用于进行翻译后修饰的生物正交功能基团。11 或连接生物物理探针12 或药物13 但却是与碳水化合物抗原进一步偶联的理想手柄。Biotech 公司已宣称获得成功案例14 使用无细胞蛋白合成15 但根据这一策略制备糖缀合疫苗仍待普及。
体内策略应用于突变载体蛋白的生产时,需要一种经过改造的翻译机制,该机制包括一个特定密码子、一种识别该密码子的tRNA,以及一种能够特异性催化非天然氨基酸(UAA)连接到tRNA上的氨酰-tRNA合成酶(aaRS)(图1)16。吡咯赖氨酸琥珀终止密码子抑制技术是目前最广泛使用的非天然氨基酸插入方法之一,尤其适用于插入丙炔基赖氨酸(PrK)17。后者可进一步与叠氮功能化的碳水化合物半抗原发生反应,从而生成结构明确且均一的糖缀合物。在本研究中,我们描述了如何合成携带炔基官能团的丙炔基-L-赖氨酸这一非天然氨基酸,如何在细菌翻译过程中将其引入目标蛋白,以及最终如何利用点击化学方法实现修饰蛋白与含叠氮基团的半抗原之间的偶联反应。
方案
1. 非天然氨基酸(UAA)丙炔基赖氨酸(PrK)的合成
- 合成 NαBoc-丙炔基赖氨酸18
- 将500 mg Boc-L-Lys-OH(2.03 mmol)溶解于5 mL 1 M NaOH水溶液与5 mL THF组成的混合液中,置于烧瓶内,并用硅胶隔垫密封烧瓶。
- 将烧瓶置于冰浴中冷却,然后在搅拌下用微量注射器逐滴加入158 µL丙炔基氯甲酸酯(1.62 mmol),滴加时间为2–3分钟。
- 将反应混合物升温至室温,继续搅拌10小时。
- 将50 mL乙醚溶液、50 mL 1 M盐酸水溶液和60 mL乙酸乙酯溶液置于冰浴中冷却。
- 将粗反应混合物在冰浴中冷却,然后倒入分液漏斗中。用50 mL乙醚萃取该混合物,弃去有机相。
- 小心地向分液漏斗中的水相加入1 M盐酸水溶液,然后用30 mL乙酸乙酯对水相萃取两次。验证是否存在 N使用CH通过薄层色谱法在有机相中检测-Boc-丙氨酰赖氨酸2Cl2-甲醇(9:1)作为洗脱剂。
- 用 MgSO₄ 干燥合并的有机相4过滤,分离出固相,并在旋转蒸发仪上减压浓缩滤液。
- 将粗油状样品溶解 Nα氘代氯仿(CDCl₃)中的-Boc-丙炔基赖氨酸3)并通过以下方式控制其身份: 1H NMR
注意:提取过程中可能会产生压力积聚。请频繁释放积聚的压力。
- 非天然氨基酸丙炔基-L-赖氨酸(PrK)的合成
- 介绍 Nα-Boc-丙炔基赖氨酸置于配备橡胶隔膜的圆底烧瓶中。
- 加入4 mL无水二氯甲烷(CH₂Cl₂)。2Cl2) 在氩气保护下加入烧瓶中以溶解 Nα-Boc-丙炔基赖氨酸
- 使用注射器在搅拌下逐滴加入4 mL三氟乙酸(TFA)。
- 在室温下搅拌反应混合物1小时。使用CH作为展开剂,通过薄层色谱(TLC)监测反应进程。2Cl2-甲醇(9:1)作为洗脱剂。
- 在减压条件下浓缩反应混合物。
- 将乙醚加入粗产物残渣中,4 °C孵育1小时以沉淀蛋白激酶(PrK)。当进行较大规模操作时,若PrK未完全沉淀,可通过研磨促进沉淀,并根据需要延长孵育时间。
- 在玻璃砂芯漏斗上过滤,得到白色固体形式的PrK。
- 将一份PrK溶解于D中2然后进行核磁共振(NMR)分析以确认其结构和纯度。
- 如需进一步使用,将非天然氨基酸PrK溶于蒸馏水中,配制成终浓度为100 mM的溶液,分装为每份1 mL,于-20 °C保存。
2. 由PrK修饰的重组蛋白的制备
- 质粒制备
- 构建一个表达质粒(pET24d-mPsaAK32TAG-ENLYFQ-HHHHHH),其中包含目标成熟的肺炎链球菌表面黏附素A(mPsaA)基因(pET24d-mPsaA-WT),并在其后通过将插入片段克隆至pET24d质粒的BamHI和XhoI限制性酶切位点之间引入烟草蚀刻病毒(TEV)蛋白酶序列。这将在蛋白的C末端引入一个His6标签。使用传统的定点突变技术将赖氨酸-32的密码子替换为琥珀终止密码子(TAG)。
- 构建第二个表达质粒(pEVOL-MmPylRS),其中包含两个拷贝的编码来自Methanosarcina mazei的吡咯赖氨酰-tRNA合成酶(MmPylRS)的基因以及编码相应tRNAPyr的基因,构建方法如前所述19。使用这种专门设计的质粒载体pEVOL,以实现非天然氨基酸(UAA)的高效插入。
注意:详细的质粒信息见补充文件1。
- 将质粒共转化至表达菌株
- 将100 µL化学感受态Escherichia coli BL21(DE3)置于冰上解冻5分钟。
- 向细胞中加入每种质粒各1 µL(每种50–100 ng),并在冰上孵育30分钟。
- 将含有已解冻感受态细胞的1.5 mL微量离心管转移至42 °C培养箱中热激45秒,然后立即放回冰上冷却2分钟。
- 加入900 µL LB培养基,在37 °C下振荡培养1小时,以允许抗生素抗性基因表达。随后将细菌涂布于含有25 µg/mL卡那霉素和30 µg/mL氯霉素的LB琼脂平板上,于37 °C过夜培养。
- 表达经PrK修饰的蛋白
- 挑取一个共转化的单菌落接种至5 mL含抗生素(25 µg/mL卡那霉素和30 µg/mL氯霉素)的LB培养基中,于37 °C振荡过夜培养。
- 将上述初级培养物(5 mL)按1:100比例接种至500 mL自诱导培养基中,该培养基含抗生素、0.02% L-阿拉伯糖和1 mM非天然氨基酸PrK,在37 °C振荡培养24小时。同时设置阴性对照(平行培养但不添加PrK)和阳性对照(培养含有野生型蛋白的克隆)。
- 从500 mL培养液中取出5 mL样品,于5,000 × g离心10分钟。弃去上清液,将沉淀在-20 °C冷冻保存。对剩余的495 mL培养液同样进行离心(5,000 × g,10分钟),弃去上清液后将沉淀在-20 °C冷冻保存。
- 通过SDS-PAGE和Western印迹分析5 mL培养样品的粗细胞提取物
- 将5 mL培养所得的细胞沉淀重悬于250 µL裂解缓冲液(50 mM Na2HPO4/NaH2PO4,150 mM NaCl,pH 8,5 mM咪唑,0.2 mM PMSF)中,并转移至1.5 mL微量离心管中。
- 通过将样品管在液氮中冷冻、在42 °C水浴中解冻并高速涡旋30秒来裂解细胞。重复此步骤3次。
- 以17,000 × g离心10分钟,去除细胞碎片。
- 取10 µL上清液,加入5 µL水和5 µL上样缓冲液(含溴酚蓝、SDS和β-巯基乙醇)。在100 °C加热5分钟,随后进行SDS-PAGE和Western印迹分析。
- 利用镍-NTA微珠通过重力流柱亲和层析纯化蛋白
- 将来自495 mL培养物的细胞沉淀重悬于20 mL裂解缓冲液(50 mM Na2HPO4/NaH2PO4,150 mM NaCl,pH 8,5 mM咪唑,0.2 mM PMSF)中。
- 向悬浮液中加入5 µL DNase I(1 mg/mL)和500 µL溶菌酶(50 mg/mL),于37 °C孵育30分钟以促进裂解。
- 超声处理5分钟(5秒开/5秒关,振幅50%),然后在20,000 × g离心30分钟以去除细胞碎片,再经0.45 µm滤膜过滤。
- 向裂解液中加入Ni-NTA树脂(每500 mL细胞培养物加500 µL),于4 °C轻柔混合1小时。
- 将混合液倒入聚丙烯层析柱中,收集未结合组分。
- 用10 mL洗涤缓冲液(含50 mM Na2HPO4/NaH2PO4、150 mM NaCl、10 mM咪唑)洗涤树脂;再用5 mL洗涤缓冲液(含50 mM Na2HPO4/NaH2PO4、150 mM NaCl、20 mM咪唑)进行第二次洗涤。分别收集洗涤组分。
- 用1 mL洗脱缓冲液(含50 mM Na2HPO4/NaH2PO4、150 mM NaCl、300 mM咪唑)洗脱His标签蛋白,重复此步骤4次,收集所有洗脱组分。
- 通过12%丙烯酰胺凝胶SDS-PAGE分析粗裂解液及7个纯化组分(包括结合、洗涤和洗脱组分)。
- 合并含有纯化His标签蛋白的组分,使用截留分子量为6000–8000 Da的透析膜,在1 L TEV蛋白酶缓冲液(50 mM Tris-HCl,0.5 mM EDTA,pH 8)中于4 °C透析过夜。使用mPsaA蛋白的摩尔消光系数37,360 cm-1∙M-1和分子量34.14 kDa,在280 nm处测定蛋白浓度。
3. 通过TEV蛋白酶消化去除组氨酸标签
- 将蛋白样品收集至50 mL离心管中,并加入TEV缓冲液(50 mM Tris HCl,0.5 mM EDTA,pH 8),使总体积达到1 mL,蛋白浓度为2 mg/mL。
注意:浓度可根据先前实验结果进行调整。我们测试过的蛋白浓度通常在2–3 mg/mL范围内。 - 加入100 µL TEV蛋白酶(每20 µg蛋白加入含10单位TEV蛋白酶的溶液1 µL,用于消化)。
- 加入50 µL 0.1 M二硫苏糖醇(DTT)。
- 用TEV缓冲液(50 mM Tris HCl,0.5 mM EDTA,pH 8)定容至5 mL。
- 在4 °C下缓慢振荡孵育过夜。
注意:若消化不完全,可补充TEV蛋白酶,延长孵育时间或提高孵育温度至最高30 °C。 - 将消化后的蛋白样品在4 °C下用透析膜(截留分子量6000–8000 Da)对磷酸盐缓冲液(50 mM Na2HPO4/NaH2PO4,150 mM NaCl,5 mM 咪唑)透析过夜,以去除EDTA。
- 为去除TEV蛋白酶及未消化的蛋白,将混合物与Ni-NTA微珠在4 °C下轻柔孵育1小时。
- 将悬液倒入聚丙烯层析柱中。收集未结合组分,并用5 mL洗涤缓冲液(50 mM Na2HPO4/NaH2PO4,150 mM NaCl,10 mM 咪唑)洗涤层析柱。
注意:目标蛋白应存在于未结合组分和洗涤组分中。 - 在层析柱中加入5 mL洗脱缓冲液(50 mM Na2HPO4/NaH2PO4,150 mM NaCl,300 mM 咪唑),洗脱TEV蛋白酶和未消化的蛋白。通过280 nm吸光度测定和SDS-PAGE分析检测各组分中的蛋白含量。
- 通过将消化后的样品与未消化蛋白对照一起上样至SDS-PAGE凝胶,检测消化效率。
- 将消化后的蛋白样品在4 °C下用透析膜(截留分子量6000–8000 Da)对1 L点击化学缓冲液(50 mM Na2HPO4/NaH2PO4,pH 8)透析过夜,以去除咪唑并更换缓冲体系,并利用mPsaA的摩尔消光系数(37 360 cm-1∙M-1)和分子量(MW 34.14 kDa)在280 nm处测定蛋白浓度。
4. 评估非天然氨基酸丙炔基赖氨酸在点击化学中的可及性与功能性
注意:使用 Presolski 等人20描述的点击化学方法,将 mPsaA 与 6-己氯荧光素叠氮化物进行偶联。
- 取432.5 µL浓度为57.8 µM的PrK突变蛋白,加入2 mL微量离心管中。
注意:炔烃的最低可接受浓度为2 µM。若蛋白浓度较低,可使用离心浓缩装置进行浓缩,或通过提高叠氮/炔烃的摩尔比来优化反应平衡。 - 加入10 µL浓度为5 mM的6-六氯荧光素叠氮化物,然后加入预混溶液:2.5 µL浓度为20 mM的CuSO4溶液和7.5 µL浓度为50 mM的三(苄基三唑基甲基)胺(THPTA)(均为储备液浓度)。
- 加入25 µL浓度为100 mM的氨基胍盐酸盐水溶液。
- 加入25 µL浓度为20 mg/mL的新鲜配制的抗坏血酸钠水溶液。
- 盖紧管盖,反复倒置混匀,于室温孵育2小时。
- 加入50 µL浓度为0.5 M的EDTA终止反应。
- 取15 µL反应混合物置于微量离心管中,加入5 µL上样缓冲液(溴酚蓝、SDS、β-巯基乙醇),在100 °C加热5分钟,随后上样至12%丙烯酰胺凝胶。电泳结束后,在312 nm紫外光下观察凝胶中的荧光偶联物。
5. 通过点击化学将 mPsaA 与叠氮功能化碳水化合物抗原(Pn14TS-N3)偶联
- 偶联
- 取 432.5 µL 浓度为 57.8 µM 的 PrK 突变蛋白至 2 mL 微量离心管中。
- 加入10 µL的5 mM Pn14TS-N321 在水中,然后加入2.5 µL硫酸铜预混液4 20 mM 的溶液和 50 mM 的 THPTA 7.5 µL。
注意:Pn14TS-N 的合成3,一种模拟四糖的化合物 肺炎链球菌 14型荚膜多糖在参考文献21中已有描述。理论上,任何含有叠氮基团的碳水化合物抗原均可使用。 - 加入 25 µL 100 mM 盐酸氨基胍。
- 加入25 µL新配制的20 mg/mL抗坏血酸钠水溶液。
- 盖上管盖,轻轻颠倒混匀数次,室温孵育2小时。
- 加入50 µL 0.5 M EDTA终止反应。
- 取15 µL样品,进行SDS-PAGE分析。
- 糖缀合物的凝胶过滤纯化
- 使用经100 mM PBS缓冲液(pH 7.3)平衡的立体排阻琼脂糖柱(柱床尺寸15 × 600,分离范围3,000–70,000),以0.8 mL/min流速上样,于280 nm处检测,对糖缀合物进行纯化。
- 收集含有糖缀合物的组分。
注意:如需长期保存,需将糖缀合物在1 L H2用透析膜(截留分子量6000–8000 Da)在4 °C下分两次透析,每次2小时,然后过夜透析,之后冷冻干燥,并将糖偶联物于-80 °C保存。
结果
在本项目中,采用琥珀终止密码子抑制策略制备了一种均一的糖偶联疫苗,以在特定位点引入一个非天然氨基酸(UAA)图1)。选择肺炎球菌表面黏附素A作为载体蛋白组分。该蛋白在所有肺炎球菌菌株中高度保守且均有表达。 肺炎链球菌22它具有强免疫原性,既往曾用作肺炎球菌疫苗制剂中的载体。21,23作为概念验证,野生型产吡咯赖氨酰-tRNA合成酶(PylRS)/tRNA配对能够高效地将非天然氨基酸丙炔基赖氨酸(propargyl-lysine)加载到tRNA上 Methanosarcina mazei 进行了研究。丙炔基赖氨酸可商业获得,但也可由Boc-L-赖氨酸通过仅两步合成反应优势性地制备(图2)。在含有目标基因的 pET24d 质粒中,于特定位点引入了一个琥珀密码子 mPsaA 基因。该质粒与pEVOL质粒(由Edward Lemke(EMBL)惠赠)共转化19) 包含将丙炔基赖氨酸正交整合到感受态细胞所需的工具 E. coli BL21(DE3) 菌株。通过使用双阳性共转化克隆进行筛选 25 µg/mL 卡那霉素和 30 µg/mL 氯霉素。质粒pEVOL原本包含两个编码MmPylRS的基因拷贝,用于介导丙炔基赖氨酸残基的掺入:其中一个拷贝受组成型启动子调控,另一个拷贝的表达则可在阿拉伯糖存在下被诱导。然而,我们注意到,即使抑制了受组成型启动子调控的MmPylRS基因,丙炔基赖氨酸的掺入效率也未出现显著下降。
在PsaA的N端附近第32位,丙炔基赖氨酸被引入以取代原有的赖氨酸。理论上,任何具有表面暴露侧链的残基均可被替换,以便进行后续偶联反应。该突变蛋白以其成熟形式(mPsaA)表达。K32PrK) 并在其C末端包含一个可切割的6-组氨酸标签序列。mPsaA的效率K32PrK 通过SDS-PAGE和Western Blot分析,使用抗组氨酸标签抗体检测了在添加或不添加非天然氨基酸丙炔基赖氨酸的条件下mPsaA的表达情况,并与野生型mPsaA的表达水平进行了比较图3). 可视化结果显示在预期的分子量处出现一条蛋白条带(泳道 4, 图3A & 3B)。全长蛋白的存在强烈表明PrK已成功插入mPsaA。然而,其条带强度低于野生型mPsaA所观察到的水平(泳道2, 图3A & 3B)。在翻译过程中,渗漏(即未掺入非天然氨基酸UAA而产生全长蛋白)以及释放因子RF1导致的蛋白质过早释放是该过程中常遇到的两个主要缺陷。一方面,在未添加丙炔基赖氨酸的情况下,未观察到预期分子量大小的条带,表明未发生渗漏(泳道3, 图3A & 3B)并间接证实了第4泳道中观察到的条带对应于mPsaAK32PrK另一方面,在低分子量区域未见任何条带,该区域本应出现截短形式的 mPsaA(第 4 泳道) 图3A)。mPsaAK32PrK 随后通过亲和层析进行纯化,典型产量为8 mg/L(相比之下,野生型蛋白的产量为12–20 mg/L),并通过质谱最终确认了丙炔基赖氨酸残基的引入。图4)。组氨酸标签通过使用TEV蛋白酶进行蛋白水解切割而被去除(图4). mPsaA 的稳定性K32PrK 通过圆二色性分析对由此获得的蛋白进行检测,结果显示,赖氨酸32突变为丙炔基赖氨酸并未影响蛋白的结构(数据未显示)。
获得 mPsaAK32PrK 后,使用叠氮功能化的荧光素评估了炔基在点击化学中的反应活性,并进一步用于偶联合成的寡糖抗原 β-2-叠氮乙基 d-Galp-(1→4)-β-d-Glcp-(1→6)-[β-d-Galp-(1→4)]-β-d-GlcpNAc(Pn14TS)(图5)。该四糖与 S. pneumoniae 14 型荚膜多糖相关,此前已通过不同的偶联化学方法与 mPsaA 进行偶联8,21,24。本实验以野生型 mPsaA 作为对照进行比较。首先通过 TEV 蛋白酶的蛋白水解切割去除组氨酸标签。随后将消化后的 mPsaAK32PrK 和 mPsaA 野生型分别与荧光探针(图6A)或 Pn14TS(图6B)进行偶联。通过 SDS-PAGE 分析反应结果。图6B 中第 6 和第 7 泳道之间样品分子量的微小增加表明与四糖 Pn14TS 的偶联成功。最后,通过凝胶过滤纯化糖偶联物,并通过质谱确认其结构(图6C)。由于点击化学偶联是定量的,质谱结果(图6C)显示大部分 mPsaAK32PrK 已与 Pn14TS-N3 成功偶联。
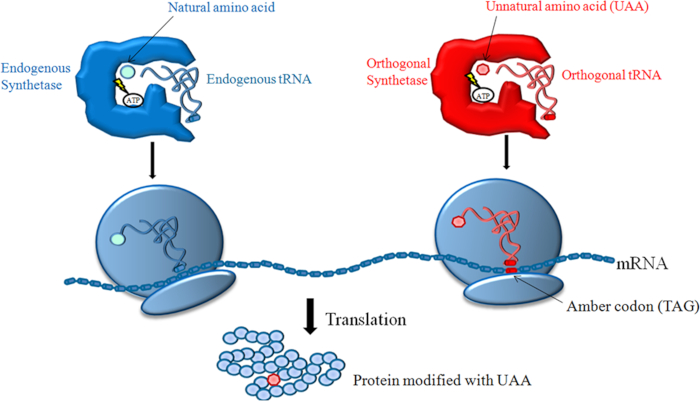
图1:利用正交的吡咯赖氨酰-tRNA合成酶/tRNA配对及TAG密码子重分配,在翻译过程中将丙炔基赖氨酸(PrK)整合到mPsaA中25。 在翻译过程中,内源性合成酶催化氨基酸与其对应tRNA之间的连接。随后,负载的tRNA被核糖体机制利用,以生成新合成的多肽链。根据琥珀终止密码子抑制策略,一种正交的氨酰-tRNA合成酶(aaRS)(此处为来自M. mazei的吡咯赖氨酰-tRNA合成酶)将其对应的非天然氨基酸(此处为PrK)加载到其同源tRNA上,该tRNA的反密码子可识别mRNA上的琥珀终止密码子(TAG)。这种特异性识别将非天然氨基酸定向整合至目标蛋白的特定位点。图示改编自Wang等25。请点击此处查看该图的放大版本。
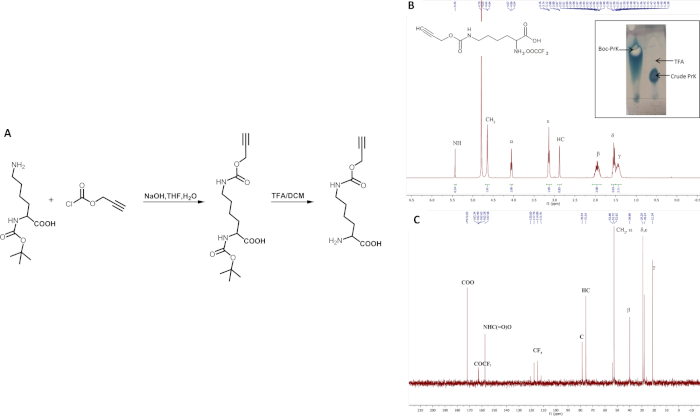
图 2:炔丙基赖氨酸的合成。(A)炔丙基赖氨酸合成的步骤。插图:Boc-l-Lys(prop-2-ynyloxycarbonyl)-OH 中间体脱保护过程的监测:采用含荧光指示剂(GF254)的 0.25 mm 硅胶板进行薄层色谱分析,并用硫酸/乙醇(1.5:95 v/v)中的钒宁染色显色;洗脱剂:CH2Cl2/MeOH(9:1),左泳道:Boc-l-Lys(prop-2-ynyloxycarbonyl)-OH(Rf 0.90),右泳道:粗制炔丙基赖氨酸(Rf 0.38)。400 MHz 1H(B)和 13C NMR 谱图(C)在 D2O 中测定的炔丙基赖氨酸谱图。请点击此处查看该图的放大版本。
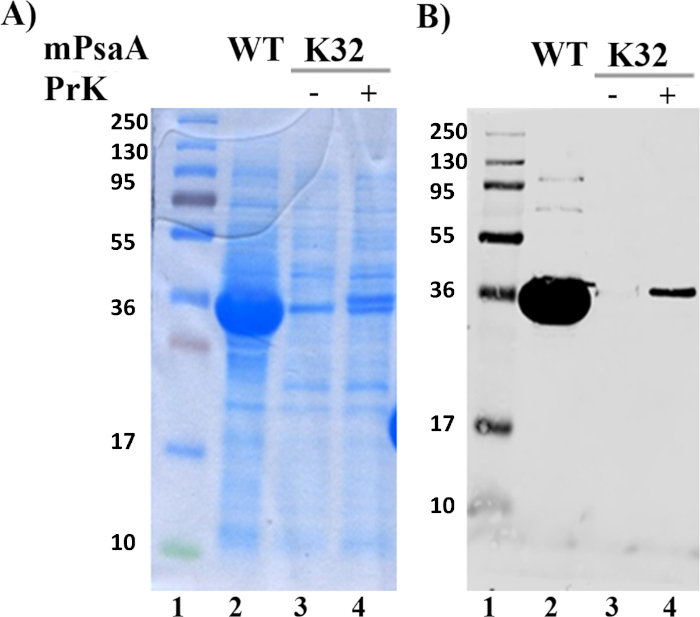
图3:粗细胞样品分析。(A)SDS-PAGE分析和(B)粗细胞样品的Western印迹分析。泳道1:未染色的蛋白质标记物;泳道2:野生型mPsaA的粗细胞提取物;泳道3:在无PrK条件下培养的mPsaAK32TAG的粗细胞提取物;泳道4:在含PrK条件下培养的mPsaAK32TAG的粗细胞提取物。条件:12%丙烯酰胺凝胶,100 V电压下电泳2小时。SDS-PAGE采用考马斯亮蓝染色;Western印迹使用抗组氨酸标签抗体及偶联AlexaFluor680的二抗进行检测。请点击此处查看该图的放大版本。
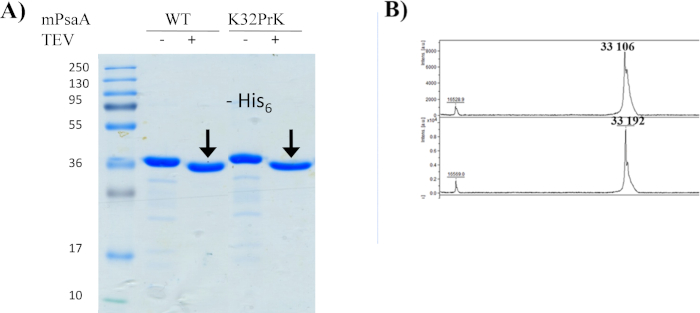
图4:组氨酸标签切除及质谱分析。(A)SDS-PAGE 分析。泳道1:未染色蛋白质标记物;泳道2:粗细胞提取物;泳道3:未结合组分;泳道4:含10 mM 咪唑的洗涤组分;泳道5:含20 mM �咪唑的洗涤组分;条件:12% 丙烯酰胺凝胶,100 V 电泳2小时,考马斯亮蓝染色;(B)MALDI-TOF-MS 谱图:(上图)mPsaA WT,理论分子量为33 103 Da,实测为33 106 Da;(下图)mPsaA K32PrK,理论分子量为33 184 Da,实测为33 192 Da。实测质量在预期误差范围内。请点击此处查看该图的放大版本。
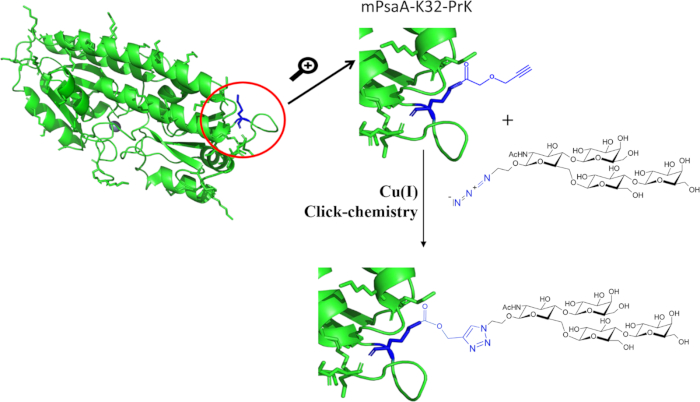
图 5:通过点击化学实现偶联策略的示意图。 一个带有叠氮基团的单一天然四糖被特异性地偶联至 mPsaA K32PrK 上互补的生物正交炔基(mPsaA 的结构基于 PDB 文件 1PSZ,分辨率为 2.0 Å26)。请点击此处查看该图的放大版本。
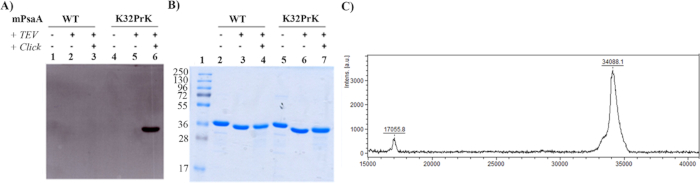
图6:组氨酸标签的消化及mPsaA与(A)荧光素-N3 和(B)Pn14TS的偶联。(A)SDS-PAGE 泳道1-3:野生型 mPsaA;泳道4-6:mPsaAK32PrK;(B)泳道1:未染色蛋白标记物;泳道2-4:野生型 mPsaA;泳道5-7:mPsaAK32PrK。每泳道上样2 µg蛋白,12%丙烯酰胺凝胶,100 V,2 h;(C)Pn14TS-mPsaAK32PrK 的MALDI-TOF-MS谱图,理论分子量为34 091 Da,实测值为34 088 Da。请点击此处查看该图的放大版本。
补充文件 1. 请点击此处查看该文件(右键单击以下载)。
讨论
定点突变是一种简单直接的策略,可将特定氨基酸引入蛋白质的指定位置,但该方法在制备糖缀合疫苗方面的应用仍十分有限7,8,14经典诱变基于20种天然氨基酸的方法效率很高,因为无需对翻译机制进行改造。通常选择半胱氨酸突变,以进一步探索其独特的巯基反应性,可直接进行或分两步进行例如,经过其修饰形成脱氢丙氨酸中间体后,该策略被称为翻译后诱变27,28遗传密码扩展可能更具吸引力和灵活性,因为它能够直接引入多种具有不同功能的非天然氨基酸9,10虽然多种非天然氨基酸可同时整合到一个蛋白质中29,突变的数量通常较为有限。本文中,我们采用相关的琥珀终止密码子策略,在载体蛋白中引入单个丙炔基赖氨酸。只要初始氨基酸的侧链暴露于表面,即可在任意位置实现该引入,而这一标准可通过X-ray晶体结构或 计算机模拟 建模。此外,该方法不仅限于丙炔基赖氨酸,还可拓展至任何带有生物正交功能基团的非天然氨基酸(UAA),此类功能基团可作为锚点用于接枝引入的碳水化合物抗原,且已有对应的正交aaRS/tRNA配对系统存在。
该策略的缺点之一是,在读取琥珀终止密码子时,肽链侧链可能被释放,从而产生截短蛋白作为副产物。尽管本实验中未观察到任何截短形式的蛋白(可能因其尺寸极小而被细菌降解),但仍于目标蛋白的C末端添加了组氨酸标签,以促进全长突变蛋白与杂质(尤其是不包含组氨酸标签序列的截短蛋白)的分离纯化。如果非天然氨基酸(UAA)的插入发生在靠近蛋白C末端的位置,这一步骤将尤为关键,因为此时无法采用凝胶过滤等其他层析技术进行纯化。
对于大多数应用而言,去除组氨酸标签并非必需。然而,在设计糖缀合疫苗时,去除标签可能具有重要意义,因为免疫系统的一部分可能会针对标签序列产生反应。在此概念验证实验中,我们插入了一段特定长度的氨基酸序列,该序列可被TEV蛋白酶特异性切割,消化后在载体蛋白上留下五个额外的氨基酸。
利用Presolski等人报道的点击化学方法20,实现了丙炔基赖氨酸的炔基与一种代表性的合成寡糖Pn14TS之间的偶联反应;该寡糖与肺炎球菌荚膜多糖相关,并带有互补的叠氮基团。如有需要,可通过延长反应时间或调整炔基、叠氮基与铜试剂之间的比例,轻松实现反应的完全。通过过量EDTA处理去除铜盐,随后经尺寸排阻色谱进行简短纯化。
利用本研究中所述技术获得的糖缀合物可用于免疫小鼠。拥有这种结构完全明确且易于调控的糖缀合物,为评估半抗原与蛋白载体连接方式对免疫应答的影响提供了极为宝贵的工具8。由于在使用短链半抗原时,提高半抗原与蛋白的比例通常与增强的抗半抗原体液免疫应答相关30,因此人们可能希望测试含有多个半抗原的缀合物。然而,引入多个非天然氨基酸(UAA)需要对实验方案进行一些调整,因为蛋白中引入UAA往往会由于RF1活性的存在而降低蛋白的表达产量。
总之,该方法是一种强大的工具,可用于获得均一的糖缀合物疫苗,从而促进其理化表征,并进一步开展碳水化合物抗原与载体连接方式和免疫原性之间关系的研究。
披露
作者无任何利益冲突需要披露。
致谢
E.C. 感谢法国卢瓦尔河地区大区政府(Pari Scientifique 计划"BioSynProt")提供的财政支持,特别是为 T.V. 提供的博士奖学金。我们还感谢法国图卢兹国立农业研究院(INRA UMR0792,CNRS UMR5504,LISBP)的 Robert B. Quast 博士提供的宝贵技术指导。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 自诱导培养基(autoinductif medium, AIM) | 福麦迪姆 | AIMLB0210 | 固体粉末 |
| Boc-Lys-OH | Alfa-Aesar | H63859 | 固体粉末 |
| BL21(DE3) | 默克诺瓦根 | 69450 | E. coli B 株,F 株- ompT gal dcm lon hsdSB(rB-mB-) λ(DE3 [lacI lacUV5-T7p07 ind1 sam7 nin5]) [malB+]中小学(λS) |
| 透析膜 | |||
| DNAseI | |||
| 过滤 0.45 µm | |||
| L-阿拉伯糖 | |||
| 溶菌酶 | |||
| Ni-NTA树脂 | Machery Nagel | Protino | 悬浮于20%乙醇中的Ni-NTA磁珠 |
| Pall 离心装置 | |||
| pET24d-mPsaAK32TAG-ENLYFQ-HHHHHH | 本研究 | 与 pET24d-mPsaA-WT 相同,但在 mPsaA 基因中带有 K32TAG 突变 | |
| pET24d-mPsaA-WT | 本研究 | pET24d 质粒,其中野生型 mPsaA 基因克隆于 BamHI 和 XhoI 限制性酶切位点,后接TEV蛋白酶识别序列和一个His标签6 mPsaA 基因 C 末端的标签并携带卡那霉素抗性基因 | |
| pEVOL 质粒 | Edward Lemke EMBL 惠赠(参考文献19) | 带有p15A复制起点的质粒,包含两份MmPylRS基因(一份受GlnS启动子驱动,另一份受pAra启动子驱动)以及一份tRNA基因CUA 在 ProK 启动子控制下,氯霉素抗性基因 | |
| 丙炔基氯甲酸酯 | Sigma-Aldrich | 460923 | 液体 |
| 超声波破碎仪 | Thermo Fisher | FB120-220 |
参考文献
- Rappuoli, R. Glycoconjugate vaccines: Principles and mechanisms. Science Translational Medicine. 10 (456), (2018).
- Verez-Bencomo, V., et al. A synthetic conjugate polysaccharide vaccine against Haemophilus influenzae type b. Science (New York, N.Y). 305 (5683), 522-525 (2004).
- Berti, F., Adamo, R. Antimicrobial glycoconjugate vaccines: an overview of classic and modern approaches for protein modification. Chemical Society Reviews. 47 (24), 9015-9025 (2018).
- Stefanetti, G., et al. Sugar-Protein Connectivity Impacts on the Immunogenicity of Site-Selective Salmonella O-Antigen Glycoconjugate Vaccines. Angewandte Chemie (International Ed. in English). 54 (45), 13198-13203 (2015).
- Kay, E., Cuccui, J., Wren, B. W. Recent advances in the production of recombinant glycoconjugate vaccines. NPJ Vaccines. 4, 16(2019).
- Ma, Z., Zhang, H., Wang, P. G., Liu, X. W., Chen, M. Peptide adjacent to glycosylation sites impacts immunogenicity of glycoconjugate vaccine. Oncotarget. 9 (1), 75-82 (2018).
- Grayson, E. J., Bernardes, G. J. L., Chalker, J. M., Boutureira, O., Koeppe, J. R., Davis, B. G. A coordinated synthesis and conjugation strategy for the preparation of homogeneous glycoconjugate vaccine candidates. Angewandte Chemie (International Ed. in English). 50 (18), 4127-4132 (2011).
- Pillot, A., et al. Site-Specific Conjugation for Fully Controlled Glycoconjugate Vaccine Preparation. Frontiers in Chemistry. , (2019).
- Neumann-Staubitz, P., Neumann, H. The use of unnatural amino acids to study and engineer protein function. Current Opinion in Structural Biology. 38, 119-128 (2016).
- Dumas, A., Lercher, L., Spicer, C. D., Davis, B. G. Designing logical codon reassignment - Expanding the chemistry in biology. Chemical Science. 6 (1), 50-69 (2015).
- Chen, H., Venkat, S., McGuire, P., Gan, Q., Fan, C. Recent Development of Genetic Code Expansion for Posttranslational Modification Studies. Molecules (Basel, Switzerland). 23 (7), (2018).
- Adumeau, P., Sharma, S. K., Brent, C., Zeglis, B. M. Site-Specifically Labeled Immunoconjugates for Molecular Imaging--Part 2: Peptide Tags and Unnatural Amino Acids. Molecular imaging and biology: MIB: the official publication of the Academy of Molecular Imaging. 18 (2), 153-165 (2016).
- Kularatne, S. A., et al. A CXCR4-targeted site-specific antibody-drug conjugate. Angewandte Chemie (International Ed. in English). 53 (44), 11863-11867 (2014).
- WIPO. Patent US20180333484 Polypeptide-Antigen Conjugates with Non-Natural Amino Acids. , https://patentscope.wipo.int/search/en/detail.jsf?docId=US233548973&recNum=65&docAn=15859251&queryString=(GBS)&maxRec=11858 (2018).
- Quast, R. B., Mrusek, D., Hoffmeister, C., Sonnabend, A., Kubick, S. Cotranslational incorporation of non-standard amino acids using cell-free protein synthesis. FEBS letters. 589 (15), 1703-1712 (2015).
- Wang, L. Engineering the Genetic Code in Cells and Animals: Biological Considerations and Impacts. Accounts of Chemical Research. 50 (11), 2767-2775 (2017).
- Brabham, R., Fascione, M. A. Pyrrolysine Amber Stop-Codon Suppression: Development and Applications. Chembiochem: A European Journal of Chemical Biology. 18 (20), 1973-1983 (2017).
- Oller-Salvia, B. Genetic Encoding of a Non-Canonical Amino Acid for the Generation of Antibody-Drug Conjugates Through a Fast Bioorthogonal Reaction. , https://www.ncbi.nlm.nih.gov/pubmed/?term=Genetic+Encoding+of+a+Non-Canonical+Amino+Acid+for+the+Generation+of+Antibody-Drug+Conjugates+Through+a+Fast+Bioorthogonal+Reaction (2019).
- Young, T. S., Ahmad, I., Yin, J. A., Schultz, P. G. An enhanced system for unnatural amino acid mutagenesis in E. coli. Journal of Molecular Biology. 395 (2), 361-374 (2010).
- Presolski, S. I., Hong, V. P., Finn, M. G. Copper-Catalyzed Azide-Alkyne Click Chemistry for Bioconjugation. Current Protocols in Chemical Biology. 3 (4), 153-162 (2011).
- Prasanna, M., et al. Semisynthetic glycoconjugate based on dual role protein/PsaA as a pneumococcal vaccine. European Journal of Pharmaceutical Sciences: Official Journal of the European Federation for Pharmaceutical Sciences. 129, 31-41 (2019).
- Morrison, K. E., et al. Confirmation of psaA in all 90 serotypes of Streptococcus pneumoniae by PCR and potential of this assay for identification and diagnosis. Journal of Clinical Microbiology. 38 (1), 434-437 (2000).
- Lin, H., Lin, Z., Meng, C., Huang, J., Guo, Y. Preparation and immunogenicity of capsular polysaccharide-surface adhesin A (PsaA) conjugate of Streptococcuspneumoniae. Immunobiology. 215 (7), 545-550 (2010).
- Safari, D., et al. Identification of the smallest structure capable of evoking opsonophagocytic antibodies against Streptococcus pneumoniae type 14. Infection and Immunity. 76 (10), 4615-4623 (2008).
- Wang, Q., Parrish, A. R., Wang, L. Expanding the genetic code for biological studies. Chemistry & Biology. 16 (3), 323-336 (2009).
- Lawrence, M. C., Pilling, P. A., Epa, V. C., Berry, A. M., Ogunniyi, A. D., Paton, J. C. The crystal structure of pneumococcal surface antigen PsaA reveals a metal-binding site and a novel structure for a putative ABC-type binding protein. Structure (London, England: 1993). 6 (12), 1553-1561 (1998).
- Wright, T. H., Davis, B. G. Post-translational mutagenesis for installation of natural and unnatural amino acid side chains into recombinant proteins. Nature Protocols. 12 (10), 2243-2250 (2017).
- Dadová, J., Galan, S. R., Davis, B. G. Synthesis of modified proteins via functionalization of dehydroalanine. Current Opinion in Chemical Biology. 46, 71-81 (2018).
- Worst, E. G., et al. Residue-specific Incorporation of Noncanonical Amino Acids into Model Proteins Using an Escherichia coli Cell-free Transcription-translation System. Journal of Visualized Experiments. (114), (2016).
- Carboni, F., et al. GBS type III oligosaccharides containing a minimal protective epitope can be turned into effective vaccines by multivalent presentation. The Journal of Infectious Diseases. , (2019).
重印与许可
