鉴于G蛋白偶联受体(GPCRs)是极具潜力的药物靶点,因此GPCR配体筛选对于发现先导化合物以及开展孤儿受体去孤儿化研究至关重要。为此,我们介绍了PRESTO-Tango,这是一个开源资源平台,利用基于TEV的报告基因检测方法,可同时对近300种GPCR上β-阻遏蛋白2(β-arrestin2)的瞬时招募进行分析。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
作为最大且功能最多样化的基因超家族,G蛋白偶联受体(GPCRs)介导多种细胞信号通路,是制药行业最具前景的靶点之一。因此,设计、实施和优化GPCR配体筛选实验至关重要,因为这些实验是药物发现以及调控GPCR药理学效应和结果的远程控制工具。过去,依赖G蛋白的检测方法主导了这一研究领域,主要通过检测配体诱导的事件并定量第二信使的生成来实现。然而,随着功能选择性概念的提出,以及人们对多种不依赖G蛋白的信号通路及其相关局限性的认识不断加深,科研界正积极推动开发替代性的GPCR配体筛选方法。为此,我们介绍了一种此类资源的应用——PRESTO-Tango平台,这是一种基于荧光素酶报告基因的系统,能够并行且同时对整个人类GPCR组(GPCR-ome)进行分析,这一目标在过去被认为在技术和经济上均难以实现。该平台基于不依赖G蛋白的β-arrestin2招募检测方法,由于β-arrestin2在GPCR介导的转运和信号传导中具有普遍性,PRESTO-Tango成为研究约300种非嗅觉人类GPCR(包括约100种孤儿受体)的合适工具。PRESTO-Tango具有高灵敏度和强稳健性,适用于使用化合物库进行初筛的高通量筛选,可用于发现已知药物的新GPCR靶点,或为孤儿受体寻找新的配体。
引言
G蛋白偶联受体(GPCRs)是最大且最多样化的一类跨膜蛋白,作为细胞与其环境之间通信的界面1。GPCRs的多功能性体现在其能够识别多种多样的配体——从神经递质到核苷酸、多肽到光子,以及其他许多类型——同时还体现在其调控多种下游信号级联反应的能力上,这些信号通路参与了细胞生长、迁移、分化、凋亡、细胞放电等过程2,3。鉴于其广泛存在并参与多种生理过程,该受体家族在治疗上具有极其重要的意义,目前超过三分之一的处方药物均以GPCRs为靶点,这一事实充分说明了其重要性4。然而,现有的治疗药物仅作用于该超家族中的一小部分(估计约10%),许多GPCRs的药理学特性仍不明确。此外,超过100种GPCRs仍属于孤儿受体,因其尚未被匹配到内源性配体5。因此,GPCR配体筛选在去孤儿化和药物开发中至关重要,它为先导化合物的发现与优化,乃至进入临床试验阶段,铺平了道路。
G蛋白偶联受体(GPCR)配体筛选的传统方法通常分为两类:依赖G蛋白的功能性检测和不依赖G蛋白的功能性检测6。GPCR信号转导由异源三聚体G蛋白(Gαβγ)调控,其激活机制是Gα亚基上结合的GDP被GTP取代7。活化受体的信号通过G蛋白经由第二信使(如cAMP、钙离子、DAG和IP3)传递,从而在下游效应分子中介导信号转导8。研究人员已利用G蛋白信号通路所产生的功能性效应,开发出能够反映受体激活状态的基于细胞的检测方法。这些方法可检测G蛋白信号通路中的近端(直接)或远端(间接)事件,最常用于GPCR配体筛选,并主要应用于去孤儿化研究6。直接检测GPCR介导的G蛋白激活的检测方法包括[35S]GTPγS结合实验,该实验通过测量放射性标记且不可水解的GTP类似物与Gα亚基的结合来评估激活程度;以及福斯特/生物发光共振能量转移(FRET/BRET)探针,用于监测GPCR与Gα之间以及Gα与Gγ之间的相互作用,近年来这类技术的应用日益广泛9,10。监测远端事件的检测方法是GPCR表型分析中最常用的工具;例如,cAMP和IP1/3检测可测量细胞内依赖G蛋白的第二信使的累积,而钙离子([Ca2+])流检测及涉及G蛋白激活相关特定反应元件(如CRE、NFAT-RE、SRE、SRF-RE)的报告基因检测,则用于分析信号级联中更下游的事件11。尽管上述大多数检测方法均可实现高通量操作,具有较高的灵敏度,并具备某些特定检测的优势(例如,在GTPγS结合实验中可区分完全激动剂、部分激动剂、中性拮抗剂和反向激动剂,或[Ca2+]和IP1/3检测可在活细胞中进行以保持细胞功能)6,但遗憾的是,目前尚无任何依赖G蛋白的方法适用于对整个可成药GPCR组进行全面检测。这主要是由于多种G蛋白亚家族天然地与GPCR偶联,导致信号在多个级联通路中传递,且孤儿GPCR的G蛋白偶联方式尚不明确。为缓解这一问题,研究人员已开发出一些检测方法,通过强制使G蛋白广泛偶联并统一采用单一信号读出方式(如cAMP或Ca2+)来实现检测,但其中大多数方法通量较低12。
GPCR 生命周期的一个重要方面是终止依赖G蛋白的信号传导,这一过程主要通过募集 β-arrestin 来实现,β-arrestin 可诱导 G 蛋白解离,最终使受体脱敏,并靶向网格蛋白包被的内吞作用13。β-arrestin 最广泛表达的亚型是非视觉型 β-arrestin1 和 β-arrestin2,也分别称为 arrestin-2 和 arrestin-314。由此发展出不依赖G蛋白的基于细胞的检测方法,为GPCR配体筛选增添了新的维度;受体转位、无标记全细胞检测以及 β-arrestin 募集检测均为其中典型代表。GPCR转位检测利用荧光标记的配体或靶向受体的共内化抗体15,而无标记全细胞检测则使用生物传感器,将配体结合引发的细胞变化转化为可量化的输出信号,如电学或光学信号16。值得注意的是,经典的GPCR-β-arrestin相互作用使β-arrestin募集检测成为功能性检测手段中极具吸引力的工具17。Tango系统由Barnea等人在十年前首次开发,涉及引入三种外源性遗传元件:一种由β-arrestin2与烟草蚀刻病毒蛋白酶(TEVp)融合而成的蛋白;一种四环素转录激活因子(tTA),其通过烟草蚀刻病毒蛋白酶切割位点(TEVcs)连接至GPCR,并在其上游包含血管加压素V2受体C末端的一段序列(V2 tail),以促进arrestin的募集;以及一种报告基因荧光素酶,其转录由tTA转录因子转入细胞核后启动,而tTA在β-arrestin2募集后从膜锚定状态释放(图1)18。随后可通过检测发光信号定量评估GPCR激活及β-arrestin2募集情况。一个显著区别在于,尽管受体转位和无标记全细胞方法通量相对较低,Tango系统则具备多项优势,包括针对目标受体的特异性读出以及因信号整合带来的高灵敏度,使其适用于大规模配体筛选18。
鉴于这些战略特性,Kroeze 等人开发了 PRESTO-Tango(Parallel Receptor-ome Expression and Screening via Transcriptional Output-Tango),这是一个高通量、开源的平台,利用 Tango 方法以平行且同步的方式对可成药的 GPCR 组进行分析19。该平台利用 β-arrestin2 几乎可被招募至所有 GPCR 的"广泛性"特性,成为首个基于细胞的功能性检测方法,能够在几乎所有非嗅觉 GPCR(包括孤儿受体)上,不依赖 G 蛋白亚家族偶联,快速开展小分子化合物的"初筛"。
访问受限。请登录或开始试用以查看此内容。
方案
1. 初筛:细胞培养与铺板
- 使用电子多通道移液器或试剂分配器,在白色或黑色384孔光学底板中每孔加入20 μL浓度为25 μg/mL的聚-L-赖氨酸(PLL)储备液,以制备PLL包被的培养板。室温孵育0.5–2 h。
注意:若使用黑色384孔板,其背景信号将低于白色板。建议使用黑色板以减少相邻孔之间的发光串扰。 - 为保存包被板并洗去多余的PLL,将PLL溶液在水槽上方轻甩去除,于纸巾上轻拍干燥,然后使用电子多通道移液器或试剂分配器每孔加入40 μL稀释后的1×抗生素-抗真菌素溶液。将PLL包被板储存在4 °C,直至准备进行铺板。
- 将HTLA细胞(由Dr. Richard Axel惠赠)——一种稳定表达β-arrestin2-TEV和tTA驱动的荧光素酶的人胚肾细胞系(HEK293T)——在含5%胎牛血清、5%小牛血清、2.5 μg/mL嘌呤霉素、50 μg/mL潮霉素、100 U/mL青霉素和100 μg/mL链霉素的完全杜尔贝科改良伊格尔培养基(DMEM)中,于37 °C、含5% CO2的湿化培养箱中培养。
- 将HTLA细胞在150 mm培养皿中培养,每周传代两次,传代稀释比例为1:10,最佳传代次数为5–25次。根据初筛实验的规模,确保在384孔板铺板当天有足够的150 mm培养皿达到汇合状态。
注意:HTLA细胞传代次数超过25次可能导致活力下降,从而产生次优结果。 - 为初筛实验铺HTLA细胞,用1×磷酸盐缓冲液(PBS,pH 7.4)轻轻冲洗汇合的150 mm培养皿。加入约6 mL 0.05%胰蛋白酶/0.53 mM EDTA使细胞脱落,并转移至离心管中,加入至少等体积的完全杜尔贝科改良伊格尔培养基(DMEM)以中和胰蛋白酶。
- 在500 × g条件下离心HTLA细胞3 min,将细胞沉淀重悬于完全DMEM中,细胞密度为0.22 × 10⁶ cells/mL,重悬时省略2.5 μg/mL嘌呤霉素和50 μg/mL潮霉素的添加,因其可能降低转染效率。
- 将所需数量的384孔PLL包被板在37 °C预热,以备铺细胞。将384孔PLL包被板中的1×抗生素-抗真菌素储存液在水槽上方轻甩去除,并在纸巾上轻拍干燥。
- 使用电子多通道移液器每孔加入45 μL浓度为0.22 × 10⁶ cells/mL的HTLA细胞悬液,使最终细胞密度为每孔10,000个细胞,完成细胞铺板。将培养板在37 °C孵育过夜。若需同日进行转染,则以每孔16,000个细胞的密度铺板,并在4 h后进行转染。
注意:为获得高转染效率,细胞汇合度以50–70%为最佳。
2. 初筛:DNA 培养板制备与转染
- 为准备用于转染的384孔DNA源板(如图2所示),将编码目标GPCR-Tango构建体的质粒cDNA分配至96孔板中,每孔对应一种不同的GPCR。质粒DNA应悬浮于0.1x Tris-EDTA(TE)缓冲液中,浓度为50 ng/μL。
注意:96孔DNA板可密封后储存于-20 °C,并可用于多次筛选实验。所有编码GPCR-Tango构建体的cDNA均可商业获取(参见材料表),并已克隆至pcDNA3.1新霉素质粒中。PRESTO-Tango GPCR试剂盒包含四个96孔板,每个板包含80种GPCR、若干空载体孔作为阴性对照、多巴胺受体D2(DRD2)孔作为阳性对照,以及编码荧光蛋白(YFP)的质粒孔用于监测转染效率。 - 使用多通道移液器,手动将DNA溶液从96孔板转移至384孔DNA源板,每384孔加入10 μL。为确保实验的每种条件均以四重复进行检测,96孔板的一半(A–D行或E–H行)将通过将每种GPCR分配至两个象限(第一象限:-化合物,第二象限:+化合物)来覆盖整个384孔板,使得同一种GPCR在384孔板中转染至8个孔(参见图2作为参考)。
- 按照Jordan等20所述的磷酸钙沉淀法,配制以下转染试剂:0.1x TE缓冲液(1 mM Tris-HCl和0.1 mM EDTA);2.5 M CaCl2溶液;2x Hepes缓冲液,pH 7.05(50 mM HEPES,280 mM NaCl,1.5 mM Na2HPO4)。所有溶液均通过过滤灭菌,并储存于4 °C。转染当天,使用前将试剂恢复至室温。
- 将2.5 M CaCl2储存液用0.1x TE缓冲液按1:8稀释,得到终浓度为0.313 M CaCl2的溶液,并涡旋混匀。向384孔DNA源板中每孔加入40 μL 0.313 M CaCl2,并使用手动多通道移液器或自动台式384通道移液器上下吹打混匀。
- 向384孔DNA源板中每孔加入50 μL 2x Hepes缓冲液,再次上下吹打混匀,静置1分钟;每个384孔中的DNA/转染混合物体积足以用于九块384孔板的转染,具体数量取决于需测试的化合物数目。从384孔DNA源板中取10 μL DNA/转染混合物加入已接种HTLA细胞的孔中,于37 °C孵育过夜。
3. 初筛:细胞刺激
- 24 小时后,通过轻轻弹击 384 孔板至水槽上方,并在纸巾上轻拍,或使用吸液头,将转染后的细胞培养基去除。缓慢加入 40 μL 饥饿培养基(含 1% 透析胎牛血清 (dFBS) 和 1× 抗生素/抗真菌剂的 DMEM),注意避免直接接触细胞。
- 将目标化合物以 3× 浓度(细胞板中最终药物浓度为 1×)吸取 20 μL 加入交替排列的孔中(+)刺激组,非化合物组(-)交替孔中加入 20 μL 溶剂缓冲液。将细胞板放回 37 °C、5% CO2 培养箱中,孵育至少 16 小时。
4. 初筛:发光检测
- 配制Glo试剂(源自Baker和Boyce的改良方法)21108 mM Tris–HCl;42 mM Tris-Base;75 mM NaCl;3 mM MgCl2;5 mM 二硫苏糖醇(DTT);0.2 mM 辅酶A;0.14 mg/ml D-荧光素;1.1 mM ATP;0.25% v/v Triton X-100;2 mM 连二亚硫酸钠
注意:除D-荧光素外,其他试剂的储备液均可预先配制,D-荧光素需每次使用前以粉末形式新鲜加入Glo试剂中。若使用黑色培养板,D-荧光素的浓度可增至0.25 mg/mL。 - 刺激后16–24小时,将转染细胞培养板轻轻在水槽上方倾倒,弃去培养基,随后轻拍平板底部以去除残留液滴,再将平板置于纸巾上吸干。加入 20 μL/well 加入Glo试剂,室温孵育5–20分钟。使用微孔板发光检测仪读板,每孔积分时间为1秒。
5. 初筛:数据分析
- 将来自发光计数仪的保存文件导出为电子表格;结果将以相对发光单位(RLU)记录。根据384孔板的布局,使用以下公式计算每个受体的激活程度(倍数变化):
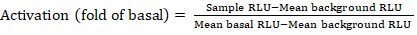
注:此处 Sample RLU 指刺激孔(+化合物)象限中四个重复孔中每一个的数值,Mean background RLU 指板上阴性对照孔的平均值,Mean basal RLU 指同一受体未处理孔象限(-化合物)的平均值。此外,需计算四个数据点的标准差以验证结果质量。建议对倍数变化的均值进行 log2 转换,以校正可能存在的异方差性;选择 log2 作为底数是一种实用方法,有助于识别阳性信号。根据经验设定阳性信号的阈值;需注意,某些受体在完全激动剂作用下可能仅有约2倍的增加,而其他受体则可能高达40倍的增加。 - 根据实验结果,筛选出可能为阳性的 GPCR,用于后续的二次筛选。
6. 二次筛选:细胞接种与转染
- 将 HTLA 细胞以总细胞密度为 5 × 10⁶ 个细胞、11 mL 完全培养基(4.55 × 10⁵/mL)的条件接种于 100 mm 培养皿中,37 °C 培养 24 小时。若需同日转染,则以 7.5 × 10⁶ 个细胞的密度接种,并于 4 小时后进行转染。
- 将用于磷酸钙沉淀的试剂提前平衡至室温。在离心管中加入 450 μL 0.1× TE 缓冲液与 50 μL 2.5 M CaCl2,迅速涡旋混匀;上述体积适用于一个 100 mm 培养皿,依据其培养液体积而定。
- 在另一离心管中,将 500 μL TE/CaCl2 溶液加入 10 μg GPCR cDNA 中,涡旋混匀。随后加入 500 µL 2× Hepes 缓冲液,剧烈震荡(切勿涡旋),混匀后孵育 1 分钟。
注意:可将 1 µg 编码荧光蛋白(如 YFP、mCherry 等)的质粒与 9 µg GPCR cDNA 共同转染,总质粒量为 10 μg。荧光蛋白用于监测转染效率,此微量表达不会干扰实验结果。 - 短暂孵育后立即将 1 mL 混合液逐滴加入细胞中。轻轻前后摇动培养皿使沉淀均匀分布,注意避免旋转混匀,随后于 37 °C 培养 24 小时。
- 次日,通过荧光细胞成像仪观察荧光蛋白表达情况以评估转染效率;转染覆盖率超过 50% 为理想结果。
- 将所需数量的 384 孔 PLL 包被板提前放入 37 °C 培养箱中预热。将 384 孔 PLL 包被板中的 1× 抗生素-抗真菌剂储存液在水槽上方轻弹去除,并在纸巾上轻拍使其干燥。
- 用 Versene 溶液(1× PBS,pH 7.4;0.53 mM EDTA)轻柔冲洗转染后的细胞,加入 3 mL 0.05% 胰蛋白酶/0.53 mM EDTA 使细胞脱离。将细胞悬液转移至含有至少等体积完全 DMEM 培养基的离心管中以中和胰蛋白酶活性。
- 以 500 × g 离心 3 分钟收集细胞,用饥饿培养基重悬细胞至密度为 0.4 × 10⁶ 个细胞/mL。使用电子多通道移液器向 384 孔 PLL 包被板中每孔加入 45 μL 细胞悬液,使最终接种密度为 25,000 个细胞/孔。将培养板放回 37 °C 培养箱中至少孵育 4 小时,确保细胞充分贴壁后再进行刺激处理。
7. 二次筛选:用于16点(半对数)剂量曲线的药物板制备
- 在96孔板中,除最后一行(H行)外,在各孔中加入270 μL的1× HBSS药物缓冲液(1× Hank's平衡盐溶液[HBSS]、20 mM HEPES pH 7.4、1×抗生素-抗真菌剂),如图4所示。
注意:对于多肽、胶体分子以及水溶性差的化合物,建议添加0.1–1% BSA。为防止药物氧化,还可加入最多0.01%的抗坏血酸。 - 从药物储备液中,通过计算终浓度为3倍(细胞板中的终浓度为1倍)来配制药物溶液(称为“高”浓度)。例如,若剂量-反应曲线的最高浓度为10 μM,则“高”浓度应配制为30 μM。将300 μL“高”浓度溶液加入H行的各孔中。
- 在另一离心管中,配制“低”浓度溶液,即“高”浓度除以3.16(半对数)。根据前述示例,“低”浓度为9.49 μM。将300 μL“低”浓度溶液加入H行中紧邻“高”浓度孔的孔内。
注意:H行所需的96孔总数取决于细胞种类和刺激条件的数量。四个孔(两个“高”浓度和两个“低”浓度)足以提供足够的药物溶液,用于刺激一整块384孔板。 - 通过移液器将H行“高”和“低”浓度孔中的30 μL药物溶液转移至前一行(G行),并通过手动反复吹打或推荐使用带“移液-混合”功能的电子多通道移液器进行混匀。重复此步骤,依次向前至第一行(A行),即最稀释的行,每次稀释后更换吸头。
注意:如需要,可在到达A行前停止梯度稀释,以保留不含药物的内部对照,即“真实零”浓度。 - 以图4为参考,通过移液将96孔板中“低”浓度列的稀释液各20 μL加入已接种细胞的384孔板的A–O行,同时将“高”浓度列的稀释液各20 μL加入B–P孔。将板在37 °C下孵育至少16小时。
8. 二次筛选:发光检测与数据分析
- 转染后16–24小时,将384孔板轻轻在水槽上方倾倒,轻拍其底部以去除细胞培养基,并在纸巾上吸干。每孔加入20 μL Glo试剂,室温避光孵育5–20分钟。使用微孔板发光检测仪读取数据,每孔积分时间为1秒。
- 将发光检测仪保存的数据文件导出为电子表格格式;结果以相对发光单位(RLU)记录。将384孔板的数据导入统计分析软件,利用其内置的XY分析功能进行非线性回归曲线拟合。选择内置的三参数剂量-反应刺激函数“Log(激动剂) vs. 反应(三参数)”,
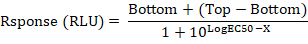
注意:此处Top和Bottom分别为Y轴单位下的平台值,即最大反应值和基础水平,EC50为激动剂产生Top与Bottom之间50%反应时的浓度,X表示激动剂的对数浓度。该模型假设剂量-反应曲线具有标准的Hill斜率为1。
访问受限。请登录或开始试用以查看此内容。
结果
采用本文所述的PRESTO-Tango方案,使用嗜铬颗粒(CG)提取物对168种非嗅觉G蛋白偶联受体(GPCR)靶点进行了筛选,其中大多数为孤儿受体。该提取物的谱型分析基于Barnea等人18设计的原理,通过检测所选受体上β-阻联蛋白2(β-arrestin2)的募集情况来完成(图1)。将感兴趣的GPCR质粒cDNA从PRESTO-Tango GPCR试剂盒中取出,并按所需布局组装至两个96孔板中。总共转染了四块接种HTLA细胞的384孔板,因为每个96孔DNA板的两半分别扩展为一个完整的384孔板,从而使每个受体在两个象限中被转染(共八个384孔板)。其中两个象限之一用CG提取物进行刺激;换言之,交替的C–D、G–H、K–L和O–P行代表(+)刺激条件(图2)。在初筛检测的168个GPCR中,仅有两个受体可被视为潜在的活性靶点,分别为多巴胺受体D3(DRD3)和视蛋白5(OPN5)。DRD3产生的log2倍变化值显著,达4.70,而OPN5的响应略低,为2.39,两者均...
访问受限。请登录或开始试用以查看此内容。
讨论
构象动态变化的G蛋白偶联受体(GPCR)是信号转导的关键分子。这些七次跨膜受体的配体结合口袋具有特定的理化性质,加之其重要的生理功能,凸显了开发GPCR配体筛选工具的必要性。如上所述,PRESTO-Tango检测方法具有快速、灵敏且操作简便的优点,适用于药物研发。该检测不仅能测量激动剂诱导的受体激活,还可用于量化拮抗剂和别构调节剂的活性19。鉴于功能选择性这一概念——即不同结构的药物分子可在同一受体上引发不同的信号级联反应——通过G蛋白依赖性检测评估G蛋白通路的激活,并与PRESTO-Tango检测中的β-阻遏蛋白招募结果进行比较,有助于设计出副作用更少的先导化合物。值得注意的是,由于该方法不依赖于G蛋白偶联的检测,因此能够识别那些在传统G蛋白依赖性检测中无法发现的孤儿GPCR的偶联伙伴。
为确保 PRESTO-Tango 筛选的一致性和稳健性,必须谨慎对待实验方案的每一步骤,因为该平台的特性会放大任何引入的干扰因素。当然,所有高通量筛选(HTS)实验中通用的一些基本措施也需加以考虑,例如使用同一批次/配方的试剂,以确保在整个实验过程...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无竞争利益。
致谢
本工作由加拿大卫生研究院(CIHR 资助号 #MOP142219)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 384孔光学底板,聚苯乙烯聚合物基底,细胞培养处理,黑色,带盖,无菌 | NUNC | 12-566 | |
| 384孔光学底板,聚苯乙烯聚合物基底,细胞培养处理,白色,带盖,无菌 | NUNC | 12-566-1 | |
| 384孔圆底,聚丙烯材质,未处理,蓝色,非无菌,不带盖 | ThermoFisher | 12-565-390 | |
| 抗生素-抗真菌剂 | Wisent | 450-115-EL | |
| D-荧光素钠盐 | GoldBio | LUCNA | |
| 含L-谷氨酰胺、4.5 g/L葡萄糖和丙酮酸钠的DMEM培养基 | Corning | 10-013-CV | |
| Eppendorf Xplorer,12通道,可调式,15–300 µL | Eppendorf | 4861000155 | |
| Eppendorf Xplorer,12通道,可调式,5–100 µL | Eppendorf | 4861000139 | |
| Matrix Platemate 2x3 | ThermoFisher | 801-10001 | |
| MicroBeta 1450 Wallac | Perkin Elmer | ||
| 青霉素-链霉素 | Wisent | 450-201-EL | |
| 聚-L-赖氨酸氢溴酸盐 | Millipore-Sigma | P2636-500MG | |
| Roth Lab PRESTO-Tango GPCR试剂盒 | Addgene | Kit #1000000068 |
参考文献
- Liapakis, G., et al. The G-protein coupled receptor family: actors with many faces. Current pharmaceutical design. 18 (2), 175-185 (2012).
- Pierce, K. L., Premont, R. T., Lefkowitz, R. J. Seven-transmembrane receptors. Nature Reviews Molecular Cell Biology. 3 (9), 639-650 (2002).
- Kroeze, W. K., Sheffler, D. J., Roth, B. L. G-protein-coupled receptors at a glance. Journal of cell science. 116, Pt 24 4867-4869 (2003).
- Rask-Andersen, M., Almén, M. S., Schiöth, H. B. Trends in the exploitation of novel drug targets. Nature Reviews Drug Discovery. 10 (8), 579-590 (2011).
- Ngo, T., et al. Identifying ligands at orphan GPCRs: current status using structure-based approaches. British journal of pharmacology. 173 (20), 2934-2951 (2016).
- Zhang, R., Xie, X. Tools for GPCR drug discovery. Acta pharmacologica Sinica. 33 (3), 372-384 (2012).
- Kimple, A. J., Bosch, D. E., Giguere, P. M., Siderovski, D. P. Regulators of G-Protein Signaling and Their G Substrates: Promises and Challenges in Their Use as Drug Discovery Targets. Pharmacological Reviews. 63 (3), 728-749 (2011).
- Wettschureck, N., Offermanns, S. Mammalian G Proteins and Their Cell Type Specific Functions. Physiological Reviews. 85 (4), 1159-1204 (2005).
- Denis, C., Saulière, A., Galandrin, S., Sénard, J. -M., Galés, C. Probing heterotrimeric G protein activation: applications to biased ligands. Current Pharmaceutical Design. 18 (2), 128-144 (2012).
- Yin, H., et al. Lipid G protein-coupled receptor ligand identification using beta-arrestin PathHunter assay. The Journal of Biological Chemistry. 284 (18), 12328-12338 (2009).
- Cheng, Z., et al. Luciferase Reporter Assay System for Deciphering GPCR Pathways. Current Chemical Genomics. 4, 84-91 (2010).
- Roth, B. L., Kroeze, W. K. Integrated Approaches for Genome-wide Interrogation of the Druggable Non-olfactory G Protein-coupled Receptor Superfamily. The Journal of Biological Chemistry. 290 (32), 19471-19477 (2015).
- Jean-Charles, P. -Y., Kaur, S., Shenoy, S. K. G Protein-Coupled Receptor Signaling Through β-Arrestin-Dependent Mechanisms. Journal of Cardiovascular Pharmacology. 70 (3), 142-158 (2017).
- Smith, J. S., Rajagopal, S. The β-Arrestins: Multifunctional Regulators of G Protein-coupled Receptors. The Journal of Biological Chemistry. 291 (17), 8969-8977 (2016).
- Böhme, I., Beck-Sickinger, A. G. Illuminating the life of GPCRs. Cell Communication and Signaling. 7 (1), 16(2009).
- Fang, Y. Label-Free Receptor Assays. Drug discovery today. Technologies. 7 (1), 5-11 (2011).
- Wang, T., et al. Measurement of β-Arrestin Recruitment for GPCR Targets. Assay Guidance Manual. Eli Lilly & Company and the National Center for Advancing Translational Sciences. , (2004).
- Barnea, G., et al. The genetic design of signaling cascades to record receptor activation. Proceedings of the National Academy of Sciences of the United States of America. 105 (1), 64-69 (2008).
- Kroeze, W. K., et al. PRESTO-Tango as an open-source resource for interrogation of the druggable human GPCRome. Nature Structural & Molecular Biology. 22 (5), 362-369 (2015).
- Jordan, M., Schallhorn, A., Wurm, F. M. Transfecting Mammalian Cells: Optimization of Critical Parameters Affecting Calcium-Phosphate Precipitate Formation. Nucleic Acids Research. 24 (4), 596-601 (1996).
- Baker, J. M., Boyce, F. M. High-throughput functional screening using a homemade dual-glow luciferase assay. Journal of Visualized Experiments. (88), 50282(2014).
- Li, H., Eishingdrelo, A., Kongsamut, S., Eishingdrelo, H. G-protein-coupled receptors mediate 14-3-3 signal transduction. Signal Transduction and Targeted Therapy. 1 (1), 16018(2016).
- Walther, C., Ferguson, S. S. G. Minireview: Role of intracellular scaffolding proteins in the regulation of endocrine G protein-coupled receptor signaling. Molecular Endocrinology. 29 (6), Baltimore, Md. 814-830 (2015).
- Gurevich, E. V., Benovic, J. L., Gurevich, V. V. Arrestin2 expression selectively increases during neural differentiation. Journal of Neurochemistry. 91 (6), 1404-1416 (2004).
- Shaikh, S., Nicholson, L. F. B. Optimization of the Tet-On system for inducible expression of RAGE. Journal of Biomolecular Techniques JBT. 17 (4), 283-292 (2006).
- Blau, H. M., Rossi, F. M. Tet B or not tet B: advances in tetracycline-inducible gene expression. Proceedings of the National Academy of Sciences of the United States of America. 96 (3), 797-799 (1999).
- Roche, O., et al. Development of a Virtual Screening Method for Identification of "Frequent Hitters" in Compound Libraries. Journal of Medicinal Chemistry. 45 (1), 137-142 (2002).
访问受限。请登录或开始试用以查看此内容。
重印与许可
