本文描述了一种实验方案,可用于对暴露于不同宏量营养素质量食物的黑腹果蝇(Drosophila melanogaster)幼虫在特定时间间隔内摄食量进行比色法定量分析。该检测方法应用于神经元热遗传学筛选的背景下。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
使用 Drosophila 幼虫进行热遗传神经元筛选时宏量营养素摄入量的定量分析
* These authors contributed equally
本文内容
勘误通知
Important: There has been an erratum issued for this article. View Erratum Notice
摘要
摘要
觅食与摄食行为使动物能够获取对其生长发育、健康和适应性至关重要的能量和营养物质。研究这些行为的神经调控机制,对于理解营养稳态背后的生理与分子机制至关重要。利用遗传操作便捷的动物模型(如线虫、果蝇和鱼类)可极大促进此类研究。在过去十年中,果蝇 果蝇 黑腹果蝇 已被神经生物学家广泛用作研究摄食与觅食行为神经调控机制的有力动物模型。尽管其价值毋庸置疑,但大多数研究集中于成蝇。本文描述了一种实验方案,利用结构更为简单的幼虫神经系统,研究当幼虫暴露于蛋白质与碳水化合物含量不同的食物时,调控摄食行为的神经基础。本方法基于定量比色法非选择性摄食实验,并结合神经元热遗传激活筛选。检测指标为幼虫在1小时时间内摄取三种不同蛋白质/碳水化合物(P:C)比例、染料标记食物的量。该方案的有效性已在幼虫神经遗传学筛选背景下得到验证 果蝇通过鉴定调控不同宏量营养素质量饮食摄入量的候选神经元群体,我们还能够将所测试的基因型分类并归入不同的表型类别。除了简要回顾文献中现有的方法外,本文还讨论了这些方法的优势与局限性,并就如何将本方案调整适用于其他特定实验提供了一些建议。
引言
所有动物都依赖均衡饮食来获取生存、生长和繁殖所必需的营养物质1。摄食种类和摄食量的选择受到多种相互作用因素的影响,这些因素与动物的内部状态(如饱腹程度)以及环境条件(如食物质量)密切相关2,3,4,5。蛋白质和碳水化合物是两种主要的宏量营养素,其摄入的平衡对于维持动物的生理功能至关重要。因此,理解调控摄食行为并维持这两种宏量营养素平衡摄入的神经机制具有重要意义。因为寿命、繁殖力和代谢健康等生命史特征直接受到蛋白质摄入水平的影响6,7,8,9,10。
使用那些在进化上与包括哺乳动物在内的复杂动物具有保守摄食行为的、更简单且易于操作的生物体,对于此类研究至关重要。重要的是,这些较简单的动物模型为我们提供了一个成本更低、伦理争议更少且技术上更高效的体系,以解析复杂的生物学问题。在过去的几十年中,果蝇(Drosophila)凭借其强大的遗传工具、复杂而刻板的行为,以及在外周系统和营养感知机制方面与哺乳动物保守的结构,已成为行为神经生物学家研究的有力模型11。最终的目标是,通过理解这种神经系统更为简单的动物中食物摄入的调控机制,我们能够逐步揭示人类进食障碍背后潜在的神经功能异常。
研究摄食行为的神经基础在很大程度上依赖于能够在操控动物神经活动的同时,同步测量其食物摄入量。由于果蝇摄入的食物量极微,准确量化其摄食量极具挑战性,目前所有可用的方法均存在显著局限性。因此,通常采用多种互补方法相结合的方式作为金标准12。成年果蝇长期以来被广泛用作遗传学与行为学研究的模型。然而,果蝇幼虫也为探究编码摄食行为的神经基础提供了重要机会。Drosophila 幼虫的中枢神经系统(CNS)约含12,000个神经元,相较于成虫约150,000个神经元的复杂系统,其结构显著简化。这种复杂性的降低不仅体现在数量上,也体现在功能层面,因为幼虫的行为依赖于更简单的运动功能和感觉系统。尽管其神经系统看似简单,幼虫仍能表现出完整的摄食行为,目前已有一些用于量化 Drosophila 幼虫食物摄入的方法被报道5,13,14,15。结合神经元活动的操控手段,Drosophila 幼虫可成为研究食物摄入神经调控机制的高效且易于操作的模型。
本文提供了一种详细的实验方案,用于定量测定在不同宏量营养素质量饮食条件下幼虫的食物摄入量。这些饮食被称为宏量营养素平衡饮食,其蛋白质和碳水化合物含量不同,具体体现在蛋白质与碳水化合物(P:C)比例上的差异:1:1(高蛋白饮食)、1:4(中等饮食)和1:16(低蛋白饮食),如图1A所示。简言之,采用三种等热量的、以蔗糖-酵母(SY)为基础并添加蓝色食用染料的饮食,建立了定量的无选择摄食实验。由于酵母提取物和蔗糖分别作为蛋白质和碳水化合物来源,且两者均含有碳水化合物,因此通过调整这两种成分的比例来实现不同的P:C比值,如先前所述16,并如图1B所示。该实验方案的示意图,展示了主要的实验步骤,见图2。
本方案旨在研究特定神经元群体在不同蛋白质与碳水化合物比例(P:C)饮食条件下对幼虫摄食水平调控的作用,并应用于热激遗传神经筛选。实验中使用了一种来自瞬时受体电位(TRP)家族的、已被充分表征的神经遗传学工具: 果蝇 瞬时受体电位通道(dTRPA1)是一种温度和电压门控阳离子通道,当环境温度升至25 ˚C以上时,可引发动作电位的产生。17. 为了表达 dTRPA1 转基因,我们利用了基于 Gal4 的品系 顺式-调控区域来自 果蝇 基因组,由鲁宾实验室在珍利亚研究园区的FlyLight项目背景下建立18,19.
尽管本方案是在激活筛选的背景下建立的,但实验人员可轻松将其调整以满足其他特定需求或研究兴趣,例如使用温度敏感性神经元抑制因子ShibireTS20替代dTRPA1进行抑制筛选。此类及其他适应性修改已在方案和讨论部分中加以阐述。
访问受限。请登录或开始试用以查看此内容。
方案
1. 蔗糖-酵母(SY)饮食的制备
- 称取用于宏量营养素平衡和L3幼虫饲养饲料的所有干燥成分(琼脂、酵母、蔗糖)。每升饲料所需各成分的用量(克)见图1B。
注意:需考虑每60 mm培养皿约需13 mL饲料。 - 将所有成分溶解于无菌蒸馏水中(使用约为配制饲料所需总水量的50%),搅拌培养基5–10分钟。
- 高压灭菌50分钟。
- 待培养基冷却后,向饲料中加入尼泊金和丙酸溶液,终浓度(v/v)分别为3%和0.3%。向宏量营养素平衡饲料中加入蓝色食用染料,终浓度(v/v)为1%。用蒸馏水补足至总体积。
- 小心地将饲料倒入60 mm培养皿中,确保每个培养皿中的饲料量大致相同。用标签标明各培养皿中饲料的P:C比。
注意:宏量营养素平衡饲料应在摄食实验当天配制。若无法当天配制,可将配好的饲料置于密封容器中,在4 ˚C保存,最长不超过3天。保存时间过长会导致饲料过于干燥坚硬,幼虫无法钻入培养基中。
2. 亲本品系的遗传杂交
注意:使用 Gal4/UAS 系统21 建立遗传杂交。在本方案中,为了激活特定神经元群体的神经功能,使用UAS dTRPA1品系的雌性处女蝇17 用于与来自 Janelia Gal4 品系的雄性杂交(图2A)。所用的遗传对照是dTRPA1品系与“空GAL4”品系杂交产生的后代,后者在用于构建Rubin Gal4文库的载体中含有Gal4,但无调控片段(attP2)。22. 为了促进神经元抑制,使用编码ShibireTS的UAS品系20 可以使用 dTRPA1 的替代物。
- 设置60 mm的胚胎收集笼,内含L3培养基平板,并添加适量活性酵母糊。
- 将5-8日龄的UAS dTRPA1雌性处女蝇与Janelia Gal4雄蝇转移至胚胎收集笼中,在25 °C、60%湿度、12小时光照/12小时黑暗循环条件下交配24-48小时(图2A)。对于60 mm胚胎收集笼,每次杂交使用约100只处女雌蝇和30只雄蝇。
- 交配期结束时,移除并丢弃遗传杂交过程中使用的L3培养基平板,更换为新鲜的L3培养基平板,用于产卵及幼虫发育阶段的同步化。
3. 三龄幼虫(L3)的制备
- 将交配后的成虫转移至新鲜的L3饲养培养基平板中,在25 °C条件下让其产卵3–4小时。图2B确保所有培养皿均标记基因型、食物的P:C比例以及产卵日期。
注意:为节省时间,可直接将产卵过程在L3饲养培养基中进行,以避免对卵的额外操作。在小规模遗传筛选实验中,可通过使用苹果汁琼脂平板来优化产卵效果。 - 在产卵期结束时,将培养板从笼子中取出,并用塑料盖盖好。如果使用酵母提取物补充L3饲养板,务必在产卵结束时清除所有残留的酵母,这一点至关重要,可避免幼虫生长期间出现喂养不均的情况。
注意:交配后的成虫可转移至新鲜的L3饲养培养基平板中,以进行更多产卵,从而获得更多实验用幼虫。同一群体成虫可在整个工作周内连续进行多次产卵。 - 估算每块培养板中的卵数,并将幼虫密度控制在每板最多200个胚胎。可通过计数培养板四分之一区域内的胚胎数量来估算总数。
注意:培养皿中幼虫过密会延缓其发育,并影响幼虫的摄食行为。 - 在18 ˚C(允许温度)、60%湿度及12:12光暗循环条件下培养L3饲养板,使幼虫生长9天(图2B).
- 在产卵后第9天(AEL),从每种待测基因型(及重复组)中分别收集三组,每组10条L3幼虫。同时,为“无染料食物”对照组收集每组10条L3幼虫。幼虫收集应于与产卵相同的时间段内进行(例如,若产卵发生在上午10点至下午2点之间,则应在产卵后第9天的相同时段内收集幼虫),并尽可能轻柔地使用#5镊子或超细镊子操作。随后按照下一步(3.6)所述直接转移幼虫。
注意: "无染料食品" 对照组动物是指在摄食实验中给予不含蓝色染料食物的幼虫。该对照对于消除幼虫提取物的背景吸光度至关重要。 - 将收集的实验幼虫转移至含有1 mL水的塑料培养皿称量舟中。按照所提供的说明操作,确保收集的是L3期幼虫而非L2期幼虫。 图3.
注意:将L3幼虫收集到含有水或1×磷酸盐缓冲液(PBS)的塑料小船中,对于在 feeding assay 开始前保持幼虫充分水合至关重要。当同时收集来自不同基因型的多个实验组L3幼虫时,此步骤尤为重要。应记录每组幼虫的收集顺序,以尽量减少各组在饥饿处理时间上的差异。本步骤中使用塑料小船有利于后续可选步骤4.3的操作,因为它可使幼虫直接漂浮进入水浴中。
4. 热遗传学激活与无选择摄食实验
注意:建议在每天大致相同的时间进行喂食实验,以尽量减少与昼夜节律相关的可能变异。同时,应始终平行进行对照实验(将“空Gal4”品系与UAS dTRPA1杂交所得的子代,以及取食“无染料食物”的幼虫),与目标基因型一同测试。
- 将培养箱设置为 30 ˚C(非许可温度),并保持高湿度(至少 65%),以避免实验过程中幼虫脱水。
- 开始进食实验前,将实验用培养皿在 30 ˚C 下预热 30 分钟,以平衡其温度。
- (可选)将实验组幼虫置于 37 ˚C 水浴中热激 2 分钟。此步骤需将幼虫连同盛有少量水的塑料称量舟一同进行。
注意:该步骤旨在通过促进神经元自进食实验开始时即发生放电,从而增强神经元的激活。 - 准备多个计时器并设定为 1 小时。所需计时器的数量取决于正在测试的实验组数量以及实验人员操作幼虫的熟练程度。
注意:使用多个计时器对于确保所有基因型的实验持续时间一致至关重要。 - 小心倒掉称量舟中的水,使用湿润的软毛刷轻轻将 L3 期幼虫从称量舟转移至实验培养皿的中央。盖上培养皿盖子,并为每个培养皿(或每组培养皿)启动一个计时器,以确保准确进行 1 小时的进食过程。
- 让幼虫在 30 ˚C 黑暗条件下进食 1 小时(图 2C)。
注意:在黑暗中进行实验非常重要,可排除不同食物之间视觉线索的差异干扰,尽管所用染料浓度相同,但食物色调仍可能存在差异。 - 通过将培养皿转移至冰浴中来终止进食实验。尽量压实冰块,为培养皿提供稳定的放置表面。
注意:低温会通过抑制幼虫的钻掘和挖掘行为而促使进食结束。数分钟后,大多数幼虫将浮至食物表面,便于后续步骤中的回收。
5. 食用色素提取
- 为每组待测的10条L3幼虫准备2 mL微量离心管,每管中加入大致等量的0.5 mm玻璃珠(足以铺满微量离心管底部)和300 μL预冷甲醇。将微量离心管置于低温环境中,可使用台式冷却器保存。
警告:甲醇具有高度易燃性和毒性。操作该试剂时应遵循所有推荐的安全规程,包括在通风良好的环境中操作并佩戴腈手套。
注意:使用甲醇对于固定幼虫样本并防止体壁发生黑色素化反应至关重要。 - 使用#5镊子或轻型镊子,小心地从摄食实验平板中回收每组10条L3幼虫,并将其转移至含有少量水的实验平板盖中。轻轻冲洗幼虫以去除体表附着的食物残渣,同时避免对幼虫造成任何损伤。记录每个重复中每种基因型回收的幼虫数量,以便量化每条幼虫的平均摄食量。
注意:受伤的幼虫应予以弃用,因其体壁会发生黑色素化,不适合进行比色定量分析。 - 将L3幼虫组转移至步骤5.1中准备好的2 mL微量离心管中。
- 通过使用组织破碎仪和步骤5.1中加入的玻璃珠进行机械裂解,以裂解幼虫组织并提取肠道中的食物染料(若无组织破碎仪,可使用匀浆杵)。建议在4 °C条件下进行此步骤(图2D)。
注意:此步骤所需时间取决于所用设备。使用常规组织破碎仪时,1分钟的提取时间已足够。若时间受限,可在本步骤结束后暂停实验流程,后续再继续操作。样品可储存于-20 °C。 - 通过将2 mL微量离心管直接倒置在新的1.5 mL微量离心管上,将提取液转移至洁净的1.5 mL微量离心管中。若操作轻柔,大部分玻璃珠将保留在2 mL微量离心管底部。
- 在4 °C条件下,以最大转速离心10分钟,以清除细胞碎片。
- 将上清液收集至洁净的1.5 mL微量离心管中。若上清液中仍可见细胞碎片,则重复步骤5.6和5.7。
6. 食物摄取量的比色定量分析
- 通过将起始的蓝色染料溶液在甲醇中进行连续1:2稀释,制备标准溶液以生成校准曲线。空白对照使用纯甲醇。标准溶液的浓度取决于动物的食物摄入水平。
注意:在本研究展示的初步筛选中,由于幼虫提取物中获得的染料浓度范围为0.02至1.93 μL/mL,因此采用了一条标准曲线,该曲线通过测定甲醇中2 μL/mL蓝色染料溶液的8个连续稀释液的吸光度获得。如有需要,可根据实验样品的染料浓度调整这些溶液的浓度。 - 将100 μL的实验样品(来自步骤5.7)、标准溶液和空白对照(步骤6.1)转移至96孔微孔板的孔中,并使用酶标仪在600 nm波长下测量吸光度(图2E)。为消除背景吸光度,需测量喂食不含蓝色染料食物的幼虫所提取样品的吸光度,作为幼虫提取物的“零”点(“无染料食物对照”)。
- 生成标准曲线,并将各实验幼虫组样品测得的吸光度值与食物摄入量(体积,单位为mL)相关联。结合步骤5.2中每组收集的幼虫数量,计算每只幼虫的平均食物消耗量。
访问受限。请登录或开始试用以查看此内容。
结果
果蝇 幼虫通过摄入过量碳水化合物来调节其蛋白质摄取23 (示意图) 图 2E)。事实上,这种对蛋白质摄入的优先选择已在许多其他动物中被观察到,被称为蛋白质杠杆效应24,25.
利用这种强烈的摄食行为反应,设计了一种基于行为的筛选方法,旨在鉴定参与宏量营养素平衡的神经元群体。建立了一种无选择摄食实验,即在神经元热遗传激活条件(使用 dTRPA1)下,让L3幼虫群体(每组10只个体)在三种等热量(248 Cal/L)、添加染料且具有特定蛋白质:碳水化合物(P:C)比例(1:1、1:4 和 1:16)的食物中自由摄食1小时(图1 和 图2C)。以不同P:C比例宏量营养素饮食中的平均摄食量作为检测指标。利用Gal4/UAS系统
访问受限。请登录或开始试用以查看此内容。
讨论
通过本实验方案,可检测在热遗传学激活特定神经元群体的条件下,幼虫对两种主要宏量营养素——蛋白质和碳水化合物摄入水平的调控能力,尤其是在暴露于不同蛋白质:碳水化合物(P:C)比例饮食的情况下。该方法已应用于一项幼虫初步筛选研究中,旨在鉴定与调控不同宏量营养素质量饮食摄入相关的神经元群体。本研究还有助于证明黑腹果蝇(Drosophila)幼虫是研究摄食行为神经机制及营养稳态相关神经基础的有价值动物模型。
除了实验方案中作为注释提供的信息外,我们还想进一步讨论一些重要方面。与任何行为学实验一样,实验人员必须采取措施,尽量减少与动物行为相关的变异。一个需要特别注意的重要方面是获得发育同步的动物。使用发育阶段高度同步的早期L3幼虫,可降低动物在摄食实验中表现出的行为差异27。幼虫的同步化可通过短暂的产卵时间以及控制培养物中的幼虫密度来实现。请勿采用超过本方案中所述时间(3–4小时)的产卵时长。此外,将每培养皿的幼虫数量控制在最多200只以内,可避免发育延迟,并消除摄食行为中的额外变异。请注意,交配后的第一次产卵必须弃去,以保持...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢古尔本基安科学研究所(Instituto Gulbenkian de Ciência, IGC)为我们提供使用本实验方案中所述部分实验设备的机会。本研究得到葡萄牙科学技术基金会(FCT)的资助,项目编号为:LISBOA-01-0145-FEDER-007660、PTDC/NEU-NMC/2459/2014 和 IF/00697/2014。 La Caixa HR17-00595 资助项目由PMD负责,以及澳大利亚研究理事会未来奖学金(FT170100259)资助项目由CKM负责。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 微量离心管 | Sarstedt AG & Co. | 72.690.001 | |
| 10xPBS | Nytech | MB18201 | |
| 2.0 mL 微量离心管 | Sarstedt AG & Co. | 72.695.500 | |
| 60 mm 培养皿 | Greiner Bio-one, 奥地利 | 628161 | |
| 96 孔微孔板 | Santa Cruz Biotechnology | SC-204453 | |
| 琼脂 | Pró-vida, 葡萄牙 | ||
| 台式冷却器 | Nalgene, 美国 | Labtop Cooler 5115-0032 | |
| 蓝色食用染料 | Rayner, Billingshurst, 英国 | ||
| 细胞破碎介质 | Scientific Industries, Inc. | 888-850-6208 | (0.5 mm 玻璃珠) |
| 称量舟 | Santa Cruz Biotechnology | SC-201606 | |
| 用于 60 mm 培养皿的胚胎收集笼 | Flystuff, Scientific Laboratory Supplies, 英国 | FLY1212 (59-100) | |
| 轻质镊子 | BioQuip Products, 美国 | 4750 | |
| 果蝇品系维持用饲料 | 1 L 饲料包含:10 g 琼脂、100 g 酵母提取物、50 g 蔗糖、30 mL 尼泊金、3 mL 丙酸 | ||
| #5 镊子 | Dumont | 0108-5-PS | 标准尖头,不锈钢,11 cm |
| 培养箱 | LMS Ltd, 英国 | Series 2, Model 230 | 用于热遗传学喂养实验(30°C) |
| 培养箱 | Percival Scientific, 美国 | DR36NL | 用于幼虫发育阶段培养(19°C) |
| Janelia 品系 | Janelia Research Campus | 详细信息见表 2 | |
| 宏量营养素平衡饮食 | 成分及营养信息见图 1 | ||
| 甲醇 | VWR | CAS 号:67-56-1 | |
| 尼泊金(对羟基苯甲酸甲酯) | Sigma-Aldrich | H5501 | |
| 腈类手套 | VWR, 美国 | ||
| 冷冻离心机 | Eppendorf, 德国 | 5804 R / 序列号:5805CI364293 | |
| Rubin Gal4 品系 | Janelia Research Campus | 品系可在布卢明顿果蝇品系中心获取 | |
| ShibireTS UAS 品系 | 布卢明顿果蝇品系中心 | BDSC 号:66600 | 由 Carlos Ribeiro 研究组提供 |
| 软毛刷 | 用于分选麻醉后的果蝇 | ||
| 分光光度计酶标仪 | Thermo Fisher Scientific | Multiskan Go 51119300 | |
| 体视显微镜 | Nikon | 1016625 | |
| 蔗糖 | Sidul, 葡萄牙 | ||
| 三龄幼虫(L3)饲养饲料 | 成分及营养信息见图 1 | ||
| 计时器 | |||
| 组织研磨仪 / 珠磨机 | MP Biomedicals, 美国 | FastPrep-24 6004500 | |
| TRPA1 UAS 品系 | 布卢明顿果蝇品系中心 | BDSC 号:26264 | 在 UAS 控制下表达 TrpA1;可在 25°C 实验性激活神经元 |
| 水浴锅 | Sheldon Manufacturing Inc., 美国 | W20M-2 / 03068308 / 9021195 | |
| 酵母提取物 | Pró-vida, 葡萄牙 | 51% 蛋白质,15% 碳水化合物 |
参考文献
- Raubenheimer, D. Nature of nutrition - a unifying framework from animal adaptation to human. , (2012).
- Carvahlo, M. J. a, Mirth, C. K. Coordinating morphology with behavior during development: an integrative approach from a fly perspective. Frontiers in Ecology and Evolution. , (2015).
- Steck, K., et al. Internal amino acid state modulates yeast taste neurons to support protein homeostasis in Drosophila. Elife. 7, 31625(2018).
- Itskov, P. M., Ribeiro, C. The dilemmas of the gourmet fly: the molecular and neuronal mechanisms of feeding and nutrient decision making in Drosophila. Frontiers in Neuroscience. 7, 12(2013).
- Bjordal, M., Arquier, N., Kniazeff, J., Pin, J. P., Leopold, P. Sensing of amino acids in a dopaminergic circuitry promotes rejection of an incomplete diet in Drosophila. Cell. 156 (3), 510-521 (2014).
- Grandison, R. C., Piper, M. D., Partridge, L. Amino-acid imbalance explains extension of lifespan by dietary restriction in Drosophila. Nature. 462 (7276), 1061-1064 (2009).
- Lee, K. P., et al. Lifespan and reproduction in Drosophila: New insights from nutritional geometry. Proceedings of the National Academy of Sciences of the United States of America. 105 (7), 2498-2503 (2008).
- Levine, M. E., et al. Low protein intake is associated with a major reduction in IGF-1, cancer, and overall mortality in the 65 and younger but not older population. Cell Metabolism. 19 (3), 407-417 (2014).
- Solon-Biet, S. M., et al. The ratio of macronutrients, not caloric intake, dictates cardiometabolic health, aging, and longevity in ad libitum-fed mice. Cell Metabolism. 19 (3), 418-430 (2014).
- Piper, M. D., et al. A holidic medium for Drosophila melanogaster. Nature Methods. 11 (1), 100-105 (2014).
- Jones, W. D. The expanding reach of the GAL4/UAS system into the behavioral neurobiology of Drosophila. BMB Reports. 42 (11), 705-712 (2009).
- Deshpande, S. A., et al. Quantifying Drosophila food intake: comparative analysis of current methodology. Nature Methods. 11 (5), 535-540 (2014).
- Neckameyer, W. S. A trophic role for serotonin in the development of a simple feeding circuit. Developmental Neuroscience. 32 (3), 217-237 (2010).
- Gasque, G., Conway, S., Huang, J., Rao, Y., Vosshall, L. B. Small molecule drug screening in Drosophila identifies the 5HT2A receptor as a feeding modulation target. Scientific Reports. 3, (2013).
- Schoofs, A., et al. Selection of motor programs for suppressing food intake and inducing locomotion in the Drosophila brain. PLoS Biology. 12 (6), 1001893(2014).
- Pocas, G. M., Crosbie, A. E., Mirth, C. K. When does diet matter? The roles of larval and adult nutrition in regulating adult size traits in Drosophila melanogaster. Journal of Insect Physiology. , 104051(2020).
- Hamada, F. N., et al. An internal thermal sensor controlling temperature preference in Drosophila. Nature. 454 (7201), 217-220 (2008).
- Pfeiffer, B. D., et al. Tools for neuroanatomy and neurogenetics in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 105 (28), 9715-9720 (2008).
- Jenett, A., et al. A GAL4-driver line resource for Drosophila neurobiology. Cell Reports. 2 (4), 991-1001 (2012).
- Kitamoto, T. Conditional modification of behavior in Drosophila by targeted expression of a temperature-sensitive shibire allele in defined neurons. Journal of Neurobiology. 47 (2), 81-92 (2001).
- Brand, A. H., Perrimon, N. Targeted gene expression as a means of altering cell fates and generating dominant phenotypes. Development. 118 (2), 401-415 (1993).
- Shirangi, T. R., Stern, D. L., Truman, J. W. Motor control of Drosophila courtship song. Cell Reports. 5 (3), 678-686 (2013).
- Mirth, C. M. J. Food intake and food choice are altered by the developmental transition at critical weight in Drosophila melanogaster. Animal Behaviour. 126, 195-208 (2017).
- Simpson, S. J., Raubenheimer, D. Obesity: the protein leverage hypothesis. Obesity Reviews. 6 (2), 133-142 (2005).
- Raubenheimer, D., Simpson, S. J. Integrative models of nutrient balancing: application to insects and vertebrates. Nutrition Research Reviews. 10 (1), 151-179 (1997).
- Li, H. H., et al. A GAL4 driver resource for developmental and behavioral studies on the larval CNS of Drosophila. Cell Reports. 8 (3), 897-908 (2014).
- Bhatt, P. K., Neckameyer, W. S. Functional analysis of the larval feeding circuit in Drosophila. Journal of Visualized Experiments. (81), e51062(2013).
- Wong, R., Piper, M. D. W., Blanc, E., Partridge, L. Pitfalls of measuring feeding rate in the fruit fly Drosophila melanogaster. Nature Methods. 5 (3), 214-215 (2008).
- Almeida-Carvalho, M. J., et al. The Ol1mpiad: concordance of behavioural faculties of stage 1 and stage 3 Drosophila larvae. Journal of Experimental Biology. 220, Pt 13 2452-2475 (2017).
- Rodrigues, M. A., et al. Drosophila melanogaster larvae make nutritional choices that minimize developmental time. Journal of Insect Physiology. 81, 69-80 (2015).
- Wong, R., Piper, M. D., Wertheim, B., Partridge, L. Quantification of food intake in Drosophila. PLoS One. 4 (6), 6063(2009).
- Wu, Q., et al. Developmental control of foraging and social behavior by the Drosophila neuropeptide Y-like system. Neuron. 39 (1), 147-161 (2003).
- Wu, Q., Zhang, Y., Xu, J., Shen, P. Regulation of hunger-driven behaviors by neural ribosomal S6 kinase in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 102 (37), 13289-13294 (2005).
- Lingo, P. R., Zhao, Z., Shen, P. Co-regulation of cold-resistant food acquisition by insulin- and neuropeptide Y-like systems in Drosophila melanogaster. Neuroscience. 148 (2), 371-374 (2007).
访问受限。请登录或开始试用以查看此内容。
重印与许可
勘误
Formal Correction: Erratum: Quantification of Macronutrients Intake in a Thermogenetic Neuronal Screen using Drosophila Larvae
Posted by JoVE Editors on 10/06/2020. Citeable Link.
An erratum was issued for: Quantification of Macronutrients Intake in a Thermogenetic Neuronal Screen using Drosophila Larvae. A figure was updated.
Figure 1 was updated from:
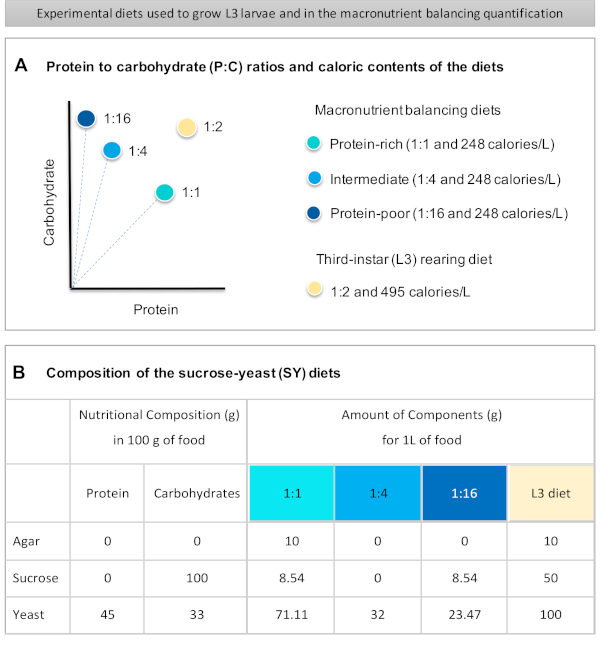
Figure 1: The sucrose-yeast (SY) diets used in our protocol. (A) The blue dots represent the isocaloric (248 calories/L) macronutrient balancing diets used in the feeding assay, which differ in the protein to carbohydrate (P:C) ratios: 1:1, 1:4 and 1:16. The beige dot represents the diet used to rear the experimental third-instar larvae (L3), which contained a P:C ratio of 1:2 and a caloric density of 495 calories/L. (B) Detailed composition and nutritional information of the sucrose-yeast (SY) based diets. The components are the same for all the diets: agar, sucrose and yeast. The amount in grams of the components needed to prepare 1 L of diet is shown. Note that 1% (v/v) of blue dye must be added to the macronutrient balancing diets and to the L3 rearing diet nipagin and propionic acid solutions must be added to a final concentration (v/v) of 3% and 0.3%, respectively. Please click here to view a larger version of this figure.
to:
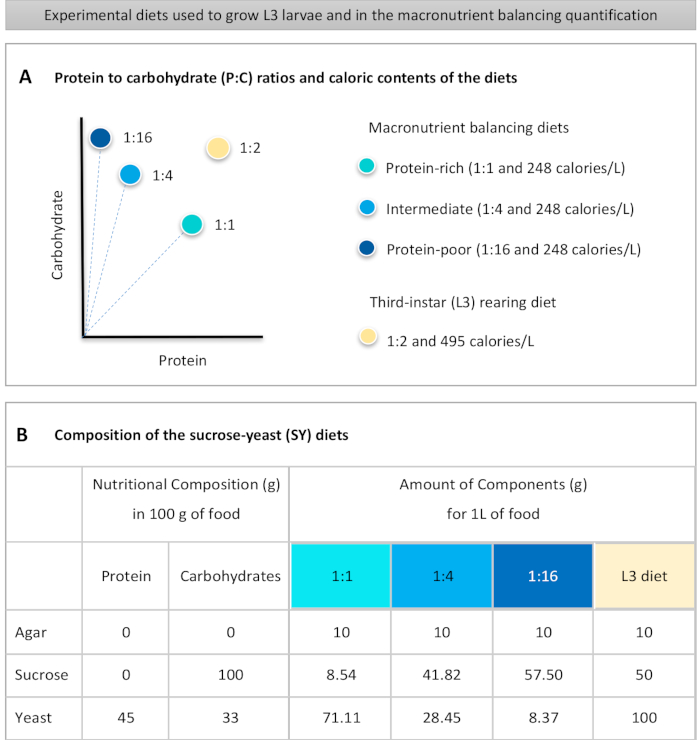
Figure 1: The sucrose-yeast (SY) diets used in our protocol. (A) The blue dots represent the isocaloric (248 calories/L) macronutrient balancing diets used in the feeding assay, which differ in the protein to carbohydrate (P:C) ratios: 1:1, 1:4 and 1:16. The beige dot represents the diet used to rear the experimental third-instar larvae (L3), which contained a P:C ratio of 1:2 and a caloric density of 495 calories/L. (B) Detailed composition and nutritional information of the sucrose-yeast (SY) based diets. The components are the same for all the diets: agar, sucrose and yeast. The amount in grams of the components needed to prepare 1 L of diet is shown. Note that 1% (v/v) of blue dye must be added to the macronutrient balancing diets and to the L3 rearing diet nipagin and propionic acid solutions must be added to a final concentration (v/v) of 3% and 0.3%, respectively. Please click here to view a larger version of this figure.
