本文描述了鼻周皮层-海马体脑片的制备方法。在逐步且受控的血清剥夺条件下,这些脑片会表现出逐渐发展的类似癫痫样活动,可被视为一种癫痫发生的离体模型。该系统是监测自发性活动动态变化的优良工具,也可用于评估癫痫发生过程中神经炎症特征的进展。
本文内容
摘要
摘要
器官型脑片培养已被广泛用于模拟脑部疾病,被认为是评估药物神经保护和治疗潜力的优秀平台。器官型脑片由离体组织制备,代表了一种复杂的多细胞体外环境。它们能够保留脑细胞的三维细胞结构和局部微环境,维持神经元之间的连接以及神经元与胶质细胞之间的相互作用。海马器官型脑片常被用于研究癫痫发生的内在基本机制,但临床研究和动物癫痫模型表明,由围嗅皮层和内嗅皮层组成的鼻周皮层在癫痫发作的产生中也发挥着重要作用。
本文描述了鼻周皮层-海马体脑片培养物的制备方法。在生理温度下,使用完全培养基灌流且未进行药物干预的条件下,对CA3区自发活动进行记录,结果显示这些脑片在培养过程中随时间推移呈现出逐渐发展的癫痫样活动。通过碘化丙啶摄取实验检测到细胞死亡增加,同时采用荧光标记免疫组织化学方法观察到胶质增生现象。该实验方法突显了鼻周皮层-海马体脑片培养体系作为研究癫痫发生动态过程及进展的平台价值,并可用于筛选该脑部疾病潜在的治疗靶点。
引言
癫痫是全球最常见的神经系统疾病之一,其特征是大脑中周期性且不可预测地出现神经元活动的同步化和过度兴奋。尽管已有多种抗癫痫药物(AEDs)可供使用,但三分之一的癫痫患者对治疗耐药1,仍持续出现癫痫发作和认知功能下降。此外,现有的抗癫痫药物由于对神经元活动具有相对广泛的抑制作用,会损害认知功能。由于致痫损伤的多样性和异质性、潜伏期长达数月甚至数十年,以及首次自发性发作后抗惊厥治疗的干扰效应,癫痫发生机制在人体中难以研究。
由于癫痫的动物模型,发现潜在的治疗药物已成为可能:1)遗传模型,使用具有遗传易感性的动物,这些动物可自发或在感觉刺激下出现癫痫发作;2)电刺激诱导癫痫发作的模型;以及3)药理学诱导癫痫发作的模型,后者使用匹鲁卡品(毒蕈碱受体激动剂)、红藻氨酸(红藻氨酸受体激动剂)或4-氨基吡啶(钾通道阻滞剂)等药物。这些模型对于理解癫痫相关的行为改变以及其分子和细胞机制至关重要,并已促成了多种抗癫痫药物(AEDs)2的发现。
离体(ex vivo)制备也是研究癫痫发生和痫性发作机制的有力工具。急性海马切片可在6-12小时内用于活细胞的电生理研究,而器官型海马切片则可在培养箱中保存数天至数周,这两种切片已被广泛用于癫痫样活动的研究3。
器官型脑切片由外植组织制备,代表了一种生理性的三维脑组织模型。这些切片可保留目标脑区的细胞结构,并包含所有脑细胞及其细胞间通讯4。海马区是长期器官型培养最常用的脑区,因为该区域在多种神经退行性疾病中均会发生神经元丢失。器官型脑切片已被广泛用于模拟脑部疾病,被认为是评估药物神经保护作用和治疗潜力的优秀工具5,6。癫痫发生、脑卒中以及Aβ诱导的神经毒性模型均已在海马器官型切片中建立7,8,9,10。帕金森病的研究则采用腹侧中脑和纹状体,以及大脑皮层-胼胝体-纹状体-黑质等器官型切片模型11。小脑器官型切片培养可模拟轴突髓鞘化及小脑功能的多个方面,是研究多发性硬化新型治疗策略的广泛应用模型12。
然而,临床研究和癫痫的动物模型表明,由内嗅皮层和旁嗅皮层组成的鼻周皮层在癫痫发作的产生中起着作用13。因此,建立了鼻周皮层-海马组织切片的癫痫发生模型14。在逐步且受控的血清剥夺条件下,鼻周皮层-海马组织切片表现出逐渐发展的类似癫痫事件,而始终保持在含血清培养基中的类似切片则无此现象。
在癫痫以及许多中枢神经系统的急性和慢性疾病中,以神经元为中心的观点无法阐明疾病发生和发展的机制。临床和实验证据表明,脑部炎症是促成癫痫过程的关键因素之一,其中小胶质细胞和星形胶质细胞发挥着重要作用。在癫痫动物模型中的药理学实验提示,通过靶向促炎通路可实现抗癫痫发生效应,目前神经炎症被视为开发癫痫治疗策略的新方向15。
本文详细描述了鼻周皮层-海马器官型脑片培养物的制备方法,以及从中记录自发性癫痫样活动的具体操作。我们强调,该模型模拟了癫痫中多种神经炎症特征,因此适用于研究胶质细胞及神经炎症在该疾病中的作用。此外,该系统还为癫痫潜在治疗策略的筛选提供了一个易于使用的实验平台。
方案
所有涉及动物保护的科学用途程序均遵守葡萄牙法律及欧洲联盟指南(2010/63/EU)。本文所述所有方法均经iMM机构动物福利委员会(ORBEA-iMM)和国家主管机构(DGAV——食品与兽医总司)批准。
1. 鼻周皮层-海马切片的制备
注意:制备嗅皮层-海马切片使用 P6-7 天的 Sprague-Dawley 大鼠。
- 培养体系建立与培养基制备
- 在培养前一天,准备好所需的培养基并将其放置于 4 °C.
- 制备解剖培养基:在盖氏平衡盐溶液(GBSS)中加入25 mM葡萄糖。
- 配制培养基:50% Opti-MEM、25% HBSS、25% 马血清(HS)、25 mM 葡萄糖 30 µg/mL 庆大霉素
- 配制维持培养基:Neurobasal-A(NBA)、2% B27、1 mM L-谷氨酰胺 30 µg/mL 庆大霉素,HS(15%、10%、5% 和 0%)
- 脑组织取材
- 开始培养前,用 P1000 移液器向 6 孔板的每个孔中加入 1.1 mL 培养基,并将其置于 37 °C.
- 将所有设备(解剖显微镜、组织切片机、解剖灯、解剖工具、电极、培养板、细胞培养插件和滤纸)放入生物安全柜内,并在紫外灯下灭菌15分钟。
- 调整切片厚度至 350 µm.
- 从冰箱中取出GBSS,向六个培养皿中各加入5 mL GBSS。每只动物需要六个培养皿。
- 处死大鼠幼崽。使用锋利的剪刀在动物脑干基部进行断头。
- 将动物头部用冷的GBSS清洗三次,并放入生物安全柜中。
- 组织分离与切片制备
- 用尖头镊子牢固地插入眼窝以固定头部。
- 使用精细剪刀从枕骨大孔处开始,沿中线向前额叶方向剪开皮肤/头皮,并将其移开。
- 沿颅骨和大脑横裂(脑与小脑之间的间隙)以相同方式切开。使用弯头长镊将其分开。
- 用刮铲丢弃嗅球。将脑组织从头部取出,置于冰冻的GBSS中,背侧朝上(图1A).
- 将精细镊子插入小脑,沿中线推进,同时用解剖刀片小心地分开两侧半球(图1B).
- 使用短弯镊子小心地去除覆盖海马体的多余组织,避免触碰海马体结构。然后用刮匙在每侧海马体下方进行切割。图1C).
- 取一个半球,将海马面朝上放置在滤纸上。重复此步骤处理另一个半球,并将其平行放置于同一张滤纸上。将滤纸置于组织切片机上,使两个半球与刀片垂直,然后切割半球 350 μm 切片(图1D).
- 将切好的组织放入含有冷GBSS的培养皿中(图1E).
- 使用圆头电极小心地分离切片(图1F)。仅保留嗅周皮层和海马结构完整的脑片。齿状回(DG)和CA区应清晰可辨,内嗅皮层和外嗅皮层也应界限分明。图1G).
- 将每个切片放置于插入物上(图1H-I),使用刮铲和圆头电极。用P20移液器吸除每个脑片周围的过量解剖液(图1J)。一个插入式培养器中可培养四片颞皮层-海马切片图1K).
- 细胞培养维持
- 每隔一天更换一次培养基。
- 将培养基预热 37 °C.
- 从培养箱中取出培养板。用镊子夹住每个插入物的塑料边缘(图1L).
- 用一只手吸取孔中的培养基。将插入物放回孔中,使用 P1000 移液器加入 1 mL 新鲜预温的培养基(图1M)。对所有插入物重复此操作,确保膜与培养基之间无气泡残留。
注意:癫痫样脑片在培养基中经历逐渐且可控的血清剥夺。自体外培养第9天(DIV)起,脑片在不含马血清(HS)的NBA培养基中维持培养14。
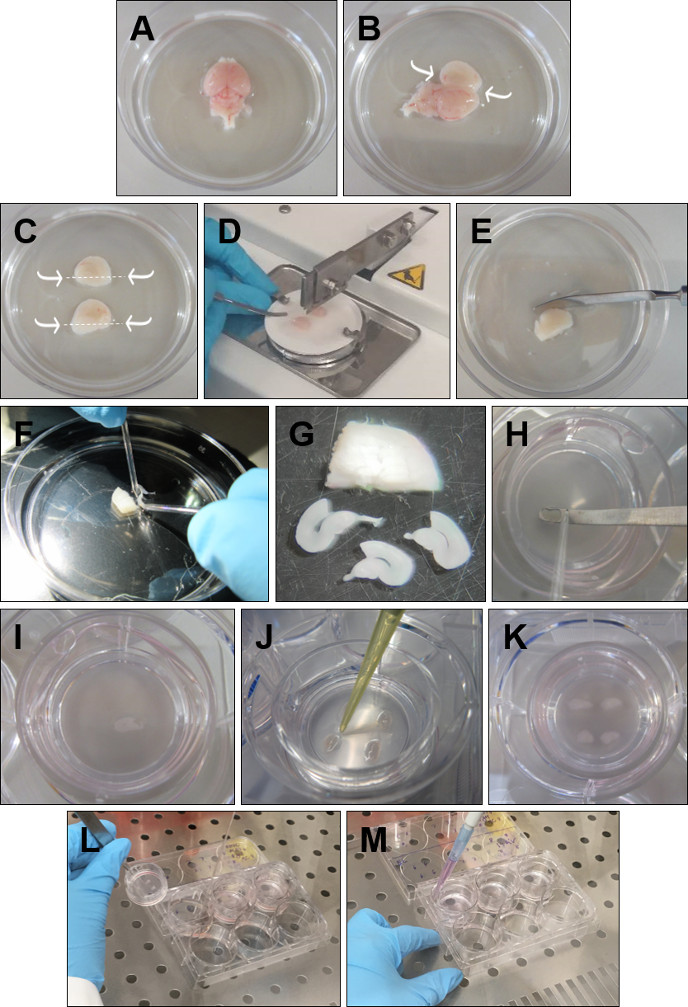
图 1:鼻皮质-海马体脑片器官型切片制备的详细步骤。(A)从头部取出脑组织,将其置于冰上预冷的GBSS中,背侧朝上。(B)将镊子插入小脑部位,沿中线打开脑组织,并去除覆盖在海马体上方的多余组织。(C)用解剖刀在海马体下方进行切割,如箭头所示。(D)将两个海马体并列、腹面朝上放置于滤纸上,使用组织切片机切割成350 µm厚的切片。(E)将切好的海马体组织置于冰上预冷的GBSS中。(F)借助圆头玻璃电极分离各切片。(G)仅选取显示完整鼻皮质与海马体结构的切片。(H, I)利用圆头玻璃电极将每一片切片推至解剖刀片上,然后转移至插入式培养插件中。(J)移除切片周围的GBSS液体。(K)每个插入式插件中放置四片切片。(L)更换培养基时,提起插件,并用玻璃移液管吸除旧培养基。(M)将移液管置于插件与6孔板壁之间,加入新鲜培养基,确保切片下方无气泡产生。请点击此处查看该图的放大版本。
2. 电生理记录
注意:在7、14和21天体外培养(DIV)时,于界面式记录舱中对嗅周皮层-海马体的器官型脑片进行电生理记录。记录通过放大器获取,经数字化后使用软件进行分析。所有记录均经过带通滤波(八极贝塞尔滤波器,60 Hz;高斯滤波器,600 Hz)。
- 实验准备
- 准备50 mL NBA培养基,加入1 mL B27和250 μL L-谷氨酰胺,在37 °C下预热。
- 将电生理记录装置设置为闭路系统,确认流速为2 mL/min。
- 打开碳氧混合气(5% CO2/95% O2)阀门,并检查系统中的水位。
- 将滤纸放入界面记录室以排出多余培养基,将镜头清洁纸置于框架下方以向脑片供给培养基。
- 打开温度控制器、放大器和显微操作器。
- 在开始记录前,使界面记录室的温度稳定在37 °C。
- 制备人工脑脊液(aCSF:124 mM NaCl、3 mM KCl、1.2 mM NaH2PO4、25 mM NaHCO3、10 mM 葡萄糖、2 mM CaCl2、1 mM MgSO4,pH 7.4),并用注射器将其注入玻璃电极中,然后将电极置于接收电极位置。
- 自发活动记录
- 待温度稳定后,从培养箱中取出培养板,用非常锋利的刀片从插件上切下一枚脑片,将其置于含有少量培养基的60 mm培养皿中,并转移至界面记录室。
- 将脑片放置于界面记录室中,使海马位于右下角,并将接收电极置于CA3区锥体细胞层。
- 启动连续采集程序,记录30分钟。
3. PI 摄取实验
注意:通过监测细胞对荧光染料碘化丙啶(PI)的摄取来评估细胞死亡。PI 是一种极性化合物,能够进入细胞膜受损的细胞,并与 DNA 结合发出红色荧光(吸收波长 493 nm,发射波长 630 nm)。由于 PI 不能穿透活细胞的细胞膜,因此可用于检测细胞群体中的死细胞。
- PI 孵育
- 用培养基新鲜配制 PI 储存液的 1:10 稀释液。
- 进行 PI 摄取实验时,将培养板从培养箱中取出,小心提起插入式培养小室。使用 P20 移液器向培养基中加入 13 µL PI,使终浓度达到 2 µM。在将插入式培养小室放回原位前,轻轻晃动培养板,确保切片下方无气泡产生。
- 将切片放回 37 °C 培养箱中继续孵育 2 小时。
- 按照下一节所述步骤进行免疫组织化学实验。由于 PI 对光敏感,需用铝箔覆盖培养板以避光。
4. 免疫组织化学
注意:在免疫组织化学中,使用了神经元特异性抗体以及能够区分小胶质细胞和星形胶质细胞静息与活化表型的抗体,以评估雷纳皮质-海马癫痫样器官型脑片中神经元死亡程度和胶质增生情况。
- 组织固定
- 从培养箱中取出培养板,吸除培养基。在室温下,用P1000移液器在脑片上方和下方各加入1 mL 4%多聚甲醛(PFA),固定1小时。
- 去除PFA,加入1 mL PBS。同时在切片的下方和上方均加入PBS。
- 保持切片在 4 °C在PBS中,直至进一步使用。始终用封口膜包裹培养板以防止干燥。
- 免疫染色步骤
- 用1 mL PBS洗涤两次,每次10分钟。
- 配制含1% Triton-X100、10% HS和10% BSA的PBS通透/封闭液。配制5% BSA溶液。
- 用疏水笔画出两个矩形图2A)。从插入物中切下切片(图2B) 使用非常锋利的刀片。每张载玻片放置两片切片。图2C)并加入 140 µL 在每个切片上加入200 μL通透/封闭液,使用P200移液器操作。室温孵育3小时。
- 用 PBS 中含 5% BSA 的溶液将一抗稀释至工作浓度,4℃孵育过夜 4 °C.
- 室温下与二抗孵育4小时。从这一步开始,需将平板避光,因为操作中涉及荧光染料。
- 放置一个 50 μL 在每片样本上滴加一滴Hoechst溶液,室温孵育20分钟。
- 孵育步骤之间进行洗涤。每次均需用 PBS-T 缓冲液洗涤 3 次,每次 10 分钟。
- 去除Hoechst并按推荐方法洗涤。
- 添加 50 μL 在每片样本上滴加封片剂,盖上玻璃盖玻片,并用指甲油封固周围。图 2D).
- 室温下干燥24小时。
- 在共聚焦显微镜下观察免疫染色结果。将染色切片保存于 -20 °C.
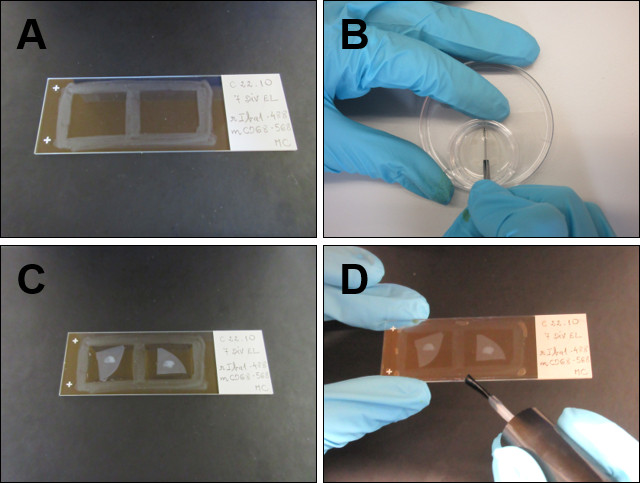
图 2:免疫组织化学检测的特定操作流程。(A)使用疏水笔在载玻片上画出两个方框。(B)剪下含有切片的插入片。(C)将每张切片置于疏水笔画出的方框内,并开始通透化/封闭步骤。(D)完成实验方案后,将切片置于封片剂中,加盖盖玻片,并用指甲油封固周围。 请点击此处查看该图的放大版本。
结果
根据既往关于海马脑片中癫痫样信号分析的描述,本研究将痫样间歇期放电定义为明显区别于背景活动、具有极性 abrupt 改变且以低频(<2 Hz)出现的阵发性放电。持续时间超过 10 秒且以较高频率(≥2 Hz)出现的阵发性放电被界定为痫样发作期活动。若一次发作期事件在前一次事件结束后 10 秒内发生,则将这两次事件视为单次发作期事件。
7天体外培养的鼻周皮层-海马器官型切片图3A) 显示混合性发作间期及类似发作期的活动。在体外培养14天(14 DIV)时(图3B),自发活动表现为痫样放电,在21天体外培养(DIV)时发展为强烈的痫样活动,痫样事件持续时间 >1 分钟(图3C).

图 3:鼻周皮层-海马体脑片培养模型的自发性癫痫样活动。从界面式记录舱的 CA3 区记录到的典型癫痫样电活动事件,分别在 (A) 培养第 7 天、(B) 培养第 14 天和 (C) 培养第 21 天获得。癫痫事件的细节显示在下方波形图中。请点击此处查看该图的放大版本。
通过PI摄取实验结合针对神经元标志物NeuN的免疫组织化学染色,旨在鉴定神经元死亡。在7 DIV脑片中可观察到颗粒细胞和锥体神经元摄取PI(图4A中的箭头所示),但在14 DIV时PI+神经元数量增加(图4B中的箭头所示),表明随着癫痫发生进程的发展,神经元死亡逐渐增多。

图4:NeuN与PI染色的嗅周皮层-海马体脑片培养的代表性图像。在共聚焦激光显微镜下使用20倍物镜获取NeuN标记的成熟神经元及PI阳性细胞的图像,分别对应于(A)体外培养第7天(7 DIV)和(B)体外培养第14天(14 DIV)。虚线区域为放大图像。橙色箭头指示死亡神经元。比例尺:50 μm。请点击此处查看该图的高清版本。
采用Iba1与CD68的双重染色来评估小胶质细胞表型。Iba1是小胶质细胞/巨噬细胞的标志物,而CD68是一种溶酶体蛋白,在活化的小胶质细胞中高表达,在静息状态的小胶质细胞中低表达。在7 DIV时,分支状小胶质细胞(图5A中的箭头所示)数量多于Iba1+/CD68+活化型小胶质细胞(图5A中的箭头头所示);而在14 DIV时,在海马区所有区域,Iba1+/CD68+丛状/阿米巴样M1型小胶质细胞(图5B中的箭头头所示)数量超过CD68低表达的小胶质细胞(图5B中的箭头所示)。在14 DIV时,还可观察到一些呈现过度分支形态的Iba1+/CD68+细胞(图5B中的空心箭头所示),这可能提示小胶质细胞M2抗炎表型的存在。然而,这一问题仍需进一步研究。
近期研究表明,不同的中枢神经系统(CNS)初始损伤可诱导产生至少两种类型的反应性星形胶质细胞,即A1型和A2型,其中A1型星形胶质细胞具有神经毒性16。A1型星形胶质细胞的特征是补体C3表达升高16,17,18。补体C3在补体系统激活过程中起核心作用,可生成C3b,后者进一步降解为iC3b、C3dg和C3d19。因此,采用GFAP与C3d的双重染色来评估星形胶质细胞增生。在体外培养7天(7 DIV)时,C3d的表达几乎无法检测到(图6A);而在体外培养14天(14 DIV)的脑片中,可见肥大的GFAP+/C3d+星形胶质细胞(图6B中的箭头所示),提示A1型星形胶质细胞呈进行性激活。
结果表明,在癫痫发生过程中,小胶质细胞和星形胶质细胞呈现进行性激活,这一现象模拟了癫痫患者及该病理动物模型中所描述的事件。

图 5:Iba1 和 CD68 染色的鼻皮质-海马体脑片培养的代表性图像。在共聚焦激光扫描显微镜下使用 20 倍物镜获取 Iba1 和 CD68 染色的小胶质细胞以及 Hoechst 染色的细胞核图像,分别对应于(A)7 天体外培养(DIV)和(B)14 天体外培养(DIV)。虚线区域为放大图像。箭头指示 Iba1+/CD68- 静息状态小胶质细胞,实心箭头指示 Iba1+/CD68+ 树突状/阿米巴样小胶质细胞,空心箭头指示 Iba1+/CD68+ 过度分支小胶质细胞。比例尺:50 μm。请点击此处查看该图的高清版本。
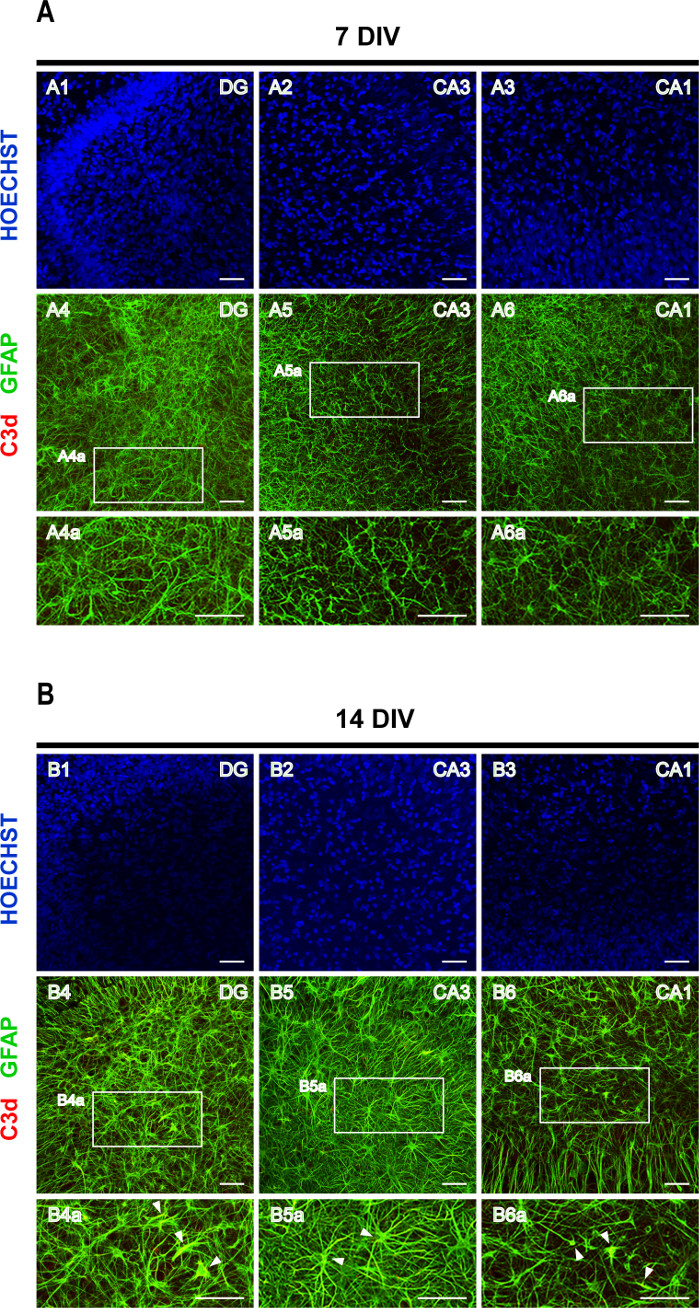
图6:外侧嗅皮层-海马体脑片中GFAP和C3d染色的代表性图像。使用共聚焦激光显微镜配备20倍物镜,在(A)7天体外培养(DIV)和(B)14天体外培养(DIV)时获取GFAP和C3d染色的星形胶质细胞以及Hoechst染色的细胞核图像。虚线区域为放大图像。箭头指示呈黄色的GFAP+/C3d+反应性A1型星形胶质细胞。比例尺:50 μm。请点击此处查看该图的高清版本。
讨论
癫痫的动物模型对于多种抗癫痫药物(AEDs)的发现至关重要,但这些模型需要使用大量动物,且由于癫痫发作存在潜伏期,大多数实验耗时较长。海马急性脑片中低镁诱导的癫痫样活动在文献中也已有广泛报道3,但急性脑片的存活时间仅为6–12小时,无法用于评估长期变化。而器官型脑片可在体外培养中维持数天至数周,从而克服了急性脑片存活时间短的局限,已有研究提出了基于海马器官型脑片的癫痫发生模型3,7,8。
本文描述了包含嗅周皮层和海马体的器官型脑片的制备方法。每只动物从处死开始至将脑片放置到插入物上,制备过程需15-20分钟,每个半脑可获得6-8片脑片。在打开半脑以暴露海马体以及在切片后从滤纸上移取组织时,必须格外小心。切片过程中,海马体上方多余的组织也可能影响脑片的完整性。
内嗅皮层-海马体器官型脑片呈现出类似体内癫痫的进行性癫痫样活动。培养一周后,大多数脑片表现出混合性的痫样间歇期放电和痫样发作期活动,随着时间延长,逐渐进展为仅出现痫样发作期事件。迄今为止,在培养2至3周的脑片中,我们仅记录到少量的间歇期放电。在此系统中,癫痫样活动的发展速度似乎快于单纯的海马体器官型脑片。这可能归因于内嗅皮层的存在,因其保留了对海马体的大部分功能性传入连接。为全面阐明这一问题,目前正对这些脑片在培养过程中所呈现的癫痫样信号进行系统性表征,包括痫样事件的数量和持续时间,以及其振幅和频率等参数。
该系统可在培养条件下维持超过三周,模拟了癫痫的多种分子相关特征,例如神经元死亡、小胶质细胞与星形胶质细胞的活化以及促炎性细胞因子的增加14,从而实现对这些方面的长期表征。它还提供了一个易于使用的筛选平台,可用于实施针对特定细胞通路的药理学干预,并验证潜在的治疗靶点。毫无疑问,本文所介绍的系统有助于进一步阐明癫痫发生机制。
披露
作者无任何利益冲突需要披露。
致谢
作者谨向葡萄牙若昂·洛博·安图内斯分子医学研究所生物成像单元致以谢意,感谢其在图像采集方面提供的所有建议。
该项目已获得欧盟“地平线2020”研究与创新计划在资助协议编号Nº 952455,葡萄牙科学技术基金会(FCT)通过项目PTDC/MEDFAR/30933/2017资助,以及里斯本大学医学院资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 50 mL 离心管,锥形底 | Corning | 430829 | |
| 70% 乙醇 | Manuel Vieira, Lda | UN1170 | |
| 放大器 | Axon Instruments | Axoclamp 900A | |
| 放大器 | Axon Instruments | Digidata 1440A | |
| 抗C3d(山羊) | R&D Systems | AF2655 | 按1:1000的比例稀释 |
| 抗 CD68(小鼠) | Abcam | ab31630-125ug | 按1:250的比例稀释 |
| 抗GFAP(小鼠) | Millipore SAS | MAB360 | 按1:500的比例稀释 |
| 抗Iba1(兔) | Abcam | ab108539 | 按1:600的比例稀释 |
| 抗 NeuN(兔) | 投掷 | 16712943S | 按1:500的比例稀释 |
| 人工脑脊液(aCSF) | 自制 | ||
| B-27™ 补充剂(50倍浓度),无血清 | Thermo Fisher Scientific | 17504-044 | |
| 手术刀柄用刀片 | Fine Science Tools | 10011-00 | |
| 牛血清白蛋白(BSA) | NZYTech | MB04602 | 使用5% BSA稀释一抗。将0.5 g BSA加入10 mL PBS中。 |
| 脑/组织切片孵育系统 | Warner Instruments | ||
| 二水合氯化钙 | 默克密理博 | 1.02382.0500 | |
| 细胞培养插件,30 mm,亲水性聚四氟乙烯 | Millipore SAS | PICM03050 | |
| 冷光源 | SCHOTT | KL 300 LED | |
| 共聚焦激光显微镜 | Zeiss | LSM 710 | |
| 常规培养箱 | Thermo Scientific Heraeus | BB15,功能线 | 设定为37 °C 和 5% CO2 |
| D(+)-葡萄糖一水合物 | 默克密理博 | 1.08342.1000 | |
| D-(+)-葡萄糖溶液,45% 水溶液 | Sigma | G8769 | |
| 二水合磷酸氢二钠 | 默克密理博 | 1.06580.1000 | |
| 解剖显微镜/放大镜 | MEIJI TECHNO CO. LTD | 122285 | |
| 驴抗山羊IgG(H+L)偶联Alexa Fluor 568 | Invitrogen | A11057 | 按1:200的比例稀释 |
| 与Alexa Fluor 488偶联的驴抗小鼠IgG(H+L) | Invitrogen | A21202 | 按1:200的比例稀释 |
| 与Alexa Fluor 568偶联的驴抗小鼠IgG(H+L) | Invitrogen | A10037 | 按1:200的比例稀释 |
| 与Alexa Fluor 488偶联的驴抗兔IgG(H+L) | Invitrogen | A21206 | 按1:500的比例稀释 |
| 驴抗兔IgG(H+L)偶联Alexa Fluor 568 | Invitrogen | A10042 | 按1:500的比例稀释 |
| Dumont #5 精细镊子 Biologie Inox | Fine Science Tools | 11254-20 | |
| Dumont #5 镊子 标准型 不锈钢 | Fine Science Tools | 11251-20 | |
| Dumont #7 镊子 标准 Dumoxel | Fine Science Tools | 11271-30 | |
| Dumont 医用 #7S 镊子 短弯型 不锈钢 | Fine Science Tools | 11273-22 | |
| 庆大霉素储备液,50 mg/mL | Thermo Fisher Scientific | 15750-037 | |
| Gey’s 平衡盐溶液(GBSS) | 生物工业公司 | 01-919-1A | |
| 玻璃电极 | 科学产品 | GB150F-10 | 圆头自制 |
| 玻璃巴斯德吸管,230 mm | VWR International | 612-1702 | |
| 汉克’s 平衡盐溶液(HBSS) | Thermo Fisher Scientific | 24020-091 | |
| Hoechst 33342 | Invitrogen | H1399 | PBS 中 2 mg/mL 的储存液 |
| 马血清,热灭活(HS) | Thermo Fisher Scientific | 26050-088 | |
| 盐酸 | 默克密理博 | 1.09057.1000 | |
| 疏水笔 | Dako | S200230-2 | |
| INCU-Line IL10 | VWR | 390-0384 | |
| 界面培养室 | Warner Instruments | BSC-HT Haas Top | |
| 虹膜匙,弯型 | Fine Science Tools | 10092-12 | |
| Labculture II级生物安全柜 | HERASafe | HS 12 | |
| 镜头清洁纸 | TIFFEN | ||
| L-谷氨酰胺溶液 200 mM(Q) | Thermo Fisher Scientific | 25030-024 | |
| 七水硫酸镁 | 默克密理博 | 1.05886.0500 | |
| 0.5 mL 微管,聚丙烯材质 | SARSTEDT | 72,699 | |
| 1.5 mL 微量离心管,聚丙烯材质 | SARSTEDT | 72.690.001 | |
| 2.0 mL 微量离心管,聚丙烯材质 | SARSTEDT | 72.691 | |
| 显微操作器 | Sutter Instrument | MP-285 | |
| 显微镜盖玻片,24 mm × 60 mm | Marienfeld | 102242 | |
| 指甲油 | Cliché | ||
| Neurobasal-A 培养基 (NBA) | Thermo Fisher Scientific | 10888-022 | |
| Opti-MEM® I 低血清培养基 | Thermo Fisher Scientific | 31985-047 | |
| 多聚甲醛,粉末 | VWR Chemicals | 2,87,94,295 | |
| 蠕动泵 | Gilson | M312 | |
| 磷酸盐缓冲液(PBS) | 自制。在免疫组织化学检测中,使用含0.5% Tween-20的磷酸盐缓冲液(PBS-T)洗涤脑片。 | ||
| 磷酸盐标准溶液,PO43- 在水中 | BDH ARISTAR | 452232C | |
| 移液器套装 | Gilson | P2、P10、P20、P100、P200、P1000 | |
| Platinum 5 刀片 | Gillette | ||
| 氯化钾 | Sigma-Aldrich | P5405-250g | |
| 碘化丙啶(PI) | Sigma-Aldrich | P4170-25MG | 1 mg/mL 水溶液储备液。 |
| 定性滤纸,纤维素,1号,55 mm | Whatman | 1001-055 | 培养基保留 11µm |
| 定性滤纸,纤维素,1号,90 mm | Whatman | 1001-090 | 培养基保留 11µm |
| 解剖刀柄 | Fine Science Tools | 91003-12 | |
| 1 mL 无针头滑动式胰岛素注射器 | SOL-M | 161000 | |
| 氯化钠 | VWR Chemicals | 27800.360 | |
| 磷酸二氢钠一水合物 | 默克密理博 | 1.06346.1000 | |
| 碳酸氢钠 | 默克密理博 | 1.06329.1000 | |
| 氢氧化钠 | 默克密理博 | 535C549998 | |
| 刺激器 | Astro Med Inc GRASS 产品组 | S48 刺激器 | |
| 学生用直头尖头剪刀 12厘米 | Fine Science Tools | 91402-12 | |
| SuperFrost Plus™ 黏附载玻片 | Thermo Fisher Scientific | J1800AMNZ | |
| TC处理的无菌60 x 15 mm组织培养皿 | Corning | CORN430166 | |
| TC处理的无菌6孔板 | Corning | CORN3516 | |
| 温度控制器 | MEDICAL SYSTEMS CORP. | TC-102 | |
| 组织切片机 | The Mickle Laboratory Engineering CO. LTD. | MTC/2 | 设定为 350 μm |
| Triton X-100 | BDH | 14630 | |
| Tween-20 | Sigma | P2287 |
参考文献
- Fisher, R. S., et al. Electrical stimulation of the anterior nucleus of thalamus for treatment of refractory epilepsy. Epilepsia. 51, 899-908 (2010).
- Loscher, W. Critical review of current animal models of seizures and epilepsy used in the discovery and development of new antiepileptic drugs. Seizure. 20, 359-368 (2011).
- Heinemann, U., Kann, O., Schuma, S. An overview of in vitro seizure models in acute and organotypic slices. Models of seizures and epilepsy. Pitkänen, A., Schwartzkroin, P. A., Moshé, S. L. , Elsevier Academic Press. Cambridge. 35-44 (2006).
- Sundstrom, L., Morrison, B., Bradley, M., Pringle, A. Organotypic cultures as tools for functional screening in the CNS. Drug Discovery Today: Targets. 10, 993-1000 (2005).
- Holopainen, I. E. Organotypic hippocampal slice cultures: a model system to study basic cellular and molecular mechanisms of neuronal cell death, neuroprotection, and synaptic plasticity. Neurochemical Research. 30, 1521-1528 (2005).
- Noraberg, J., et al. Organotypic hippocampal slice cultures for studies of brain damage, neuroprotection and neurorepair. CNS Neurological Disorders Drug Targets. 4, 435-452 (2005).
- Dyhrfjeld-Johnsen, J., Berdichevsky, Y., Swiercz, W., Sabolek, H., Staley, K. J. Interictal spikes precede ictal discharges in an organotypic hippocampal slice culture model of epileptogenesis. Journal of Clinical Neurophysiology. 27, 418-424 (2010).
- Chong, S. A., et al. Intrinsic Inflammation Is a Potential Anti-Epileptogenic Target in the Organotypic Hippocampal Slice Model. Neurotherapeutics. 15, 470-488 (2018).
- Li, Q., Han, X., Wang, J. Organotypic hippocampal slices as models for stroke and traumatic brain injury. Molecular Neurobiology. 53 (6), 4226-4237 (2016).
- Cho, S., Wood, A., Bowlby, M. R. Brain slices as models for neurodegenerative disease and screening platforms to identify novel therapeutics. Current Neuropharmacology. 5, 19-33 (2007).
- Humpel, C. Organotypic brain slice cultures: a review. Neuroscience. 305, 86-98 (2015).
- Doussau, F., Dupont, J. L., Neel, D., Schneider, A., Poulain, B., Bossu, J. L. Organotypic cultures of cerebellar slices as a model to investigate demyelinating disorders. Expert Opinion on Drug Discovery. 12 (10), 1011-1022 (2017).
- Vismer, M. S., Forcelli, P. A., Skopin, M. D., Gale, K., Koubeissi, M. Z. The piriform, perirhinal, and entorhinal cortex in seizure generation. Frontiers in Neural Circuits. 9, 27(2015).
- Magalhães, D. M., Pereira, N., Rombo, D. M., Beltrão-Cavacas, C., Sebastião, A. M., Valente, C. A. Ex vivo model of epilepsy in organotypic slices - a new tool for drug screening. Journal of Neuroinflammation. 15, 203(2018).
- Ravizza, T., Balosso, S., Vezzani, A. Inflammation and prevention of epileptogenesis. Neuroscience Letters. 497 (3), 223-230 (2011).
- Liddelow, S. A., et al. Neurotoxic reactive astrocytes are induced by activated microglia. Nature. 541, 481-487 (2017).
- Wu, T. Complement C3 is activated in human AD brain and is required for neurodegeneration in mouse models of amyloidosis and tauopathy. Cell Reports. 28 (8), 2111-2123 (2019).
- Hartmann, K., et al. Complement 3+-astrocytes are highly abundant in prion diseases, but their abolishment led to an accelerated disease course and early dysregulation of microglia. Acta Neuropathologica Communications. 7, 83(2019).
- Nilsson, U. R., Funke, L., Nilsson, B., Ekdahl, K. N. Two conformational forms of target-bound iC3b that distinctively bind complement receptors 1 and 2 and two specific monoclonal antibodies. Upsala Journal of Medical Sciences. 116, 26-33 (2011).
重印与许可
