本文介绍了一种从小鼠中枢神经系统体外分离多种胶质细胞群体的实验方案。该方法可分离出不同区域的小胶质细胞、少突胶质细胞前体细胞以及星形胶质细胞,以便在多种培养体系中分别研究各类细胞的表型特征。
本文内容
摘要
摘要
本文介绍的方法展示了从小鼠新生鼠中分离中枢神经系统(CNS)四个不同区域以获取胶质细胞亚群的实验室操作流程。该实验的目的是从大脑皮层、小脑、脑干和脊髓组织中分离出小胶质细胞、少突胶质细胞前体细胞(OPCs)和星形胶质细胞,以便进行后续的体外分析。通过分离不同CNS区域,可在多种细胞培养系统中研究胶质细胞的区域异质性。首先快速分离CNS各区域,随后通过机械方法去除脑膜,以防止脑膜细胞污染胶质细胞。本方案结合了温和的组织解离步骤,并将细胞接种于特定基质上,以维持细胞完整性和贴壁能力。从多个CNS区域分离混合胶质细胞,不仅可对可能具有异质性的胶质细胞进行全面分析,还能最大限度地利用每只实验动物。此外,在区域组织解离后,混合胶质细胞可进一步分离为多种细胞类型,包括小胶质细胞、OPCs和星形胶质细胞,用于单细胞类型培养、细胞培养板插件或共培养系统。总体而言,所展示的技术提供了一套适用性广泛的完整方案,可用于从小鼠新生鼠中精细解剖四个独立的CNS区域,并包含分离三种独立胶质细胞类型的方法,从而在任意数量的体外细胞培养系统或检测中研究区域异质性。
引言
胶质细胞对于中枢神经系统(CNS)中神经元的正常功能至关重要。它们主要由三种亚群组成:星形胶质细胞、少突胶质细胞和小胶质细胞,每种细胞都具有不同但不可或缺的功能1。若缺乏适当的胶质细胞多样性与活性,神经元功能将受到严重影响,导致中枢神经系统功能障碍。胶质细胞能够影响神经传递,且每种细胞类型均以独特的方式发挥作用。脑内的胶质细胞不仅可在彼此之间进行通信,还能与神经元细胞相互交流,从而促进中枢神经系统的正常功能2。少突胶质细胞通过形成髓鞘加快电信号的传导速度,促进离子通道在郎飞结处的聚集,而郎飞结正是神经元动作电位产生的部位3。小胶质细胞通过监测突触传递并在损伤后“重塑”神经连接,在突触修剪过程中发挥关键作用4。此外,小胶质细胞是中枢神经系统中最丰富的常驻免疫细胞,作为抵御病原体的主要宿主防御机制5。星形胶质细胞可通过调节细胞外钾离子浓度来调控神经元间的突触传递6。它们还在调控局部血流7、释放和摄取神经调质物质8以及维持血脑屏障完整性方面发挥关键作用9。因此,每种胶质细胞亚型对中枢神经系统的功能均至关重要,任何一类胶质细胞的功能缺陷均已被长期证实与多种病理状态相关,包括精神疾病、癫痫及神经退行性疾病10。
研究中枢神经系统病理生物学的最大障碍在于无法在微环境生态位的背景下研究人类细胞。人类活检组织大多在死后采集,且细胞在提取和处理过程中容易受损或丢失。此外,将人类细胞在体外长期维持存活和活性极具挑战性,除非从肿瘤中建立永生化细胞系,但此类细胞已不再准确反映其正常的生理特性11,12。此外,不同个体的胶质细胞类型之间存在显著的区域异质性13,14,15,而从个体患者获取特定区域的中枢神经系统样本几乎不可能。因此,有必要开发替代模型以研究区域性胶质细胞在特定中枢神经系统疾病中的作用。
本文介绍了一种体外实验系统,通过从小鼠中枢神经系统(CNS)不同区域特异性分离多种胶质细胞亚群,实现对小胶质细胞、可分化为成熟少突胶质细胞的少突胶质前体细胞(OPCs)以及星形胶质细胞的操作与定量分析。每种细胞群体均可被独立分离,并根据实验需求接受多种实验技术处理,包括药物或分子干预、免疫细胞化学染色、蛋白质/RNA提取与分析,以及其他共培养系统。此外,该分离技术可获得较高数量的细胞,从而能够以高通量方式对各胶质细胞群体进行表征与研究。该方法还可在受控条件下研究中枢神经系统细胞在多种微环境刺激下的分化、生长与增殖过程,避免体内实验中常见的混杂因素干扰。最后,该细胞分离技术有助于操控不同中枢神经系统区域内的胶质细胞群体,以研究区域特异性胶质细胞之间的相互作用及其对不同刺激的响应,从而实现实验的精确性与可重复性。
方案
注意:所有动物实验均已获得克利夫兰诊所勒纳研究所动物护理与使用委员会的授权和批准。
1. 准备解剖所需的培养基和器材
注意:所有缓冲液和培养基配方均在表1中提供。本操作需在指定的组织培养用生物安全柜内的无菌条件下进行。
- 配制并用滤器除菌混合胶质细胞培养基(MGM)。此步骤可提前一天完成,并于4 °C保存。
- 用无菌H2O将纤连蛋白稀释至1:100浓度。稀释后的纤连蛋白体积取决于实验所用仔鼠数量及中枢神经系统区域。每1个皮层使用1个T25培养瓶,每2–4个小脑使用1个T25培养瓶,每2–4个脑干使用1个T25培养瓶,每2–4个脊髓使用1个T25培养瓶。
注意:根据上述标准合并相同区域的组织可在不改变下述实验方案的前提下实现充分解离。若合并的组织量超过步骤1.2所述范围,则需进一步优化解离试剂的浓度。 - 在室温下,向T25培养瓶中加入3 mL稀释后的纤连蛋白,静置2分钟。
- 吸除纤连蛋白溶液,松开培养瓶盖,于室温下过夜干燥。
2. 大脑皮层、小脑、脑干和脊髓的分离
注意:该操作可在台面上进行,但需要解剖显微镜。整个操作过程须严格遵守无菌技术,尽量减少组织暴露于室内空气中的时间。解剖过程中所有培养基均应置于冰上保持低温,以确保组织最大程度地保存活性。或者,也可在允许使用内置解剖显微镜的生物安全柜内进行该操作。
- 用70%乙醇擦拭所有区域。
- 将10 mL PBS/抗生素溶液(PAS)移入一个10 cm培养皿中。为每只待解剖的幼鼠准备一个培养皿,并置于冰上以保持溶液低温。
- 在已消毒的组织培养罩内,将9 mL DMEM(不含任何添加剂)分别移入4个独立的15 mL锥形管中,每管对应一个中枢神经系统区域,盖紧管盖后置于冰上。将装有试管的冰桶放置在解剖显微镜附近便于取用的位置。
- 将步骤2.2中准备好的10 cm培养皿放置在已消毒的解剖显微镜载物台上。
- 根据机构规程对幼鼠实施麻醉和安乐死,并使用锋利剪刀快速剪下头部。
注意:使用出生后第(P)3–5天的幼鼠。年龄较大的幼鼠中枢神经系统发育更完善,可能不适合作为扩增胶质细胞的来源;年龄较小的幼鼠(P0–2)可能获得更多的胶质细胞,也可使用;但由于组织尺寸过小,脊髓组织在此年龄段极难解剖。 - 用70%乙醇清洁幼鼠皮肤。
- 使用精细剪刀从头部尾侧开始沿中线向前剪开皮肤层,直至吻部。注意避免深剪至颅骨,以防损伤组织。
- 将头部向下倾斜,将皮肤层向两侧拉开,使用弹簧剪刀从枕骨大孔处沿颅骨中线剪开,再次由尾侧向头侧剪切。
- 用尖头镊子将颅骨两侧分开,暴露大脑皮层、小脑和脑干。
- 暴露后,轻柔地将脑组织从颅腔中取出,放入步骤2.2中准备好的10 cm培养皿中。确保脑组织保持完整无损,以维持其解剖结构,并保留脑干连接。
- 使用尖端弯曲、向上朝向的精细镊子夹除小脑。去除软脑膜后,将其放入冰桶中指定的15 mL锥形管中。
- 确认脑干位于小脑正下方,在移除小脑后应清晰可见。用尖头镊子将其取出,去除软脑膜,放入冰桶中指定的15 mL锥形管中。
- 将中脑与大脑皮层分离,去除皮层软脑膜,放入冰桶中指定的15 mL锥形管中。
- 为取出脊髓,将去头的幼鼠置于仰卧位(面部朝上),并将切断的脊柱朝向操作者抬高。
- 再次喷洒70%乙醇。
- 沿脊柱两侧由头侧向尾侧剪开,穿过肋骨直至后肢,剪切过程中将内脏组织向后推,直至暴露出脊柱。
- 沿脊柱两侧继续剪切,直至完全分离脊柱,并将其放入步骤2.2中准备好的10 cm培养皿中。
- 将脊柱腹面朝上,使用精细弹簧剪刀交替剪开每个椎骨的左右两侧,直至腰段,以暴露脊髓组织。
- 在解剖显微镜下,用尖头镊子轻柔取出脊髓及软脑膜,放入冰桶中指定的15 mL锥形管中。
- 对每只幼鼠重复步骤2.5–2.19,将相同区域的组织合并,以满足步骤1.2中为每个准备好的T25培养瓶所规定的标准。
注意:应尽可能彻底去除软脑膜。若残留大量软脑膜,其成纤维细胞样表型的细胞将在培养中过度生长并压倒目标细胞。可合并多个表型一致的脊髓组织以建立特定的细胞培养体系,但需注意避免细胞过度拥挤,否则可能导致胶质细胞凋亡及表型差异。
3. 组织解离
注意:以下所有操作均须在指定的无菌生物安全柜中,采用无菌技术及无菌材料进行。
- 向每个含有9 mL DMEM和组织的15 mL锥形管中加入1 mL含0.53 mM EDTA的0.05%胰蛋白酶,以开始组织裂解。
注意:DMEM含有较高浓度的氯化钙,可能抑制胰蛋白酶活性。如果按照上述步骤操作后组织未完全解离,可使用不含钙和镁的Hanks平衡盐溶液替代。胰蛋白酶消化后,可通过添加胰蛋白酶抑制剂中和酶活性,但应将钙重新加入溶液中,因为钙是后续步骤中使用的DNase I的辅因子。 - 用10 mL移液管轻轻吹打约20次。
- 将细胞悬液转移至空的50 mL锥形管中。
- 将溶液在37 °C、5% CO2条件下孵育15分钟,并在8分钟后轻轻振荡裂解物。
- 向每管中加入5 mL MGM和200 µL(5 mg/mL)DNase I,使终浓度为50 µg/mL。
- 用10 mL移液管对每份裂解物吹打10次。
- 将细胞悬液在室温下静置3分钟,使未解离的组织沉降至管底。
- 将细胞悬液转移至新的50 mL锥形管中,弃去底部未解离的组织。
注意:上述裂解和吹打步骤可显著减少未解离组织的量。 - 在4 °C条件下以300 × g离心3分钟,离心时勿启用刹车。
- 吸除上清液,并将剩余的细胞沉淀重悬于5 mL MGM中。
- 用5 mL移液管吹打沉淀20次。
- 将5 mL细胞悬液接种至包被的T25培养瓶中。
- 将细胞在37 °C、5% CO2条件下培养,并在24小时后首次更换培养基以去除细胞碎片。
注意:部分实验方案建议在72小时后进行首次换液。此步骤可能需要优化。 - 每48–72小时用MGM完全更换培养基,直至细胞融合度达到80%(约5–7天)。
注意:所有培养基在更换前必须预热至37 °C。
4. 小胶质细胞分离
- 当混合胶质细胞培养物达到80%融合度时,拧紧瓶盖并用石蜡膜密封,为摇瓶做准备。
- 为从混合胶质细胞培养物中去除小胶质细胞,将培养瓶水平固定在37 °C培养箱内的轨道摇床上,以15 × g 振荡1小时。
- 收集培养上清液并用移液器转移至15 mL锥形管中。用3 mL预热的MGM培养基冲洗培养瓶两次,并将洗涤液加入同一15 mL锥形管中。此即为小胶质细胞悬液。
- 向原培养瓶中加入5 mL预热的新鲜MGM培养基。
- 用石蜡膜重新密封培养瓶,水平固定于摇床上,在37 °C、15 × g 条件下振荡15小时,以分离少突胶质前体细胞(OPCs)与星形胶质细胞。
注意:此步骤可过夜进行,但15小时的振荡时间至关重要,过长时间可能导致细胞死亡。 - 将步骤4.3所得上清液在300 × g 条件下离心3分钟,随后根据标准方案16培养小胶质细胞,或直接用于生物学实验。
5. 少突胶质前体细胞的分离
注意:在初次分离后接种少突胶质前体细胞(OPCs)时,必须将其接种于多聚-D-赖氨酸包被的表面(无菌培养皿或盖玻片)。请在完成本步骤前预先准备好这些材料。
- 振荡15小时后,从烧瓶中移除上清液,并接种于无菌的100 mm培养皿中。
- 在37 °C、5% CO₂条件下孵育上清液2 孵育30分钟,15分钟后轻轻摇晃以去除残留的小胶质细胞,因为这些细胞会迅速贴附于培养皿上。此步骤可使用未经组织培养处理的培养皿。
- 去除未贴壁细胞的上清液,计数后接种于多聚-D-赖氨酸包被的表面。通常每平方厘米接种7,500–10,000个少突胶质前体细胞2.
- 37 °C、5% CO₂ 条件下孵育2 至少孵育1小时(最长可达6小时),然后轻柔吸除95%的培养基,缓慢加入预热的OPC培养基,将培养基沿孔壁滴加,以尽量减少对少突胶质前体细胞(OPCs)的扰动。每48小时更换一次培养基,直至细胞达到使用状态。
注意:每次只能更换一个孔。少突胶质前体细胞(OPCs)较为敏感,尤其不耐受干燥条件。在OPC培养基中添加PDGF-AA的目的是延缓OPCs向少突胶质细胞的成熟过程。如果实验关注的是成熟少突胶质细胞,该因子可从培养基中去除。
6. 星形胶质细胞的分离
- 振荡15小时后,移除上清液,并用预热的1×PBS冲洗锥形瓶2次。
- 加入4 mL含0.53 mM EDTA的0.05%胰蛋白酶溶液,在37 °C、5% CO2条件下孵育5分钟,或直至细胞脱落。为确认星形胶质细胞已脱落,可使用标准宽场显微镜观察,胰酶消化后星形胶质细胞呈球形。
- 待星形胶质细胞完全脱离后,将锥形瓶垂直放置,加入4 mL MGM培养基,吹打混匀。
- 将星形胶质细胞转移至15 mL圆底离心管中,在300 × g 条件下离心5分钟。
- 用星形胶质细胞培养基重悬细胞,按步骤1.2所述接种于纤连蛋白包被的培养表面,或直接用于生物学实验。
注意:首次换液时可添加20 ng/mL小鼠成纤维细胞生长因子,以促进星形胶质细胞培养的建立。此外,标准明胶包被可作为纤连蛋白的低成本替代方案。
7. 使用免疫细胞化学法鉴定和分离小胶质细胞、少突胶质前体细胞、星形胶质细胞和成熟少突胶质细胞
- 当接种的细胞达到适当的汇合度时,在生物安全柜中轻轻吸除培养基,并使用 4% 多聚甲醛(PFA)固定贴壁细胞 10 分钟。
注意:在吸液或添加溶液时,应轻柔操作移液,以防止细胞脱落。 - 缓慢吸除 PFA,然后用 1× PBS 洗涤细胞 3 次,每次 5 分钟。
- 在 1× PBS 中加入 10% 血清和 0.1% Triton X-100,配制适当的封闭液。
注意:封闭用血清的来源应与二抗的宿主动物一致。例如,若二抗为山羊抗兔,则应使用正常山羊血清作为封闭血清;同理,若二抗为驴抗兔,则封闭血清应为正常驴血清。 - 加入封闭液,确保完全覆盖细胞,室温封闭 1 小时。
- 配制抗体稀释液(9 mL 1× PBS,0.01 g 牛血清白蛋白,30 µL Triton X-100)。或者,也可将抗体稀释于第 6.3 步所述的封闭液中。
- 在抗体稀释液或封闭液中稀释针对以下靶标的特异性一抗:
- 小胶质细胞:离子化钙结合接头分子 1(Iba1),稀释比例为 1:250(2.4 μg/mL)。
- 少突胶质前体细胞(OPCs):神经/胶质抗原 2(NG2),稀释比例为 1:200(5 μg/mL)。
- 成熟少突胶质细胞:髓鞘碱性蛋白(MBP),稀释比例为 1:400(浓度依批次而定,可能需要优化)。
- 星形胶质细胞:胶质纤维酸性蛋白(GFAP),稀释比例为 1:400(0.25 μg/mL)17。
注意:不要混合来自同一物种的一抗。
注意:GFAP 可稳定标记白质中的星形胶质细胞;对于灰质中的星形胶质细胞,可能需要使用其他标记物。
- 将细胞在 4 °C 下与一抗孵育过夜(建议轻度振荡)。
- 用 1× PBS 洗涤 3 次,每次 5 分钟,以去除未结合的一抗。
- 在避光条件下,用抗体稀释液或封闭液将适当的二抗按 1:400 稀释后加入细胞中进行孵育。
注意:二抗偶联有荧光染料,可根据显微镜参数选择不同的荧光染料。一旦使用荧光标记的二抗,应尽可能避免光照。 - 室温避光孵育二抗 1 小时。
- 用 1× PBS 洗涤 3 次,每次 5 分钟,以去除未结合的二抗。
- 为标记细胞核,使用 1:1,000 的 DAPI/PBS 溶液,在避光条件下室温孵育细胞 5 分钟。
- 在避光条件下用 1× PBS 洗涤 3 次,每次 5 分钟。
- 封片时,加入封片剂,避光干燥后进行成像。
注意:封片后的样本可在室温下保存 2–3 天;如需长期保存,应置于 4 °C。建议在一周内完成成像以获得最强信号。所有代表性图像均使用共聚焦显微镜采集;但倒置荧光显微镜也推荐使用。
结果
下图所示的代表性数据表明,IFNγ信号传导影响OPC的分化与成熟。在缺乏IFNγ受体(IFNγR)的情况下,皮层OPC难以分化为成熟的可髓鞘化少突胶质细胞,这一点通过MBP染色缺失得以证实(图1)。由于少突胶质细胞和星形胶质细胞来源于共同的前体细胞,我们分析了标记星形胶质细胞的GFAP表达。我们发现,缺乏IFNγR的细胞强烈表达GFAP,提示这些细胞可能呈现出星形胶质细胞表型,这与早期报道结果一致19。
中枢神经系统细胞存在区域异质性的进一步证据体现在不同脑区星形胶质细胞形态的差异,例如来自大脑皮层、小脑、脑干和脊髓的星形胶质细胞(图2)。值得注意的是,同一脑区的星形胶质细胞也可能表现出形态学上的异质性,这支持了该胶质细胞亚型具有高度动态性的观点。细胞结构的差异提示其功能具有多样性,因此有必要分离特定的胶质细胞群体,以研究在无或有微环境刺激条件下其表型响应的特征。
少突胶质细胞对神经元轴突的髓鞘形成至关重要,并且对于中枢神经系统的正常修复和功能不可或缺。少突胶质前体细胞(OPCs)可分化为成熟的少突胶质细胞,因此深入理解其分化潜能背后的生物学机制十分关键。细胞因子信号显著影响干细胞和免疫细胞的行为,因此,了解不同脑区来源的OPCs对细胞因子刺激的反应差异具有重要意义(图3),这可能影响其向成熟髓鞘形成性少突胶质细胞分化的潜能。

图 1:代表性数据显示在外源性 IFNγ 存在下,野生型(WT)和 IFNγR-/- 小鼠中 OPC 的分化情况。根据上述方案,从(A)野生型(WT)和(B)IFNγR-/- P4 小鼠幼崽中分离皮层 OPC。细胞用 1 ng/mL IFNγ 处理 48 小时,然后固定并染色以明确细胞分化情况。使用 NG2 和 GFAP 对 OPC 进行标记,以识别呈现星形胶质细胞表型的细胞。同样,也使用 NG2 和 MBP 对 OPC 进行标记,以识别正在分化为成熟少突胶质细胞的细胞。比例尺 = 20 μM。 请点击此处查看该图的放大版本。

图2:显示星形胶质细胞形态区域异质性的代表性数据。采用上述方案从小鼠P4幼崽的皮层、小脑、脑干和脊髓中分离星形胶质细胞,培养48小时后通过免疫细胞化学法对GFAP(绿色)进行标记。比例尺 = 20 μM。 请点击此处查看该图的放大版本。
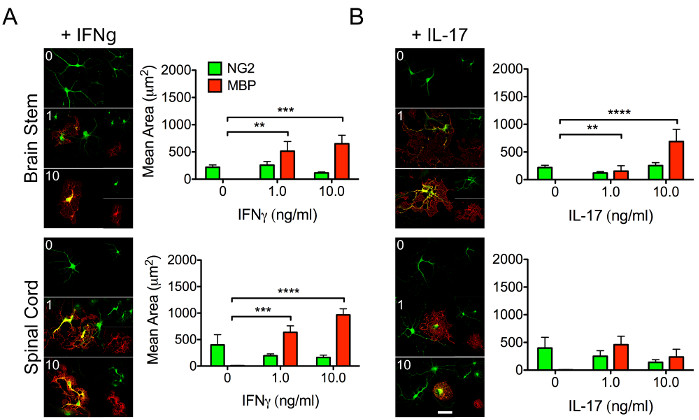
图3:代表性数据展示不同脑区少突胶质前体细胞(OPC)对细胞因子的差异性反应。根据上述方案,从小鼠出生后第4天(P4)幼鼠的脑干和脊髓中分离获得OPC。为研究细胞因子对不同脑区OPC向髓鞘形成性少突胶质细胞分化能力的差异性影响,分别用递增浓度(1–10 ng/mL)的(A) IFNγ 或 (B) 白细胞介素(IL)-17处理细胞。在指定细胞因子中孵育48小时后,固定OPC并进行NG2(绿色)和MBP(红色)免疫标记。比例尺 = 20 μm。数据以均值 ± 标准误(SEM)表示。**,p < 0.01;***,p < 0.001;****,p < 0.0001(采用双因素方差分析)。请点击此处查看该图的放大版本。
| PBS/抗生素溶液(PAS): | ||
| 1.0 mL | 100X 抗生素/抗真菌素,含 10,000 单位/mL 青霉素和 10,000 mg/mL 链霉素 | |
| 25 mg/mL | 两性霉素 B | |
| 99 mL | 1X PBS | |
| 混合胶质细胞培养基(MGM) | ||
| 88 mL | 1X DMEM(高糖,含 L-谷氨酰胺,含丙酮酸钠) | |
| 10 mL | 热灭活胎牛血清(FBS) | |
| 1.0 mL | L-谷氨酰胺(100X) | |
| 1.0 mL | 抗生素/抗真菌素 | |
| 少突胶质前体细胞培养基(OPC 培养基,50 mL) | ||
| 49 mL | Neurobasal 培养基 | |
| 1.0 mL | B27 添加剂(50X) | |
| 10 ng/mL | PDGF-AA | |
| 注意:每次更换培养基前需新鲜添加 PDGF-AA。 | ||
| 星形胶质细胞培养基(1 L) | ||
| 764 mL | 含谷氨酰胺的 MEM(含 Earle's 盐) | |
| 36 mL | 葡萄糖(使用 100 mg/mL 储存液,终浓度为 20 mM) | |
| 100 mL | 热灭活胎牛血清(FBS) | |
| 100 mL | 热灭活马血清 | |
| 10 mL | 谷氨酰胺(若基础培养基中未包含,则使用 200 mM 储存液) | |
| 可选:10 ng/mL 重组小鼠表皮生长因子 | ||
| 注意:所有培养基均需经无菌过滤,储存于 4°C,待用。 | ||
表1:缓冲液与培养基配方。
讨论
在本实验方案中,我们描述了从小鼠中枢神经系统(CNS)中分离三种主要胶质细胞亚群的方法:小胶质细胞、少突胶质前体细胞(OPCs)和星形胶质细胞。目前研究神经退行性和神经炎症性中枢神经系统疾病面临的主要障碍之一,是缺乏原代人类细胞和组织,尤其是来自同一患者且具有区域特异性的样本。在大多数情况下,人类中枢神经系统细胞系来源于经过转化、永生化的癌细胞,这些细胞可能无法准确反映其正常的生理行为20,21,22。因此,有必要采用替代方法以可控的方式研究中枢神经系统细胞的表型。此外,神经胶质细胞群体具有高度异质性,必须分别独立地研究各个亚型,同时也需在共培养条件下进行研究,以重现其细胞自主性和非自主性功能。胶质细胞在中枢神经系统中具有多种关键功能,包括支持神经元活动23、学习与认知过程24,25,以及中枢神经系统的免疫应答26。因此,有必要在生理和病理背景下深入理解每种胶质细胞亚群的分子与细胞功能。为此,本文提供了一种可靠的方法,用于提取和分离具有活性的胶质细胞亚型。由于在人类受试者研究中存在实际操作和伦理方面的限制,动物模型目前仍是研究人类胶质细胞生物学最相关的替代系统。特别是小鼠,作为理想的模式动物,其基因组可被精确操控和分析,有助于进一步解析健康与疾病状态下特定的分子机制。因此,成功分离小鼠的小胶质细胞、少突胶质前体细胞和星形胶质细胞,是研究胶质细胞在生理、神经退行性或神经炎症条件下功能的关键技术手段。
该方案可进一步优化,以探究中枢神经系统(CNS)细胞的区域异质性。越来越多的研究表明,胶质细胞在形态和功能上均表现出区域异质性。星形胶质细胞具有区域多样性,其形态特征因其在中枢神经系统内的位置不同而有所差异27。此外,星形胶质细胞的密度及其有丝分裂指数可用于界定解剖学区域,支持了“星形胶质细胞的区域异质性可能反映了其在中枢神经系统内不同位置所对应的分子和功能差异”这一假说28。小胶质细胞的区域异质性也正处于积极研究之中,尽管目前尚不清楚小胶质细胞多样性在中枢神经系统发育或行为中的潜在机制及功能影响。然而,已知成年小胶质细胞在细胞数量、细胞及亚细胞结构以及分子特征方面均存在差异29。此外,多重质谱流式细胞技术的最新进展进一步明确了小胶质细胞的区域异质性,该研究分析了来自九名人类供体五个不同中枢神经系统区域的细胞表型,实现了对人源小胶质细胞的大规模免疫表型分析30。目前,此类方法仍处于初步阶段,因此动物研究仍是探究中枢神经系统疾病发展中区域胶质细胞特征的可行方案。最后,少突胶质细胞的区域异质性也于近期被报道。通过对青少年和成年个体中枢神经系统10个区域的5072个单细胞进行单细胞RNA测序,研究者鉴定了跨越不同分化阶段的13个不同亚群31。重要的是,研究还发现,随着少突胶质前体细胞(OPCs)向成熟少突胶质细胞发育,其转录谱逐渐分化,功能表型也随之改变,凸显了中枢神经系统内少突胶质细胞的异质性31。
因此,了解中枢神经系统中各类常驻细胞在其多样化的邻近神经元及其他胶质细胞环境中的区域异质性,可能为未来开发治疗神经炎症和神经退行性疾病的新疗法提供重要依据。尽管本实验方案主要聚焦于胶质细胞亚群的提取、分离与鉴定,但它为研究这些细胞的功能提供了一个便捷的起点。此外,该方法可与转基因小鼠模型相结合,用于研究与胶质细胞生物学相关的遗传机制,也可用于在共培养实验中分析胶质细胞之间的相互反应。文中所述步骤代表了一种经济高效且高通量的方法,可用于提取和分离不同的中枢神经系统胶质细胞群体,并可进一步适配于多种实验参数。需要注意的是,本方法使用新生小鼠,因其髓鞘化水平较低且增殖性胶质细胞密度较高。基于这些原因,与成年动物相比,从新生动物中分离出有活性的胶质细胞在技术上更具可行性。因此,在实验设计和数据分析过程中,应充分考虑新生期胶质细胞与成年胶质细胞之间的表型差异。
披露
作者有利益冲突需要披露。
致谢
感谢Morgan Psenicka在文稿编辑和讨论方面提供的帮助,以及Grahame Kidd博士在图表排版方面的协助。本研究工作由美国国家过敏与传染病研究所(NIAID)K22 AI125466项目(JLW)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.05% 胰蛋白酶和 0.53 mM EDTA | Gibco | 25300054 | 组织解离 |
| 12 孔板 | Greiner Bio-One | 665 180 | 细胞培养板 |
| 1× PBS pH 7.4 | Gibco | 10010031 | 标准试剂 |
| 32% 多聚甲醛 | Electron Microscopy Sciences | 15714-S | 固定剂 |
| 50 mL,25 cm2 细胞培养瓶 | Greiner Bio-One | 690 175 | 细胞培养(T25)瓶 |
| 抗生素-抗真菌剂 100× | Gibco | 15240-096 | 培养基组分 |
| B-27 补充剂 50× | Gibco | 17504-044 | 培养基组分 |
| 牛血清白蛋白 | Sigma | A9647-50G | 抗体稀释液 |
| 共聚焦显微镜 | Zeiss | LSM 800 | 成像用共聚焦显微镜 |
| DAPI | ThermoFisher | D1306 | 细胞核染色剂 |
| DMEM(1×),高糖含丙酮酸钠 | Gibco | 11995040 | 培养基组分 |
| DNase I | Sigma | 10104159001 | 组织解离 |
| 经热灭活的胎牛血清 | Gibco | A3840001 | 培养基组分 |
| 来自牛血浆的纤连蛋白 | Sigma | F1141-1MG | 细胞黏附剂 |
| 精细缝合剪刀 | Sklar | 64-3260 | 解剖工具 |
| 山羊抗兔 IgG Alexa Fluor 488 | Invitrogen | A11008 | 二抗染色抗体 |
| 山羊抗大鼠 IgG Alexa Fluor 555 | Invitrogen | A21434 | 二抗染色抗体 |
| Hanks' 平衡盐溶液(不含 Ca 或 Mg) | ThermoFisher | 14170120 | 组织解离 |
| L-谷氨酰胺,200 mM | Gibco | 20530081 | 培养基组分 |
| 小鼠表皮生长因子 | ThermoFisher | PMG8044 | 培养基组分 |
| 小鼠 IFN-γ | Peprotech | 315-05-20UG | 培养基组分 |
| 小鼠 PDGF-AA | Peprotech | 315-17 | 培养基组分 |
| Neurobasal 培养基 | Gibco | 21103-049 | 培养基组分 |
| 正常山羊血清 | Sigma | G9023 | 封闭液组分 |
| 手术剪刀 | Surgi-OR | 95-272 | 解剖工具 |
| 聚-D-赖氨酸包被的 12 mm #1 德国玻璃盖玻片 | Corning Biocoatt | 354086 | 细胞黏附剂 |
| Prolong Gold 抗荧光淬灭封片剂 | Cell Signaling Technology | 9071S | 封片介质 |
| 兔抗 Iba1 抗体 | Wako | 019-19741 | 一抗 |
| 兔抗 NG2 软骨素蛋白聚糖抗体 | Millipore | ab5320 | 一抗 |
| 大鼠抗 GFAP 抗体 | ThermoFisher | 13-0300 | 一抗 |
| 大鼠抗髓鞘碱性蛋白抗体 | Abcam | ab7349 | 一抗 |
| 尖头剪刀 | Surgi-OR | 95-104 | 解剖工具 |
| 体视显微镜 | Leica | S4 E Stereo Zoom Microscope | 用于解剖的显微镜 |
| 组织镊 | Sklar | 66-7644 | 解剖工具 |
| Triton X-100 | Fisher Bioreagents | BP151-100 | 细胞通透化 |
| 胰蛋白酶抑制剂(来自鸡卵清) | Sigma | 10109878001 | 组织解离 |
参考文献
- Fields, R. D., et al. Glial Biology in Learning and Cognition. The Neuroscientist. 20 (5), 426-431 (2014).
- Nuriya, M., Hirase, H. Involvement of astrocytes in neurovascular communication. Progress in Brain Research. 225, 41-62 (2016).
- Nave, K. A. Myelination and support of axonal integrity by glia. Nature. 468 (7321), 244-252 (2010).
- Wake, H., Moorhouse, A. J., Miyamoto, A., Nabekura, J. Microglia: actively surveying and shaping neuronal circuit structure and function. Trends in Neurosciences. 36 (4), 209-217 (2013).
- Kierdorf, K., Prinz, M. Microglia in steady state. The Journal of Clinical Investigation. 127 (9), 3201-3209 (2017).
- Hertz, L., Chen, Y. Importance of astrocytes for potassium ion (K(+)) homeostasis in brain and glial effects of K(+) and its transporters on learning. Neurosciences and Biobehavior Reviews. 71, 484-505 (2016).
- Gordon, G. R., Howarth, C., MacVicar, B. A. Bidirectional Control of Blood Flow by Astrocytes: A Role for Tissue Oxygen and Other Metabolic Factors. Advances in Experimental Medicine and Biology. 903, 209-219 (2016).
- Schneider, J., Karpf, J., Beckervordersandforth, R. Role of Astrocytes in the Neurogenic Niches. Methods Mol Biol. 1938, 19-33 (2019).
- Sharif, Y., et al. Blood brain barrier: A review of its anatomy and physiology in health and disease. Clinical Anatomy. 31 (6), 812-823 (2018).
- von Bernhardi, R., Eugenin-von Bernhardi, J., Flores, B., Eugenin Leon, J. Glial Cells and Integrity of the Nervous System. Advances in Experimental Medicine and Biology. 949, 1-24 (2016).
- Gordon, J., Amini, S., White, M. K. General overview of neuronal cell culture. Methods in Molecular Biology. 1078, Clifton, N.J. 1-8 (2013).
- Spaethling, J. M., et al. Primary Cell Culture of Live Neurosurgically Resected Aged Adult Human Brain Cells and Single Cell Transcriptomics. Cell reports. 18 (3), 791-803 (2017).
- Bayraktar, O. A., Fuentealba, L. C., Alvarez-Buylla, A., Rowitch, D. H. Astrocyte development and heterogeneity. Cold Spring Harbor Perspectives in Biology. 7 (1), 020362(2015).
- Liu, R., et al. Region-specific and stage-dependent regulation of Olig gene expression and oligodendrogenesis by Nkx6.1 homeodomain transcription factor. Development. 130 (25), 6221-6231 (2003).
- Tan, Y. L., Yuan, Y., Tian, L. Microglial regional heterogeneity and its role in the brain. Molecular Psychiatry. 25 (2), 351-367 (2020).
- Witting, A., Moller, T. Microglia cell culture: a primer for the novice. Methods in Molecular Biology. 758, 49-66 (2011).
- Williams, J. L., Patel, J. R., Daniels, B. P., Klein, R. S. Targeting CXCR7/ACKR3 as a therapeutic strategy to promote remyelination in the adult central nervous system. Journal of Experimental Medicine. 211 (5), 791-799 (2014).
- Domingues, H. S., Portugal, C. C., Socodato, R., Relvas, J. B. Oligodendrocyte, Astrocyte, and Microglia Crosstalk in Myelin Development, Damage, and Repair. Frontiers in Cell and Developmental Biology. 4, 71(2016).
- Tanner, D. C., Cherry, J. D., Mayer-Proschel, M. Oligodendrocyte progenitors reversibly exit the cell cycle and give rise to astrocytes in response to interferon-gamma. Journal of Neuroscience. 31 (16), 6235-6246 (2011).
- Stansley, B., Post, J., Hensley, K. A comparative review of cell culture systems for the study of microglial biology in Alzheimer's disease. Journal of Neuroinflammation. 9 (1), 115(2012).
- Spaethling, J. M., et al. Primary Cell Culture of Live Neurosurgically Resected Aged Adult Human Brain Cells and Single Cell Transcriptomics. Cell Reports. 18 (3), 791-803 (2017).
- Timmerman, R., Burm, S. M., Bajramovic, J. J. An Overview of in vitro Methods to Study Microglia. Frontiers in Cellular Neuroscience. 12 (242), (2018).
- Stevens, B. Glia: much more than the neuron's side-kick. Current Biology. 13 (12), 469-472 (2003).
- Fields, R. D., et al. Glial biology in learning and cognition. Neuroscientist. 20 (5), 426-431 (2014).
- Yamamuro, K., Kimoto, S., Rosen, K. M., Kishimoto, T., Makinodan, M. Potential primary roles of glial cells in the mechanisms of psychiatric disorders. Frontiers in Cellular Neuroscience. 9 (154), (2015).
- Hartenstein, V., Giangrande, A. Connecting the nervous and the immune systems in evolution. Communications Biology. 1 (1), 64(2018).
- Emsley, J. G., Macklis, J. D. Astroglial heterogeneity closely reflects the neuronal-defined anatomy of the adult murine CNS. Neuron Glia Biology. 2 (3), 175-186 (2006).
- Chaboub, L. S., Deneen, B. Developmental Origins of Astrocyte Heterogeneity: The Final Frontier of CNS Development. Developmental Neuroscience. 34 (5), 379-388 (2012).
- Tan, Y. L., Yuan, Y., Tian, L. Microglial regional heterogeneity and its role in the brain. Molecular Psychiatry. 25 (2), 351-367 (2020).
- Bottcher, C., et al. Human microglia regional heterogeneity and phenotypes determined by multiplexed single-cell mass cytometry. Nature Neurosciences. 22 (1), 78-90 (2019).
- Marques, S., et al. Oligodendrocyte heterogeneity in the mouse juvenile and adult central nervous system. Science. 352 (6291), 1326-1329 (2016).
重印与许可
