本方案可用于制备谷类种子(如水稻)的横切面,以便通过扫描电子显微镜分析胚乳和淀粉粒的形态。
本文内容
摘要
摘要
淀粉粒(SGs)的形态因植物种类而异,尤其在禾本科(Poaceae)植物的胚乳中表现明显。通过扫描电子显微镜(SEM)分析,可根据淀粉粒形态对基因型进行胚乳表型分类。利用SEM观察淀粉粒时,需对籽粒(包括果皮、糊粉层和胚乳)进行切片,以暴露其中的细胞器内容。目前常用的方法是将水稻籽粒包埋在塑料树脂中,再用切片机进行切片;或将其包埋在截短的移液器吸头中,手工使用剃刀片切片。前者需要专用设备且耗时较长,后者则因水稻基因型不同而引入一系列新问题。特别是垩白米品种,由于其胚乳组织易碎,难以适用此类切片方法。本文介绍一种仅需移液器吸头和解剖刀片即可制备透明及垩白水稻籽粒切片用于显微观察的技术。在移液器吸头内完成切片制备,可防止籽粒胚乳在切片过程中发生碎裂(适用于透明或“玻璃质”表型)或崩解(适用于垩白表型)。采用该技术,可清晰观察到胚乳细胞的排列模式以及完整淀粉粒的结构。
引言
淀粉粒(SGs)的形态因植物种类而异,尤其是在禾本科(Poaceae)植物的胚乳中表现明显1,2。通过扫描电子显微分析,可根据淀粉粒表型对胚乳进行表型鉴定,进而实现基因型分类。通过切开籽粒并剥离胚乳细胞壁,可利用扫描电子显微镜(SEM)观察淀粉粒2。
该技术的目的是仅为了快速进行扫描电镜(SEM)分析而简便地制备水稻籽粒的横切面。开发该技术的动机源于需要一种快速的横切方法,即使用最少的设备在可视化前立即完成样品的扫描电镜制样。
该技术涉及将去壳的稻米籽粒插入移液器吸头中以实现完全固定。这在对粉质稻米籽粒表型进行横切时尤为重要,因为粉质籽粒质地脆弱,在压力下极易碎裂3。粉质是稻米的一种不良品质,因其影响籽粒外观,并在抛光和碾磨过程中导致籽粒容易断裂 3。粉质在籽粒横切面上表现为肉眼可见的不透明区域;在显微层面,粉质的特征是存在体积较小且排列疏松的淀粉颗粒。粉质的成因可能是遗传性的4,5,也可能是环境因素所致6,7。
谷物种子的横截面传统上采用化学固定方法制备,并在样品包埋于石蜡或其他固体基质后进行切片4,8,9,10。2010年,Matsushima方法被提出,旨在避免复杂且耗时的稻谷籽粒样品制备过程4。该方法涉及将去壳的稻谷籽粒插入截断的移液器吸头中,吸头由修块器固定,然后使用手持剃刀切割获取较薄的部分胚乳切片。另一种于2016年开发的快速技术可实现多种干燥种子(包括粉质品种)的薄的整体切片10。这些方法推动了本文所介绍的快速技术的发展。
这种新技术适用于希望利用扫描电镜(SEM)获取完整水稻籽粒横截面,以进行胚乳表型分析和淀粉形态观察的研究人员。
本方案是对Matsushima截断移液器吸头法的一种改进版本4,具有若干显著修改:(1)在整个技术过程中,籽粒无需进行任何吸水处理;(2)制备切片时无需使用切块修整器或超薄切片机。本研究检测了一个野生型“透明”品种(Oryza sativa L. ssp. japonica cv. Nipponbare)以及一个经诱变获得的“粉质”Nipponbare品系(ssg1,substandard starch grain1)4。选择这两个品种进行本分析,旨在展示在处理透明型与粉质型水稻切片过程中技术和视觉上的差异。
方案
1. 水稻横切片的制备
- 按照 图1A 所示,对干燥完整的稻谷籽粒进行脱壳。
- 通过将籽粒夹在两个平头橡胶塞之间研磨,使颖壳松动并去除稻谷籽粒的外壳。如有需要,可先将籽粒从穗上取下。
- 将单个籽粒放置在实验台上的一个平头橡胶塞上(图1B),确保该橡胶塞保持固定不动。
- 使用第二个平头橡胶塞(图1C)对籽粒进行摩擦脱壳,通过向第一个橡胶塞施加足够的压力并旋转摩擦(图1D)。去除籽粒外壳时需小心,避免胚乳破碎。如有残留的颖壳,可用精细镊子小心去除。脱壳后的籽粒如 图1E 所示。
- 使用精细镊子将单个脱壳籽粒插入一个塑料移液器吸头中(250 µL 规格,每吸头一粒种子)(图1F)。确保籽粒的胚部朝向移液器吸头的(锥形)末端(图1G)。
注意:以这种方式插入籽粒可确保其尽可能紧密地贴合在吸头内,因为籽粒近端较窄。 - 将第二个 250 µL 移液器吸头插入,以将籽粒推入并固定在吸头内,确保切片过程中籽粒不会移动,同时注意不要损坏籽粒或弯曲第二个吸头(图1H)。正确的“套筒式”组装方式如 图1I 所示。
- 将组装好的移液器吸头平放在实验台上,用手固定(图1J)。另一只手使用锋利的手术刀片(No. 20)穿过籽粒中心进行切割,并切掉吸头末端(图1K)。使用刀片切割出厚度为 1 mm 的水稻籽粒切片(图1L)。
注意:籽粒切片被紧密包裹在一圈塑料环内(图1M)。三种代表性基因型的平均切片厚度见 表1。若切片显著薄于 1 mm,则容易碎裂或崩解。若本实验用于比较多个水稻品种,需特别注意记录每个切片在籽粒中的原始位置,因为淀粉形态在胚乳不同区域存在差异11。
2. 水稻横切面的反射光显微镜观察
- 使用精细镊子将横切的水稻切片(按第1节方法制备)放置在一张厚重的黑色纸片上。
- 使用配备可调节灯臂以实现斜射照明的体视显微镜,获取日本晴(Nipponbare)横切面的明场图像,如图1N-S所示。
- 在至少10倍放大倍数下观察胚乳形态。
注意:由于该技术获得的切片不够薄,透射光无法有效穿透,因此建议使用落射荧光光源,优于明场显微镜观察。
3. 水稻横截面的扫描电子显微镜观察
- 将样品置于粘附在铝制样品台上的碳盘上,并放入电荷减少样品架中。使用精细镊子从移液器吸头架上取下塑料环 ,以防止塑料进入扫描电镜(SEM)的真空装置。
注意:使用台式扫描电镜设备获取胚乳细胞、淀粉粒(SGs)及亚颗粒的图像,该设备无需对样品进行溅射镀膜。 - 使用高灵敏度多模式背散射电子(BSE)探测器在10 kV条件下获取图像。
结果
在三种放大倍数(260×、920× 和 4200×)下观察野生型日本晴(图 2A)和 ssg1 突变体切片(图 2B)。该技术可制备出质量足够高的切片,用于观察完整的胚乳细胞(图 3A)、复合淀粉粒(图 3B)以及单个亚颗粒(图 3C)。与精米相比,带壳稻谷因需通过研磨去除干燥的外壳,处理时间更长。垩白籽粒的处理时间也比透明度高的精米更长,因为在切片过程中需格外小心以避免籽粒破碎。一张制备良好的水稻切片厚度应约为 0.9 mm(表 1),胚乳几乎无或仅有轻微破碎(图 1N),果皮层和糊粉层保持完整(图 1O)。切片过程中若刀片在移液器吸头上的位置不当,可能导致切片出现“缺口”(图 1P)。类似地,ssg1 突变体最佳横切面的明场图像(图 1Q)显示胚乳、果皮层和糊粉层均完整,可用于清晰观察(图 1R)。尽管垩白籽粒切片发生断裂(图 1S)后仍可用于观察淀粉粒(SGs),但无法显示胚乳细胞的排列模式,且断裂的切片在后续分析中可能难以操作。在野生型日本晴中观察到更多的胚乳细胞壁剪切现象,因其细胞排列更紧密且脆性低于 ssg1 突变体籽粒。在 ssg1 突变体切片中未观察到胚乳细胞壁的剪切,且复合淀粉粒保持完整。
图 S1 使用“望远镜”技术对稻米籽粒进行切片,证明了结果的可靠性。鉴定出的透明籽粒水稻品系——野生型抗性淀粉(RS)杂交种 Xieyou 7954Oryza sativa L. ssp. indica12,13,14 (图 S1A)以及钴诱导产生的突变株 RS11113,15 (图S1B)在体视显微镜下观察到有透光区域的切片。相应的扫描电镜图像显示,这些籽粒表现出“正常”水稻胚乳表型:淀粉颗粒紧密排列,呈多面体形。垩白籽粒生产者为商业品种 Yi-Tang16 (图 S1C)和 RS413,RS111的一个突变体15 (图 S1D),表现出白色、不透明的胚乳。相应的扫描电镜图像显示,其形态与野生型透明RS背景品系存在显著差异:淀粉颗粒呈圆形且排列疏松。野生型秀水11(Oryza sativa L. ssp. japonica) (图 S1E)及其突变体KMD1(Kemingdao1),它们表达的 Cry1Ab 基因以抑制昆虫捕食17,18,19 (图 S1F表现出与透明RS品系相似的切片特征和胚乳形态类型。
本文介绍的技术最适合用于制备 chalky 型稻米籽粒样本以进行表型分析,同时也适用于透明型稻米籽粒表型的切片分析20:通过上方施加压力进行切片,可降低胚乳破碎和移位的风险。样本可在数秒内快速制备(表 2)。为验证该技术的有效性,已对多个基因型进行了分析(表 3)。如 图 S2 所示,该技术也可应用于其他物种的种子。模式单子叶植物 Brachypodium distachyon 产生非常坚硬的种子,其中仅含有 B 型淀粉粒21,且缺乏赋予淀粉粒柔软性的蛋白 puroindoline A22。即便如此,仍可获得完整的横切面(图 S2A)。从软质白冬小麦(SWWW)中获取完整横切面较为困难,但仍可实现(图 S2B)。与 B. distachyon 种子和稻米籽粒相比,SWWW 种子富含 puroindoline A 且体积较大。使用套筒装置进行切片时,这些种子常发生碎裂。
| 基因型 | 平均截面宽度(µm)使用望远镜组件 | 平均切片厚度µm徒手切片 |
| 日本晴(去壳) | 971.7 ± 152.4ab | 1059.571 ± 394.2ab |
| 协优7954 | 825.1 ± 128.3b | 1306.187 ± 179.1a |
| RS4 | 910.6 ± 165.0ab | 1126.694 ± 395.3ab |
| 均值后标有相同字母者在 P < 使用单因素方差分析(ANOVA)和Tukey检验(n = 10),显著性水平设为0.01。统计分析采用JMP 15软件完成。 | ||
表1:籽粒截面平均厚度。
| 基因型 | 平均时间(s)* |
| 日本晴(去壳) | 14.7 ± 1.36a |
| 协优7954 | 9.81 ± 0.98b |
| RS4 | 11.9 ± 1.28c |
| *使用望远镜组件。 | |
| 均值后标有相同字母者在相应水平上差异不显著 P < 使用单因素方差分析(ANOVA)和Tukey检验(n = 10),显著性水平设为0.01。统计分析采用JMP 15软件完成。 | |
表2:样品制备的平均时间。
| 基因型 | 背景 | 品质 |
| Nipponbare | 野生型 | 半透明 |
| Substandard starch grain1 (ssg1) | Nipponbare | 粉质 |
| 抗性淀粉 Xieyou 7954 | 野生型 | 半透明 |
| RS111 | Xieyou 7954 | 半透明 |
| RS4 | RS111 | 粉质 |
| Yi-Tang, ‘New Life’, Lujuren 品牌 | Xieyou 7954 | 粉质 |
| 秀水11 | 野生型 | 半透明 |
| Kemingdao1 (KMD1) | 秀水11 | 半透明 |
表3:本研究中检测的水稻基因型。
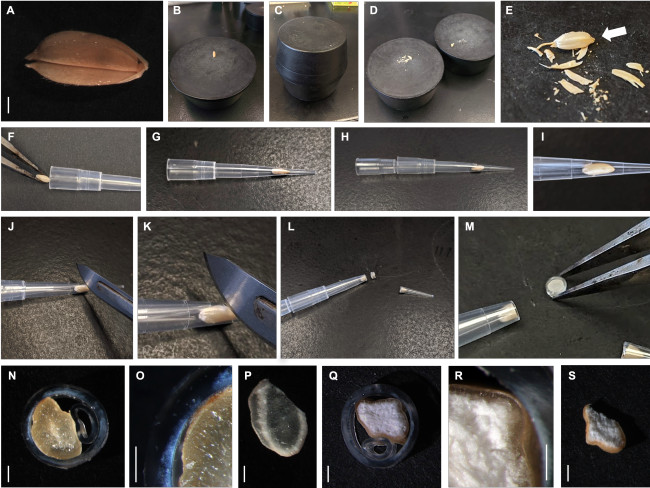
图 1:水稻横切面的制备。(A)带有完整颖壳的野生型日本晴稻谷。(B)将稻谷放置于一个直径四英寸的平底橡胶塞上。(C)通过将稻谷夹在两个相对的橡胶塞之间研磨以去除颖壳。(D)颖壳已从水稻籽粒上分离。(E)去壳水稻籽粒的特写。标示出胚部末端。(F)使用精细镊子将籽粒插入移液枪头中。(G)籽粒被固定在移液枪头的远端。(H)插入第二个移液枪头以固定籽粒,便于切片(形成“套筒式”组装结构)。(I)水稻籽粒紧密地嵌入移液枪头的远端。(J)在该组装结构内对水稻籽粒进行切片。(K)切片截面的特写。(L)由塑料环包裹的籽粒切片。(M)横切面的特写。(N)野生型日本晴的横切面。(O)野生型日本晴切片中胚乳的特写。(P)野生型日本晴籽粒的较差、非理想切片。(Q)日本晴突变体 ssg14 的横切面。(R)ssg1 切片中胚乳的特写。(S)ssg1 突变体籽粒的较差、非理想切片。标尺(图 A,N–S)= 1 mm。整个水稻籽粒及切片使用体视显微镜配合数码变焦相机和鹅颈灯成像。请点击此处查看该图的放大版本。
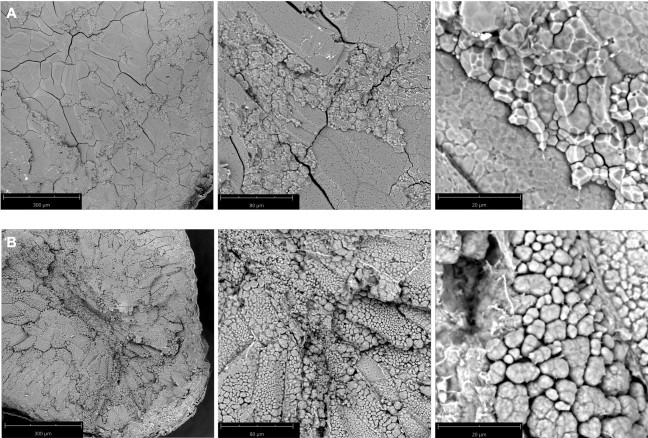
图2:籽粒横切面的扫描电镜图像。(A)野生型日本晴,一种透明胚乳品种。复合淀粉粒之间紧密粘连;(B)日本晴突变体ssg14,表现为粉质表型。复合淀粉粒排列松散,缺乏野生型日本晴淀粉形态类型的粘结性特征。从左至右放大倍数分别为:260x、920x 和 4200x。标尺长度在图中已标示。请点击此处查看本图的高清版本。
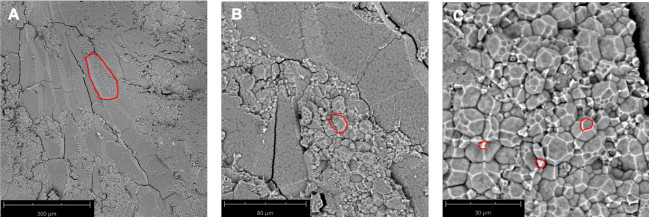
图3:秀水11号籽粒横切面的扫描电镜显微结构。(A)单个胚乳细胞以红色标出。放大倍数260倍。(B)复合淀粉粒以红色标出。放大倍数920倍。(C)多个淀粉亚颗粒以红色标出。放大倍数2250倍。标尺长度在图中标示。请点击此处查看该图的高清版本。
图S1:利用本技术制备的其他水稻基因型的横切面扫描电镜图。(A)抗性淀粉(RS)品种协优795412。(B)RS111,7954的高抗性淀粉透明突变体13。(C)RS4,RS111的粉质突变体15。(D)宜糖,一种高直链淀粉含量的商业水稻品种16。(E)秀水11。(F)KMD1(Kemingdao1)17,18,19。明场图像放大倍数为10倍。白色标尺 = 1 mm。SEM图像放大倍数为2250倍。标尺长度在图中标出。请点击此处下载该图。
图S2:该技术适用于其他种子。(A)拟南芥型短柄草(Brachypodium distachyon L. 品系Bd21)种子的横切面。(B)软质白皮冬小麦(Triticum aestivum L. 品种Augusta)种子的横切面。明场,20倍放大。比例尺 = 1 mm。请点击此处下载该图片。
讨论
本文介绍的技术是一种快速、简便且灵敏的方法,可用于制备水稻横截面样本,以进行台式扫描电镜(SEM)观察。该切片技术可快速观察胚乳结构、胚乳细胞的形状、大小和排列方式、复合淀粉粒以及淀粉粒形态。在进行胚乳表型分析和种质资源筛选时,获得完整的水稻籽粒横截面至关重要4,23,24。必须将整个籽粒完全插入移液器吸头中,以防止解剖刀片施加的压力导致胚乳碎裂或崩解。只要“望远镜”式组装结构正确构建,即可在15秒内完成样本制备(表2),且所需材料均为典型实验室常备物品。该技术适用于最大直径约为4毫米的椭球形种子的横切。模式禾本科植物 Brachypodium distachyon 的种子(图S2A)也可采用类似方法切片,但无法稳定保留在环形结构内。较大的种子(如小麦)在切片时容易断裂,需格外小心(图S2B)。
然而,本研究所介绍的技术存在若干局限性。采用该技术获得的切片厚度不足以让光线穿透,因此无法用于基于透射光的显微技术,例如明场显微镜(水稻籽粒切片的最大厚度为500 µm25)和透射电子显微镜(TEM)(最大切片厚度为500 nm26)。使用移液器吸头作为切片“基质”也限制了可切片种子的尺寸。若要将该技术应用于与水稻差异较大的物种,还需进一步优化;此外,“基质”的尺寸受限于市售移液器吸头的规格。
该技术提供的另一个显著优势是能够从垩白表型稻米籽粒中制备出高质量的样品。值得注意的是,即使是松岛的研究也承认,使用其特定方法对垩白表型样品获取横切面存在困难4,本研究为比较目的重复了该方法(图1S)。在他们的研究中,必须对垩白稻米样品进行化学固定并包埋于树脂中才能切片。而新方法结合台式扫描电镜成像,使研究人员能够更一致、更简便地制备用于显微观察的稻米籽粒横切面,其操作稳定性优于缺乏固定支撑时的制备效果(Table 3)。
在表型组学和代谢组学的新时代,监测诱变品系和转座子标签文库对于深入理解种子中淀粉的功能与重要性具有重要意义。此外,国际水稻基因库保存了超过13万份水稻种质资源27。像本文所介绍的快速种子表型分析技术将有助于加快营养品质的分类与取样工作28。最后,鉴于气候变化影响日益加剧,该技术可能具有重要应用价值。灌浆期的季节性高温胁迫已被确认为导致稻米垩白的主要原因6,而近期研究进一步指出全球气温上升与水稻产量中垩白程度增加密切相关7,29。此类快速的胚乳表型分析技术有助于全面揭示全球气温升高对农业生产的广泛影响。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢 Systems for Research(SFR Corp.)提供 Phenom ProX 台式扫描电镜仪器,并感谢 Maria Pilarinos(Systems for Research(SFR)Corp.)和 Chloë van Oostende-Triplet(细胞生物学与图像采集核心设施,渥太华大学医学院)提供的技术支持。本研究由安大略省经济发展、就业创造与贸易部的低碳创新基金(LCIF)以及 Proteins Easy Corp. 提供资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| JMP 15 | SAS | N/A | N/A |
| Leit 导电碳片 12 mm(每包100片) | Agar Scientific | AGG3347N | N/A |
| Phenom Pro 桌面型扫描电镜 | 赛默飞世尔科技 | PHENOM-PRO | N/A |
| 移液器吸头 RC UNV 250 µL | Rainin | 17001116 | N/A |
| SEM针式样品台 Ø12.7 毫米直径顶部,标准针型,铝制 | 微米到纳米 | 10-002012-50 | N/A |
| Shandon 微切细尖镊子,细尖,12.7 cm | 赛默飞世尔科技 | 3120019 | N/A |
| Shandon 20号无菌手术刀片,4.5 cm | 赛默飞世尔科技 | 28618256 | N/A |
| Shandon 不锈钢手术刀片刀柄 | 赛默飞世尔科技 | 5334 | N/A |
| 蔡司 V20 Discovery 体视显微镜 | 蔡司 | N/A | N/A |
参考文献
- James, M. G., Denyer, K., Myers, A. M. Starch synthesis in the cereal endosperm. Current Opinion in Plant Biology. 6 (3), 215-222 (2003).
- Shapter, F. M., Henry, R. J., Lee, L. S. Endosperm and starch granule morphology in wild cereal relatives. Plant Genetic Resources. 6 (2), 85-97 (2008).
- Ashida, K., Iida, S., Yasui, T. Morphological, physical, and chemical properties of grain and flour from chalky rice mutants. Cereal Chemistry. 86 (2), 225-231 (2009).
- Matsushima, R., Maekawa, M., Fujita, N., Sakamoto, W. A rapid, direct observation method to isolate mutants with defects in starch grain morphology in rice. Plant and Cell Physiology. 51 (5), 728-741 (2010).
- Zhao, X., et al. Identification of stable QTLs causing chalk in rice grains in nine environments. Theoretical and Applied Genetics. 129 (1), 141-153 (2016).
- Nagato, K., Ebata, M. Effects of high temperature during ripening period on the development and the quality of rice kernels. Japanese Journal of Crop Science. 34 (1), 59-66 (1965).
- Zhao, X., Fitzgerald, M. Climate change: implications for the yield of edible rice. PLoS One. 8 (6), 66218(2013).
- Zhao, Z. K., Mu, T. H., Zhang, M., Richel, A. Effects of high hydrostatic pressure and microbial transglutaminase treatment on structure and gelation properties of sweet potato protein. LWT - Food Science and Technology. 115, 108436(2019).
- Feiz, L., et al. Puroindolines co-localize to the starch granule surface and increase seed bound polar lipid content. Journal of Cereal Science. 50 (1), 91-98 (2009).
- Zhao, L., Pan, T., Guo, D., Wei, C. A simple and rapid method for preparing the whole section of starchy seed to investigate the morphology and distribution of starch in different regions of seed. Plant Methods. 14 (1), 16(2018).
- Zhao, L., Pan, T., Cai, C., Wang, J., Wei, C. Application of whole sections of mature cereal seeds to visualize the morphology of endosperm cell and starch and the distribution of storage protein. Journal of Cereal Science. 71, 19-27 (2016).
- Li, C., Dong, S., Li, G., Yuan, G., Dong, W. Breeding and application of the new combination of hybrid rice "Xieyou 7954". Journal of Zhejiang University (Agriculture and Life Sciences). 19 (3), 179-181 (2002).
- Shu, X., Jia, L., Ye, H., Li, C., Wu, D. Slow digestion properties of rice different in resistant starch. Journal of Agricultural and Food Chemistry. 57 (16), 7552-7559 (2009).
- Zhou, H., et al. Critical roles of soluble starch synthase SSIIIa and granule-bound starch synthase Waxy in synthesizing resistant starch in rice. Proceedings of the National Academy of Sciences. 113 (45), 12844-12849 (2016).
- Yang, C. Z., et al. Starch properties of mutant rice high in resistant starch. Journal of Agricultural and Food Chemistry. 54, 523-528 (2006).
- Zhou, Y., Zou, Y., Jiang, Y., Li, B. Detection methods for resistance starch content of Yi-Tang rice and optimization of pretreatment. Food Science and Biotechnology. 36, 416-419 (2017).
- Cheng, X., Sardana, R., Kaplan, H., Altosaar, I. Agrobacterium-transformed rice plants expressing synthetic cryIA(b) and cryIA(c) genes are highly toxic to striped stem borer and yellow stem borer. Proceedings of the National Academy of Sciences of the United States of America. 95 (6), 2767-2772 (1998).
- Liu, H., et al. Rapid detection of P-35S and T-nos in genetically modified organisms by recombinase polymerase amplification combined with a lateral flow strip. Food Control. 107, 106775(2020).
- Shu, Q., et al. Transgenic rice plants with a synthetic cry1Ab gene from Bacillus thuringiensis were highly resistant to eight lepidopteran rice pest species. Molecular Breeding. 6 (4), 433-439 (2000).
- Lisle, A. J., Martin, M., Fitzgerald, M. A. Chalky and translucent rice grains differ in starch composition and structure and cooking properties. Cereal Chemistry. 77 (5), 627-632 (2000).
- Chen, G., et al. Dynamic development of starch granules and the regulation of starch biosynthesis in Brachypodium distachyon: comparison with common wheat and Aegilops peregrina. BMC Plant Biology. 14 (1), 198(2014).
- Giroux, M. J., Morris, C. F. Wheat grain hardness results from highly conserved mutations in the friabilin components puroindoline a and b. Proceedings of the National Academy of Sciences of the United States of America. 95 (11), 6262-6266 (1998).
- Matsushima, R., Hisano, H. Imaging amyloplasts in the developing endosperm of barley and rice. Scientific Reports. 9, 3745(2019).
- Matsushima, R., et al. Amyloplast-localized SUBSTANDARD STARCH GRAIN4 protein influences the size of starch grains in rice endosperm. Plant Physiology. 164 (2), 623-636 (2014).
- Monjardino, P., et al. Development of flange and reticulate wall ingrowths in maize (Zea mays L.) endosperm transfer cells. Protoplasma. 250 (2), 495-503 (2013).
- Tizro, P., Choi, C., Khanlou, N. Sample preparation for transmission electron microscopy. Methods in Molecular Biology. 1897, 417-424 (2019).
- International Rice Genebank. , Available from: www.irri.org (2018).
- Liu, Q. H., Zhou, X. B., Yang, L. Q., Li, T. Effects of chalkiness on cooking, eating and nutritional qualities of rice in two indica varieties. Rice Science. 16 (2), 161-164 (2009).
- Morita, S., Wada, H., Matsue, Y. Countermeasures for heat damage in rice grain quality under climate change. Plant Production Science. 19 (1), 1-11 (2016).
重印与许可
标签
