本文介绍了培养具有不同形态(代表不同病理状态)的心肌细胞,并根据这些贴壁心肌细胞在单细胞水平的形态特征对其进行分选的方法。该平台为不同类型心力衰竭的高通量分析和药物筛选提供了一种新策略。
本文内容
摘要
摘要
不同类型的心肌肥厚均与心肌细胞(CMs)体积增大以及心肌细胞形态的改变相关。尽管细胞体积对基因表达的影响已较为明确,但细胞形状的影响尚不清晰。本文介绍了一种旨在系统分析心肌细胞形态对基因表达影响的方法,详细描述了一种新型的单细胞捕获策略,并结合单细胞mRNA测序技术。研究设计了一种微图案芯片,包含3000个矩形纤连蛋白微图案,可使心肌细胞在不同的长宽比(AR)条件下生长,对应于不同类型的心力衰竭(HF)。本文还介绍了一种从微图案中拾取单个细胞的实验方案,使用半自动化的微移液细胞挑选装置,将单个细胞分别注入独立的裂解缓冲液中。该方法实现了对具有明确几何形态的单个心肌细胞转录组的分析,并可根据一系列正常或病理状态对其进行表征:如肥厚型心肌病(HCM)或后负荷/向心性肥厚,与扩张型心肌病(DCM)或前负荷/离心性肥厚。综上所述,本文提出了一种培养代表不同病理状态的、具有不同形态的心肌细胞的方法,并可在单细胞水平上根据其形态对贴壁的心肌细胞进行分选。该平台为不同类型心力衰竭的高通量分析及药物筛选提供了新途径。
引言
根据世界卫生组织的数据,心血管疾病(CVD)是全球范围内导致发病和死亡的主要原因。心血管疾病显著影响人们的生活质量,并带来巨大的社会经济负担。心肌病(如肥厚型心肌病HCM和扩张型心肌病DCM)是心肌的原发性功能障碍,也是心力衰竭(HF)的主要病因,与高发病率和高死亡率密切相关。心力衰竭的病因多种多样,包括环境因素,例如感染、接触毒素或某些药物8。心力衰竭也可能由遗传易感性引起,即基因突变9。目前认为,影响细胞外基质(ECM)分子、整合素或细胞骨架蛋白的遗传组成改变,可能导致机械感知功能受损,并引发多种类型的心脏疾病10。
HCM 的主要特征是无法解释的左心室肥厚11,有时也表现为右心室肥厚12,且常以室间隔受累为主。HCM 还表现为舒张功能障碍以及心肌细胞排列紊乱和纤维化13。在大多数情况下,心脏收缩装置因肌节蛋白的突变而受到影响,导致心肌细胞收缩力增强14。相比之下,DCM 的特征是一侧或双侧心室扩张,在 30% 至 50% 的病例中具有家族性病因15。DCM 影响广泛的细胞功能,导致心肌细胞收缩功能受损、细胞死亡及纤维化修复16。
遗传学研究表明,在肥厚型心肌病(HCM)3过程中,某些类型的突变会迫使单个心肌细胞(CM)呈现出特定的形态特征,即呈方形的细胞,其长宽比(AR)几乎等于1:14(AR1)。扩张型心肌病(DCM)的情况也是如此,表现为细胞拉长,AR几乎等于11:1(AR11)。此外,心力衰竭(HF)也可能由后负荷增加(例如在高血压中)引起。在这种情况下,根据拉普拉斯定律(Laplace’s law),血流动力学需求迫使心肌细胞变为方形,AR从7:15(AR7)变为1:16,7。心力衰竭也可能由前负荷增加引起(例如在导致容量超负荷的疾病状态下)。当这种情况发生时,生物物理限制迫使心肌细胞伸长,AR从7:1变为11:1。
细胞膜上的信号活性依赖于整体细胞几何参数,例如细胞长宽比(AR)、细胞大小、膜表面积以及膜曲率18。当新生大鼠心肌细胞(CMs)被接种在经过图案化处理、可限制细胞特定长宽比的基底上时,若该比值接近健康成年心脏中心肌细胞的比值,则其收缩功能表现最佳。相反,当比值接近衰竭心脏中心肌细胞的比值时,其功能表现较差19。在肥厚早期阶段,细胞会变宽,表现为横截面积增加。心力衰竭(HF)发生在肥厚的后期阶段,此时细胞通常呈现拉长形态。因此,在慢性心肌肥厚的大鼠体内模型中,报道显示左心室心肌细胞长度增加了约30%20,而急性施加肥厚刺激的转基因小鼠心肌细胞在体外实验中则主要表现为细胞宽度的类似增加21,这些结果并不令人意外。
单细胞RNA测序技术能够精确分析单个细胞的转录组,目前正在深刻改变人们对细胞生物学的理解。在探究细胞形态如何影响基因表达这一问题时,该技术成为首选方法。我们比较了具有不同形态的单个细胞,特别是长宽比(AR)为1:1、7:1或11:1的细胞。为此,我们将新生大鼠心室心肌细胞(CMs)接种到一种特殊设计的芯片上,芯片表面含有经纤连蛋白包被、且具有明确长宽比(1:1、7:1或11:1)的微图案2。这些微图案采用光刻技术制备,并以纤连蛋白包被,周围则为抗细胞黏附的表面。因此,心肌细胞仅能在纤连蛋白基质上贴附、铺展并获得微图案所定义的特定长宽比,同时避免在抗细胞黏附区域生长。这些微图案并非凹陷结构,而是纤连蛋白区域与周围抗细胞黏附区域处于完全相同的高度。这种设计为细胞生长提供了类似于在培养皿中的环境,避免了来自周围壁面的机械应力。此外,不同长宽比的微图案具有相等的表面积。
实验设计中有两个特别重要的方面,导致必须使用单细胞RNA测序而非批量RNA测序。首先,只有很小比例的微图案能够被单个细胞占据。其次,有时单个细胞并不能完全覆盖微图案的表面。必须挑选那些完全覆盖微图案表面的单个细胞用于单细胞RNA分析。由于芯片上接种的细胞中仅有一小部分同时满足这两个条件,因此无法简单地用胰蛋白酶消化整块芯片并收集所有细胞进行批量RNA测序。合格的细胞需要使用半自动细胞挑选仪逐一挑选。
目前尚不清楚心肌细胞的形状本身是否会对心肌合胞体的内部功能产生影响。本文所提出方法的主要目的是建立一个新平台,用于研究细胞形状本身是否会影响转录组17。尽管体外研究与体内研究存在差异,但本研究旨在探讨不同细胞形状对基因表达的影响,同时需认识到在体内比较具有不同形状的细胞极为困难。这些实验受到Kuo等人19的启发,他们曾采用类似方法,并报告观察到细胞形状改变会引起生理参数的变化。
方案
所有涉及动物的实验程序均符合瑞典斯德哥尔摩卡罗林斯卡学院动物伦理委员会的规定。
1. 微图案化芯片布局
- 使用定制设计的芯片(材料表)(图1A):一种尺寸为19.5 mm × 19.5 mm的盖玻片,其上通过光刻技术在硼硅酸盐玻璃表面印制了活化的微图案。
注意:这些微图案周围具有抗细胞黏附区域,因此接种的细胞只能附着并生长在这些微图案之一上,并受限于该微图案的长宽比(AR)。芯片分为三个区域,每个区域包含具有特定长宽比(AR)的微图案。芯片布局如图1B所示。定义的长宽比(AR)几何形状见表1。不同形状的纤连蛋白微图案的放大荧光图像显示在图1B的下方图像中。
2. 包被微图形芯片
- 通过将 80 µg 纤连蛋白加入 2 mL 磷酸盐缓冲液(PBS-/-)中,为每个芯片配制 2x 包被蛋白溶液。
- 将一个芯片转移至 35 mm Greiner 培养皿中,并立即加入 2 mL PBS-/-,然后加入 2 mL 2x 包被蛋白溶液。
- 在室温下孵育芯片 2 小时。
- 用 PBS-/- 通过连续稀释步骤洗涤包被溶液。芯片表面应始终保持湿润。随后,用 2 mL 铺板培养基替换 PBS,并在 37 °C 孵育直至接种细胞。
3. 心肌细胞的分离
- 通过在DMEM:M199(4:1)中添加10%马血清、4%胎牛血清、2% HEPES(1 M)和1%青霉素/链霉素(10,000 U/mL)来制备铺板培养基22.
- 从出生2天的新生大鼠心脏左心室中分离组织,转移至含有PBS的10 cm培养皿中。将组织切成约1 mm大小的碎块。3 片
- 将收获的组织转移至带有转子盖的离心管中,该管盖配备有用于组织解离的转子材料表让组织自然沉降,然后小心移除上清液。
- 加入 2.5 mL 酶混合物 1 和 2 的混合液,该混合液使用新生儿心脏解离试剂盒(Neonatal Heart Dissociation Kit)配制材料表),加入C管中,然后 tightly 拧紧管盖。
- 将转子盖管插入配备加热器的解离仪套筒中图2A 和 B) (材料表)。运行孵育程序 37C_mr_NHDK_1(图2C),持续约一小时。
- 在孵育程序运行的同时,配制含有2 mM EDTA和0.5%牛血清白蛋白(BSA)的PBS缓冲液(pH 7.2),并置于4 °C保存。
- 孵育程序结束后,取下转子帽管(图 2D)并加入7.5 mL预热的铺板培养基。
- 重悬样品,并使用70 µm滤网过滤细胞悬液。
- 用另外3 mL的涂布培养基冲洗过滤器。
- 将细胞悬液在 600 x g 5 分钟后,彻底吸除上清液。
- 将细胞沉淀重悬于60 µL预冷的PEB缓冲液中。
- 加入20 µL新生大鼠心肌细胞分离混合液(Neonatal Cardiomyocyte Isolation Cocktail)材料表),含有针对非心肌细胞的微米级珠粒。
- 加入20 µL抗红细胞微珠(Anti-Red Blood Cell beads)材料表).
- 将悬液混匀,4 °C 孵育 15 分钟。
- 加入400 µL PEB缓冲液。
- 将细胞悬液加入LD柱中(材料表),已垂直插入磁力架中,并用PEB缓冲液充分洗涤。
- 收集未标记的细胞,并用 0.5 mL PEB 缓冲液洗涤柱子。
- 加入8 mL铺板培养基,将细胞悬液转移至75 cm²培养瓶中2 未包被的培养瓶中,37 °C孵育1.5小时。未贴壁的非心肌细胞将开始黏附于未包被的细胞培养瓶表面,从而使细胞悬液中心肌细胞群体得到富集。
4. 心肌细胞的图案化
注意:我们比较了具有 1:1、7:1 或 11:1 长宽比(AR)的单个心肌细胞(CM)。该实验通过将分离的新生大鼠心肌细胞接种到特制的芯片上实现,芯片上含有经纤连蛋白包被、且具有明确定义的 1:1、7:1 或 11:1 长宽比的微图案。这些微图案表面涂覆有纤连蛋白,并被细胞排斥性表面所包围;因此,心肌细胞仅能在纤连蛋白基质上贴附、铺展,并获得微图案所限定的特定长宽比。请依照以下步骤对分离的心肌细胞进行图案化处理。
- 将细胞悬液转移至15 mL离心管中,计数细胞,并通过加入适量的铺板培养基将细胞稀释至浓度为每毫升100,000个细胞。
- 将2 mL细胞悬液加入芯片中,该芯片已预先置于35 mm Greiner培养皿内含2 mL预热铺板培养基的环境中。
- 将培养皿在37 °C、5% CO2条件下孵育,使心肌细胞(CMs)贴附于纤维连接蛋白包被的微图案上,并使每个心肌细胞获得其基底微图案的各向异性结构(AR)。
- 18小时后检查芯片。若大多数细胞已贴附,则去除附着在图案化细胞上的碎片和死细胞。方法为移除铺板培养基,从芯片中心开始向四周逐滴加入PBS-/-,轻轻冲洗,重复2次。
- 吸除PBS,换加新鲜维持培养基,该培养基由DMEM:M199(4:1)组成,并添加4%马血清、4%胎牛血清、2% HEPES(1 M)和1%青霉素/链霉素(10,000 U/mL)。
5. 挑选贴壁的心肌细胞
注意:经过72小时的培养后,使用半自动细胞挑选仪(材料表)(图3)从纤连蛋白微图案上挑选出单个心肌细胞(CM)。该细胞挑选仪通过软件23控制电动载物台(图3A)。采用一根70 µm的玻璃微毛细管(图3B)来拾取并注射图案化新生大鼠心肌细胞。细胞挑选仪通过产生负压吸附细胞,并通过施加压力将细胞注入目标位置。1号注射器中的负压由注射泵拉动注射器产生(图3C)。静水压力则依靠重力形成,通过将2号注射器置于显微镜台上方87 cm处实现。1号和2号注射器分别通过聚四氟乙烯(PTFE)管连接至控制单元内的1号和2号阀门(图3D)。PTFE管内完全充满无RNase水。拾取的单个细胞随后被注入含有3.55 µL裂解缓冲液的聚合酶链式反应(PCR)管中。
- 培养72小时后,移除旧培养基,并用预热的DPBS轻轻冲洗芯片表面-/-.
- 将培养皿保持水平,用1000 µL移液器从培养皿一侧轻轻吸出旧培养基。确保芯片始终处于湿润状态。
- 加入 2 mL DPBS-/- 从芯片中心开始,逐渐向两侧轻轻逐滴冲洗,使附着在图案化细胞上的大部分死细胞脱落。
- 吸除大部分 DPBS,尽可能去除脱落的悬浮细胞,从芯片中央开始,然后移向两侧。
- 重复步骤 5.1.2 和 5.1.3 一次。
- 使用斜角镊夹住芯片边缘,并立即转移至新的无菌35 mm Greiner培养皿中,以减少挑选过程中漂浮细胞的数量。
- 立即加入 1.5 mL DPBS-/- 以免芯片干燥。
- 加入1.5 µL Vibrant Dye Cycle green以标记活细胞的细胞核。
- 使用镊子尖端将芯片置于Greiner培养皿的中央。
- 放置一个腔室(材料表) 覆盖在芯片上。该腔室将芯片固定在培养皿底部,同时不阻碍对细胞图案的接触。
- 将 Greiner 培养皿安装到细胞挑选仪载物台的培养皿支架上,并插入磁性盖。
- 校准自动注射装置。
- 在实时视图窗口的图像中央,找到刻在电动载物台上的十字准线。
- 对准十字线并选择 自动注射校准 按钮在 扫描与分选 窗
- 更换DPBS-/- 用1.5 mL DPBS/胰蛋白酶-/- (1:1) 当培养皿位于载物台上时,将细胞从纤连蛋白上解离,以便使用流体负压吸取细胞。
- 使用扫描仪对整个芯片进行扫描 扫描 标签页中的 扫描与分选 窗口。在视野中找到芯片的左上角,然后单击 获取当前显微镜位置 左上角行
- 然后,将电动载物台移动到芯片的右下角。调节显微镜焦距并点击 获取当前显微镜位置 右下角行
- 点击 设置最清晰焦平面 按钮,在弹出的窗口中点击 前往右上角. 调整显微镜焦距并点击 前往左下角 并调整焦距。完成后,单击 完成 按钮并开始扫描。
- 扫描结束后,前往 分析 点击标签并选择符合研究标准的单个细胞。
- 确保玻璃微毛细管位于显微镜实时视野的中央。
- 使用注射泵控制器 泵 软件窗口。使用直径为27 mm的50 mL一号注射器抽出4 mL空气,以产生真空。
- 在 分选 标签
- 设置阀门的注射参数。经计算,当阀门2开启120毫秒,经过200毫秒的时间间隔后,再开启阀门1持续20毫秒,此时注射体积为1 μl,可递送一个被挑选的单细胞。由于管路具有弹性,需打开阀门1以停止液体流动。
- 设置阀门的拾取参数。经计算,若将阀门1开启20毫秒,随后在10毫秒的时间间隔后将阀门2开启10毫秒,可拾取大部分已图案化的细胞。这是因为细胞经胰蛋白酶处理后,其纤连蛋白结合已变得松散。
- 点击 计算路径 按钮。该软件会计算细胞间的最短路径,以在芯片内逐个捕获并注射选定的细胞。
- 将显微镜聚焦于芯片表面具有特定排列的细胞。
- 使用操纵杆小心地将微毛细管向下移动,直至在不接触细胞的情况下获得微毛细管尖端最清晰的图像。
- 点击 设置 按钮在 微移液管偏移 部分。新窗口将弹出,显示微毛细管的横截面。点击毛细管的精确中心。软件随后将记录毛细管在x、y和z坐标中的尖端偏移量。
- 使用以下方式启动分选 开始分选 按钮。
结果
从出生2天的大鼠心脏左心室中分离组织,并将其解离为单细胞。随后,将富集的心肌细胞(CMs)接种到含有不同纵横比(ARs)纤连蛋白图案的芯片上。培养72小时后,用DPBS-/-中1:1000的Vibrant Dye Cycle Green染液替换培养基,孵育2分钟以标记活细胞的细胞核。接着,使用DPBS-/-/胰酶(1:1)处理细胞,使细胞从纤连蛋白基质上松动,以便利用流体负压辅助进行单细胞挑选。在此期间,通过连接细胞挑选装置的倒置显微镜以10倍放大倍数对整个芯片进行扫描。该步骤在细胞因胰酶处理而变圆之前完成。根据扫描图像选择符合条件的细胞,并将其坐标保存至细胞挑选软件中。仅当微图案中包含一个单核单细胞,且该细胞完全覆盖其对应的纤连蛋白微图案时,才选择该图案。细胞分选装置逐个拾取选定的细胞,每一个成功拾取的单细胞立即被注入单独的PCR管中,并置于显微镜载物台上。每根PCR管中含有3.55 µL裂解缓冲液(表2)。从更换培养基开始的整个分选过程在40分钟内完成。基于Smart-Seq2方案24(表3),对裂解后的单细胞进行互补脱氧核糖核酸(cDNA)合成、PCR预扩增及纯化。使用自动化电泳分析仪检测纯化后cDNA的质量。图4展示了从一个成功拾取的单细胞获得的预扩增cDNA的电泳图谱。RNA-Seq文库的构建依照Smart-Seq2方案24进行。
为了观察图案化心肌细胞的肌节结构,使用肌节α-肌动蛋白抗体对图案化心肌细胞进行染色。细胞在室温下与1:800稀释的驴抗小鼠IgG Alexa Fluor 488二抗孵育1小时。细胞核用1 µg/mL的DAPI染色。使用倒置共聚焦显微镜配备63倍油镜(NA 1.4)物镜获取免疫荧光图像(图5)。
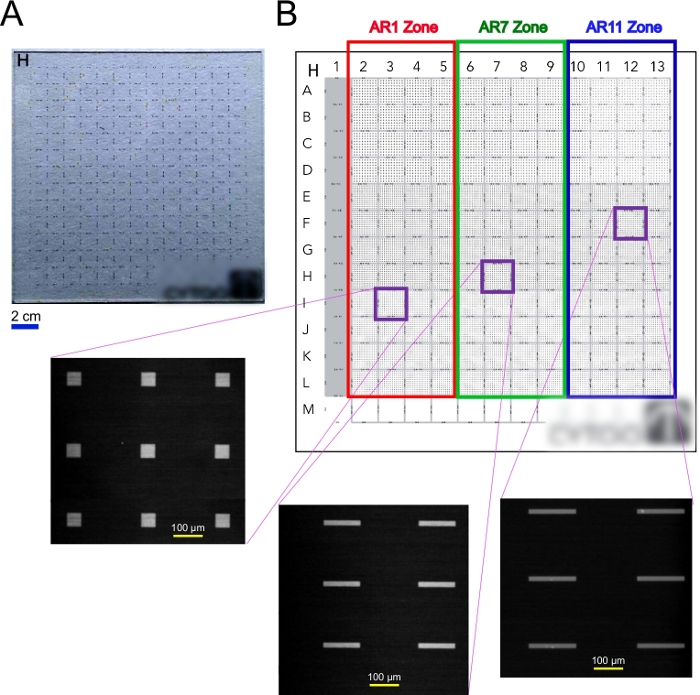
图1:带有纤连蛋白微图案芯片的布局。
(A)定制芯片的图像。该芯片为一块19.5 mm × 19.5 mm的盖玻片,其上通过光刻技术在硼硅酸盐玻璃上印制了纤连蛋白微图案。(B)芯片布局。芯片分为三个区域,每个区域包含具有特定长宽比(AR)的纤连蛋白微图案。各区域的纤连蛋白微图案不同形状的荧光图像在放大视图中显示。该图已根据Haftbaradaran Esfahani等人的“补充材料1”修改2,使用许可为http://creativecommons.org/licenses/by/4.0/。请点击此处查看此图的放大版本。
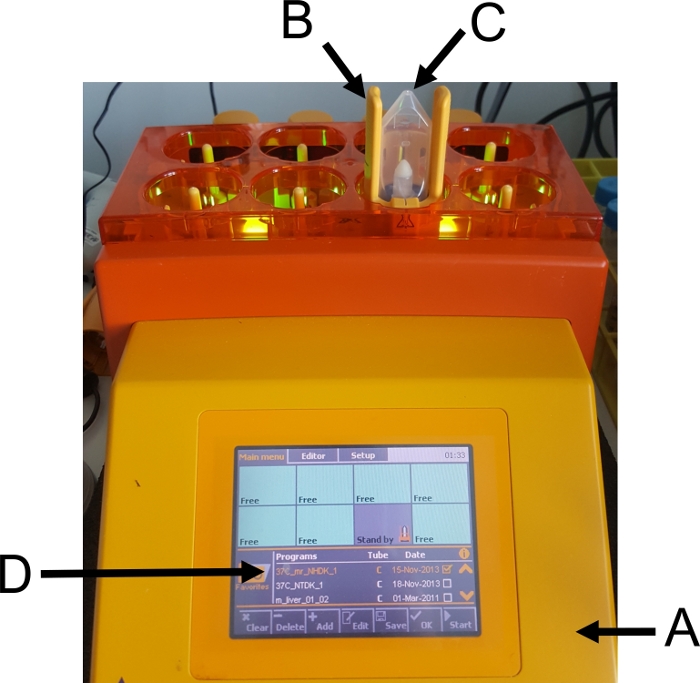
图 2:配备加热装置的组织解离仪。
(A) 用于全自动解离出生2天的新生大鼠左心室的完整组织解离仪器。(B) 加热单元。(C) 转子-盖管。(D) 用于组织解离全自动工作流程的即用型程序。 请点击此处查看该图的放大版本。
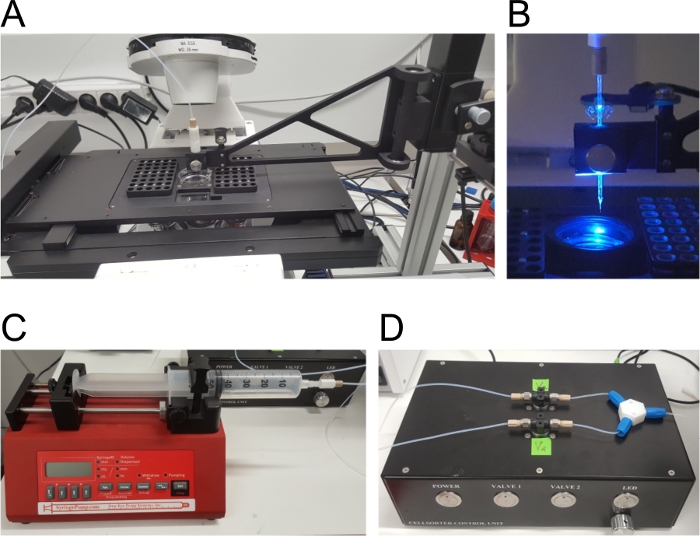
图3:细胞挑选装置。
(A)细胞挑选器电动载物台的放大视图。载物台上嵌有培养皿支架、80个用于10个PCR条板的孔位,以及一个用于校准十字线的孔位。(B)玻璃微毛细管的放大视图。(C)注射泵。(D)控制单元,用于控制阀1和阀2开关时间窗口,安装于控制单元内部。请点击此处查看该图的放大版本。
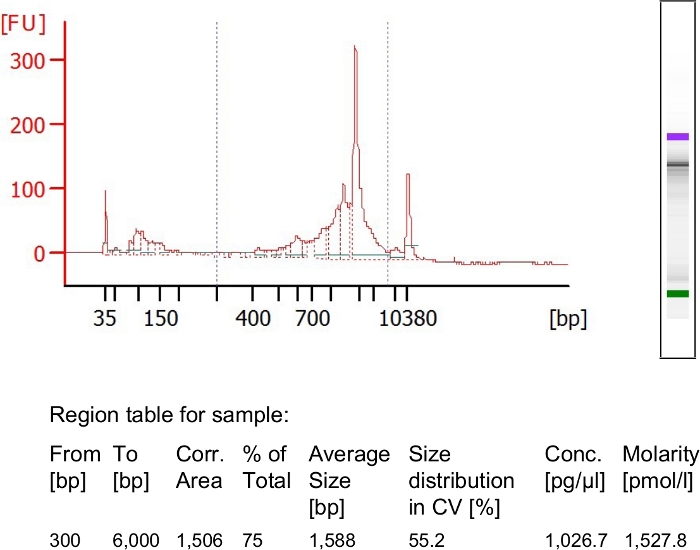
图4:单个挑选细胞的cDNA预扩增产物的电泳图谱。
采用19个PCR循环进行预扩增,获得15 µL浓度为1 ng/µL的纯化cDNA。在类凝胶密度图中可见一条清晰条带,对应于电泳图谱中1852 bp处的峰。片段的平均长度为1588 bp。此外,短于300 bp的片段含量较少,表明cDNA文库质量良好。请点击此处查看该图的放大版本。
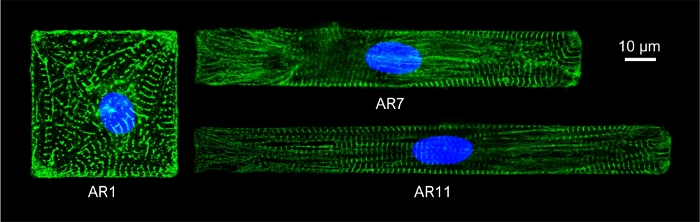
图5:不同长径比(AR)图案化心肌细胞(CMs)中α-肌动蛋白丝状结构(绿色)和细胞核(蓝色)的免疫荧光染色。
染色质使用DAPI进行染色。请点击此处查看该图的放大版本。
| 形态类型 | 长宽比 | 长度 (µm) | 宽度 (µm) | 纤连蛋白面积 (µm2) |
| AR1 | 1:1 | 47 | 47 | 2209 |
| AR7 | 7:1 | 126 | 18 | 2268 |
| AR11 | 11:1 | 155 | 14 | 2170 |
表1:图案化心肌细胞的几何参数。
| 组分 | 体积 (µL) |
| 无核酸酶水 | 0.65 |
| (0.4% vol/vol) Triton X-100 | 1.8 |
| dNTP 混合液 (25 mM) | 0.8 |
| RNase 抑制剂 (40 U µL⁻¹) | 0.1 |
| Oligo-dT30VN 寡核苷酸 (100 µM) | 0.1 |
| ERCC RNA 外参混合液 (2.5 × 10⁵ 稀释) | 0.1 |
| 注入的单细胞 | 1 |
| 总体积 | 4.55 |
表2:单细胞定制裂解缓冲液。
| 组分 | 体积 (µL) |
| Superscript II 第一链缓冲液 (5x) | 2 |
| DTT (100 mM) | 0.5 |
| 甜菜碱 (5 M) | 2 |
| Mgcl2 (1 M) | 0.1 |
| RNase 抑制剂 (40 U µL-1) | 0.25 |
| Superscript II 逆转录酶 (200 U µL-1) | 0.5 |
| TSO (100 µM) | 0.1 |
| 总体积 | 5.45 |
表3:逆转录(RT)反应混合液,用于从单个CM裂解液中合成第一链cDNA的一次RT反应。
讨论
本研究采用了单细胞RNA测序技术,这是一种新颖且强大的技术,能够检测单个细胞的转录组。该技术结合了一种创新的单个心肌细胞培养方法,使其呈现出不同的轴突反应(ARs),而这些反应原本只能在体内观察到。
本研究存在一些局限性。例如,必须使用新生心肌细胞(CMs)来生成不同的形态类型,因为将足量的有活力的成年心肌细胞在特定形状下体外培养72小时极具挑战性。此外,心肌细胞在体外培养了72小时,这可能影响了其基因表达模式。然而,这种培养是必要的,以使细胞能够形成特定的形态类型。此外,仅选择单核且完全覆盖纤连蛋白微图案的单个细胞进行分选。每张芯片上的图案化细胞必须仅通过一轮分选完成分选操作。最后,每张芯片大约成功捕获了50个细胞,约占所选细胞总数的三分之一。成功捕获细胞数量受限主要有两个原因:第一,部分细胞与纤连蛋白图案结合过于紧密,而捕获液流力度不足以将其成功拾取;第二,由于胰蛋白酶处理,某些细胞与纤连蛋白之间的黏附变得过于松散,因此当微毛细管接近时,这些细胞被推离其纤连蛋白微图案,导致未能被捕获。作者并不声称该实验体系与体内环境完全相同,但已证明其为回答研究问题的一种可行方法。
该方法适用于多种细胞类型(例如 hiPS-CMs)。然而,研究其他细胞类型时需对以下因素进行优化。应使用适合特定细胞类型的细胞外基质(ECM)黏附分子来包被微图案表面。微图案的几何形状应根据研究问题和细胞类型进行调整。培养时间可根据研究目的进行修改。细胞解离试剂及其孵育时间需针对具体研究的细胞类型精确优化。例如,对于胚胎干细胞和神经干细胞的解离,可使用 Accutase 替代 TryplE。微流控阀门的开启时间参数需仔细优化,以实现对细胞的成功且温和的捕获。总之,我们开发了一种研究细胞形态的新型平台,可为该领域的研究人员提供有价值的工具。在此背景下,我们设计了一种实验方法,模拟体内血流动力学约束对心肌细胞(CM)施加的典型形态特征,以揭示细胞结构与基因表达之间的相互关系。我们还报道了一种用于体外研究心力衰竭(HF)的新型平台,并发现细胞形态是调控基因表达的一个强有力决定因素。这一新发现对生物学和医学具有深远意义。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2100 生物分析仪 | Agilent Technologies | G2939BA | 自动化电泳分析仪 |
| 抗红细胞微珠 | Miltenyi Biotec | 130-109-681 | |
| Axio Observer 显微镜 | Zeiss | Z1 | 倒置显微镜 |
| 甜菜碱溶液(5 M) | Sigma-Aldrich, MERCK | B0300 | |
| CellSorter | CELLSORTER | https://www.singlecellpicker.com/ | 单细胞挑选仪 |
| CYTOOchamber | CYTOO | 30-010 | 定制芯片 |
| CYTOOchip | CYTOO | 10-950-00-18 | 培养腔 |
| DMEM | Thermo Fisher Scientific | 31966-021 | 高糖,含 GlutaMAX 补充剂 |
| dNTP 混合液(25 mM) | Thermo Fisher Scientific | R1122 | |
| 驴抗小鼠 IgG Alexa Fluor 488 | Abcam PLC | ab150105 | |
| DTT(100 mM) | Thermo Fisher Scientific | 18064071 | |
| ERCC RNA 外参混合物 | Thermo Fisher Scientific | 4456740 | |
| 胎牛血清 | Thermo Fisher Scientific | 10082-147 | |
| 纤连蛋白 | Sigma-Aldrich, MERCK | F4759 | |
| gentleMACS C 管 | Miltenyi Biotec | 130-093-237 | 转子盖管 |
| 带加热功能的 gentleMACS Octo 组织解离器 | Miltenyi Biotec | 130-096-427 | 带加热功能的组织解离器 |
| Greiner CELLSTAR 培养皿 | Sigma-Aldrich, MERCK | P6987 | |
| HEPES(1 M) | Thermo Fisher Scientific | 15630-056 | |
| 马血清 | Sigma-Aldrich, MERCK | H0146 | |
| LD 柱 | Miltenyi Biotec | 130-042-901 | |
| Medium 199 | Thermo Fisher Scientific | 31150-022 | |
| NE-1000 注射泵 | New Era Pump Systems | NE-1000 | 注射泵 |
| 新生大鼠心肌细胞分离试剂盒 | Miltenyi Biotec | 130-105-420 | |
| 新生小鼠和大鼠心脏组织解离试剂盒 | Miltenyi Biotec | 130-098-373 | |
| Oligo-dT30VN 寡核苷酸 | IDT Technology | 5′–AAGCAGTGGTATCAACGCAGAGTACT30VN-3′ | |
| RNase 抑制剂(40 U µL-1) | Clontech | 2313A | |
| 肌节性 α-肌动蛋白 | Sigma-Aldrich, MERCK | EA-53 | |
| SP8 共聚焦显微镜 | Leica Microsystems | SP8 | 共聚焦显微镜 |
| Superscript II 第一链合成缓冲液(5x) | Thermo Fisher Scientific | 18064071 | |
| Superscript II 逆转录酶(200 U µL-1) | Thermo Fisher Scientific | 18064071 | |
| Triton X-100 | Sigma-Aldrich, MERCK | T9284 | |
| TryplE Express 酶(无酚红) | Thermo Fisher Scientific | 12604013 | |
| TSO(100 µM) | QIAGEN | 5′-AAGCAGTGGTATCAACGCAGAGTACATrGrG+G-3′ | |
| Vibrant Dye Cycle green | Thermo Fisher Scientific | V35004 |
参考文献
- Heineke, J., Molkentin, J. D. Regulation of cardiac hypertrophy by intracellular signalling pathways. Nature Reviews Molecular Cell Biology. 7 (8), 589-600 (2006).
- Haftbaradaran Esfahani, P., et al. Cell shape determines gene expression: cardiomyocyte morphotypic transcriptomes. Basic Research in Cardiology. 115 (1), 7(2019).
- Kontrogianni-Konstantopoulos, A., Benian, G., Granzier, H. Advances in Muscle Physiology and Pathophysiology 2011. Journal of Biomedicine and Biotechnology. 2012, 930836(2012).
- Hill, J. A., Olson, E. N. Cardiac plasticity. New England Journal of Medicine. 358 (13), 1370-1380 (2008).
- Bray, M. A., Sheehy, S. P., Parker, K. K. Sarcomere alignment is regulated by myocyte shape. Cell Motility and the Cytoskeleton. 65 (8), 641-651 (2008).
- Benjamin, I. J., Schneider, M. D. Learning from failure: congestive heart failure in the postgenomic age. Journal of Clinical Investigation. 115 (3), 495-499 (2005).
- Opie, L. H., Commerford, P. J., Gersh, B. J., Pfeffer, M. A. Controversies in ventricular remodelling. Lancet. 367 (9507), 356-367 (2006).
- Braunwald, E. Cardiomyopathies: An Overview. Circulation Research. 121 (7), 711-721 (2017).
- Knoll, R., et al. The cardiac mechanical stretch sensor machinery involves a Z disc complex that is defective in a subset of human dilated cardiomyopathy. Cell. 111 (7), 943-955 (2002).
- Frangogiannis, N. G. The Extracellular Matrix in Ischemic and Nonischemic Heart Failure. Circulation Research. 125 (1), 117-146 (2019).
- Marian, A. J., Braunwald, E. Hypertrophic Cardiomyopathy: Genetics, Pathogenesis, Clinical Manifestations, Diagnosis, and Therapy. Circulation Research. 121 (7), 749-770 (2017).
- Mozaffarian, D., Caldwell, J. H. Right ventricular involvement in hypertrophic cardiomyopathy: a case report and literature review. Clinical Cardiology. 24 (1), 2-8 (2001).
- Olsson, M. C., Palmer, B. M., Stauffer, B. L., Leinwand, L. A., Moore, R. L. Morphological and functional alterations in ventricular myocytes from male transgenic mice with hypertrophic cardiomyopathy. Circulation Research. 94 (2), 201-207 (2004).
- Toepfer, C. N., et al. Hypertrophic cardiomyopathy mutations in MYBPC3 dysregulate myosin. Science Translational Medicine. 11 (476), (2019).
- McKenna, W. J., Maron, B. J., Thiene, G. Classification, Epidemiology, and Global Burden of Cardiomyopathies. Circulation Research. 121 (7), 722-730 (2017).
- Schultheiss, H. P., et al. Dilated cardiomyopathy. Nature Reviews Disease Primers. 5 (1), 32(2019).
- Knoll, R. A role for membrane shape and information processing in cardiac physiology. Pflugers Arch. 467 (1), 167-173 (2015).
- Rangamani, P., et al. Decoding information in cell shape. Cell. 154 (6), 1356-1369 (2013).
- Kuo, P. L., et al. Myocyte shape regulates lateral registry of sarcomeres and contractility. American Journal of Pathology. 181 (6), 2030-2037 (2012).
- Gerdes, A. M., Onodera, T., Wang, X., McCune, S. A. Myocyte remodeling during the progression to failure in rats with hypertension. Hypertension. 28 (4), 609-614 (1996).
- Kehat, I., et al. Extracellular signal-regulated kinases 1 and 2 regulate the balance between eccentric and concentric cardiac growth. Circulation Research. 108 (2), 176-183 (2011).
- Sreejit, P., Kumar, S., Verma, R. S. An improved protocol for primary culture of cardiomyocyte from neonatal mice. In Vitro Cellular & Developmental Biology - Animal. 44 (3-4), 45-50 (2008).
- Kornyei, Z., et al. Cell sorting in a Petri dish controlled by computer vision. Scientific Reports. 3, 1088(2013).
- Picelli, S., et al. Full-length RNA-seq from single cells using Smart-seq2. Nature Protocols. 9 (1), 171-181 (2014).
- Schmick, M., Bastiaens, P. I. H. The interdependence of membrane shape and cellular signal processing. Cell. 156 (6), 1132-1138 (2014).
重印与许可
