我们描述了一种简单的方法,用于从非洲爪蟾(Xenopus laevis)胚胎中分离的深部外胚层细胞培养黏液纤毛上皮类器官。这些多能前体细胞可再生上皮杯状细胞前体,并允许对类器官表面细胞转化的起始与进展过程进行活体示踪。
本文内容
摘要
摘要
黏膜纤毛上皮通过黏液分泌和纤毛介导的清除作用,移除外来颗粒,提供第一道防御屏障。许多临床上重要的黏膜纤毛上皮缺陷因其发生于体内深层,只能间接推断。本文介绍一种可操作的三维模型,该模型由从非洲爪蟾(Xenopus laevis)胚胎中显微手术分离的多能前体细胞生成。黏膜纤毛上皮类器官由深层外胚层细胞新生的上皮覆盖,并在24小时内逐步形成具有明确空间排布的多纤毛细胞、分泌细胞以及黏液分泌型杯状细胞,其形态与天然表皮无法区分。类器官顶面发生的从间充质到上皮的动态细胞转变全过程,可通过高分辨率活体成像进行追踪。这些体外培养、可自我组织的黏膜纤毛上皮类器官在研究黏膜纤毛上皮生物学方面具有显著优势,包括高效生成、培养条件明确、数量与大小可控,以及在分化上皮再生过程中可直接进行活体成像观察。
引言
黏膜纤毛上皮的损伤、感染和疾病常伴随黏液生成和清除功能障碍,这在慢性阻塞性肺疾病、哮喘、囊性纤维化、支气管扩张症以及原发性纤毛运动障碍等肺部疾病中普遍存在1,2,3,4。近年来类器官技术取得进展,例如由基底细胞衍生的肺类器官——气管球(tracheosphere),可模拟黏膜纤毛上皮的再生过程,成为具有治疗潜力的新型模型1,5,6。然而,其应用目前仍受限,部分原因在于缺乏明确的培养条件以及类器官生成效率较低。人类呼吸道和青蛙表皮中的黏膜纤毛上皮在组织形态、细胞组成及其功能方面表现出显著相似性7,8,9,10,11,12。在这两类生物中,黏膜纤毛上皮通过分泌黏液和抗菌物质提供第一道防线,并借助纤毛的协调运动清除有害颗粒物和病原体。
本文介绍一种利用Xenopus laevis胚胎的多能前体细胞生成黏液纤毛上皮类器官的简单方案13,14。我们此前报道过14,在无外源生长因子和细胞外基质的条件下,通过显微手术分离的原肠胚早期外胚层深部细胞可自发聚集成团,在其表面再生上皮,并在24小时内通过嵌入多纤毛细胞及其他辅助细胞,成熟为黏液纤毛上皮。除发育迅速外,该方案还提供了直接观察多能性外胚层深部细胞向杯状细胞前体分化的机会,重现了受损上皮再生过程中的关键步骤14,而这些过程在完整的胚胎或外胚层(亦称动物极帽)中无法获得15,16,17。通过调控来自Xenopus胚胎的起始材料,可高效地按需调控所生成类器官的数量和大小。悬浮培养的类器官可在目标发育阶段被轻松分选和转移,用于后续分析,包括高分辨率成像、力学测试、药物处理以及遗传学表征14。这种由组织力学驱动、在胚胎细胞聚集体表面自发发生的上皮再生过程,可形成黏液纤毛上皮类器官,为研究黏液纤毛上皮生物学提供了一种新颖的三维(3D)模型。
方案
动物使用和实验方案已获基础科学研究所机构动物护理和使用委员会(IBS 18-01)和韩国科学技术院(KA2017-22)的批准。
1. 胚胎
- 获取 X. laevis 采用标准方法获取胚胎:从经刺激的雌性青蛙中人工采集卵子,并进行体外受精18,19.
- 在 pH 8 的 2% 半胱氨酸溶液(1/3× 改良 Barth 盐水,MBS;1× MBS 配方见下文)中,轻轻振荡处理受精胚胎约 5 分钟以去除胶状层19.
- 活体成像可选步骤:如需对类器官中特定蛋白进行荧光标记并观察其动态变化,请继续进行第5节操作。
- (可选)为了监测类器官中表层外胚层细胞的污染情况,可在第9期用NHS-罗丹明标记胚胎的顶端表面14将胚胎在含1 mg/mL NHS-罗丹明的1/3x MBS(pH 9.0)溶液中避光孵育30分钟,期间轻柔振荡。随后将胚胎转移至盛有1/3x MBS的培养皿中,洗涤3次,每次15分钟。
- 将胚胎置于1/3x MBS培养液中,在适宜温度(14–26 °C)下培养,直至观察到第10期的最初特征(即从植物极视角可见原肠胚孔周围出现深色色素细胞)。
2. 显微外科工具、溶液和培养容器的准备
- 准备显微手术所需的工具,包括一对外科级镊子以及毛发操作工具(毛发环和毛发刀)20。
- 准备以下用于胚胎的培养基:1/3X MBS,其中1X MBS的成分为 NaCl(88 mM)、KCl(1 mM)、NaHCO3(2.4 mM)、MgSO4(0.82 mM)、Ca(NO3)2(0.33 mM)、CaCl2(0.41 mM)和 HEPES(10 mM)。用10 M NaOH将pH值调节至7.4。
注意:可选步骤:可加入酚红溶液以指示pH值。 - 准备以下用于胚胎组织和类器官的培养基:Danilchik’s for Amy(DFA)21,并添加新鲜的1%抗生素和抗真菌溶液。DFA的成分为 NaCl(53 mM)、Na2CO3(5 mM)、葡萄糖酸钾(4.5 mM)、葡萄糖酸钠(32 mM)、CaCl2(1 mM)和 MgSO4(1 mM)。用颗粒状Bicine将pH值调节至8.3。使用0.2 μm瓶顶滤器过滤DFA,分装后于-20 °C保存。
- 通过使用上述配方并省略CaCl2和MgSO4,制备无钙无镁的DFA,用于从外胚层中分离深层细胞。分装后于-20 °C保存。
- 准备用于胚胎细胞聚集的非粘附性PCR管。
- 为诱导分离的胚胎细胞自发聚集,将圆底PCR管用200 μL 1% BSA溶液(1 g BSA溶于100 mL蒸馏水中)在4 °C过夜或室温下孵育2小时进行包被。每根PCR管用于组装一个类器官。
- 用DFA冲洗BSA包被的PCR管三次,以去除残留的BSA。
- 向PCR管中加入200 μL DFA。
3. 深层外胚层细胞的分离
- 在体视显微镜下使用毛发工具挑选并收集发育至早期第10阶段的胚胎。
- 使用一次性移液管将选好的胚胎转移至盛有DFA的培养皿中。
- 用尖头镊子从胚胎的植物极一侧去除卵黄膜,注意不要破坏胚胎的动物极一侧。
注意:务必避免将胚胎暴露于空气中。向溶液中引入气泡或将胚胎带至液面会导致胚胎破裂。 - 为分离动物帽,将胚胎的动物极朝上放置。
- 在显微镜下估测需要切除的动物帽范围,用毛发刀沿动物帽边缘进行第一道切口,并向外拉动毛发刀完成切割。
- 重复步骤3.5,通过一系列小切口连接形成完整切割,以分离动物帽。
- 使用毛发刀修剪动物帽边缘较厚的部分,以避免包含中胚层前体细胞。
注意:为防止分离后的动物帽愈合或发生聚集,请在10分钟内进入下一步操作。通常我们每次分离5–10个动物帽,用于组装多个类器官。 - 为将深层外胚层细胞从动物帽中分离,使用一次性移液管将已切除的动物帽转移至盛有无钙无镁DFA的培养皿中。转移过程中注意避免引入气泡。
- 为后续操作预留足够空间,使用毛发工具将动物帽调整为动物极朝上,并与其他外植块保持足够间距。
- 静置5–10分钟后,在体视显微镜下观察外植块。一旦在深色色素表层边缘发现松动的深层细胞,即在体视显微镜下用毛发刀开始将表层从浅色的深层外胚层细胞上掀起。
- 从边缘开始,小心地用毛发刀将表层完全剥离(揭下)。
- 用最小吸液体积(10‒15 μL)收集深层外胚层细胞,以减少在下一步中转移至聚集培养基中的无钙无镁DFA量。
注意:可将已脱落的表层细胞从培养液中移除,以防止其污染剩余的深层外胚层细胞。
4. 黏液纤毛上皮类器官的生成
- 将收集的深层外胚层细胞转移至含有 200 μL DFA 的非粘附性 PCR 管中。轻轻吹打培养基(2–3 次),使转移的细胞在 PCR 管中均匀分散。
注意:从本步骤开始计时,定义为聚集后小时数(hpa)。所形成类器官的大小由加入 PCR 管中的深层外胚层细胞数量决定。可根据所需类器官大小,使用一个或多个动物极帽的深层外胚层细胞。 - 盖紧 PCR 管,保持 PCR 管直立,以促使细胞在管底自发聚集。
- 在体视显微镜下监测聚集过程。通常细胞在 1 小时内聚集至 PCR 管底部,并在 2–3 小时内组装成球形聚集体,具体时间取决于聚集体大小。
- 若需在黏液纤毛上皮类器官发育过程中进行活体成像或药物测试,可在 2 hpa 时使用配有扩大的吸头(用无菌剪刀剪切而成)的 200 µL 移液器收集聚集体,以避免收集过程中对聚集体造成损伤。
- 为使聚集体在体外培养中进一步发育为黏液纤毛上皮类器官,可在 5 hpa 时从 PCR 管中收集球形聚集体,并将其转移至盛有 DFA 的培养皿中。
- 将聚集体彼此分开放置,防止其发生融合。在室温下培养 24 小时且未添加任何因子的情况下,即可观察到成熟的黏液纤毛上皮类器官因覆盖于分化上皮表面的纤毛摆动而持续旋转。
5. (可选)类器官发育过程的高分辨率活体成像
- 准备用于显微注射的 mRNA。
- 为了观察类器官形成初期发生的上皮化过程,准备上皮特异性紧密连接蛋白-1(ZO-1)的 mRNA,并通过扩增 pCS2-ZO1-RFP 和 pCS2-mem-GFP 质粒(由 Lance Davidson 惠赠)来标记细胞膜。
- 提取并线性化质粒 DNA,然后使用 SP6/T7 体外转录试剂盒合成带帽的 mRNA。
- 将转录好的 mRNA 分装后于 -80 °C 保存。
- 将 mRNA 显微注射至受精卵中
- 将受精卵置于含 3% Ficoll 的 1x MBS 溶液中。
- 使用显微加样吸头将 3–4 μL mRNA 加载至拉制的玻璃针(一种长而细、尖端内径为 10‒30 µm 的锥形针头)中。
- 将针头连接至显微注射仪,并调节时间和压力,以确保每次注射恒定体积的 mRNA。
- 将 mRNA 注射至动物极顶端表面下方。注射时可在动物极观察到因皮层扩张而形成的明显浅色圆形区域。
- 将注射后的胚胎转移至 1/3X MBS 中,并培养至 9.5 期。
- 在荧光体视显微镜下(GFP 激发/发射波长为 488/510,RFP 为 532/588)挑选出荧光标记的胚胎。
- 继续进行步骤 1.3。
- 组装并培养类器官(第 3 和第 4 部分),直至达到所需的发育阶段。
- 进行活体成像。
- 通过硅脂将盖玻片粘附于定制加工的丙烯酸成像室底部,制备玻璃底成像腔。
注意:应严密密封成像室,防止培养基泄漏。 - 向成像室中加入 DFA 培养基。
- 用镊子从容器中取出一个六边形透射电子显微镜(TEM)载网(75 目),并在其边缘涂抹少量硅脂。
注意:载网孔径应小于细胞聚集体的直径,以确保聚集体能稳定置于载网上。 - 轻轻按压,使 TEM 载网牢固贴附于成像室底部。
- 将细胞聚集体转移至成像室,并将其定位在载网内部。
注意:避免将聚集体放置在硅脂附近。在整个实验过程中,聚集体应仅接触 TEM 载网而不接触成像室底部,以防受到物理压迫。 - 向成像室中加满 DFA 培养基,并用盖玻片和硅脂密封。
注意:成像室必须完全密封且无气泡,以避免成像过程中产生湍流或移动。 - 为追踪黏膜纤毛上皮类器官形成的动态过程,使用共聚焦显微镜对聚集体进行延时 z 轴层扫成像(从 2 hpa 开始)。
注意:我们通常使用 20X 物镜每 15 分钟采集一次约 120 µm 厚的 z 轴层扫图像以观察细胞动态行为,但具体参数应根据实验目标进行优化。
- 通过硅脂将盖玻片粘附于定制加工的丙烯酸成像室底部,制备玻璃底成像腔。
6. (可选)通过固定和免疫染色对发育中的类器官进行成像
- 在发育的预期阶段,将类器官转移至装有固定液的玻璃小瓶中进行固定。
注意:加入的固定液体积应>20倍于样品体积,以确保完全固定。除非另有说明,后续步骤均在旋转摇床(nutator)上进行。通常情况下,类器官使用含4%多聚甲醛(PFA)的PBS溶液进行固定。然而,检测不同蛋白可能需要使用不同的固定液。例如,我们曾使用含0.25%戊二醛的4% PFA PBS溶液来检测F-肌动蛋白(F-actin)和乙酰化微管蛋白(acetylated tubulin)。为检测intelectin(ITLN)和ZO-1,类器官需在-20 °C条件下用预冷的Dent’s固定液(甲醇:二甲基亚砜 = 4:1)固定过夜。经Dent’s固定后的类器官在洗涤前应进行梯度脱水(步骤6.3)。抗体孵育和洗涤时间可根据具体实验需求进行优化。 - 在室温(RT)下固定15分钟,或在4 °C条件下固定过夜。
- 用PBST(含0.1% Triton X-100的PBS)在室温下洗涤3次,每次15分钟。
- 用含10%山羊血清的PBST(PBSTG)在室温下封闭非特异性结合位点,持续1小时。
- 在PBSTG中加入一抗(1:200稀释),于4 °C条件下孵育过夜。
- 用PBST在室温下洗涤3次,每次15分钟。
- 在PBSTG中加入二抗(1:200稀释),于4 °C条件下孵育过夜。
- 用PBST在室温下洗涤3次,每次15分钟。
- 将固定并完成免疫染色的类器官转移至成像腔室,进行共聚焦显微成像。
结果
该标准化方案可在培养24小时内,利用从早期原肠胚阶段的X. laevis胚胎中分离的多能前体细胞,生成具有黏液纤毛上皮结构的类器官14。所收集的深层外胚层细胞可在非黏附性PCR管中自发聚集并自组装成细胞团,随后发生表面上皮化及杯状细胞分化。细胞团新形成的上皮表面可为内部细胞(如多纤毛细胞及其他附属细胞)的嵌入提供类似于体内天然上皮的基质环境,并进一步发育形成黏液纤毛上皮类器官(图1A,B)。在聚集后24小时内,这些自组织形成的黏液纤毛上皮类器官可再生出成熟的表皮结构,其形态与蝌蚪的表皮无法区分。该类器官包含完全分化的上皮细胞(角蛋白)、分泌黏液的杯状细胞(ITLN)、多纤毛细胞(乙酰化微管蛋白)以及小分泌细胞(花生凝集素,PNA)(图1C)。
除了通过免疫染色确认不同细胞类型的发育外,还可通过活体成像追踪类器官发育的动态过程图2A)。为了观察类器官形成早期阶段出现的上皮化现象(图1B),我们通过表达荧光标记的紧密连接蛋白(ZO-1-RFP)和膜定位蛋白(mem-GFP)对胚胎进行标记。通过双标记,可在上皮化过程中标记并定量分析ZO-1阳性紧密连接形成的各个连续步骤(图2)。例如,对于细胞(图2B,在上皮化不同阶段(0 分钟时)呈现绿色),部分细胞间黏附区域显示出 ZO-1 的散在点状分布(图 2B,绿色箭头)。相比之下,其他区域则显示出完全组装、连续的 ZO-1 表达(图2B,黄色箭头)。随着时间推移,这些斑点逐渐融合并连接,形成连续的紧密连接(图 2B,绿色箭头),并且在细胞分裂期间仍保持其形态的连续紧密连接图2B,黄色箭头)。随着紧密连接的成熟,细胞在类器官的顶端平面上动态地进出表面图2C,D)。此外,通过在分化类器官表面进行细胞的时空追踪(图2B,通过颜色编码的细胞,可实现从单个点状结构到连续的紧密连接、细胞间边界以及类器官内细胞群体亚群的多尺度分析。

图1:黏液纤毛上皮类器官的生成。
(A) 示意图展示从X. laevis胚胎构建深层外胚层聚集体的实验流程。(B) 黏液纤毛上皮类器官形成的模型示意图(横截面视图),起源于多能性深层外胚层细胞。位于表面的细胞转变为上皮细胞,并分化为杯状细胞;正在分化的纤毛细胞、分泌细胞和离子细胞呈放射状插入表面,重建成熟的表皮层。(C) 类器官在24 hpa时及蝌蚪表皮的黏液纤毛上皮组织最大z投影图像,经ITLN(黏液分泌型杯状细胞)、乙酰化微管蛋白(纤毛细胞)、PNA(小型分泌细胞)和角蛋白(上皮细胞)免疫荧光染色(上图:类器官;下图:蝌蚪表皮)。比例尺 = 30 μm。请点击此处查看该图的放大版本。
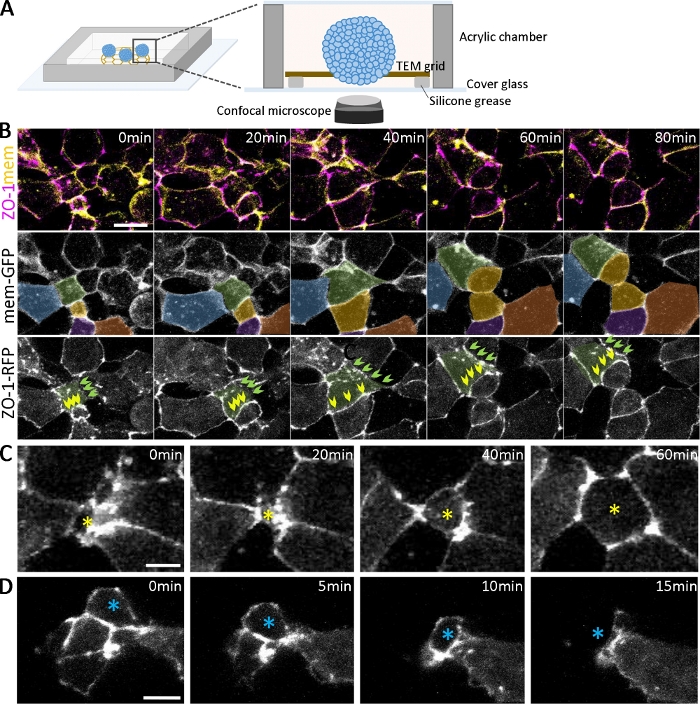
图2:类器官发育过程中的活体成像。
(A)活体类器官成像腔的示意图(未按比例绘制)。(B)从2.5 hpa开始,表达ZO-1-RFP和mem-GFP的深部外胚层细胞聚集体采集的共聚焦图像序列的时间推移。比例尺 = 20 μm。细胞采用伪彩色以实现随时间追踪。绿色标记的细胞具有不同的细胞黏附状态,包括一个随时间逐渐形成ZO-1阳性黏附的细胞(绿色箭头)和一个维持连续ZO-1阳性黏附的细胞(黄色箭头)。(C、D)表达ZO-1-RFP的深部外胚层细胞聚集体的时间推移共聚焦图像,显示径向嵌入的细胞向聚集体表面移动(C,黄色星号)以及向聚集体内部移动(D,蓝色星号)。比例尺 = 10 μm。 请点击此处查看该图的放大版本。
讨论
由 X. laevis 胚胎深部外胚层细胞生成的黏液纤毛上皮类器官是一种强大的工具,可用于在体外研究多能前体细胞的上皮化及分化过程。与广泛采用的动物帽检测法(animal cap assay)16 相比——后者常用于体外器官发生13 以及利用完整外胚层研究黏液纤毛上皮的发育15,17,22——本方案中所述的源自深部外胚层的类器官为监测由组织力学驱动的表面上皮再生阶段提供了独特的机会14。大约在2 hpa时,新生成的ZO-1阳性上皮细胞(图2)开始出现在类器官的顶面,并随着组织逐渐固化或顺应性降低而不断增殖,最终覆盖整个类器官14。在化学成分明确的培养基中,上皮再生以及随后向分泌黏液的杯状细胞谱系的特化过程可在一天内自发进行。这些快速发育的黏液纤毛上皮类器官为实时、高分辨率地观察上皮再生各个阶段中的动态细胞行为提供了平台。它们还能够用于探究黏液纤毛上皮发育、稳态及其相关疾病过程中出现的基本科学问题2,9,23。特别是,在类器官中发现的深部前体细胞在向杯状细胞前体转化过程中对机械刺激的敏感性14,可能为连接异常基础细胞分化相关的呼吸系统疾病提供机制解释,这类疾病中黏液分泌型杯状细胞可能过度或不足产生23。
尽管本方案为生成这些类器官提供了一种简便的方法,但实验成功仍依赖于若干关键步骤。在从动物极帽中分离深层外胚层细胞时,为防止表层上皮细胞的污染,应将动物极帽置于无钙、无镁的DFA溶液中,并在体视显微镜下观察,及时判断启动分离动物极帽深色色素层的合适时机。若组织在无钙、无镁DFA中孵育时间过长,整个组织将发生解离,导致无法区分深层与表层细胞,从而影响深层外胚层细胞聚集体的纯度。为确认深层外胚层聚集体中不存在表层细胞,建议使用NHS-罗丹明对胚胎顶端表面进行荧光标记(步骤1.4)14)在显微手术前进行;这将有助于在生成的类器官中轻松识别是否存在表面细胞。由于上皮再生受组织力学调控14,必须避免对自组织类器官产生非预期的力。特别是,我们建议在活体成像过程中避免聚集体与成像腔的玻璃底部接触,可将聚集体放置于透射电镜(TEM)载网的边缘,从而确保活体聚集体能够自由接触成像窗口(步骤 5.1.2)。该体外实验-一种可培养且自组织的三维黏膜纤毛上皮模型,将成为研究上皮再生过程中及杯状细胞谱系特化时所产生基本科学问题的可行工具。
披露
作者无任何利益冲突需要披露。
致谢
感谢Kim实验室成员和Lance Davidson的评论与支持。本工作由基础科学研究所(IBS-R0250Y1)授予HYK的青年科学家 fellowship 资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 仪器 | |||
| 双级玻璃毛细管拉制仪 | Narishige | PC-100 | |
| 皮升级显微注射仪 | Warner Instruments | PLI-100A | |
| 共聚焦激光显微镜 | |||
| 体视显微镜 | |||
| 工具 | |||
| 镊子 | Dumont | Dumont #5 | |
| 毛发刀 | 参考文献 (Kay, B.K.; Peng, H.B., 1991) | ||
| 毛发环 | 参考文献 (Kay, B.K.; Peng, H.B., 1991) | ||
| hCG 注射 | |||
| 人绒毛膜促性腺激素 | Sigma | cg10-10vl | |
| MBS 溶液 | |||
| 10M 氢氧化钠 | Sigma | 72068 | |
| 氯化钙 | Sigma | C3881 | |
| 硝酸钙 | Sigma | C1396 | |
| HEPES | Sigma | H4034 | |
| 硫酸镁 | Sigma | 230391 | |
| 酚红 | Sigma | P0290 | |
| 氯化钾 | Sigma | 7447-40-7 | |
| 碳酸氢钠 | Sigma | S6014 | |
| 氯化钠 | Sigma | S9625 | |
| 氢氧化钠试剂级,97%,粉末-25g | Sigma | 655104 | |
| 脱胶溶液 | |||
| 盐酸半胱氨酸一水合物 | Sigma | C7880 | |
| 10M 氢氧化钠 | Sigma | 72068 | |
| Ficoll 溶液 | |||
| Ficoll | Sigma | F4375 | |
| DFA 溶液 | |||
| 氯化钠 | Sigma | S9625 | |
| 0.22mm 滤膜 | Millipore | S2GPT05RE | |
| 抗生素-抗真菌溶液 | Sigma | A5955 | |
| Bicine | Sigma | B3876 | |
| 氯化钙 | Sigma | C3881 | |
| 硫酸镁 | Sigma | 230391 | |
| 葡萄糖酸钾 | Sigma | G4500 | |
| 碳酸钠 | Sigma | 222321 | |
| 葡萄糖酸钠 | Sigma | G9005 | |
| mRNA 体外转录 | |||
| SP6/T7 体外转录试剂盒 | Invitrogen | AM1340 | |
| mRNA 显微注射 | |||
| 硼硅酸盐玻璃毛细管 | Harvard Apparatus | GC100-10 | |
| Eppendorf 微量移液器吸头 | ThermoFisher | A25547 | |
| 矿物油 | Sigma | M5904 | |
| PCR 管包被 | |||
| BSA | Thermofisher | 26140079 | |
| PCR 管 | SSI | SSI-3245-00 | |
| 成像 | |||
| 定制铣削丙烯酸腔室 | |||
| 盖玻片 24mm×50mm | Duran | B01_001650 | |
| SPI 六角形透射电镜载网,镀金镍(50目) | SPI | 275HGN-XA | |
| SPI 六角形透射电镜载网,镀金镍(75目) | SPI | 2775GN-XA | |
| 硅脂 | Shinetsu | HIVAC-G | |
| 固定 | |||
| 20ml 螺口瓶 | Wheaton | WH.986580 | |
| 2ml 螺口瓶 | |||
| 苯甲醇 | Sigma | 305197 | |
| 苯甲酸苄酯 | Sigma | B6630 | |
| 二甲基亚砜(DMSO) | Sgima | D4540 | |
| 戊二醛 10% 电镜级 | Electron Microscopy Sciences | 16120 | |
| 山羊血清 | Jackson | 005-000-121 | |
| 甲醇 | Sigma | 322415 | |
| 多聚甲醛 | Sigma | P6148 | |
| 磷酸盐缓冲液(PBS) | LPS Solution | CBP007B | |
| 吐温 X-100 | Sigma | T8787 | |
| 一抗(1:200) | |||
| 乙酰化微管蛋白 | Sigma | 克隆 6-11B-1 | |
| Itln1 | Proteintech | 11770-1-AP | |
| 角蛋白 | 发育研究杂交瘤库 | 1h5 | |
| ZO1 | Invitrogen | 402200 | |
| 载体 | |||
| pCS2-mem-GFP | 由 Lance Davidson 博士惠赠 | ||
| pCS2-ZO1-RFP | 由 Lance Davidson 博士惠赠 |
参考文献
- Barkauskas, C. E., et al. Lung organoids: current uses and future promise. Development. 144 (6), 986-997 (2017).
- Puchelle, E., Zahm, J. M., Tournier, J. M., Coraux, C. Airway Epithelial Repair, Regeneration, and Remodeling after Injury in Chronic Obstructive Pulmonary Disease. Proceedings of the American Thoracic Society. 3 (8), 726-733 (2006).
- Tilley, A. E., Walters, M. S., Shaykhiev, R., Crystal, R. G. Cilia dysfunction in lung disease. Annual Review of Physiology. 77, 379-406 (2015).
- Vareille, M., Kieninger, E., Edwards, M. R., Regamey, N. The Airway Epithelium: Soldier in the Fight against Respiratory Viruses. Clinical Microbiology Reviews. 24 (1), 210-229 (2011).
- Rock, J. R., et al. Basal cells as stem cells of the mouse trachea and human airway epithelium. Proceedings of the National Academy of Sciences of the United States of America. 106 (31), 12771-12775 (2009).
- Sachs, N., et al. Long-term expanding human airway organoids for disease modeling. The EMBO Journal. 38 (4), 100300(2019).
- Dubaissi, E., et al. A secretory cell type develops alongside multiciliated cells, ionocytes and goblet cells, and provides a protective, anti-infective function in the frog embryonic mucociliary epidermis. Development. 141 (7), 1514-1525 (2014).
- Hayes, J. M., et al. Identification of novel ciliogenesis factors using a new in vivo model for mucociliary epithelial development. Developmental Biology. 312 (1), 115-130 (2007).
- Walentek, P., Quigley, I. K. What we can learn from a tadpole about ciliopathies and airway diseases: Using systems biology in Xenopus to study cilia and mucociliary epithelia. Genesis. 55 (1-2), (2017).
- Werner, M. E., Mitchell, B. J. Understanding ciliated epithelia: The power of Xenopus. Genesis. 50 (3), 176-185 (2012).
- Dubaissi, E., Papalopulu, N. Embryonic frog epidermis: a model for the study of cell-cell interactions in the development of mucociliary disease. Disease Models & Mechanisms. 4 (2), 179-192 (2011).
- Walentek, P., et al. A novel serotonin-secreting cell type regulates ciliary motility in the mucociliary epidermis of Xenopus tadpoles. Development. 141 (7), 1526-1533 (2014).
- Asashima, M., et al. In vitro organogenesis from undifferentiated cells in Xenopus. Developmental Dynamics. 238 (6), 1309-1320 (2009).
- Kim, H. Y., Jackson, T. R., Stuckenholz, C., Davidson, L. A. Tissue mechanics drives regeneration of a mucociliated epidermis on the surface of Xenopus embryonic aggregates. Nature Communications. 11 (1), 665(2020).
- Haas, M., et al. DeltaN-Tp63 Mediates Wnt/beta-Catenin-Induced Inhibition of Differentiation in Basal Stem Cells of Mucociliary Epithelia. Cell Reports. 28 (13), 3338-3352 (2019).
- Green, J. Molecular Methods in Developmental Biology: Xenopus and Zebrafish. Guille, M. , Humana Press. 1-13 (1999).
- Stubbs, J. L., Davidson, L., Keller, R., Kintner, C. Radial intercalation of ciliated cells during Xenopus skin development. Development. 133 (13), 2507-2515 (2006).
- Nieuwkoop, P. D., Faber, J. Normal table of Xenopus laevis (Daudin) : a systematical and chronological survey of the development from the fertilized egg till the end of metamorphosis. , Garland Pub. (1994).
- Sive, H. L., Grainger, R. M., Harland, R. M. Early development of Xenopus laevis : a laboratory manual. , Cold Spring Harbor Laboratory Press. (2000).
- Joshi, S. D., Kim, H. Y., Davidson, L. A. Microscopy tools for quantifying developmental dynamics in Xenopus embryos. Methods in Molecular Biology. 917, 477-493 (2012).
- Sater, A. K., Steinhardt, R. A., Keller, R. Induction of neuronal differentiation by planar signals in Xenopus embryos. Developmental Dynamics. 197 (4), 268-280 (1993).
- Sedzinski, J., Hannezo, E., Tu, F., Biro, M., Wallingford, J. B. Emergence of an Apical Epithelial Cell Surface In Vivo. Developmental Cell. 36 (1), 24-35 (2016).
- Rock, J. R., Randell, S. H., Hogan, B. L. M. Airway basal stem cells: a perspective on their roles in epithelial homeostasis and remodeling. Disease Models & Mechanisms. 3 (9-10), 545-556 (2010).
重印与许可
