新生小鼠感染发光的 E. coli O1:K1:H7 后,会引发败血症感染,并伴随显著的肺部炎症和肺组织病理变化。本文描述了利用纵向活体成像结合系统性细菌载量计数、炎症因子谱分析及肺组织组织病理学检查,建立并进一步研究新生儿败血症模型的实验方法。
本文内容
摘要
摘要
由于新生儿在生命最初几个月内表现出独特的免疫特征,他们面临更高的细菌性败血症风险。我们建立了一种研究大肠杆菌(E. coli)O1:K1:H7血清型致病机制的实验方案,该血清型在新生儿中可导致高死亡率。本方法利用活体成像技术,在感染进程的不同时间点对新生仔鼠进行动态观察。结合血液中细菌载量测定、炎症因子谱分析及组织病理学检查,该方法为深入理解败血症期间的感染动态提供了严谨的研究体系。在本研究中,我们构建了两种不同感染剂量模型,以比较细菌负荷与疾病严重程度。结果显示,接种后10小时即可观察到肩胛下感染引发的全身播散性感染。至24小时,发光标记的大肠杆菌(E. coli)在血液、肺脏及其他外周组织中均大量存在。肺组织中炎症细胞因子的表达在24小时显著升高,并伴随细胞浸润及组织损伤迹象,且损伤程度随感染剂量增加而加重。活体成像技术虽存在一定局限性,包括发光信号检测阈值以及新生动物在麻醉过程中可能出现的一些技术难题。尽管如此,我们发现该感染模型为深入理解新生儿小鼠败血症过程中纵向感染动态提供了新的视角,而这一过程迄今尚未得到充分研究。我们预计该模型还可进一步拓展用于研究生命早期其他重要的细菌感染性疾病。
引言
新生儿败血症是一个重要问题,因为新生儿在生命最初几天表现出独特的免疫特征,无法为机体提供足够的抗感染保护1新生儿败血症仍然是美国一项重大的医疗健康问题,仅在美国每年就导致超过75,000例病例2为了深入研究这些感染,需要建立能够模拟人类疾病特征的新型动物模型。我们已建立了一种使用新生小鼠的感染模型 E大肠杆菌 coliO1:K1:H73. E. coli 是美国新生儿败血症的第二大常见病因,但导致了大多数与败血症相关的死亡病例4,5然而,对于早产儿和极低出生体重(VLBW)婴儿而言,它是首要病因 婴儿被视为独立个体5K1血清型最常与新生儿侵袭性血流感染和脑膜炎相关。6,7目前,除了抗生素和支持性治疗外,尚无其他治疗方法。与此同时,许多致病菌的抗生素耐药率持续上升,部分菌株的 E. coli 对多种常用于治疗的抗生素具有耐药性8因此,我们亟需持续开发研究新生儿脓毒症机制及其宿主反应的方法。这些研究成果有助于改进现有治疗方案并改善感染预后。
与成人相比,新生儿的免疫状态在表型和功能上均存在差异。例如,已有研究表明,脐带血来源的巨噬细胞会产生较高水平的抗炎性和调节性细胞因子,如白细胞介素(IL)-10 和 IL-27,并且在新生小鼠血清中的含量也更高9,10,11。这与新生儿细胞通常表现出较低水平的 IFN-α、IFN-ɣ、IL-12 和 TNF-α 的现象一致,而这些因子在成人细胞中更为常见10。此外,与成人相比,新生儿免疫系统倾向于产生 Th2 型和调节性 T 细胞应答12。新生儿体内中性粒细胞、T 细胞、B 细胞、NK 细胞和单核细胞的数量也有所升高,但其功能存在显著缺陷,包括细胞表面标志物表达异常和抗原呈递能力下降,提示免疫系统尚未成熟13,14,15。此外,新生儿中性粒细胞向趋化因子迁移的能力明显不足16。髓系来源的抑制性细胞(MDSCs)在新生儿中也处于较高水平,并且最近被证实是 IL-27 的来源之一11。MDSCs 对 T 细胞具有强烈的抑制作用17。综上所述,这些数据表明新生儿免疫功能存在局限性,因而更易受到感染。
为了研究细菌负荷的进展过程,并解析新生儿败血症期间保护性宿主免疫反应的机制,我们建立了一种新型感染模型。出生后3至4天的新生小鼠难以进行腹腔或尾静脉注射。在本模型中,出生第3或第4天的幼鼠通过皮下注射方式将细菌接种物或PBS注入肩胛区。由此可引发全身性感染,利用发光的E. coli O1:K1:H7,我们能够对单只新生小鼠进行纵向成像,以追踪外周组织中播散的细菌负荷。这是首个报道的利用活体成像技术来阐明败血症期间新生小鼠体内细菌播散动力学的模型3。
本文介绍了一种在新生小鼠中诱导E. coli败血症感染的实验方案3。我们详细描述了注射用细菌接种物的制备方法,以及如何采集组织以评估病理变化、通过基因表达分析检测炎症标志物,并定量分析细菌负荷量。此外,还介绍了使用发光型E. coli对感染的新生小鼠进行活体成像,以及定量分析新生小鼠免疫细胞杀菌能力的方法。这些实验方案也可经适当调整后用于研究新生儿中其他重要的细菌感染。本文所呈现的数据代表了一种在具有临床转化意义的新生儿败血症模型中,研究感染动态的全新方法。
方案
所有实验程序均经西弗吉尼亚州机构动物护理和使用委员会批准,并依照美国国家研究委员会《实验动物护理和使用指南》的建议进行18。
1. 细菌接种物的制备
- 用接种环在胰蛋白酶大豆琼脂(TSA)平板上划线,从稳定表达荧光素酶并具有卡那霉素抗性的 E. coli O1:K1:H7-lux 冻存菌种中分离单个菌落3。37 °C 培养过夜。
- 次日,在生物安全柜中将LB肉汤(Luria broth)恢复至室温(25 °C)。
- 在生物安全柜内,挑取划线平板上的单个菌落,接种至3 mL含卡那霉素(30 μg/mL)的LB培养基中,37 °C、220 rpm振荡培养过夜。此为种子培养物。
- 在生物安全柜内,将种子培养物按1:100比例稀释至新鲜的3 mL LB培养基中,37 °C、220 rpm振荡培养2–3小时。此为工作培养物。
- 使用分光光度计在600 nm处测定空白样和工作培养物的光密度(OD)。取96孔平底检测板的一个孔加入100 µL不含细菌的LB培养基作为空白;另取一个孔加入100 µL工作培养物。每组设两个额外重复。使用酶标仪读取吸光度。
- 从工作培养物的吸光度值中减去空白对照的吸光度,再与先前建立并验证的生长曲线进行比对,估算工作培养物中的细菌浓度,以准备感染剂量。
- 根据研究问题制备目标接种物。本研究使用每只小鼠2 × 10⁶(低剂量)和7 × 10⁶(高剂量)菌落形成单位(CFUs)作为目标接种量。
- 将每只小鼠的目标剂量(DoseT)除以工作培养物中估算的细菌浓度(Stock),得到所需从工作培养物中取出的细菌体积(VS)。
- 将VS乘以需感染的小鼠数量(NM),并额外预留5–10份剂量,以获得感染所需的总细菌体积。从工作培养物中取出该体积的菌液,转移至新的离心管中。
- 使用以下公式:
DoseT/Stock = VS × NM = 需从工作培养物中取出的细菌总体积(VT)。
- 在 4 °C 条件下,以 2,000 x g 离心细菌 5 分钟,并将菌体沉淀按每只待感染小鼠 50 µL 的量重悬于 PBS(pH 7.2–7.6)中(例如,若需制备 10 份接种物,每份含 2 × 10⁶ 个细菌,则应将含 2 × 10⁷ 个细菌的沉淀重悬于 500 μL PBS 中)。建议制备的接种物量略多于实际所需。同时,单独准备等体积的 PBS 作为对照接种。将感染性接种物和 PBS 对照组置于冰上,直至进行感染操作。
- 在 96 孔塑料底稀释板中,用 PBS 进行七次十倍系列稀释,并将各稀释液 25 μL 分别重复点样于添加卡那霉素(30 µg/mL)的四分区 TSA 平板,以定量实际接种的细菌数量。接种后于 37 °C 培养过夜,待菌落形成后进行计数。
2. 动物识别
- 安排足够数量的繁殖对,以便同步产仔,获得年龄匹配的幼鼠。年龄差异在 ±1 天范围内可接受。
- 确定一只怀孕的 C57BL/6 雌性小鼠,并在计划实验前密切观察其分娩情况,以准确确定幼鼠年龄。
- 为区分对照组和感染组的 3 日龄或 4 日龄幼鼠,仅使用一对小型精细尖头虹膜剪,剪除对照组幼鼠尾尖。感染组幼鼠不进行尾尖剪除。剪尾前,用浸有 70% 乙醇的棉球对皮肤进行消毒。根据需要,用棉球或纱布按压尾部末端。
注意:该操作应在生物安全柜内进行。尾尖剪除长度约为 1/8 英寸即可。 - 为在对照组和感染组内部识别个体幼鼠,使用带有 28 G × ½’’ 永久针头的 1 mL 胰岛素注射器对幼鼠尾部进行纹身标记。纹身前,用浸有 70% 乙醇的棉球对皮肤进行消毒。该操作应在生物安全柜内进行。
- 进行尾部纹身时,先将动物纹身墨水涂抹于针尖。然后,用一只手小心固定幼鼠,使其尾部完全暴露。轻柔地将针头刺入皮下,保持较浅的深度,沿皮肤平行移动数毫米,形成一个小标记或点。在缓慢拔出针头前等待数秒,以避免墨水过多渗出皮外。
- 根据需要,用棉球或纱布对伤口施加压力。用 70% 乙醇擦去皮肤表面多余的纹身墨水。
- 对感染组和对照组中的后续幼鼠重复此过程,每处理一只幼鼠即增加一个点(例如,幼鼠 1 尾部有 1 个点,幼鼠 2 尾部有 2 个点,依此类推)。
注意:为增强识别效果,建议对照组和感染组使用不同颜色的动物纹身墨水。
3. 肩胛下接种
注意:本研究共进行了两次实验,每次实验均设立低剂量组和高剂量组。在第一次实验中,7只幼崽接种了低剂量的接种物(其中4只作为对照组),另取一窝不同的5只幼崽接种了高剂量(其中3只作为对照组)。实验1的幼崽仅提供了24小时时间点的数据。在第二次实验中,8只幼崽接种了低剂量接种物(其中2只作为对照组),6只幼崽接种了高剂量接种物(其中2只作为对照组)。实验2的幼崽提供了0、10和24小时时间点的数据。
- 选择出生不超过1天的幼鼠进行年龄匹配。将每窝幼鼠随机分配为低剂量组或高剂量组。在每窝内,再随机将幼鼠分配为对照组或感染组。
- 出生后第3或第4天,在接种E. coli-lux或PBS对照物之前,记录所有幼鼠的体重。在此期间将母鼠与幼鼠分离,以确保接种过程中幼鼠不会被移动。
- 在生物安全柜内,使用胰岛素针头吸取PBS或E. coli-lux接种液。本实验中,每只小鼠接种剂量分别为2 × 10⁶和7 × 10⁶ CFU。接种液和PBS均需在冰上保存,直至通过皮下注射方式给予。
- 将新生幼鼠置于生物安全柜内的清洁表面上,提起其颈部背侧皮肤,模拟抓握幼鼠背部皮肤的动作。
- 在皮肤与肌肉之间形成的空隙处,将针头斜面向上插入皮下,注入50 µL PBS或E. coli-lux。同时松开捏起的皮肤,以防止液体回流。
- 缓慢而小心地拔出针头。注射完成后,将幼鼠放回母鼠身边。
注意:由于新生幼鼠在出生第3至第4天时解剖结构尚未发育成熟,进行尾静脉注射或腹腔注射在技术上具有挑战性。因此,本研究选择肩胛下注射途径,因其操作简便。
4. 疾病评估与终点标准
- 在整个感染期间,每天两次监测幼崽,记录外观上的任何异常。
- 记录体重作为发病率的客观指标。
- 除体重变化外,通过将新生幼崽置于背侧位置来测试其翻正能力。患病动物将无法自行翻转至腹侧并用四肢着地,或完成该动作时存在困难。
- 观察以下表现以判断动物是否接近终点标准:体重低于正常值的85%;活动减少且无法自行翻正;皮肤变色,呈现灰白色或半透明状而非正常的粉红色;触感冰凉,提示体温降低;体侧出现出血性瘀斑,提示病情已进展。
注意:若新生幼崽连续两天未能增重,并符合步骤4.4中的任一描述,则已达到实验终点标准。接受高剂量处理的幼崽通常在24小时时即达到终点标准。低剂量和高剂量组中的对照幼崽将在同一时间被实施安乐死,以便在对照组与实验组之间进行比较分析。请继续执行下文的安乐死步骤。
5. 细菌负荷的活体成像
- 使用 microCT 成像仪及配套软件进行成像和后续分析。
注意:幼鼠皮肤颜色不影响成像质量。 - 将饲养有 E. coli-lux-感染的新生小鼠及其母鼠的笼子放入 BSL-2 级别的层流罩中。取出待成像的小鼠,放入罩内透明的异氟烷麻醉室中。建议先从未感染的对照组开始,以评估所需异氟烷的剂量。
- 打开连接 microCT 的计算机上的软件,初始化系统,并等待 CCD 温度降至并稳定在 -90 °C。
- 打开异氟烷蒸发器,将旋钮调节至 5% 异氟烷气流。使小鼠在麻醉室中暴露于该混合气体中 20–30 秒,直至其停止活动;部分小鼠可能需要更长或更短的麻醉时间。一旦小鼠停止活动,即表明已充分麻醉,可进行成像。
- 将小鼠移入 microCT 成像室,并以俯卧位放置在成像板上,使其鼻部垂直于鼻锥。使用牙科蜡轻轻固定小鼠四肢于成像板上,以限制其移动。每次最多可同时成像 4 只新生小鼠。
- 将异氟烷蒸发器流量调低至 2–4%,以在成像期间维持麻醉状态。关闭 microCT 成像室门。数秒后观察小鼠,若其开始移动,则将一个浸有异氟烷的棉球靠近活动小鼠的鼻部 5 秒以重新麻醉。成像过程中应将棉球置于动物附近。注意避免过度麻醉导致小鼠死亡。
- 在软件中选择发光(Luminescent)成像模式。激发滤光片设置为阻断(Block),发射滤光片依次设置为开放(Open)、500 nm、520 nm、560 nm、580 nm、600 nm 和 620 nm。共设置七个发射滤光片用于发光成像。
- 在各个时间点(感染后 0、10 和 24 小时 [hpi])对小鼠进行成像,并将所有图像保存至对应时间点的文件夹中。成像完成后将幼鼠放回母鼠所在的笼中,并确认所有幼鼠均已从麻醉中恢复。
- 为分析二维图像,在软件中打开图像。将单位更改为辐射通量(Radiance,光子数);该单位将转换为总通量(Total Flux,光子/秒)。
- 每次仅分析一组包含多个发射滤光片的图像。从每组图像中记录每幅图像右下角显示的最小和最大辐射通量值(例如,若有 7 个发射滤光片,则对应 7 幅图像,共 7 个最小值和 7 个最大值)。对所有需比较的图像组重复此步骤。
- 为确定一个可涵盖所有图像数值和发光强度的统一标度,找出各图像组中的最低最小值和最高最大值。本研究中以开放(Open)滤光片的图像作为代表性图像。
- 选中并打开目标图像以调整标度。在工具面板(Tool Palette)中点击图像调节(Image Adjust)选项卡,并将颜色标度(Color Scale)设置为先前确定的最低最小值和最高最大值。将每组图像保存为 TIFF 格式。以该方式分别分析每个时间点,确保正确显示标度。
- 为量化每只小鼠的总通量(即每只小鼠的发光信号量),按照步骤 5.9–5.10 所述方法打开图像。在工具面板(Tool Palette)中打开感兴趣区域工具(ROI Tools)选项卡,并选择圆形工具。若仅分析一个发光区域,则选择1个圆形。
- 将 ROI 移动至发光区域并设置为叠加(Overlay)模式。如有必要,调整 ROI 的大小。
注意:若需调整,应以相同方式调整其他图像中的 ROI,以保持一致性。选择测量 ROI(Measure ROIs),将弹出 ROI 测量窗口,显示总通量(p/s)、平均辐射通量(p/s/cm2/sr)、辐射通量标准差、最小辐射通量和最大辐射通量。 - 记录每组图像的总通量测量值。该数值即为二维图像中每只小鼠发光强度的量化结果。
- 为生成三维重建的 microCT 图像,在工具面板(Tool Palette)中打开DLIT 三维重建(DLIT 3D Reconstruction)面板,在分析(Analyze)选项卡下勾选所有需包含的波长,然后选择重建(Reconstruct)。
6. 安乐死
- 为尸检及后续适当应用准备并标记感兴趣的组织/器官管。
- 在生物安全柜中将新生仔鼠与母鼠分离。
- 将一个棉球浸入兽用级异氟烷,并放入透明密闭容器中。
- 若需采集血液,准备一支配有吸头的P200移液器,并准备一个含10 µL 5 mM EDTA抗凝剂的1.5 mL离心管。预期可采集50–200 µL血液。
- 将一只新生仔鼠放入容器中,并观察幼鼠直至其停止活动。
- 迅速取出仔鼠,并用剪刀断头。若让其长时间接触新鲜空气,幼鼠可能恢复意识。新生仔鼠肺容量较成年小鼠低,因此仅靠异氟烷吸入不足以实现有效安乐死。
- 使用P200移液器从头部基部的躯干处采集血液。为最大限度获取血液,应在断头后尽快完成此步骤。通过连续稀释和标准平板计数法对血液中的细菌进行定量,方法见步骤1.9。
- 在切除组织样本前,用70%乙醇对整个新生仔鼠进行消毒。
7. 组织收获
- 在生物安全柜内,用70%乙醇浸湿新生小鼠以防止污染。将动物侧卧于右侧。
- 使用镊子夹住腹部与左后肢之间区域的皮肤,用尖头手术剪做切口。继续向上朝背部方向剪开皮肤,直至整个脾脏暴露。
- 用镊子夹住脾脏,使用剪刀剪断结缔组织,将其从腹腔中取出。将脾脏置于适合后续实验应用的溶液中。
- 为获取肺组织,完全掀开胸部的皮肤。
- 将剪刀垂直插入胸骨基底部,向上剪开,直至胸腔完全分离。
- 用镊子分别夹住左、右肺组织,从胸腔中取出。用剪刀将心脏从肺组织中剪下并移除。
- 将肺组织置于适合后续实验应用的溶液中。用于RNA提取时,使用500 µL异硫氰酸胍/苯酚(GTCP)溶液;用于组织病理学分析时,使用5 mL 10%中性缓冲甲醛溶液。
8. 从肺组织中分离RNA以进行基因表达分析
- 将微量离心机预冷至 4 °C。
- 用剪刀在GTCP中切碎肺组织,随后使用电动匀浆器进行匀浆,直至溶液尽可能均匀。室温孵育 3-5 分钟。
- 使用带滤芯的移液器吸头,加入 100 µL 氯仿。颠倒离心管 15 秒,室温孵育 3-5 分钟。
- 在 12,000 x g 条件下离心 15 分钟。
- 离心过程中,准备含有 500 µL 70% 乙醇的 1.5 mL 离心管。组装并标记RNA提取试剂盒中的层析柱和收集管。
- 小心吸取上层水相,避免扰动离心后形成的中间相层。将水相转移至含有 70% 乙醇的离心管中。
- 将乙醇与裂解液混合物转移至收集管中的层析柱中。
- 此后步骤,按照RNA提取试剂盒的商业产品说明书操作,直至最终洗脱RNA。
- 分析RNA的纯度和浓度。可立即使用,或于 -80 °C 保存以备后续使用。
9. cDNA 合成
- 标记PCR管并暂时放置一旁。
- 每个样品向cDNA反应体系中加入1 µg RNA。
- 按照cDNA实验方案所述,将试剂和模板加入PCR管中。酶类组分应最后加入。
- 将PCR管放入热循环仪中,运行以下程序:25 °C孵育5分钟,42 °C反应40分钟,85 °C加热15分钟,最后在4 °C保存。
- 从热循环仪中取出PCR管,立即使用或于-20 °C保存,以备后续实验使用。
10. 实时定量 PCR(qPCR)循环
- 为每个待分析基因配制反应混合液。每个15 µL的PCR反应体系包含7.5 µL的2x试剂混合液、0.75 µL的20X 5’-FAM标记的基因特异性引物/探针以及3.75 µL的无核酸酶水。扩增片段通常为60–120 bp。
- 向相应孔中加入各实验组的3 µL cDNA模板。
- 向相应孔中加入12 µL基因特异性反应混合液。
- 用光学粘性封膜覆盖PCR板,并在1,000 x g条件下离心1分钟,以去除孔中可能产生的气泡。
- 将PCR板放入实时荧光定量PCR仪中。
- 设定运行程序如下:95 °C预变性3分钟,随后进行40个循环,每个循环为95 °C变性15秒,60 °C退火延伸1分钟。
- 通过将目标基因的表达量相对于内参对照进行归一化处理,并使用2-ΔΔCt法对感染样本的数据相对于未感染对照样本进行分析,结果采用log2转换。
11. 肺组织病理学
- 按照上述方法取出新生幼鼠的肺组织。
- 将组织置于10%中性缓冲福尔马林溶液中,溶液体积与组织体积之比约为20:1,固定3–7天。
- 联系合适的组织学服务机构进行石蜡包埋、切片及苏木精-伊红(H&E)染色。本研究使用了西弗吉尼亚大学组织病理学核心实验室。也可参照先前报道的实验方案19。
12. 体外细菌杀伤实验
- 按照上述方法取出未感染的新生幼鼠脾脏,放入无菌60 mm培养皿中的40 µm尼龙筛网内。重复此操作,将多个脾脏汇集至同一管中,共同收获并均质化处理。
- 加入5 mL含10%胎牛血清(FBS)的磷酸盐缓冲液(PBS)。
- 使用无菌3 mL注射器活塞充分研磨组织,直至形成单细胞悬液。
- 收集尼龙筛网外的单细胞悬液,转移至15 mL离心管中,在350 x g条件下离心5分钟,沉淀细胞。
- 根据预期处理7–8个脾脏的数量,用2 mL红细胞裂解缓冲液重悬细胞,在室温下静置5分钟以去除红细胞。
- 用PBS洗涤脾细胞,并按上述条件离心收集细胞沉淀。
- 根据预期细胞产量,将脾细胞重悬于0.25 mL含0.5%牛血清白蛋白(BSA)和2 mM EDTA的PBS中。
- 使用血细胞计数板或其他合适的方法对脾细胞进行计数。
- 根据制造商说明书,使用免疫磁珠分离Ly6B.2+细胞(粒细胞/炎症性单核细胞为主的髓系细胞群)。
- 将Ly6B.2+细胞以每孔1 × 10⁵个细胞的密度接种于黑色或白色96孔板中,每孔体积为0.1 mL,培养基为含10% FBS、2 mM谷氨酰胺和25 mM HEPES的DMEM(完全培养基)。
- 按照第1节所述方法对生物发光的E. coli进行计数,并在最终体积为0.1 mL的培养基中配制所需感染复数(MOI)的细菌接种液。建议将相同MOI下所有孔所需的细菌接种液批量配制,以保证一致性。
- 每孔加入0.1 mL细菌接种液,对照组仅加入完全培养基。将多孔板置于37 °C、5% CO2条件下孵育1小时。
- 孵育结束后,用移液器轻轻吸去原有培养基,更换为含庆大霉素(100 µg/mL)的新鲜完全培养基0.2 mL,每次使用新的枪头。将细胞继续孵育2小时。
- 感染后3小时,使用酶标仪从带盖培养板底部检测每孔的发光值,随后将培养板重新放回孵箱继续培养。
- 在其他所需时间点重复进行发光值的检测。
结果
本方案在新生小鼠中诱导了细菌性败血症,我们采用纵向活体成像、血液中细菌计数、病理组织学评估以及炎症细胞因子表达谱分析来研究疾病进程。在接种低剂量(约 2 × 10⁶ CFUs)和高剂量(约 7 × 10⁶ CFUs)E.coli 后,随时间推移可观察到新生仔鼠出现一系列发病症状。接受较高接种剂量的仔鼠表现出更明显的痛苦体征,包括活动能力下降、无法纠正体位,以及在感染后24小时(hpi)难以维持直立姿势。然而,不同仔鼠的发病程度存在差异,部分个体表现更为严重。在感染后立即进行成像以建立基线时,一只接受低剂量接种的动物因异氟烷暴露而死亡。至24 hpi时,六只接受高剂量接种的动物中有两只死于全身性感染(死亡率为33.3%)。无论是接受高剂量还是低剂量接种的感染仔鼠,在24 hpi时的体重均显著低于其对照组同窝仔鼠(图1A,B)。所有接受高剂量接种的仔鼠在24 hpi时均达到实验终点标准,因此该组所有感染仔鼠在成像后被实施安乐死。对部分接受低剂量接种的小鼠以及全部接受高剂量接种的小鼠(因均已安乐死)进行了血液中细菌数量的测定。两次独立但操作相似的实验结果显示,尽管大多数动物在24 hpi时血液中细菌水平较高(CFUs/mL),但仍有部分动物血液中未检测到细菌(图1C)。后者提示这些个体可能在此时间点前已清除感染。与预期一致,接受高剂量接种的仔鼠在24 hpi时每毫升血液中的菌落形成单位(CFUs/mL)数量比接受低剂量接种的仔鼠高出近三个数量级(图1C)。
活体动物成像显示,发光细菌在新生幼鼠体内的播散情况以及细菌数量随时间的增长,在感染后10小时和24小时进一步得到证实(图2 和 图3)。此外,通过将活体成像与微计算机断层扫描(microCT)结合,我们能够识别感染病灶,包括脑部图2B),肺(图2B, 图3A,B)及其他外周组织(图2B)。一些感染程度较高的小鼠肺部显示出不透明区域,与炎症性实变一致,且与发光细菌信号共定位(图3A)。这些假定的炎性渗出区域在未感染的对照肺组织中未见。图3A)。通过分析IL-1β、IL-6和TNF-α的基因表达,进一步证实了感染幼鼠肺部存在显著的炎症性细胞因子反应。与对照组相比,低接种量和高接种量组中这三种细胞因子的表达均显著升高图 4A)。在对照组和感染组幼鼠中,于感染后24小时(24 hpi)检测肺组织的组织病理学变化。尽管炎症细胞因子谱相似,但从低剂量到高剂量接种组均普遍观察到病理损伤呈进行性加重。与未感染对照组的肺组织相比,感染组幼鼠的肺组织表现出明显的炎症改变、肺泡壁增厚、肺泡出血增加以及炎性细胞浸润(图4B)。在最严重的感染中,肺部充血和出血区域导致开放气腔显著减少(图4B综上所述,这些结果表明,在我们的早发性新生儿败血症模型中,可从肩胛下接种部位开始,随时间追踪发光细菌的播散过程,直至其到达重要的感染病灶,并在重度感染动物中引发显著的炎症反应和病理变化。
为了研究宿主因素在单核细胞、巨噬细胞和中性粒细胞等天然免疫细胞杀灭细菌过程中的作用,我们建立了一种灵敏的体外检测方法来测量细菌清除能力。从新生小鼠脾脏中分离的 Ly6B.2+ 细胞以不同感染复数(MOI)感染发光标记的大肠杆菌(E. coli)1 小时,随后用庆大霉素处理以杀灭细胞外细菌。在感染后 3、6、20 和 48 小时,使用多功能酶标仪检测细胞内发光信号。正如预期,随着 MOI 增加,在 3 小时检测到的发光信号更强(图 5)。随后,该信号逐渐减弱,表明细菌被逐步清除(图 5)。该检测方法适用于添加细胞因子、中和分泌型效应分子,以及加入细胞通路的药理学抑制剂,从而研究可能促进细菌清除的干预手段,并有助于改善本研究所述的新生鼠败血症模型的预后。
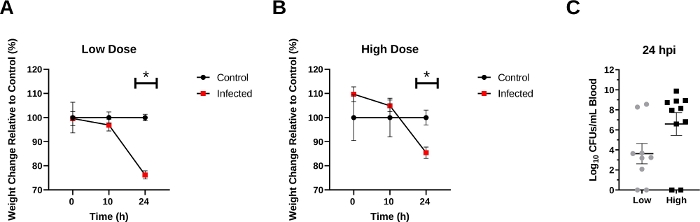
图1:败血症新生小鼠体重变化及细菌复制情况。
(A,B)各组(低剂量组和高剂量组)小鼠个体体重以同窝对照幼鼠平均体重的百分比表示。数据以均值百分比±标准误(SEM)表示。在感染后各时间点进行的独立t检验显示,对照组幼鼠与接受低剂量接种的幼鼠在24小时时存在显著差异(p<0.0001)(A);对照组幼鼠与接受高剂量接种的幼鼠之间在24小时时也存在显著差异(p=0.0031)(B)。(C)感染后24小时(hpi)血液中的CFU/mL经对数转换后以均值±SEM表示。Mann-Whitney检验显示低剂量与高剂量接种组之间存在接近显著性的趋势(p=0.0882)。请点击此处查看该图的放大版本。
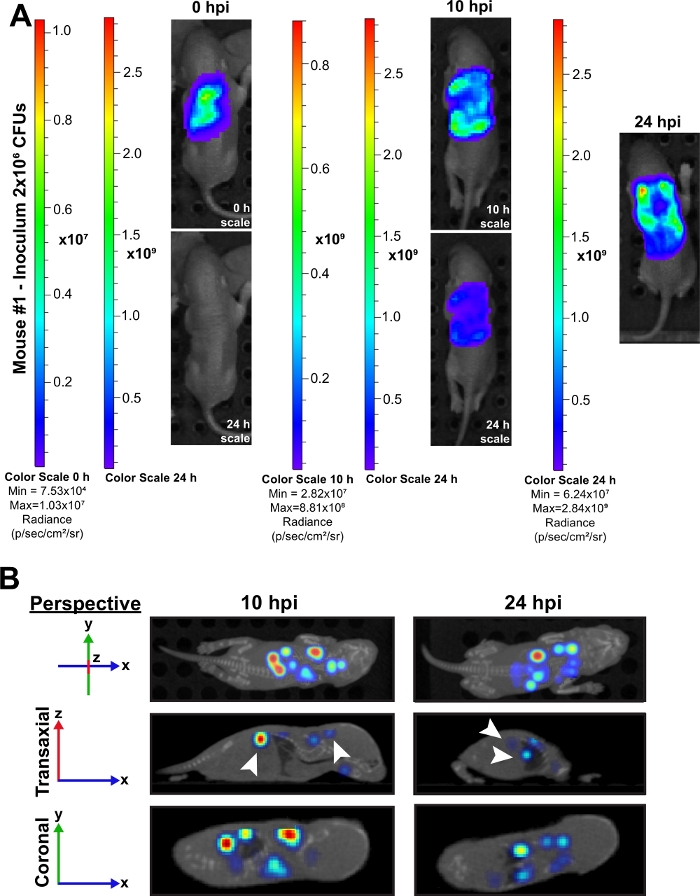
图2:活体成像显示细菌在新生小鼠体内随时间推移的播散情况。
(A一只具有代表性的新生小鼠(#1)接种了约 2 x 10⁶ 菌落形成单位(CFUs)在感染后0、10和24小时(hpi)显示。每个时间点均展示带有该时间点最小和最大辐射值的比色标尺。0小时和10小时的小鼠图像同时显示在对应时间点的标尺以及24小时标尺下,以展示细菌随时间增长的变化情况。B代表性3D重建的microCT图像显示了同一只新生小鼠在感染后10小时和24小时的情况。每个时间点均包含俯视、横断面和冠状面视角的图像。在感染后24小时的横断面图像中,成像平面已移向小鼠外周,以更清晰地显示外周组织中的感染病灶。白色箭头在感染后10小时指示脑和肾,在感染后24小时指示肾和肺。 请点击此处以查看此图的放大版本。
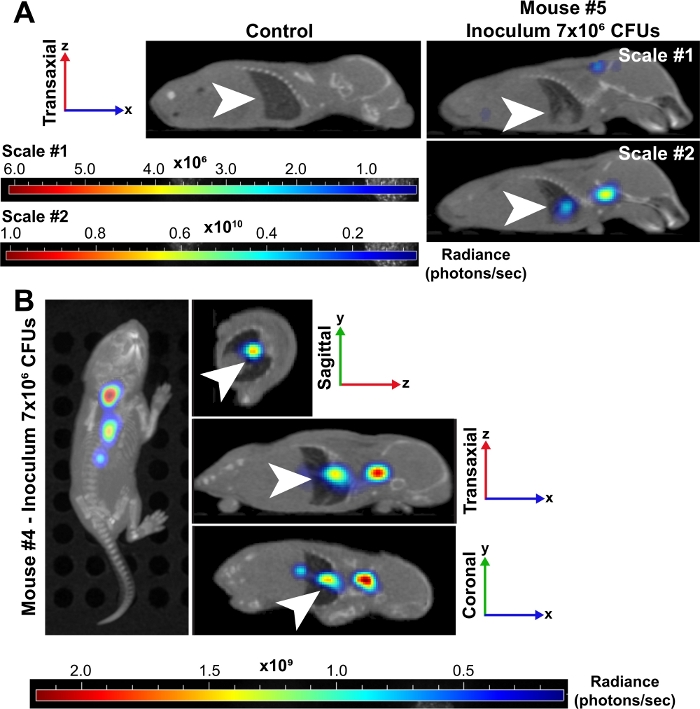
图3:肺部是新生儿细菌性败血症期间主要的感染部位。
(A) 显示了接种约 7 × 10⁶ CFUs 菌量的新生小鼠(#5)在感染后24小时(24 hpi)的代表性三维重建microCT图像,并与未感染的对照小鼠进行比较。两只小鼠均以横断面视角显示,肺部由白色箭头标示。对感染小鼠使用了两种辐射通量(光子数/秒)标尺:标尺#1包含全部6个波长(500、520、560、580、600、620 nm),而标尺#2仅包含500、520和560 nm波长。由于较短波长的光在组织中吸收更强,能产生更明显的信号,因此第二个标尺有助于更清晰地观察肺部细菌的信号增强。( B) 显示了接种约 7 × 10⁶ CFUs 菌量的另一只新生小鼠(#4)在24 hpi时的代表性三维重建microCT图像,该时间点包含俯视、矢状面、横断面和冠状面多个视角的图像。白色箭头指示肺部的感染灶。请点击此处查看该图的放大版本。
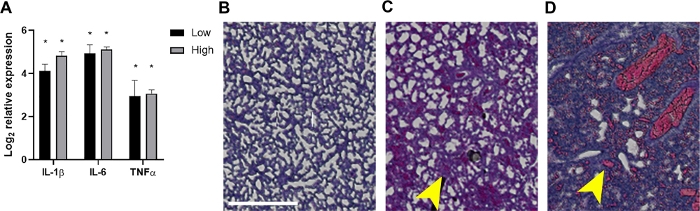
图4:脓毒症新生仔鼠肺部的炎症反应及相关组织病理学发现。
感染后24小时(hpi)取材,收集接受约2 × 10⁶ 或 7 × 10⁶ CFU 接种或未感染对照组仔鼠的肺组织。(A) 提取RNA,采用定量实时PCR,通过公式2-ΔΔCt计算IL-1β、IL-6或TNF-α的表达水平,并以未感染对照组为参照。数据表示为每种接种剂量组基因表达的平均log2转换变化值±标准误(SEM),如图所示。使用非配对t检验在95%置信区间内对各细胞因子基因与内参基因的ΔCt值进行统计学分析。星号表示p<0.01。(B-D) 显示苏木精-伊红(H&E)染色肺组织的组织病理学切片(20倍放大,感兴趣区域经剪裁蒙版处理并放大以增强清晰度)。图中分别为代表性未感染对照组(B)、低剂量接种(C)和高剂量接种(D)感染新生仔鼠的肺组织。黄色箭头指示肺泡增厚(C)或出血现象(D)。比例尺 = 500 μm。 请点击此处查看该图的放大版本。
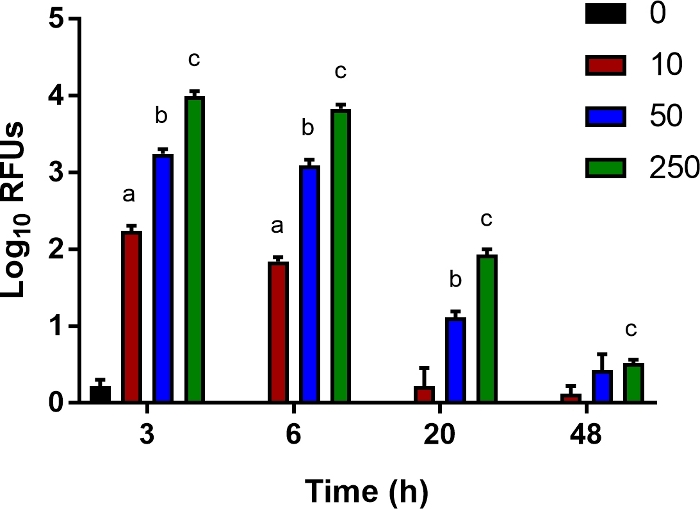
图 5:细菌清除的体外检测。
从未感染的对照组新生小鼠脾脏中分离出 Ly6B.2+ 细胞。将细胞接种于 96 孔板中,并以感染复数(MOI)为 10、50 或 250 的表达荧光素酶的 E. coli O1:K1:H7 进行感染,具体如图所示。感染 1 小时后,更换为含庆大霉素(100 µg/mL)的新鲜培养基。图中显示的是多个独立实验中具有代表性的单个实验的平均相对光单位(RLU)± 标准误。使用带 Welch 校正的非配对 t 检验确定 95% 置信区间内的统计学显著性;星号表示 p<0.05。 请点击此处查看该图的放大版本。
讨论
我们建立的肩胛下感染模型是一种用于在新生小鼠中诱导细菌性败血症的新型方法,可用于实时研究细菌病原体的纵向播散过程。活体成像技术为实时观察新生个体中细菌的播散提供了可能,这对于理解细菌播散的动力学特征,并在疾病发展的相应阶段进一步研究宿主反应与组织损伤至关重要。实验中,向新生小鼠皮下、肩胛下区域注射细菌接种物。该注射技术相较于其他常用方法(如尾静脉注射和腹腔注射)更为简便,因其对注射位点的精确定位要求较低,这一点在体型微小的幼鼠中尤为重要。通过活体成像,可在不牺牲动物的前提下,对细菌在周围组织及中枢神经系统中的增殖与播散进行长期动态评估。类似成像方法与技术此前已被用于癌症生物学与转移机制的研究20,21。此外,尽管已有研究报道在新生大鼠E. coli感染过程中使用生物发光成像技术22,但本研究将该方法应用于新生小鼠,并通过我们的实验体系实现了对小鼠败血症期间细菌动力学特征的评估。细菌的可视化依赖于动物体内细菌在不同波长下发射的生物发光信号(例如细菌荧光素酶活性),该信号通过冷却的电荷耦合器件(CCD)相机进行检测。所获得的生物发光图像可重建为三维图像,从而展示细菌在动物体内随空间和时间变化的分布效应。为进一步提升数据采集的精细度,通过尾部纹身实现对实验动物的准确个体识别,从而可在不同时间点对同一只幼鼠进行重复测量,评估其动态变化,并识别实验组内可能存在的异常值。
成功应用所述模型的关键在于细菌接种物制备的准确性。本文介绍了一种优化的细菌制备方法,该方法基于预先建立并经过验证的 E. coli 生长曲线,可减少目标接种量与实际接种量之间的差异,从而在预定接种量下实现实验的可重复性。在模型中使用两种不同接种量的结果显示,血液中的菌落形成单位(CFU)、死亡率以及肺部病理均呈现剂量依赖性。然而,疾病进程的某些方面并不依赖于接种剂量。感染动物在24小时后未能增重的现象,与接种量无关。此外,在两种接种量条件下,肺部炎症性细胞因子的表达水平相似。这种模式是否会在其他检测到细菌存在的组织(如肾脏、肝脏、脾脏和脑组织)中同样出现,仍有待进一步研究。除了败血症外,E. coli O1:K1:H7 还与新生儿群体中的脑膜炎相关23。这种脑部感染的发生机制是外周循环中的细菌侵入并穿透血脑屏障。未来的研究将通过分析紧密连接蛋白表达的变化,并测试不同范围的细菌接种量,来进一步探索该模型的这一特性。在活体成像过程中,另一项改进措施是加入一个浸有异氟烷的棉球,将其放置在距离小鼠约2–3英寸的位置。由于在先前的实验中,新生幼鼠在成像过程中曾恢复意识,导致无法准确获取图像,因此目前将棉球放置在足够靠近小鼠的位置,以确保其在整个成像过程中持续处于麻醉状态。但需注意,棉球不可放置过近,以免影响小鼠在成像结束后从麻醉中正常恢复。
尽管本方案具有灵活性,且易于适应于不同细菌在各种动物和疾病模型中的动力学研究,但仍存在一些需要考虑的局限性。首先,皮下接种的感染途径并不能模拟自然传播途径。然而,本模型在设计之初的主要目标之一,是建立一种易于重复的接种方式,可用于诱导系统性感染,以模拟人类疾病的某些特征。因此,本文所描述的是人类早发性脓毒症疾病综合征的模型,而非自然传播过程的模型。目前已有一种新生大鼠经口接种的成熟模型,可模拟人类常见传播途径的某些方面,例如最初的定植过程 E. coli 消化道感染及随后向血液和外周组织(包括脑组织)的播散22. Witcomb 及同事建立的模型还结合了生物发光 E. coli 以及活体成像。此外,必须尽量减少异氟烷暴露时间,并尽可能快速地完成注射、尾部标记和处理幼鼠,同时不牺牲技术的准确性和精确性,以降低幼鼠和母鼠的应激水平。在某些情况下,若幼鼠经历过多的人为操作和/或实验干预,母鼠可能停止哺乳和照顾幼鼠,导致与感染无关的存活率下降。同样,若幼鼠暴露于异氟烷的时间超过成像过程所需的约10分钟,其死亡风险将增加;因此,至关重要的是仅提供足以使小鼠充分麻醉但不足以致死的异氟烷剂量。最后一个需要考虑的问题是检测灵敏度的限制。当组织中病原体数量少于104 CFUs/mL E. coli 根据成像软件所采用的缩放方法,记录到的发光信号处于可检测范围的低端,此时细胞数量被计数3因此,某些组织可能被低水平的细菌定植,但未表现出可见的生物发光。
目前,大多数研究在新生小鼠中采用成年动物的细菌播散方法,例如腹腔(i.p.)注射和尾静脉注射。Pluschke 和 Pelkonen 通过腹腔、尾静脉及口服感染途径,分析了 E. coli K1 对新生小鼠的影响24。该研究表明,具有免疫缺陷的不同基因型小鼠对 K1 菌株更为易感;然而,宿主免疫反应应对感染的诸多方面以及细菌播散的机制仍未得到阐明。Deshmukh 及其同事通过腹腔注射将 E. coli K1 或 K. pneumoniae 感染新生小鼠,并在感染后 72 小时(72 hpi)测定脾脏和肝脏中的菌落形成单位(CFUs)25。该研究还基于小鼠在感染前是否暴露于抗生素,分析了宿主对感染反应的某些方面。然而,尚无研究系统地同步评估细菌向外周组织和血液的播散动态,以及在同一组织中除粒细胞增多以外的炎症谱变化。其他关于新生小鼠败血症的研究使用 Staphylococcus aureus、Staphylococcus epidermidis、B族Streptococcus 和 E. coli,探讨了宿主免疫系统在应对感染时的不同方面。然而,这些研究均未采用活体成像技术来研究细菌播散的动力学过程或感染灶的定位23,25,26,27。我们所采用的感染方法结合活体成像,并联合对外周组织的细菌负荷评估和炎症谱分析,能够全面地研究感染过程中宿主与病原体双方的多个方面,从而更精确地理解败血症期间宿主-病原体之间的相互作用。
我们计划利用该感染与成像模型,进一步研究由多种常见致病菌引起的新生儿早发性败血症,这些致病菌包括B族链球菌、K. pneumoniae 和 Listeria monocytogenes。该感染模型将使我们能够纵向平行比较不同细菌病原体在新生儿体内的播散过程及其伴随的宿主免疫反应。此外,该模型还可用于过继转移特定的(荧光标记的)免疫细胞类型,以研究这些细胞向感染部位的迁移及其对宿主反应和细菌控制的后续影响。这为我们提供了前所未有的机会,以更深入地理解生命早期败血症过程中发生的宿主-病原体相互作用。
披露
作者声明无利益冲突。
致谢
这项工作得到了提供给 C.M.R. 的机构资金支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 mL 胰岛素注射器 | Coviden | 1188128012 | 接种物或 PBS 注射 |
| 10% 中性缓冲福尔马林 | VWR | 89370-094 | 组织病理学 |
| ACK 裂解缓冲液 | Gibco | LSA1049201 | 细菌清除实验 |
| 动物纹身油墨膏 | Ketchum | KI1482039 | 动物识别 |
| 绿色动物纹身油墨膏 | Ketchum | KI1471039 | 动物识别 |
| Anti-Ly-6B.2 磁珠 | Miltenyi Biotec | 130-100-781 | 细胞分离 |
| Escherichia coli O1:K1:H7 | ATCC | 11775 | |
| Escherichia coli O1:K1:H7-lux(表达荧光素酶) | N/A | N/A | 在西弗吉尼亚大学内部构建 |
| E.Z.N.A. HP 总 RNA 提取试剂盒 | Omega Bio-tek | R6812 | RNA 提取 |
| DPBS,1× | Corning | 21-031-CV | |
| Difco 胰蛋白胨大豆琼脂 | Becton, Dickinson and Company | 236950 | 细菌生长 |
| IL-1β 引物/探针(Mm00434228) | Thermo Fisher Scientific | 4331182 | 细胞因子表达 qPCR |
| IL-6 引物/探针(Mm00446190) | Thermo Fisher Scientific | 4331182 | 细胞因子表达 qPCR |
| iQ Supermix | Bio-Rad | 1708860 | 实时定量 PCR |
| iScript cDNA 合成试剂盒 | Bio-Rad | 1708891 | cDNA 合成 |
| 分离缓冲液 | Miltenyi Biotec | N/A | 细菌清除实验 |
| IVIS Spectrum CT 及 Living Image 4.5 软件 | Perkin Elmer | N/A | 活体成像 |
| LB 肉汤,Lennox | Fisher BioReagents | BP1427-500 | 细菌生长 |
| EASYstrainer(尼龙滤网) | Greiner Bio-one | 542 040 | 细胞滤筛 |
| SpectraMax iD3 | Molecular Devices | N/A | 酶标仪 |
| 研磨杵电动马达 | Grainger | 6HAZ6 | 组织匀浆 |
| 聚丙烯研磨杵 | Grainger | 6HAY5 | 组织匀浆 |
| Prime 梯度 PCR 仪 | Techne | 3PRIMEBASE/02 | cDNA 合成 |
| TNF-α 引物/探针(Mm00443258) | Thermo Fisher Scientific | 4331182 | 细胞因子表达 qPCR |
| TriReagent(GTCP) | Molecular Research Center | TR 118 | RNA 提取 |
参考文献
- Qazi, S. A., Stoll, B. J. Neonatal sepsis: a major global public health challenge. Pediatr Infect Dis J. 28, 1-2 (2009).
- Simonsen, K. A., Anderson-Berry, A. L., Delair, S. F., Davies, H. D. Early-onset neonatal sepsis. Clinical Microbiology Reviews. 27 (1), 21-47 (2014).
- Seman, B. G., et al. Elevated levels of interleukin-27 in early life compromise protective immunity in a mouse model of Gram-negative neonatal sepsis. Infections and Immunity. , (2019).
- Schrag, S. J., et al. Epidemiology of Invasive Early-Onset Neonatal Sepsis, 2005 to 2014. Pediatrics. 138 (6), 20162013(2016).
- Stoll, B. J., et al. Early onset neonatal sepsis: the burden of group B Streptococcal and E. coli disease continues. Pediatrics. 127 (5), 817-826 (2011).
- Weston, E. J., et al. The burden of invasive early-onset neonatal sepsis in the United States, 2005-2008. Pediatrics and Infectious Disease Journal. 30 (11), 937-941 (2011).
- Hornik, C. P., et al. Early and late onset sepsis in very-low-birth-weight infants from a large group of neonatal intensive care units. Early Human Development. , Suppl 2 69(2012).
- Vergnano, S., Sharland, M., Kazembe, P., Mwansambo, C., Heath, P. T. Neonatal sepsis: an international perspective. Archives of Disease in Childhood: Fetal and Neonatal Edition. 90 (3), 220-224 (2005).
- Kraft, J. D., et al. Neonatal macrophages express elevated levels of interleukin-27 that oppose immune responses. Immunology. 139 (4), 484-493 (2013).
- Basha, S., Surendran, N., Pichichero, M. Immune responses in neonates. Expert Reviews of Clinical Immunology. 10 (9), 1171-1184 (2014).
- Gleave Parson, M., et al. Murine myeloid-derived suppressor cells are a source of elevated levels of interleukin-27 in early life and compromise control of bacterial infection. Immunology and Cell Biology. 97 (5), 445-446 (2018).
- Adkins, B., Leclerc, C., Marshall-Clarke, S. Neonatal adaptive immunity comes of age. Nature Reviews Immunology. 4 (7), 553-564 (2004).
- Kim, S. K., Keeney, S. E., Alpard, S. K., Schmalstieg, F. C. Comparison of L-selectin and CD11b on neutrophils of adults and neonates during the first month of life. Pediatrics Research. 53 (1), 132-136 (2003).
- Velilla, P. A., Rugeles, M. T., Chougnet, C. A. Defective antigen-presenting cell function in human neonates. Clinical Immunology. 121 (3), 251-259 (2006).
- Le Garff-Tavernier, M., et al. Human NK cells display major phenotypic and functional changes over the life span. Aging Cell. 9 (4), 527-535 (2010).
- Weinberger, B., et al. Mechanisms underlying reduced responsiveness of neonatal neutrophils to distinct chemoattractants. Journal of Leukocyte Biology. 70 (6), 969-976 (2001).
- Gabrilovich, D. I., Nagaraj, S. Myeloid-derived suppressor cells as regulators of the immune system. Nature Reviewss Immunology. 9 (3), 162-174 (2009).
- National Research Council. Guide for the care and use of laboratory animals, 8th ed. , National Academies Press. Washington, DC. (2011).
- Tucker, D. K., Foley, J. F., Bouknight, S. A., Fenton, S. E. Sectioning Mammary Gland Whole Mounts for Lesion Identification. Journal of Visualized Experiments. (125), e55796(2017).
- Bayarmagnai, B., Perrin, L., Esmaeili Pourfarhangi, K., Gligorijevic, B. Intravital Imaging of Tumor Cell Motility in the Tumor Microenvironment Context. Methods in Molecular Biology. 1749, 175-193 (2018).
- Beerling, E., Ritsma, L., Vrisekoop, N., Derksen, P. W., van Rheenen, J. Intravital microscopy: new insights into metastasis of tumors. Journal of Cell Science. 124, Pt 3 299-310 (2011).
- Witcomb, L. A., Collins, J. W., McCarthy, A. J., Frankel, G., Taylor, P. W. Bioluminescent Imaging Reveals Novel Patterns of Colonization and Invasion in Systemic Escherichia coli K1 Experimental Infection in the Neonatal Rat. Infection and Immunity. 83 (12), 4528(2015).
- Singh, K., et al. Inter-alpha inhibitor protein administration improves survival from neonatal sepsis in mice. Pediatric Research. 68 (3), 242-247 (2010).
- Pluschke, G., Pelkonen, S. Host factors in the resistance of newborn mice to K1 Escherichia coli infection. Microb. Patho. , 93-102 (1988).
- Mancuso, G., et al. Role of interleukin 12 in experimental neonatal sepsis caused by group B streptococci. Infections and Immunity. 65 (9), 3731-3735 (1997).
- Thammavongsa, V., Rauch, S., Kim, H. K., Missiakas, D. M., Schneewind, O. Protein A-neutralizing monoclonal antibody protects neonatal mice against Staphylococcus aureus. Vaccine. 33 (4), 523-526 (2015).
- Andrade, E. B., et al. TLR2-induced IL-10 production impairs neutrophil recruitment to infected tissues during neonatal bacterial sepsis. Journal of Immunology. 191 (9), 4759-4768 (2013).
重印与许可
