介绍了牛卵巢皮质的体外培养以及营养性阶梯饮食对卵巢微环境的影响。卵巢皮质组织片段被培养七天,随后评估了类固醇激素、细胞因子及卵泡发育阶段。阶梯饮食处理促进了类固醇生成,从而在培养过程中推动了卵泡的发育进展。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
从原始卵泡到有腔卵泡阶段的卵泡发育是卵巢皮质内一个动态的过程,涉及体细胞的内分泌和旁分泌因子以及卵丘细胞与卵母细胞之间的通讯。目前对卵巢微环境及其周围环境中产生的细胞因子和类固醇如何影响卵泡发育进程或停滞尚了解甚少。通过体外培养卵巢皮质组织,可在由邻近基质支持的标准化环境中实现卵泡发育。本研究旨在通过牛卵巢皮质的体外培养,探讨营养“阶梯式”饮食对卵巢微环境(包括卵泡发育、类固醇和细胞因子生成)的影响。为此,从青春期前经历两种不同营养发育方案的小母牛体内获取卵巢皮质组织,分为对照组(传统营养发育)和阶梯式组(发育期间交替饲喂与限制营养),并将组织切成约0.5–1 mm3的小块。这些组织块经过一系列洗涤后,置于置于含Waymouth培养基的培养板孔中的组织培养插入物上。卵巢皮质组织在每日更换培养基的条件下连续培养7天。通过组织学切片分析培养前后卵泡阶段的变化,以评估营养干预的影响以及在无额外处理条件下培养本身的作用。收集培养期间多日的培养基混合样本,用于检测类固醇、类固醇代谢物及细胞因子水平。结果显示,在阶梯式组相较于对照组的卵巢皮质培养中,卵巢微环境中类固醇激素水平呈现升高趋势,有助于卵泡的进一步发育。卵巢皮质培养技术有助于更深入理解卵巢微环境,以及内分泌分泌改变如何影响体内和体外干预条件下卵泡的发育与生长进程。该培养方法还可用于测试潜在治疗手段,有望改善女性卵泡发育,促进生育能力。
引言
卵巢皮质是卵巢的外层,卵泡发育在此发生1。原始卵泡最初处于发育停滞状态,随后在旁分泌因子和促性腺激素作用下被激活,依次发育为初级、次级,最终形成腔隙性或三级卵泡1,2,3,4。为了更深入地理解卵巢内的生理过程,可采用卵巢组织培养作为体外研究模型,从而在受控环境中开展实验。已有大量研究将卵巢组织培养应用于辅助生殖技术、生育力保存以及卵巢癌等领域5,6,7。此外,卵巢组织培养也被用作研究损害卵巢健康的生殖毒性物质,以及多囊卵巢综合征(PCOS)等生殖系统疾病病因的模型8,9,10,11。因此,该培养系统适用于多种专业领域的研究。
在啮齿类动物中,完整的胎儿或围产期性腺已被用于生殖生物学实验12,13,14,15。然而,由于体型较大且可能发生退化,来自较大型家畜的性腺无法作为完整器官进行培养。因此,牛和非人灵长类动物的卵巢皮质通常被切成较小的组织块16,17,18。许多研究通过培养小块卵巢皮质组织,探讨各种生长因子在家畜和非人灵长类原始卵泡启动过程中的作用1,17,18,19。卵巢皮质培养的应用还表明,在无血清条件下培养牛和灵长类的皮质组织7天后,仍可观察到原始卵泡的启动20。Yang和Fortune于2006年在胎儿卵巢皮质培养体系中加入不同浓度的睾酮处理10天,发现10-7 M浓度的睾酮可促进卵泡募集和存活,并加速早期卵泡的发育进程19。2007年,Yang和Fortune利用妊娠5至8个月的牛胎儿卵巢皮质培养模型,报道了血管内皮生长因子A(VEGFA)在初级卵泡向次级卵泡过渡过程中的作用21。此外,我们的实验室利用卵巢皮质培养技术,揭示了不同VEGFA亚型(促血管生成型、抗血管生成型及两者组合)可能通过激酶结构域受体(KDR)调控不同的信号转导通路,而KDR是VEGFA结合的主要信号转导受体16。这些结果增进了对不同VEGFA亚型如何影响信号通路,从而促进或抑制卵泡发育进程的理解。综上所述,体外培养卵巢皮质组织并添加不同类固醇激素或生长因子,是一种有价值的实验方法,可用于评估其对卵泡发生调控机制的影响。类似地,处于不同营养水平的动物可能具有不同的卵巢微环境,从而促进或抑制卵泡发生,影响雌性个体的生殖成熟。因此,本研究的目的在于报道牛卵巢皮质培养的技术方法,并探讨在先前所述的13月龄对照组或阶梯式饲喂组青年母牛中,其卵巢皮质组织经体外培养后,卵巢微环境是否存在差异16。
因此,我们的下一步是确定这些采用不同营养饮食培育的小母牛的卵巢微环境。我们评估了饲喂“阶梯式”饮食或对照饮食的小母牛的卵巢皮质。对照组小母牛在84天内接受每千克代谢体重每天97.9克(97.9 g/kg0.75)的维持饮食。阶梯式饮食从8月龄开始,前84天给予限制性饲喂,即每千克代谢体重每天67.4克(67.4 g/kg0.75)。在最初的84天之后,对照组小母牛继续接受97.9 g/kg0.75的饮食,而阶梯式饮食组的小母牛则在接下来的68天内接受118.9 g/kg0.75的高营养饮食,随后在13月龄时进行卵巢切除术16,以研究培养前后卵泡发育阶段和形态的变化。我们还检测了皮质培养基中分泌的类固醇激素、类固醇代谢物、趋化因子和细胞因子的差异。通过测定类固醇和其他代谢物的水平,判断体内和/或体外处理是否对组织活力和功能产生直接影响。培养前后卵巢微环境的变化提供了培养前内分泌环境和卵泡发生的快照,并揭示了培养过程本身或培养期间的处理对卵泡发育进程或停滞的影响。
根据美国肉类动物研究中心(USMARC)的IACUC操作规程,从对照组和阶梯式营养组的13月龄小母牛中进行卵巢切除术后采集卵巢16,使用含0.1%抗生素的无菌磷酸盐缓冲液(PBS)清洗以去除血液和其他污染物,修除多余组织后,在37°C条件下运送至内布拉斯加大学林肯分校(UNL)生殖生理学实验室23。在UNL实验室,将卵巢皮质切成小块方形组织(约0.5–1 mm3;图1),并进行为期7天的培养(图2)。在培养前后对卵巢皮质培养切片进行组织学分析,以确定卵泡发育阶段16,24(图3 和 图4),以及可能提示纤维化的细胞外基质蛋白(Picro-Sirius Red染色,PSR;图5)。这有助于评估体内营养干预对卵泡发育阶段的影响,并可比较卵巢皮质体外培养7天期间卵泡阶段的变化及卵泡发育进程。在整个培养过程中,每天收集并更换培养基(每天收集约70%的培养液;每孔250 µL),以便检测每日激素/细胞因子/趋化因子水平,或按天数合并样本以获得平均浓度。类固醇激素如雄烯二酮(A4)和雌二醇(E2)可按每3天合并样本后通过放射免疫分析法(RIA;图6)检测,或按每只动物4天合并样本后采用高效液相色谱-质谱联用法(HPLC-MS)进行测定24,25(表1)。采用细胞因子阵列法检测卵巢皮质培养液中细胞因子和趋化因子的浓度26(表2)。通过实时聚合酶链式反应(RT-PCR)检测板分析特定信号转导通路相关基因的表达水平,方法如先前所述16。所有类固醇激素、细胞因子、卵泡阶段及组织学标志物共同提供了卵巢微环境的综合图景,并揭示该微环境支持"正常"或"异常"卵泡发生的潜在能力。
访问受限。请登录或开始试用以查看此内容。
方案
卵巢取自美国肉类动物研究中心16。如先前所述16,所有操作均经美国肉类动物研究中心(USMARC)动物护理与使用委员会批准,符合《农业研究与教学中农业动物护理与使用的指南》的要求。卵巢被运送至内布拉斯加-林肯大学生殖实验室,在该实验室进行处理和培养。
1. 所需培养基的制备
- Waymouth MB 752/1 培养基
- 取一个 1 L 的组织培养瓶,加入 900 mL 无菌水。在搅拌器上轻轻搅拌的同时,逐渐加入粉末状培养基。待粉末完全溶解后,加入 2.24 g 碳酸氢钠,随后加入 1.25 g 牛血清白蛋白(BSA)。使用 pH 计将 pH 值调节至 7.25–7.35。再添加无菌水至终体积为 1 L。
- 转移至生物安全柜中,加入青霉素-链霉素硫酸盐,使其终浓度为培养基体积的 0.1%(v/v)。使用孔径为 0.22 µm、面积为 33.2 cm2、容量为 500 mL 的瓶顶滤器过滤培养基。
- 将过滤后的培养基分装至多个 50 mL 圆锥形离心管中。每 50 mL 分装的培养基中加入 0.5 mL 胰岛素-转铁蛋白-硒(Insulin-Transferrin-Selenium)。
- 用铝箔包裹离心管及培养基原液瓶,于 4 °C 保存。该培养基对光敏感。
注意:Waymouth 培养基可保存长达 1 个月。
- Leibovitz's L-15(LB-15)培养基
注意:LB-15 培养基用于在培养前清洗组织。- 取一个 1 L 的组织培养瓶,加入 900 mL 无菌水。在搅拌器上轻轻搅拌无菌水的同时,逐渐加入预先配制的粉末状培养基。使用 pH 计将 pH 值调节至 7.25–7.35。再添加无菌水至终体积为 1 L。
- 转移至生物安全柜中。配制 1 L 含 0.1% 抗生素的 LB-15 培养基(见材料表)。使用孔径为 0.22 µm、面积为 33.2 cm2、容量为 500 mL 的瓶顶滤器,将培养基过滤至两个 500 mL 组织培养瓶中。由于 LB-15 培养基对光敏感,需用铝箔包裹瓶子,并于 4 °C 保存。
注意:LB-15 培养基可保存长达 1 个月。
- 磷酸盐缓冲液(PBS)
- 可在实验室自行配制或购买不含钙和镁的无菌 PBS(见材料表)。若在实验室配制,先取 800 mL 蒸馏水,加入 8 g 氯化钠(NaCl),然后依次加入 0.2 g 氯化钾(KCl)、1.44 g 磷酸氢二钠(Na2HPO4)和 0.24 g 磷酸二氢钾(KH2PO4)。调节 pH 至约 7.4,并定容至 1 L。通过高压灭菌对溶液进行灭菌。
- 在生物安全柜中配制含 0.1% 抗生素的 1 L PBS(见材料表)。
2. 卵巢皮质培养方案
注意:卵巢取自春季出生的USMARC小母牛,年龄为13个月。卵巢经充分冲洗,并用含抗生素(0.1%)的PBS去除所有血液及其他液体,随后在37 °C23条件下运送至内布拉斯加大学林肯分校繁殖实验室(UNL)(距离1.5小时车程)。(有关运输过程中卵巢温度的讨论,请参见讨论部分)
- 在洁净工作台上准备卵巢组织(图1)。
- 使用70%乙醇对洁净工作台进行消毒。在台面上放置一张新的吸水垫。确保在解剖前半小时开启洁净工作台的吹风装置和紫外灯,以对工作台内的所有物品(包括吸水垫)进行灭菌,并确保穿戴适当的个人防护装备(PPE)。
- 准备用于组织清洗的培养皿(60 × 15 mm)。需要三个培养皿用于PBS清洗,三个用于含抗生素的PBS清洗,三个用于LB-15清洗。另需一个盛有LB-15的培养皿及其配套盖子,用于清洗后组织块的最终放置。
- 向每个培养皿中加入约10 mL的适当液体,即PBS或LB-15。
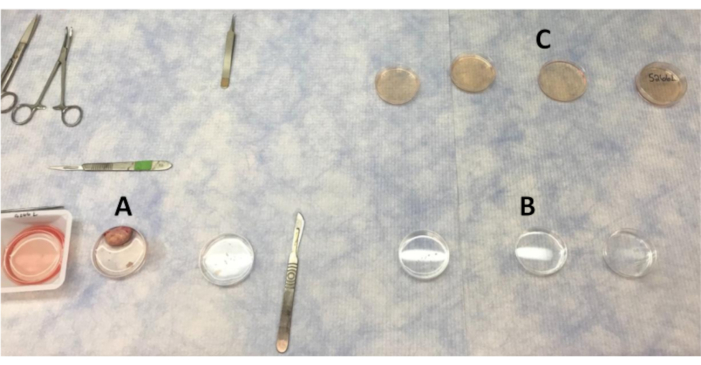
图1: 在超净工作台中清洗卵巢及皮质组织块的培养皿布局。(A)在切除皮质组织片段时,用于清洗卵巢的PBS。(B)含抗生素的PBS,用于清洗皮质组织块。(C)卵巢皮质组织块在LB-15中清洗四次后,转移至生物安全柜中进行LB-15的最终清洗。请点击此处查看该图的放大版本。
- 从冰箱中取出已配制好的沃姆斯培养基(Waymouth)和LB-15培养基,并恢复至室温。
- 使用前将所有工具进行高压灭菌,以确保无菌。
- 将卵巢维持在37 °C,直至准备收集卵巢皮质。
- 使用带锯齿状钳口的镊子夹取卵巢,在第一个盛有PBS的培养皿中彻底清洗。随后将卵巢转移至第二个PBS洗涤液中,再次彻底清洗。
注意:在剥离卵巢皮质条带期间,卵巢应保留在第二个PBS洗涤液中。 - 用带锯齿状钳口的镊子固定卵巢,并将其切为两半。此时,卵巢皮质将与髓质分离。使用直尺确保从卵巢表面去除的组织深度不超过1–2 mm16。用手术刀(#11刀片;#3刀柄)从髓质上切除卵巢皮质的横切片段,切出3–4条薄的卵巢皮质条带(图2),并将这些条带放入第三个盛有PBS的培养皿中。
注意:此时可额外收集卵巢皮质组织用于RNA提取,或固定后用于初始未培养皮质组织块的组织学分析。在剥离卵巢皮质条带时,应避开含有明显囊状卵泡或黄体的区域,同时避免收集髓质组织。如先前研究所示,髓质的组织学特征与皮质显著不同16。若卵巢皮质切割深度不超过1–2 mm,则不应获取到髓质组织。明显的组织学差异可作为皮质与髓质之间的解剖标志。 - 在第三个含PBS的培养皿中,使用#21手术刀片将卵巢皮质条带切成小的方形组织块(约0.5–1 mm3)。在培养皿下方放置直尺,以确保所切组织块大小和厚度一致,从而获得均一的卵巢皮质组织块。切割时用镊子固定条带,同时使用手术刀进行切割。
注意:所切组织块的数量取决于实验设计。每份培养样本至少需要四个卵巢皮质组织块。其他确保合适长度和深度的方法包括使用专用切片器26或预制塑料模板27。 - 将卵巢皮质组织块依次通过三个含抗生素的PBS培养皿进行洗涤。使用弯头镊子在各洗涤步骤间转移组织块。
- 将皮质组织块依次通过一系列LB-15洗涤液,并最终置于盛有LB-15培养基的培养皿中。在皿盖上标记动物编号及卵巢侧别(左侧或右侧)。
注意:每次洗涤时应确保卵巢皮质组织块完全浸没,以实现充分清洁。 - 每侧卵巢取四个卵巢皮质组织块用于固定,以进行第0天组织学分析。其余组织块可额外快速冷冻用于RNA提取。剩余的组织块将用于后续培养。每次组织采集后,均需用70%乙醇擦拭解剖工具。
- 准备生物安全柜,用于最终的组织洗涤和培养前处理。将所需物品用70%乙醇消毒后放入生物安全柜内。在生物安全柜内操作时应遵循无菌技术。
- 将所有拟用于培养的卵巢皮质组织块转移至生物安全柜中,并在盛有LB-15培养基的培养皿中再洗涤一次。
- 在24孔组织培养板中,每孔加入350 µL沃姆斯培养基(Waymouth medium)。
- 使用镊子将未包被的培养小室插入每孔中。确保插入物底部无气泡形成,否则会导致组织干燥。培养基必须与插入物接触,以便通过毛细作用吸收并包围卵巢皮质组织块。
- 小心地将四个卵巢皮质组织块放置于每个插入物的网格表面(图2)。若操作不当,镊子可能刺穿网格。组织块之间以及组织块与插入物侧壁之间不应相互接触。
- 将组织置于37 °C、5% CO2条件下培养16。
注意:其他研究曾采用38.8 °C28,但在组织完整性或卵泡发育能力方面,未观察到37 °C与之存在显著差异,其他研究者也未发现明显差别39,30。因此,目前认为上述任一温度均适用于实验成功。另有研究使用400 µL培养基,两种体积均可接受,只要保持一致即可;组织应部分浸入培养基中,以维持足够的表面张力,确保组织充分水合(培养基包围卵巢皮质组织块)。空孔中加入500 µL无菌水,有助于减少其他孔中培养基的蒸发。
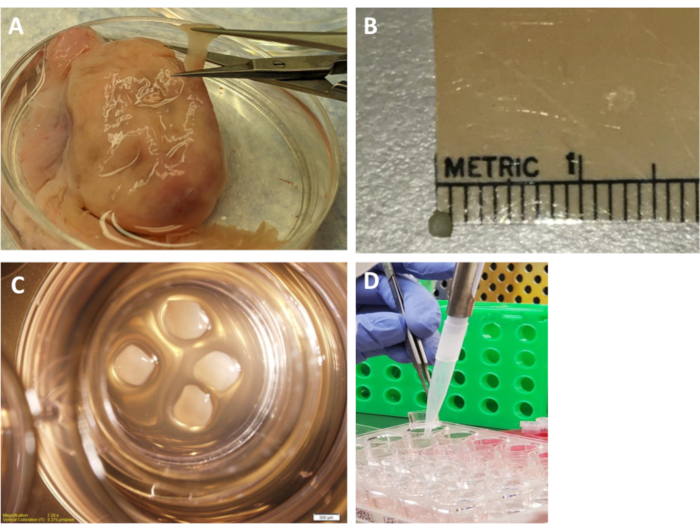
图 2:卵巢皮质组织块及培养板。(A)从卵巢皮质中切取卵巢条带。(B)皮质组织块与尺子并列展示。(C)四个皮质组织块(~0.5–1 mm3)放置于培养板中插入物的表面,浸没在培养基中。(D)提起插入物以从孔中收集培养基。每天收集并更换全部培养基(250 µL),以维持适宜的 pH 值。每天从每个孔中可获得约 250 µL 培养基(约为初始培养基体积的 70%)。请点击此处查看该图的放大版本。
3. 培养基收集
- 将卵巢皮质培养基每天更换一次,持续7天。换液时间应尽可能接近间隔24小时,以防止培养基pH值和颜色发生较大变化。换液前将Weymouth培养基预热至37 °C。每天从每个孔中可收集约250 µL培养基(约为初始培养基体积的70%)。
- 换液过程中,使用镊子轻轻将插入物从孔中取出。将培养后的Weymouth培养基收集至0.5 mL离心管中(约250 µL/天)。将插入物放回孔中,并通过在插入物边缘与孔壁之间加样,加入350 µL新鲜培养基。
注意:每日更换大部分培养基,以获得足量培养基用于检测确定卵巢微环境所需的全部类固醇激素、细胞因子和趋化因子。此外,每日换液对于防止培养基pH值发生较大变化(以颜色改变为指示)至关重要。保留少量培养基液滴围绕在卵巢皮质组织周围,以确保组织始终处于湿润状态。更换70%培养基未对培养组织造成任何问题。 - 将组织培养收集的培养基储存在-20 °C条件下。
4. 成像与后续处理
- 在 37 °C、5% CO2 条件下培养 7 天后,使用配备相机和计算机成像软件的解剖显微镜对卵巢皮质组织块进行成像。
注意:通常在暗室中成像可获得最佳图像质量。 - 成像后,每孔取两个卵巢皮质组织块用 Bouin 氏液固定以进行组织学分析,并另取两个组织块在液氮中速冻以提取 RNA 用于 cDNA 制备。对所有含组织的孔重复此步骤。收集第 7 天的培养基并储存在 -20 °C。
- 将卵巢皮质组织块浸入 Bouin 氏液(苦味酸 750 mL、冰醋酸 50 mL、37%–40% 甲醛 250 mL)中固定约 1.5 小时,随后用 70% 乙醇洗涤三次。组织将保留在 70% 乙醇中,并每日更换直至溶液不再呈黄色。
注意:除 Bouin 氏液外,也可使用其他固定剂,如多聚甲醛。本实验选用 Bouin 氏液,因其可获得最佳形态学效果。若需更多组织用于其他分析,可从每只动物获取额外的培养孔和卵巢皮质组织块。
访问受限。请登录或开始试用以查看此内容。
结果
该牛皮质培养方法可用于从小块卵巢组织中获取多种激素、细胞因子及组织学数据。染色方法,如苏木精和伊红(H&E)可用于通过卵泡分期来确定卵巢形态16,23,31 (图3)。简言之,卵泡根据形态分为以下类型:原始卵泡,即卵母细胞周围被单层扁平的前颗粒细胞包绕(0);过渡期卵泡或早期初级卵泡,即卵母细胞周围主要为扁平的前颗粒细胞,伴有部分立方形颗粒细胞(1);初级卵泡,即卵母细胞周围有1–1.5层立方形颗粒细胞(2);次级卵泡,即卵母细胞周围有两层或以上立方形颗粒细胞(3);窦前卵泡,即直径不超过1 mm,被两层或以上颗粒细胞包绕,并含有明显窦腔结构(4)16,23 (图3)。可通过在培养前后固定卵巢皮质来对卵泡进行分...
访问受限。请登录或开始试用以查看此内容。
讨论
如本文所述,体外卵巢皮质培养的优点在于,卵泡在标准化的环境中发育,且周围有相邻的基质组织包绕。体细胞和卵母细胞保持完整,并能够实现类似于体内模型的适当细胞间通讯。本实验室发现,7天的培养体系可为代表性的卵泡发生和类固醇生成数据提供可靠的卵巢皮质处理方案。其他卵巢组织培养方案的培养时间较短,为1–6天7,32,或较长,为10–15天5,6,10。然而,我们观察到,培养时间超过7天会导致组织退化、类固醇生成减少,并可能增加污染风险(数据未显示)。在卵巢切除术后对卵巢皮质进行培养,还可直接揭示特定动物体内卵巢微环境的状况。这一点对我们的研究实验室尤为重要,因为我们已发现,在断奶后至青春期期间实施不同营养干预后,小母牛的卵泡发育出现了变化16。
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究由美国食品与农业研究所(2013-67015-20965)向ASC提供的资助、内布拉斯加大学“食品与健康”竞争性拨款向ASC提供的资助、美国农业部哈奇基金(NEB26-202/W3112,编号#1011127)向ASC提供的资助,以及哈奇–NEB ANHL基金(编号#1002234)向ASC提供的资助支持。此外,还获得了定量生命科学计划夏季博士后学者支持——COVID-19专项资助,用于支持CMS的暑期研究经费。
作者谨向美国内布拉斯加州克莱中心美国肉类动物研究中心的 Robert Cushman 博士致以诚挚谢意,感谢他在先前发表的研究中提供了卵巢组织,这些组织随后在本研究中被用于验证该技术的可行性。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| #11 手术刀片 | Swann-Morton | 303 | 手术刀片 |
| #21 手术刀片 | Swann-Morton | 307 | 手术刀片 |
| 500 mL 瓶顶过滤器 | Corning | 430514 | 孔径为 0.22 µm 的瓶顶过滤器,用于培养基过滤 |
| AbsoluteIDQ Sterol17 检测试剂盒 | Biocrates | Sterol17 Kit | 样本送至 Biocrates 进行类固醇谱检测,结果返回 |
| 雄烯二酮双抗体放射免疫分析试剂盒 | MPBio | 7109202 | 用于测定培养基中雄烯二酮含量的放射免疫分析法 |
| 比利时 A4 检测试剂盒 | DIA Source | KIP0451 | 用于测定培养基中雄烯二酮含量的放射免疫分析法 |
| 牛细胞因子阵列 Q3 | RayBiotech | QAB-CYT-3-1 | 用于测定培养基中细胞因子的细胞因子检测试剂盒 |
| cellSens 软件标准版 1.3 | Olympus | 7790 | 成像软件 |
| 胰岛素-转铁蛋白-硒-X 添加剂 | Gibco ThermoFisher Scientific | 5150056 | 添加至培养基中的补充剂 |
| Leibovitz's L-15 培养基 | Gibco ThermoFisher Scientific | 4130039 | 用于洁净台和生物安全柜中的组织清洗 |
| 显微镜 | Olympus | SZX16 | 用于成像组织培养样本的解剖显微镜 |
| 显微镜相机 | Olympus | DP71 | 用于成像组织培养样本的显微镜相机 |
| Millicell 细胞培养插件 0.4 µm,直径 12 mm | Millipore Sigma | PICM01250 | 使组织可置于培养基上方而不完全浸没其中的插件 |
| 多孔板 24 孔板 | Falcon | 353047 | 用于盛放培养基、插件和组织的培养板 |
| 培养皿 60 × 15 mm | Falcon | 351007 | 用于培养前清洗步骤的培养皿 |
| 磷酸盐缓冲液 (PBS 1X) | Corning | 21-040-CV | 用于组织清洗 |
| SAS 软件版本 9.3 | SAS Institute | 9.3 TS1M2 | 统计分析软件 |
| Thomas Stadie-Riggs 组织切片器 | Thomas Scientific | 6727C10 | 用于制备新鲜组织的薄而均匀切片的组织切片器 |
| Waymouth MB 752/1 培养基 | Sigma-Aldrich | W1625 | 用于组织培养的培养基 |
参考文献
- Braw-Tal, R., Yossefi, S. Studies in vivo and in vitro on the initiation of follicle growth in the bovine ovary. Journal of Reproduction and Fertility. 109, 165-171 (1997).
- Nilsson anEdson, M. A., Nagaraja, A. K., Matzuk, M. M. The mammalian ovary from genesis to revelation. Endocrine Reviews. 30 (6), 624-712 (2009).
- Fortune, J. E., Cushman, R. A., Wahl, C. M., Kito, S. The primordial to primary follicle transition. Molecular and Cellular Endocrinology. 163, 53-60 (2000).
- Ireland, J. J. Control of follicular growth and development. Journal of Reproduction and Fertility. 34, 39-54 (1987).
- Higuchi, C. M., Maeda, Y., Horiuchi, T., Yamazaki, Y. A simplified method for three-dimensional (3-D) ovarian tissue culture yielding oocytes competent to produce full-term offspring in mice. PLoS One. 10 (11), e0143114(2015).
- Ramezani, M., Salehnia, M., Jafarabadi, M. Short term culture of vitrified human ovarian cortical tissue to assess the cryopreservation outcome: molecular and morphological analysis. Journal of Reproduction & Infertility. 18 (1), 162-171 (2017).
- McLaughlin, M., Telfer, E. Oocyte development in bovine primordial follicles is promoted by activin and FSH within a two-step serum-free culture system. Reproduction. 139 (6), 971-978 (2010).
- Stefansdottir, A., Fowler, P. A., Powles-Glover, N., Anderson, R. A., Spears, N. Use of ovary culture techniques in reproductive toxicology. Reproductive Toxicology. 49, 117-135 (2014).
- Bromfield, J. J., Sheldon, I. M. Lipopolysaccharide reduces the primordial follicle pool in the bovine ovarian cortex ex vivo and in the murine ovary in vivo. Biology of Reproduction. 88 (4), 1-9 (2013).
- Franks, S., Stark, J., Hardy, K. Follicle dynamics and anovulation in polycystic ovary syndrome. Humane Reproduction Update. 14 (4), 367-378 (2008).
- Desmeules, P., Devine, P. J. Characterizing the ovotoxicity of cyclophosphamide metabolites on cultured mouse ovaries. Toxicological Sciences. 90 (2), 500-509 (2006).
- Bott, R. C., McFee, R. M., Clopton, D. T., Toombs, C., Cupp, A. S. Vascular endothelial growth factor and kinase domain region receptor are involved in both seminiferous cord formation and vascular development during testis morphogenesis in the rat. Biology of Reproduction. 75, 56-67 (2006).
- Baltes-Breitwisch, M. M., et al. Neutralization of vascular endothelial growth factor antiangiogenic isoforms or administration of proangiogenic isoforms stimulates vascular development in the rat testis. Reproduction. 140 (2), 319-329 (2010).
- McFee, R. M., et al. Inhibition of vascular endothelial growth factor receptor signal transduction blocks follicle progression but does not necessarily disrupt vascular development in perinatal rat ovaries. Biology of Reproduction. 81, 966-977 (2009).
- Artac, R. A., et al. Neutralization of vascular endothelial growth factor antiangiogenic isoforms is more effective than treatment with proangiogenic isoforms in stimulating vascular development and follicle progression in the perinatal rat ovary. Biology of Reproduction. 81, 978-988 (2009).
- Abedal-Majed, M. A., et al. Vascular endothelial growth factor A isoforms modulate follicle development in peripbertal heifers independent of diet through diverse signal transduction pathways. Biology of Reproduction. 102 (3), 680-692 (2020).
- Wandji, S. A., Srsen, V., Voss, A. K., Eppig, J. J., Fortune, J. E. Initiation in vitro of bovine primordial follicles. Biology of Reproduction. 55, 942-948 (1996).
- Wandji, S. A., Srsen, V., Nathanielsz, P. W., Eppig, J. J., Fortune, J. E. Initiation of growth of baboon primordial follicles in vitro. Human Reproduction. 12 (9), 1993-2001 (1993).
- Yang, M. Y., Fortune, J. E. Testosterone stimulates the primary to secondary follicle transition in bovine follicles in vitro. Biology of Reproduction. 75, 924-932 (2006).
- Fortune, J. E., Kito, S., Wandji, S. A., Srsen, V. Activation of bovine and baboon primordial follicles in vitro. Theriogenology. 49, 441-449 (1998).
- Yang, M. Y., Fortune, J. E. Vascular endothelial growth factor stimulates the primary to secondary follicle transition in bovine follicles in vitro. Molecular Reproduction and Development. 74, 1095-1104 (2007).
- Barberino, R. S., Silva, J. R. V., Figueiredo, J. R., Matos, M. H. T. Transport of domestic and wild animal ovaries: a review of the effects of medium, temperature, and periods of storage on follicular viability. Biopreservation and Biobanking. 17 (1), 84-90 (2019).
- Summers, A. F., et al. Altered theca and cumulus oocyte complex gene expression, follicular arrest and reduced fertility in cows with dominant follicle follicular fluid androgen excess. PLoS One. 9 (10), e110683(2014).
- Koal, T., Schmiederer, D., Pham-Tuan, H., Rohring, C., Rauh, M. Standardized LC-MS/MS based steroid hormone profile analysis. The Journal of Steroid Biochemistry and Molecular Biology. 129, 129-138 (2012).
- Poole, R. K., Brown, A. R., Pore, M. H., Pickworth, C. L., Poole, D. H. Effects of endophyte-infected tall fescue seed and protein supplementation on stocker steers: II. Adaptive and innate immune function. Journal of Animal Science. 97 (10), 4160-4170 (2019).
- Laronda, M., et al. Alginate encapsulation supports the growth and differentiation of human primordial follicles within ovarian cortical tissue. Journal of Assisted Reproduction and Genetics. 31 (8), 1013-1028 (2014).
- Silber, S. J., et al. A series of monozygotic twins discordant for ovarian failure: ovary transplantation (cortical versus microvascular) and cryopreservation. Human Reproduction. 23 (7), 1531-1537 (2008).
- Wiedemann, C., Zahmel, J., Jewgenow, K. Short-term culture of ovarian cortex pieces to assess the cryopreservation outcome in wild fields for genome conservation. BMC Veterinary Research. 9 (37), (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell and Tissue Research. 354 (3), 869-880 (2013).
- Shimizu, T., Miyamoto, A. Progesterone induces the expression of vascular endothelial growth factor (VEGF) 120 and Flk-1, its receptor, in bovine granulosa cells. Animal Reproduction Science. 102 (3-4), 228-237 (2007).
- Tepekoy, F., Akkoyunlu, G. The effect of FSH and activin A on Akt and MAPK1/3 phosphorylation in cultured bovine ovarian cortical strips. Journal of Ovarian Research. 9 (13), 1-9 (2016).
- Beck, K., Singh, J., Arshud Dar, M., Anzar, M. Short-term culture of adult bovine ovarian tissues: chorioallantoic membrane (CAM) vs. traditional in vitro culture systems. Reproductive Biology and Endocrinology. 16 (1), 21(2018).
- Eppig, J. J. Oocyte control of ovarian follicular development and function in mammals. Reproduction. 122 (6), 829-838 (2001).
- Paczkowski, M., Silva, E., Schoolcraft, W. B., Krisher, R. L. Comparative importance of fatty acid beta-oxidation to nuclear maturation, gene expression, and glucose metabolism in mouse, bovine, and porcine cumulus oocyte complexes. Biology of Reproduction. 88 (5), 1-11 (2013).
- Raffel, N., et al. Is ovarian tissue transport at supra-zero temperatures compared to body temperature optimal for follicle survival? In Vivo. 34 (2), 533-541 (2020).
- Duncan, F., et al. Ovarian tissue transport to expand access to fertility preservation: from animals to clinical practice. Reproduction (Cambridge, England). 152 (6), R201-R210 (2016).
- Liebenthron, J., et al. Overnight ovarian tissue transportation for centralized cryobanking: a feasible option. Reproductive BioMedicine Online. 38 (5), 740-749 (2019).
- Mohammed, B. T., Donadeu, F. X. Bovine granulosa cell culture. Epithelial Cell Culture: Methods and Protocols. , 79-87 (2018).
- Langbeen, A., et al. Effects of neutral red assisted viability assessment on the cryotolerance of isolated bovine preantral follicles. Journal of Assisted Reproduction Genetics. 31, 1727-1736 (2014).
- Higuchi, C. M., Maeda, Y., Horiuchi, T., Yamazaki, Y. A simplified method for three-dimensional (3-D) ovarian tissue culture yielding oocytes competent to produce full-term offspring in mice. PLoS One. 10 (11), e0143114(2015).
- Yang, M. Y., Fortune, J. E. Changes in the transcriptome of bovine ovarian cortex during follicle activation in vitro. Physiological Genomics. 47, 600-611 (2015).
访问受限。请登录或开始试用以查看此内容。
重印与许可
