本方案概述了一种从大鼠骨骼肌中分离纤维脂肪生成祖细胞(FAPs)和肌源性祖细胞(MPs)的方法。在肌肉损伤模型中使用大鼠可提供更多的萎缩肌肉组织用于分析,并具备更丰富的已验证方法,用于评估自由活动动物的肌肉力量和步态。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
大鼠骨骼肌中纤维脂肪生成祖细胞(FAPs)与肌源性祖细胞(MPs)的鉴定、分离与表征
* These authors contributed equally
本文内容
摘要
摘要
纤维脂肪生成祖细胞(FAPs)是骨骼肌中固有的间质细胞,与肌源性祖细胞(MPs)共同在肌肉稳态、损伤及修复过程中发挥关键作用。目前针对FAPs的鉴定与分离方案主要依赖流式细胞术/荧光激活细胞分选(FACS),而迄今为止评估其功能的体内研究均 exclusively 在小鼠中开展。大鼠固有的体型较大,使得在骨骼肌损伤模型中对FAPs进行更全面的分析成为可能,尤其适用于严重萎缩的肌肉组织,或当研究人员需要大量组织样本以开展多项下游检测的情况。此外,大鼠还提供了更多可选的肌肉功能检测方法,这些方法无需对动物进行镇静或处死,从而通过连续多次评估显著降低动物发病率并减少动物使用量。目前为小鼠优化的流式细胞术/FACS方案具有物种特异性,尤其受限于 commercially available 抗体的特性,尚未针对大鼠或高度纤维化的肌肉组织中的FAPs分离进行优化。本研究建立了一种适用于健康及去神经支配大鼠骨骼肌中FAPs和MPs鉴定与分离的流式细胞术/FACS方案,该方案基于表面标志物CD31、CD45、Sca-1和VCAM-1的差异表达。由于经流式细胞术验证的、针对大鼠特异性的初级抗体极为有限,本研究自行完成了靶向Sca-1抗体的标记偶联。通过该方案,成功验证了Sca-1抗体的偶联效果,并通过细胞培养及对FACS分离获得的FAPs和MPs进行免疫染色,确认了流式细胞术对两类细胞的鉴定准确性。最后,我们报道了一种在长期(14周)大鼠去神经支配模型中FAPs动态变化的 novel 时间进程。该方法使研究人员能够在一种 novel 动物模型中开展FAPs的相关研究。
引言
纤维-脂肪生成祖细胞(FAPs)是一类存在于骨骼肌中的常驻多能祖细胞,在肌肉稳态、修复和再生中发挥关键作用;相反,它们也介导了肌肉损伤后的病理性反应。顾名思义,FAPs最初被鉴定为具有分化为成纤维细胞和脂肪细胞潜能的祖细胞群体1 ,并被认为是在慢性损伤和疾病状态下骨骼肌发生纤维-脂肪浸润的关键介导者。进一步研究表明,FAPs还具备成骨和软骨生成能力2,3,4。因此,在文献中更广泛地将其标记为间充质或基质祖细胞3,5,6,7,8。在急性骨骼肌损伤中,FAPs通过短暂增殖,为活化的肌肉卫星细胞及其下游的成肌祖细胞(MPs)提供有利微环境,从而间接促进再生性成肌过程1,9,10。随着再生成功完成,FAPs经历凋亡,数量恢复至基础水平1,9,10,11。相比之下,在慢性肌肉损伤中,FAPs会克服促凋亡信号,导致其持续存在9,10,11 并引发异常的肌肉修复。
体内 迄今为止,研究FAPs介导肌肉反应的细胞和分子机制的研究均采用小鼠动物模型1,7,9,10,11,12,13,14. 虽然基因工程小鼠是强大的研究工具,可用于 在这些分析中的应用,动物体型较小限制了组织的可获取性,尤其是在肌肉萎缩可能极为显著的长期局部损伤模型中,例如创伤性去神经支配。此外,肌肉力量和身体功能的测量需要 离体 或 原位 需要终止小鼠的测量,或 体内 需要手术和/或全身麻醉以评估肌肉收缩功能的方法15,16,17,18,19,20在大鼠中,存在多种经过充分验证且全球广泛使用的肌肉功能分析方法,此外还包括针对更复杂运动行为的分析方法,例如步态分析(如坐骨神经功能指数、CatWalk分析),这些分析均在清醒且自发运动的动物中进行。21,22,23,24这进一步优化了动物实验中尽量减少动物伤害的原则,并减少了实验动物的使用数量。大鼠模型为FAPs研究者提供了更大的损伤肌肉体积,便于进行蛋白质和细胞分析,同时能够在清醒动物中连续评估肌肉复合体的静态与动态功能活动及行为。
FAPs 主要通过流式细胞术和荧光激活细胞分选(FACS)分别从完整的肌肉样本中鉴定和分离。这些基于激光的检测方法能够根据细胞的大小、颗粒度以及特定的细胞表面或细胞内标志物组合等特征,识别多种特定的细胞群体。25。这对于骨骼肌等器官系统的研究具有显著优势,因为稳态和再生过程是 由多种细胞类型协调的复杂、多因素过程。一项开创性研究利用流式细胞术在小鼠骨骼肌中鉴定出FAPs以及MPs。1他们证明FAPs具有间充质特性,因为它们缺乏内皮细胞(CD31)、造血细胞(CD45)或肌源性细胞(整合素-α7 [ITGA7])特异的表面抗原,但表达间充质干细胞标志物Sca-1(干细胞抗原1)。1 并在培养中分化为成纤维细胞和脂肪细胞。其他研究证实,基于替代性干细胞标志物血小板源性生长因子受体α(PDGFRα)的表达,可成功从肌肉中分离出间充质前体细胞。2,7,8 进一步分析表明,这些很可能与FAPs属于同一细胞群体3FAPs 现在通常通过流式细胞术,以 Sca-1 或 PDGFRα 作为阳性选择标志物进行鉴定。1,9,10,11,12,13,14,26,27,28,29,30,31. 使用PDGFRα更适用于人类组织 然而,目前尚未鉴定出小鼠 Sca-1 的直接人类同源物32此外,已有研究报道其他细胞表面蛋白可作为微囊泡(MPs)的标志物(例如 VCAM-1),这为在分离脂肪间质细胞(FAPs)过程中识别肌源性谱系细胞提供了替代 ITGA7 的潜在指标33.
尽管流式细胞术/FACS 是研究骨骼肌中纤维脂肪生成祖细胞(FAPs)作用及其致病潜力的强大方法1,9,10,11,13,29,但其技术上受限于所需试剂的特异性和优化程度。由于FAPs的流式细胞术鉴定与分离技术是在小鼠动物模型中建立并实施的1,9,10,11,29,这为希望在其他模式生物中研究FAPs的研究人员带来了挑战。许多因素——例如待处理组织的最佳大小,以及试剂和/或抗体的特异性与可获得性——均因所用物种的不同而存在差异。
除了在新型动物模型中研究FAPs存在技术障碍外,目前对FAPs的研究主要集中在急性毒性环境下进行,通常通过肌肉内化学注射或心脏毒素处理来实现。关于FAPs长期动态变化的研究,主要局限于杜氏肌营养不良症的mdx小鼠模型9,10,11,以及复合性肌肉损伤模型,例如在肩部肌肉上同时造成肌腱横断和去神经支配的大规模肩袖撕裂模型26,27,28。而对于慢性创伤性去神经支配这一单一损伤因素所引发的FAPs反应——这种情况在重工业、农业中的工伤事故以及出生时的创伤(臂丛神经损伤)34,35,36,37 中较为常见且具有显著的发病率——目前尚缺乏充分表征,相关研究往往局限于短期时间范围11,38。
我们描述了一种用于鉴定和分离大鼠健康骨骼肌以及严重萎缩和纤维化骨骼肌中FAPs和MPs的方法。首先,通过组织消化和流式细胞术染色方案,鉴定CD31-/CD45-/Sca-1+/VCAM-1- FAPs和CD31-/CD45-/Sca-1-/VCAM-1+ MPs,并通过培养及对FACS分离细胞进行免疫细胞化学染色来验证研究结果。利用该方法,我们还报道了在大鼠长期孤立性失神经损伤模型中FAPs的全新时间进程。
访问受限。请登录或开始试用以查看此内容。
方案
实施本方案的研究人员必须获得当地动物伦理委员会/护理委员会的许可。所有动物实验均经圣迈克尔医院Unity Health Toronto动物护理委员会(ACC #918)批准,并依照加拿大动物护理委员会(CCAC)制定的指南进行。流式细胞术方案的示意图见图1。如果后续应用为FACS及细胞培养,则所有步骤均需采用适当的无菌技术完成。
1. 肌肉组织的获取
- 使用适当的麻醉剂麻醉大鼠,并根据当地动物饲养设施和动物伦理委员会指南实施安乐死。本方案以成年雌性Lewis大鼠(200–250 g)的腓肠肌收获为例。大鼠通过2–3%异氟烷麻醉,并通过心内注射T61实施安乐死。
- 动物安乐死后,剃除整个后肢的毛发,以便于定位肌肉并最大限度减少收获组织中的毛发污染。
- 使用无菌手术刀在皮肤上做两个切口:第一个切口围绕踝关节周长,第二个切口沿后肢内侧中线从踝关节向上至髋部。
- 剥离皮肤和浅层肌肉组织,暴露出下方的腓肠肌,该肌肉起源于股骨的内侧和外侧髁,止于跟腱。
- 采用钝性分离法将腓肠肌与其周围组织分离,操作时仅通过肌腱抓持肌肉,以避免挤压损伤。
- 用锋利的剪刀尽可能远端横断跟腱,从而将腓肠肌从其止点分离。切断后,用镊子夹住跟腱,轻轻将腓肠肌从下方骨骼剥离。一手仍用镊子夹持肌肉,找到腓肠肌的两个起点,并在股骨内侧和外侧髁处切断。
- 将切除的腓肠肌轻轻在无菌纱布上吸干,尽可能去除血液。在无菌表面上修剪肌肉,去除多余的结缔组织以及跟腱。
- 将肌肉置于称量舟中,使用精密天平称重。本方案优化适用于湿重在200–600 mg范围内的肌肉消化。操作者可根据需要将多余的收获组织分割用于其他下游检测。
- 将用于流式细胞术的收获肌肉进一步轻轻分割为3–4个小片段(约1–2 cm3),浸入冰浴的1× PBS中。所有样本收获完成前,始终保持低温置于冰上。
2. 肌肉组织消化
- 从 PBS 中取出肌肉组织,置于无菌的 10 cm 细胞培养皿中。用镊子轻轻撕碎并剪切组织,使其成为约 3–4 mm3 的小块,尽可能去除结缔组织。充分剪碎后,转移至含有 6 mL DMEM + 1% 青霉素/链霉素(P/S)的无菌 50 mL 锥形管中。
- 将 10 µL 的 300 mM CaCl2 溶液加入 365 µL 胶原酶 II 溶液(储存浓度为 4800 U/mL)中,以激活胶原酶。将激活后的胶原酶 II 溶液加入含有组织悬液的 50 mL 锥形管中。最终胶原酶 II 浓度为 250 U/mL。
- 将锥形管置于摇床中,在 37 °C、240 × g 条件下孵育 1 小时,每 15 分钟手动轻轻旋转混匀一次,以使粘附在管壁上的组织脱落。
- 孵育 1 小时后,从摇床中取出锥形管,每份样品中加入:100 µL 胶原酶 II(4800 U/mL)和 50 µL 分散酶(Dispase,4.8 U/mL)。
- 使用血清移液管反复吹打样品 15–20 次,直至溶液均匀。若同时处理多个样品,应为每份样品使用单独的无菌移液管,以避免样品间交叉污染。
- 再次将样品置于摇床中,在 37 °C、240 × g 条件下孵育 30 分钟。孵育 15 分钟后,手动轻轻振荡样品,使粘附在管壁上的组织脱落。
3. 单细胞悬液的制备
- 使用10 mL注射器和20 G针头缓慢对样品进行10次剪切。
注意:一个循环包括将肌肉溶液吸入注射器,然后将其重新注入管中。应通过缓慢剪切尽量减少气泡产生,因为过度起泡可能导致额外的细胞死亡39。 - 将40 µm细胞筛置于无菌50 mL锥形管上,并通过移液加入5 mL DMEM + 10% FBS 和 1% P/S 润湿细胞筛。
- 每次移取1 mL样品通过细胞筛。
- 通过向细胞筛中移液含10% FBS和1% P/S的DMEM冲洗细胞筛,使管中总体积达到25 mL。
- 将25 mL样品等分至两个15 mL锥形管中,在15 °C、400 × g 条件下离心15分钟。
注意:将肌肉溶液分装至两个15 mL锥形管中,相较于单管离心,可提高离心后的细胞回收率。 - 吸除上清液,并在室温下用1 mL 1×红细胞裂解缓冲液(见补充文件)重悬沉淀,孵育7分钟以去除红细胞。
- 加入9 mL洗涤缓冲液(见补充文件)使总体积达到10 mL,于400 × g、15 °C离心15分钟。
- 吸除上清液,并用1 mL洗涤缓冲液重悬沉淀,合并细胞。
- 将适量细胞转移至另一1.5 mL微量离心管中,与台盼蓝染料混合,使用血细胞计数板在光学显微镜下计数活细胞。
4. 流式细胞术抗体染色
注意:根据制造商的说明,在进行流式细胞术/FACS 实验之前,Sca-1 抗体必须预先与 APC 偶联。每批偶联产物的性能必须经过验证(图 2)。最终的偶联产物可分装为 20 µL 份量,于 -20 °C 保存,可稳定维持三周。完整的偶联方案请参见补充文件。
- 进行流式细胞术时,将每份实验样品的 1–2 × 10⁶ 个细胞转移至无菌的 1.5 mL 微量离心管中。用洗涤缓冲液补足体积至 1 mL,并置于冰上。
- 每次实验需设置以下必要对照:i) 未染色对照;ii) 活性对照,用于准确圈选活细胞群体;iii) 单染减一(FMO)对照,使用单细胞悬液以准确设定 CD31⁻/CD45⁻ 细胞群、FAPs 和 MPs 的门控;iv) 单染补偿微珠,用于校正通道间的荧光溢出。
- 对于所有细胞对照,将 5 × 10⁵ – 1 × 10⁶ 个细胞分装至含 1 mL 洗涤缓冲液的 1.5 mL 微量离心管中,并置于冰上。
- 对于微珠对照,向每个标记好的 1.5 mL 微量离心管中加入 1 滴阳性补偿微珠(约每滴 1.5 × 10⁵ 个微珠)。完整的对照设置列于 表 1 中。
注意:若为首次进行该实验,除未染色、活性、单染补偿微珠及 FMO 对照外,还需对单细胞悬液中的每种偶联抗体进行单染对照,以评估细胞中的阳性染色群体,并验证补偿微珠上观察到的染色效果。每次新制备的 Sca-1::APC 试剂均需通过在补偿微珠和单细胞悬液上的单染实验进行验证。完整的染色对照列表请参见 表 1。
- 为制备活性对照,将“活性”管中一半体积的细胞转移至新的 1.5 mL 微量离心管中,并标记为“死亡”管。
- 将“死亡”管在 65 °C 孵育 2–3 分钟以杀死细胞,随后置于冰上。2–3 分钟后,将死亡细胞与活性对照管中剩余的活细胞重新混合。该细胞群体将用于设定补偿值(如需要)以及正确设定活性染料的门控。
- 将单细胞悬液(实验样品及对照)在 500 × g、4 °C 条件下离心 5 分钟。
- 吸除上清液,并将细胞沉淀重悬于 100 µL 洗涤缓冲液中。
- 根据实验样品或对照类型加入相应抗体。抗体组合及用量信息请参见染色矩阵(表 2)。
- 轻轻弹动各管以确保充分混匀,并在避光条件下冰上孵育 15 分钟。对于补偿微珠,需在室温避光条件下孵育 15 分钟。
- 对于单细胞悬液的实验及对照样品,加入 900 µL 洗涤缓冲液使总体积达到 1 mL。对于补偿微珠对照,加入 900 µL 的 1× PBS 使总体积达到 1 mL。
- 将单细胞悬液样品在 500 × g、4 °C 条件下离心 5 分钟;将补偿微珠对照在 300 × g、4 °C 条件下离心 5 分钟。
- 对于所有单细胞悬液样品,吸除并弃去上清液,将细胞沉淀重悬于 300 µL 洗涤缓冲液中。对于补偿微珠对照,吸除并弃去上清液,将沉淀重悬于 300 µL 的 1× PBS 中,然后加入 1 滴(约 1.5 × 10⁵)阴性补偿微珠。
- 将所有单细胞悬液样品用铝箔包裹后置于冰上,并立即进行流式细胞术检测。补偿微珠对照也应避光保存,但可置于室温下。
注意:若实验终点为通过流式细胞术鉴定 FAPs,请遵循步骤 5.1.1–5.1.11;若终点为通过 FACS 分选细胞用于培养和染色,请遵循步骤 5.2.1–5.2.9 及第 6–7 节。
5. 流式细胞术和荧光激活细胞分选(FACS)
- 流式细胞术
注意:本实验方案使用配备405 nm、488 nm和640 nm激光器的台式流式细胞仪,可同时区分10种不同荧光信号。本方案所用带通滤光片及其对应的荧光染料如下:450/50(SYTOX Blue)、530/30(FITC)、575/25(PE)和670/30(APC)。各检测器电压设置如下:FSC 700;SSC 475;FITC 360;PE 460;PE-Cy7 600;SYTOX Blue 360;APC 570。在使用前,请确保已接受流式细胞仪或细胞分选仪正确操作的培训。- 确保在使用前已将流式细胞仪开启10-20分钟,并依次用清洁液、冲洗液和鞘液各清洗30-45秒进行预处理。最后用去离子水冲洗2O. 确保已在鞘液储存容器中加入足量的鞘液,以在整个采集过程中维持正常的样本流速。
- 设置门控策略以鉴定FAPs和MPs,具体方案如图所示 图3.
注意:FAPs 和 MPs 通过以下分层设门策略进行鉴定:i)SSC-A 对 FSC-A(侧向散射面积 versus 前向散射面积,用于区分细胞与碎片),ii)FSC-W 对 FSC-H(前向散射宽度 versus 前向散射高度,用于在 FSC 参数中区分单细胞与双联体),iii)SSC-W 对 SSC-H(侧向散射宽度 versus 侧向散射高度,用于在 SSC 参数中区分单细胞与双联体),iv)SSC-A 对 SYTOX Blue(用于区分活细胞与死细胞单体),v)SSC-A 对 CD31/45::FITC(用于排除 CD31+ 和 CD45+ 细胞,不再进行后续分析),vi)在 CD31-/CD45-(谱系阴性;Lin-)群体中分析 Sca-1::APC 对 VCAM-1::PE(用于鉴定 FAPs 和 MPs)。FAPs 定义为 CD31-/CD45-/Sca-1+/VCAM-1- 事件,MPs 定义为 CD31-/CD45-/Sca-1-/VCAM-1+ 事件。 - 首先将每种单染色的补偿微球对照样品以低速通过流式细胞仪,以生成用于校正通道间荧光溢出的补偿值。通过比较每种对照样品在其对应检测器(例如,Sca-1::APC 单染色微球的 SSC-A vs APC)以及其他所有检测器中的荧光信号来评估补偿效果。在对应的检测器中应出现两个明显不同的细胞群(一个为阴性信号,一个为阳性信号),而在其他所有检测器中仅出现阴性细胞群。将停止门设定为 10,000 个补偿微球事件,并记录数据。
注意:在采集每个样品之间,务必运行去离子水2通过流式细胞仪清洗10-20秒,以避免样本间的交叉污染。 - 接下来处理未染色样本和活力对照样本,以准确圈选活的单细胞。将停止门设为10,000个单细胞事件并记录数据。
注意:除未染色样本外,每个单细胞悬液样本在采集前约5分钟加入 1 µL SYTOX Blue 活性染料300 µM 工作浓度为从1 mM母液稀释而来,加入各样品中,轻轻振荡混匀(终浓度 1 µM). - 然后获取剩余的单细胞悬液对照样本。在设门策略中,使用相应的图示评估每个FMO对照。图3)。例如,评估 CD31+CD45 FMO 的 FITC 信号,以确保 CD31−/CD45− 设门的准确性。一个理想示例如图所示 图3G如果首次进行该实验方案,应在获取FMO对照之前,先对细胞进行单染对照实验。
- 在相应的检测器中评估每种单染细胞样本的荧光信号,同时在所有其他检测器中检测以验证补偿设置的准确性。将停止门设置为10,000个活单细胞事件,并在软件中进行记录。
- 在完成所有对照样本(单细胞悬液和微珠)的处理后,开始准备所有实验样本,首先测量并记录每个样本的体积。这些测量数据将用于准确量化FAPs和MPs,具体方法见步骤5.1.11。然后,添加 50 µL 加入精密计数微球,轻轻吹打混匀2-3次。
- 短暂运行第一个实验样本,以验证计数微球群体的识别情况。该群体在FSC-A与SSC-A图中表现为一个与常规细胞群体分离的小而明显的簇。图3A,红色方框)。在计数微球群体周围创建一个门控。然后以低速通过流式细胞仪处理各实验样本并采集数据。将停止门设置为10,000个计数微球事件并进行记录。
注意:研究人员也可通过设置另一个散点图来识别计数微球,该图以SSC-A为横坐标,任一检测器信号为纵坐标,因为计数微球在所有检测器中均具有荧光信号。 - 所有样本处理完毕后,使用适当的方案清洗流式细胞仪。导出所有数据以供分析。
- 在合适的流式细胞术分析软件中打开所有数据文件。按照步骤5.1.2中所述用于数据采集的设门策略进行设置。以与数据采集相同的顺序检查对照样本(例如,未染色对照、活性检测对照、单染对照,然后FMO对照),以重新验证设门策略。使用FMO对照确认设门准确后,将该设门方案应用于所有实验样本。将原始数据导出为电子表格用于定量分析。
- 使用计数 beads 计算每个实验样品中 FAPs 和 MPs 的数量:
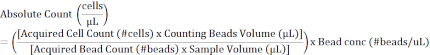
其中,Acquired Cell Count 为采集软件中记录的目标细胞群体(如 FAPs 或 MPs)的事件数;Acquired Bead Count 为采集软件中记录的计数微球的事件数;Counting Beads Volume 为第 5.1.7 步中加入的计数微球溶液的体积;Sample Volume 为加入计数微球前各染色实验样本的体积;Bead Concentration 为每微升计数微球溶液中所含微球的数量。 µL 溶液;该数值可在产品数据表中找到。
- FACS——用于细胞培养的细胞分选
注意:本方案使用配备4个激光器(紫外、紫、蓝、红)并能够同时区分11至14种颜色的细胞分选仪进行FACS。除以下所述的步骤1至3外,其余操作请遵循实验样本染色(第4节)和流式细胞术方案,以优化FACS工作流程:- 将待分选实验样品中的细胞浓度提高至 7 x 10⁶ 个/mL,以获得大量FAPs和MPs。
- 为补偿细胞浓度的显著增加,将待分选实验样品中的所有抗体浓度加倍。
- 通过以下步骤处理最终染色的细胞样本: 40 µM 在分选前立即将细胞筛网帽固定到5 mL聚苯乙烯管上,以减少细胞聚集并提高分选得率。
- 从细胞分选仪中直接收集单个活的鼠源FAPs和MPs,置于含有1 mL无菌、100%胎牛血清(FBS)的5 mL聚丙烯收集管中。分选完成前始终保持细胞置于冰上。
注意:若在异地进行流式细胞分选(FACS),需将所有分选后的细胞置于冰上,并使用固定且加盖的容器转运。 - 在无菌生物安全柜(BSC)中操作,用适当的生长培养基将分选细胞体积补至7 mL(例如,分选的FAPs使用FAP生长培养基(FAP GM),分选的MPs使用MP生长培养基(MP GM);培养基配方见补充文件),于500 × g离心 4 °C 7分钟,以尽可能去除残留的洗涤缓冲液。
- 将沉淀重悬于1 mL适当的生长培养基中,并接种至12孔板中,每孔含一片无菌的胶原包被12 mm玻璃盖玻片,用于后续免疫染色(见第6节)。
注意:若进行胶原蛋白的免疫细胞化学染色,请将分选后的细胞接种至12孔板中,每孔含有无菌且经层粘连蛋白包被的12 mm玻璃盖玻片,而非胶原蛋白包被的盖玻片。若需对刚分离的前体细胞进行免疫细胞化学实验,则将FAPs和MPs以每平方厘米15,000个细胞的密度接种2 并直接进入步骤6.1。为进行诱导前体细胞分化的长期培养,以每平方厘米5,000个细胞的密度接种FAPs2,以及每平方厘米7,500个细胞密度的MPs2. - 孵育细胞于 37 °C 和 5% CO2 在细胞培养箱中培养。培养72小时后,更换一半培养基;此后每2-4天完全更换培养基。
- 为诱导成肌细胞分化,在培养第9天将MP细胞培养物更换为MP分化(MD)培养基。为诱导脂肪细胞分化,在培养第10天将FAP细胞培养物更换为FAP成脂分化(AD)培养基。
- 为诱导成纤维分化,可在培养期间的不同时间点将FAPs转换至成纤维分化(FD)培养基,或在分离后直接接种于FD培养基中(步骤5.2.6)(参见 补充文件 (适用于所有培养基配方)
6. 培养的脂肪前体细胞和巨噬细胞的免疫细胞化学
- 为了验证细胞分选结果并证明FAPs和MPs培养物的纯度,使用细胞类型特异性标志物进行免疫染色,包括PDGFRα(FAPs标志物)、Pax-7(肌肉干细胞[卫星细胞]标志物)、成纤维细胞特异性蛋白(FSP-1,成纤维细胞标志物)、Perilipin-1(Plin-1,脂肪细胞标志物)、I型胶原(Col1a1,纤维化指标)、肌球蛋白重链(MHC,成熟肌细胞标志物)。
- 对于新鲜分选细胞的免疫染色,将12孔板在室温下以200 × g离心3分钟,以促进细胞贴附于盖玻片/孔壁。长期培养的细胞无需此步骤。移除培养基。
- 若进行FSP-1免疫染色,使用1 mL 100%甲醇(MeOH)在4 °C固定细胞2分钟。若检测PDGFRα、Plin-1、Pax7或Col1a1,则使用1 mL含4%多聚甲醛(PFA)的1×PBS在室温下固定细胞15分钟。MHC免疫染色可耐受上述任一种固定剂。
注意:对于甲醇固定的细胞,跳过步骤6.2,直接进行步骤6.3。
- 吸除4% PFA,并用1×PBS快速洗涤细胞2-4次。每孔加入1 mL含100 mM甘氨酸的1×PBS,室温孵育10分钟以灭活残留的PFA。吸除后用1×PBS洗涤1-2次。
注意:此阶段的细胞可在2 mL 1×PBS中保存,用保鲜膜包裹后置于4 °C,最长可保存7-10天。 - 洗涤后,每孔加入1 mL含0.1% Triton-X的1×PBS,室温孵育20分钟,以通透细胞膜。
- 用1-2 mL 1×PBS洗涤孔内细胞2-3次,然后每孔加入1 mL含3% BSA的1×PBS进行封闭,室温孵育1小时。
- 将稀释于含3% BSA的1×PBS中的80 µL一抗溶液(PDGFRα 1:100,Pax7 原液,FSP-1 1:50,Plin-1 1:400,Col1a1 1:250,MHC 3 µg/mL)滴加在固定于移动容器上的Parafilm膜上。使用无菌精细镊子小心将盖玻片从孔中取出,并倒置贴附于抗体液滴上。将盖玻片置于两张湿润的纸巾之间,用塑料膜覆盖容器以防止抗体溶液蒸发,4 °C过夜孵育。
注意:将盖玻片移出孔外染色比在孔内染色更节省抗体用量(约80 µL vs 最少500 µL)。 - 第二天,将盖玻片在室温下放置30分钟以恢复至室温。用镊子小心将其正置并放回对应的孔中(细胞面朝上),用1-2 mL 1×PBS洗涤2-3次,每次2分钟,尽可能去除未结合的一抗。
- 采用与一抗染色相同的方法,使用山羊抗兔Alexa Fluor 488二抗(1:400)检测FSP-1、Plin-1、Col1a1或PDGFRα,或使用山羊抗鼠Alexa Fluor 555二抗(1:300)检测MHC或Pax-7。室温避光孵育1小时。
- 将盖玻片放回孔中,加入Hoechst染液(1:10,000),室温孵育2-4分钟。再用1×PBS洗涤2-3次,每次2分钟,以去除多余的Hoechst染料。
- 使用抗荧光淬灭封片剂将盖玻片封固于载玻片上,室温避光过夜干燥。封片后的样本应于4 °C避光保存。
7. 培养的脂肪前体细胞(FAPs)和巨噬细胞(MPs)的油红O(ORO)染色
- 对未透化的细胞进行油红O(ORO)染色,因为细胞膜透化可能导致非脂肪生成型细胞类型的非特异性或不期望的染色。在开始染色前,配制油红O工作液(参见补充文件中的配方),并在室温下孵育20分钟。
- 20分钟后,使用0.2 µm滤器过滤溶液,以去除任何未溶解的聚集体。
- 吸去孔内培养基,每孔加入1 mL 10%中性缓冲福尔马林(10% NBF),室温孵育5分钟。
注意:细胞密度过高可能导致细胞从孔板或盖玻片上脱落。在吸液和加液时需小心操作。 - 吸去液体,每孔加入1 mL新鲜的10% NBF,室温孵育至少1小时。
注意:本步骤后可暂停实验流程,细胞可在10% NBF中过夜保存。 - 用1 mL 60%异丙醇快速洗涤孔板一次,吸去液体后让孔板完全干燥(约2分钟)。
- 每孔加入400 µL油红O工作液,室温孵育10分钟,注意避免将油红O溶液加到孔板壁上。
- 完全去除油红O溶液,并用dH2O快速洗涤孔板4次。
注意:若染色孔中含有盖玻片,可采用与步骤6.9中所述相同的方法进行封片。 - 使用明场显微镜对已封片的盖玻片或染色后的孔板进行成像。
8. 大鼠对侧及去神经支配腓肠肌切片的组织染色
- 苦味品红红(Picrosirius Red, PSR)
- 对5 µm厚的福尔马林固定石蜡包埋(FFPE)大鼠腓肠肌组织切片进行苦味品红红染色,方法如前所述40。
- 油红O(Oil Red O, ORO)
- 将5 µm厚的异戊烷冷冻大鼠腓肠肌组织切片用4%多聚甲醛(PFA)固定10分钟,随后在60%异丙醇中孵育1分钟。
- 用油红O工作液染色12分钟,在60%异丙醇中孵育1分钟,再用去离子水(dH2O)洗涤10分钟。使用水溶性封片介质将切片封于盖玻片上。
- Sca-1与层粘连蛋白组织荧光免疫组化(IHC)
- 对5 µm厚的异戊烷冷冻大鼠腓肠肌组织切片进行荧光免疫组化染色。
- 用1x PBS水化样本5分钟,4% PFA固定10分钟,随后在组织免疫荧光封闭液(见补充文件)中孵育90分钟。
- 加入以1x PBS + 0.05% Tween稀释的抗Sca-1一抗(1:500),4 °C孵育过夜。
- 第二天,用1x PBS + 0.05% Tween洗涤三次,每次5分钟,然后加入羊抗兔Alexa Fluor 555二抗(1:500),室温孵育1小时。
- 再次按前述方式洗涤,加入封闭液孵育1小时,随后加入以1x PBS + 0.05% Tween稀释的抗层粘连蛋白一抗(1:500),孵育1小时。
- 再次按前述方式洗涤,然后加入羊抗兔Alexa Fluor 488二抗(1:500)孵育1小时(用于检测层粘连蛋白)。
- 再次按前述方式洗涤,随后加入DAPI(1:10,000)孵育4分钟。洗涤后使用抗荧光淬灭封片剂将切片封于盖玻片上。
访问受限。请登录或开始试用以查看此内容。
结果
使用包含 Sca-1 和 VCAM-1 的新型抗体组合通过流式细胞术鉴定 FAP 和 MPs
在大鼠肌肉中鉴定 FAP 的设门策略基于小鼠的流式细胞术方案29,该方案通过设门排除 CD31(内皮细胞)和 CD45(造血细胞)阳性细胞(称为谱系细胞 [Lin]),并在谱系阴性(Lin-)群体中分析 FAP 标记物 Sca-1 和 MPs 标记物 ITGA7 的荧光信号。由于目前尚无商业化、荧光标记且经流式细胞术验证的适用于大鼠 Sca-1 和 ITGA7 的抗体,我们自行将 Sca-1 抗体与 APC 进行偶联,并采用替代策略来鉴定 MPs。最近研究表明,VCAM-1 可作为有效的大鼠 MPs 单阳性筛选标记33,且已有商品化的、针对大鼠特异性的、荧光标记并经流式细胞术验证的抗 VCAM-1 抗体,因此我们选择使用 VCAM-1 而非 ITGA7 来鉴定 MPs。
我们通过使用补偿微珠和来自健康大鼠腓肠肌的细胞悬液进行单一染色,验证了Sca-1:A...
访问受限。请登录或开始试用以查看此内容。
讨论
一种经过优化且已验证的大鼠肌肉FAPs分离方案,对于希望研究因生物学或技术原因无法在小鼠中实施的损伤模型的研究人员至关重要。例如,小鼠并非研究慢性局部损伤或神经退行性损伤(如长期失神经支配)的理想动物模型。从生物学角度看,小鼠寿命短、衰老迅速,使得难以准确区分失神经支配引起的肌肉继发性改变与衰老这一混杂因素的影响。从技术角度看,由于严重萎缩导致肌肉质量显著减少,不足以进行有效的流式细胞术分析。事实上,现有小鼠FAPs分离方案建议将健康肌肉组织合并处理,以提高分选FAPs的得率29。尽管这种方法克服了获取足够肌肉组织进行分析的技术障碍,但同时也限制了研究人员在特定肌肉水平上对FAPs进行评估的能力。由于不同肌群在肌纤维类型组成、血管化程度以及线粒体数量等方面本就存在固有差异47 ,例如,将多种不同肌肉合并进行流式细胞术分析会阻碍对特定肌肉FAPs的特征解析。相比之下,我们证明无论是健康的,还是长期失神经支配后发生萎缩和纤维化的的大鼠腓肠肌,均能提供足够量的起始材料用于有效的流式细胞术分析。此外,在健康样本中,多余的肌肉组织还可进一步细...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
我们感谢渥太华大学流式细胞术核心设施以及圣迈克尔医院Unity健康多伦多生物医学科学基南研究中心(KRC)在优化本论文所述流式细胞术/FACS方案方面提供的专业知识和指导。本研究由“通过设计实现医学进步”新理念2018基金(MbDNI-2018-01)资助,资助对象为JB。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 5 mL 聚丙烯圆底管 | Falcon | 352063 | |
| 带细胞筛帽的 5 mL 聚苯乙烯圆底管 | Falcon | 352235 | |
| 10 cm 细胞培养皿 | Sarstedt | 83.3902 | |
| 12 孔细胞培养板 | ThermoFisher | 130185 | |
| 12 mm 玻璃盖玻片,No.2 | VWR | 89015-724 | |
| 10 mL 注射器 | Beckton Dickenson | 302995 | |
| 15 mL 离心管 | FroggaBio | 91014 | |
| 20 号针头 | Beckton Dickenson | 305176 | |
| 25 mL 血清移液管 | Sarstedt | 86.1685.001 | |
| 40µm 细胞筛 | Fisher Scientific | 22363547 | |
| 50 mL 离心管 | FroggaBio | TB50 | |
| AbC 总抗体补偿微珠 | ThermoFisher | A10497 | |
| 氯化铵,试剂级 | Bioshop | AMC303.500 | |
| APC 偶联试剂盒,50–100µg | Biotium | 92307 | |
| Aquatex 水性封片介质 | Merck | 108562 | |
| Biolaminin 411 LN | Biolamina | LN411 | |
| 牛血清白蛋白 (BSA) | Bioshop | ALB001 | |
| 氯化钙 | Bioshop | CCL444.500 | |
| II 型胶原酶 | Gibco | 17101015 | |
| CountBright Plus 绝对计数微珠 | ThermoFisher | C36995 | |
| 地塞米松 | Millipore Sigma | D4902 | |
| Dispase | Gibco | 17105041 | |
| Dulbecco’s 改良 Eagle 培养基 (DMEM) (1X) | Gibco | 11995-065 | (+)4.5 g/L D-葡萄糖 (+)L-谷氨酰胺 (+)110 mg/L 丙酮酸钠 |
| EDTA | FisherScientific | S311 | |
| FACSClean 清洗液 | Beckton Dickenson | 340345 | |
| FACSDiva 软件 | Beckton Dickenson | -- | |
| FACSRinse 冲洗液 | Beckton Dickenson | 340346 | |
| 胎牛血清 | Sigma | F1051 | |
| 流式细胞术鞘液 | Beckton Dickenson | 342003 | |
| FlowJo 软件 | Beckton Dickenson | -- | |
| 荧光封片介质 | Dako | S302380-2 | |
| 山羊抗小鼠 Alexa Fluor 555 二抗 | Invitrogen | A21424 | |
| 山羊抗兔 Alexa Fluor 488 二抗 | Invitrogen | A11008 | |
| 山羊抗兔 Alexa Fluor 555 二抗 | Invitrogen | A21429 | |
| 山羊血清 | Gibco | 16210-064 | |
| Ham's F10 培养基 | ThermoFisher | 11550043 | (+) 酚红 (+) L-谷氨酰胺 (-) HEPES |
| Hank’s 平衡盐溶液 (HBSS) (1X) | Multicell | 311-513-CL | |
| 热灭活马血清 | Gibco | 26050-088 | |
| 血细胞计数板 | Reichert | N/A | |
| HEPES,滴定纯度不低于 99.5% | Sigma | H3375 | |
| 马血清 | ThermoFisher | 16050130 | |
| 人转化生长因子 β1 (hTGF-β1) | Cell Signaling | 8915LF | |
| Humulin R | Lilly | HI0210 | |
| IBMX | Millipore Sigma | I5879 | 又称 3-异丁基-1-甲基黄嘌呤 |
| 异丙醇 | Sigma | I9516 | 又称 2-丙醇 |
| 雌性 Lewis 大鼠 | Charles River Kingston | 004 (品系编号) | 使用体重 200–250 克 |
| LSRFortessa X-20 台式流式细胞仪 | Beckton Dickenson | -- | |
| 微量离心机 | Eppendorf | EP-5417R | |
| MoFlo XDP 细胞分选仪 | Beckman Coulter | -- | |
| 小鼠抗 CD31::FITC 抗体 | Abcam | ab33858 | 克隆号 TLD-3A12 |
| 小鼠抗 CD45::FITC 抗体 | Biolegend | 202205 | 克隆号 OX-1 |
| 小鼠抗 CD106::PE 抗体 | Biolegend | 200403 | 又称 VCAM-1 |
| 小鼠抗 MHC 抗体 | 发育研究杂交瘤库 (DSHB) | N/A | 又称 MF20 |
| 小鼠抗 Pax7 抗体 | 发育研究杂交瘤库 (DSHB) | N/A | |
| 中性缓冲福尔马林,10% | Sigma | HT501128 | |
| 油红 O | Millipore Sigma | O0625 | |
| PE-Cy7 偶联试剂盒 | Abcam | ab102903 | |
| 青霉素-链霉素 | Sigma | P4333 | |
| 磷酸盐缓冲液,pH 7.4 (1X) | Gibco | 10010-023 | (-)氯化钙 (-)氯化镁 |
| 碳酸氢钾,试剂级 | Bioshop | PBC401.250 | |
| 兔抗成纤维细胞特异性蛋白 1 (FSP-1) 抗体 | Invitrogen | MA5-32347 | FSP-1 又称 S100A4 |
| 兔抗整合素-a7 抗体 | Abcam | ab203254 | |
| 兔抗层粘连蛋白抗体 | Sigma | L9393 | |
| 兔抗 Perilipin-1 抗体 | Abcam | ab3526 | |
| 兔抗 Sca-1 抗体 | Millipore Sigma | AB4336 | |
| 兔重组抗 I 型胶原抗体 | Abcam | ab260043 | 又称 Col1a1 |
| 兔重组抗 PDGFR Alpha 抗体 | Abcam | ab203491 | |
| 重组人碱性成纤维细胞生长因子 (FGF-basic) | Gibco | PHG0266 | |
| 叠氮化钠 | Sigma | S2002 | |
| 吐温-100 (Triton-X-100) | Fisher Scientific | BP151 | |
| 曲格列酮 | Millipore Sigma | T2573 | |
| 吐温-20 (Tween-20) | Bioshop | TWN510 |
参考文献
- Joe, A. W. B., et al. Muscle injury activates resident fibro/adipogenic progenitors that facilitate myogenesis. Nature Cell Biology. 12, 153-163 (2010).
- Wosczyna, M. N., Biswas, A. A., Cogswell, C. A., Goldhamer, D. J. Multipotent progenitors resident in the skeletal muscle interstitium exhibit robust BMP-dependent osteogenic activity and mediate heterotopic ossification. Journal of Bone and Mineral Research. 27 (5), 1004-1017 (2012).
- Uezumi, A., Ikemoto-Uezumi, M., Tsuchida, K. Roles of nonmyogenic mesenchymal progenitors in pathogenesis and regeneration of skeletal muscle. Frontiers in Physiology. 5, 1-11 (2014).
- Biswas, A. A., Goldhamer, D. J. FACS fractionation and differentiation of skeletal-muscle resident multipotent Tie2+ progenitors. Methods in Molecular Biology. 1460, 255-267 (2016).
- Biferali, B., Proietti, D., Mozzetta, C., Madaro, L. Fibro-adipogenic progenitors cross-talk in skeletal muscle: The social network. Frontiers in Physiology. 10, 1-10 (2019).
- Wosczyna, M. N., Rando, T. A. A muscle stem cell support group: Coordinated cellular responses in muscle regeneration. Developmental Cell. 46 (2), 135-143 (2018).
- Uezumi, A., Fukada, S. I., Yamamoto, N., Takeda, S., Tsuchida, K. Mesenchymal progenitors distinct from satellite cells contribute to ectopic fat cell formation in skeletal muscle. Nature Cell Biology. 12 (2), 143-152 (2010).
- Uezumi, A., et al. Fibrosis and adipogenesis originate from a common mesenchymal progenitor in skeletal muscle. Journal of Cell Science. 124 (21), 3654-3664 (2011).
- Lemos, D. R., et al. Nilotinib reduces muscle fibrosis in chronic muscle injury by promoting TNF-mediated apoptosis of fibro/adipogenic progenitors. Nature Medicine. 21 (7), 786-794 (2015).
- Malecova, B., et al. Dynamics of cellular states of fibro-adipogenic progenitors during myogenesis and muscular dystrophy. Nature Communications. 9 (1), (2018).
- Madaro, L., et al. Denervation-activated STAT3-IL-6 signalling in fibro-adipogenic progenitors promotes myofibres atrophy and fibrosis. Nature Cell Biology. 20 (8), 917-927 (2018).
- Heredia, J. E., et al. Type 2 innate signals stimulate fibro/adipogenic progenitors to facilitate muscle regeneration. Cell. 153 (2), 376-388 (2013).
- Fiore, D., et al. Pharmacological blockage of fibro/adipogenic progenitor expansion and suppression of regenerative fibrogenesis is associated with impaired skeletal muscle regeneration. Stem Cell Research. 17 (1), 161-169 (2016).
- Kang, X., et al. Interleukin-15 facilitates muscle regeneration through modulation of fibro/adipogenic progenitors. Cell Communication and Signaling. 16 (1), 1-11 (2018).
- Lovering, R. M., Roche, J. A., Goodall, M. H., Clark, B. B., Mcmillan, A. An in vivo rodent model of contraction-induced injury and non-invasive monitoring of recovery. Journal of Visualized Experiments. (51), e2782(2011).
- Iyer, S. R., Valencia, A. P., Hernández-Ochoa, E. O., Lovering, R. M. In vivo assessment of muscle contractility in animal studies. Methods in Molecular Biology. 1460, 293-307 (2016).
- Mintz, E. L., Passipieri, J. A., Lovell, D. Y., Christ, G. J. Applications of in vivo functional testing of the rat tibialis anterior for evaluating tissue engineered skeletal muscle repair. Journal of Visualized Experiments. (116), e54487(2016).
- Hakim, C. H., Wasala, N. B., Duan, D. Evaluation of muscle function of the extensor digitorum longus muscle ex vivo and tibialis anterior muscle in situ in mice. Journal of Visualized Experiments. (72), e50183(2013).
- Moorwood, C., Liu, M., Tian, Z., Barton, E. R. Isometric and eccentric force generation assessment of skeletal muscles isolated from murine models of muscular dystrophies. Journal of Visualized Experiments. (71), e50036(2013).
- Gerlinger-Romero, F., et al. Non-invasive assessment of dorsiflexor muscle function in mice. Journal of Visualized Experiments. (143), e58696(2019).
- Iohom, G., et al. Long-term evaluation of motor function following intraneural injection of ropivacaine using walking track analysis in rats. British Journal of Anaesthesia. 94 (4), 524-529 (2005).
- Brown, C. J., et al. Self-evaluation of walking-track measurement using a sciatic function index. Microsurgery. 10 (3), 226-235 (1989).
- Bozkurt, A., et al. CatWalk gait analysis in assessment of functional recovery after sciatic nerve injury. Journal of Neuroscience Methods. 173 (1), 91-98 (2008).
- Deumens, R., Jaken, R. J. P., Marcus, M. A. E., Joosten, E. A. J. The CatWalk gait analysis in assessment of both dynamic and static gait changes after adult rat sciatic nerve resection. Journal of Neuroscience Methods. 164 (1), 120-130 (2007).
- McKinnon, K. M. Flow cytometry: An overview. Current Protocols in Immunology. 2018, 1-11 (2018).
- Jensen, A. R., et al. Neer Award 2018: Platelet-derived growth factor receptor α co-expression typifies a subset of platelet-derived growth factor receptor β-positive progenitor cells that contribute to fatty degeneration and fibrosis of the murine rotator cuff. Journal of Shoulder and Elbow Surgery. 27 (7), 1149-1161 (2018).
- Mosich, G. M., et al. Non-fibro-adipogenic pericytes from human embryonic stem cells attenuate degeneration of the chronically injured mouse muscle. JCI Insight. 4 (24), (2019).
- Lee, D., et al. HMGB2 is a novel adipogenic factor that regulates ectopic fat infiltration in skeletal muscles. Scientific Reports. 8 (1), 1-12 (2018).
- Low, M., Eisner, C., Rossi, F. Fibro/Adipogenic Progenitors (FAPs): Isolation by FACS and Culture. Muscle Stem Cells: Methods and Protocols. , 179-189 (2017).
- Giuliani, G., et al. SCA-1 micro-heterogeneity in the fate decision of dystrophic fibro/adipogenic progenitors. Cell Death and Disease. 12 (1), 1-24 (2021).
- Wosczyna, M. N., et al. Mesenchymal stromal cells are required for regeneration and homeostatic maintenance of skeletal muscle. Cell Reports. 27 (7), 2029-2035 (2019).
- Upadhyay, G. Emerging role of lymphocyte antigen-6 family of genes in cancer and immune cells. Frontiers in Immunology. 10, 819(2019).
- Boscolo Sesillo, F., Wong, M., Cortez, A., Alperin, M. Isolation of muscle stem cells from rat skeletal muscles. Stem Cell Research. 43, 101684(2020).
- Ciaramitaro, P., et al. Traumatic peripheral nerve injuries: Epidemiological findings, neuropathic pain and quality of life in 158 patients. Journal of the Peripheral Nervous System. 15 (2), 120-127 (2010).
- Noble, J., Munro, C. A., Prasad, V. S. S. V., Midha, R. Analysis of upper and lower extremity peripheral nerve injuries in a population of patients with multiple injuries. Journal of Trauma and Acute Care Surgery. 45 (1), (1998).
- Malik, S. Traumatic peripheral neuropraxias in neonates: A case series. Journal of Clinical and Diagnostic Research. 8 (10), 10-12 (2014).
- Smith, B. W., Daunter, A. K., Yang, L. J. S., Wilson, T. J. An update on the management of neonatal brachial plexus palsy-replacing old paradigms a review. JAMA Pediatrics. 172 (6), 585-591 (2018).
- Rebolledo, D. L., et al. Denervation-induced skeletal muscle fibrosis is mediated by CTGF/CCN2 independently of TGF-β. Matrix Biology. 82, 20-37 (2019).
- Walls, P. L. L., McRae, O., Natarajan, V., Johnson, C., Antoniou, C., Bird, J. C. Quantifying the potential for bursting bubbles to damage suspended cells. Scientific Reports. 7 (1), 1-9 (2017).
- Yuen, D. A., et al. Culture-modified bone marrow cells attenuate cardiac and renal injury in a chronic kidney disease rat model via a novel antifibrotic mechanism. PLOS One. 5 (3), 9543(2010).
- Fukada, S. I. The roles of muscle stem cells in muscle injury, atrophy and hypertrophy. Journal of Biochemistry. 163 (5), 353-358 (2018).
- Itabe, H., Yamaguchi, T., Nimura, S., Sasabe, N. Perilipins: A diversity of intracellular lipid droplet proteins. Lipids in Health and Disease. 16 (1), 1-11 (2017).
- Chapman, M. A., Mukund, K., Subramaniam, S., Brenner, D., Lieber, R. L. Three distinct cell populations express extracellular matrix proteins and increase in number during skeletal muscle fibrosis. American Journal of Physiology - Cell Physiology. 312 (2), 131-143 (2016).
- Hillege, M., Galli Caro, R., Offringa, C., de Wit, G., Jaspers, R., Hoogaars, W. TGF-β regulates Collagen Type I expression in myoblasts and myotubes via transient Ctgf and Fgf-2 Expression. Cells. 9 (2), 375(2020).
- Kafadar, K. A., Yi, L., Ahmad, Y., So, L., Rossi, F., Pavlath, G. K. Sca-1 expression is required for efficient remodeling of the extracellular matrix during skeletal muscle regeneration. Developmental Biology. 326 (1), 47-59 (2009).
- Batt, J. A. E., Bain, J. R. Tibial nerve transection - a standardized model for denervation-induced skeletal muscle atrophy in mice. Journal of Visualized Experiments. (81), e50657(2013).
- Carlson, B. M. The biology of long-term denervated skeletal muscle. European Journal of Translational Myology. 24 (1), (2014).
- Kennedy, E., et al. Embryonic rat vascular smooth muscle cells revisited - A model for neonatal, neointimal SMC or differentiated vascular stem cells. Vascular Cell. 6 (1), 1-13 (2014).
- Pannérec, A., Formicola, L., Besson, V., Marazzi, G., Sassoon, D. A. Defining skeletal muscle resident progenitors and their cell fate potentials. Development (Cambridge). 140 (14), 2879-2891 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
