我们介绍一种专门用于在成年黑腹果蝇(Drosophila)行为过程中及其对刺激响应时对其全脑进行成像的方法。该方法通过固定果蝇头部,使其大脑获得完整的光学通路,同时果蝇仍可活动其足部,其触角、喙端以及眼睛能够接收感觉刺激。
本文内容
摘要
摘要
我们介绍一种专门用于成像整个 果蝇 在行走等持续行为过程中对大脑进行成像。通过优化头部固定和解剖操作,以最大程度减少对行为的干扰。首先使用一种可最大限度减少运动阻碍的固定装置实现该目标。将果蝇头部后端以特定角度粘附于该装置上,既保证对全脑的光学通路,又保留果蝇行走、梳理、嗅觉、味觉和视觉的能力。随后解剖头部后端,清除光路中的组织以及引起头部运动伪迹的肌肉。此后可在特定行为(如行走或梳理)过程中,或在不同刺激条件下,利用钙离子或电压指示剂等方法对果蝇大脑进行成像,记录脑活动。一旦掌握这一具有挑战性的解剖技术(需大量练习),即可利用该方法获取将全脑活动与行为及刺激响应相关联的丰富数据集。
引言
利用多种技术对大脑活动进行成像,已加深了人们对大脑功能的理解。在人类中,脑成像技术存在重要局限性:虽然功能性磁共振成像(fMRI)能够提供远低于单个神经元分辨率的时空分辨率,但诸如脑电图(EEG)等快速成像技术仅能间接且部分地获取大脑信息1。在体型足够大的动物模型(如啮齿类动物)中,使用头戴式显微镜记录荧光活性传感器(例如 GCaMP)的信号,可在动物于环境中自由活动时观察其脑部活动2。然而,这些技术目前仅能覆盖大脑的一小部分区域。对于头部固定的动物,成像范围更广,但覆盖仍不完整(例如仅限于大脑皮层表面3)。只有在斑马鱼幼虫、C. elegans 和 Drosophila 等小型动物中,才可能以达到或接近单神经元水平的时间和空间分辨率实现全脑成像4。
D. melanogaster 具有特别广阔的应用前景,因为它长期以来一直被用作遗传学模式生物5,并且已开发出强大的遗传学工具6。结合近年来基于电子显微镜构建的大规模解剖学神经网络7,果蝇为研究大规模神经网络上产生的复杂脑动态提供了独特的机会8。尽管果蝇的角质层不透明,必须去除后才能对脑组织进行成像,但自2002年首次开展活体功能成像研究以来9,此类技术已变得越来越普遍,且已有多种实验方案发表。然而,这些方法要么需要将果蝇头部与身体分离10,从而严重限制果蝇的运动能力及对刺激的反应能力11,12,13,14,15;要么仅能对脑部一小部分区域进行成像9,16,25,26,27,17,18,19,20,21,22,23,24。为了补充这些虽强大但仍存在局限的方法,我们近期开发了一种可在果蝇执行行为及响应多种刺激过程中实现全脑成像的制备技术28。
在此研究基础上,我们介绍一种专门开发的方法,用于在果蝇执行半自然行为(例如行走和梳理)并响应感觉刺激的同时,对其全脑进行成像。该方法采用一种特制的观察固定装置,可从背侧后方暴露整个大脑,同时保持触角和喙的完整,并允许果蝇活动其足部以实现行走(例如在气浮球上行走)。我们已优化了头部后部的解剖步骤,以提高操作速度和可重复性,并最大程度减少对果蝇存活率和运动能力的影响。
方案
所有步骤均在体视显微镜下进行。
1. 准备样品台
- 使用3D打印机打印支架“FlyholderVJove.stl”(见补充材料),或通过在线服务进行打印(图1A)。SLS(尼龙PA12)和多射流熔融(PA12)均适用。
- 制作头部槽。
- 将一块粘性胶带平铺于平整表面上,裁剪成约5 mm × 1 cm的矩形。使用固定平行刀片(两片粘合在一起的手术刀片)在胶带较长边的中央切割出颈部槽(约400 × 400 µm),以确保每个支架的槽宽一致(图1B)。
- 将胶带覆盖在支架底部较平坦一侧的孔洞上(见图1C和图1D)。可用镊子在孔洞周围约500 µm处向下按压胶带使其变形,进一步减少对后续果蝇活动的阻碍。
- 从上方用黑色指甲油覆盖胶带和支架,防止缓冲液泄漏。黑色指甲油还可保护果蝇眼睛免受显微镜激发光的影响。使用支架前,需让指甲油至少干燥一小时。
- 指甲油干燥后,用卷起的纸巾吸取约1 µL润滑脂涂抹于头部槽内,确保胶水不会润湿果蝇头部背面(图2A)。注意不要将润滑脂涂到槽外,以免影响胶水粘附。
- 制作身体槽(图2B)。
- 可选:可提前准备用于固定果蝇身体位置的胶带(见下文)。参照图2B (顶部)的设计,将约2 cm宽的胶带从中间切开,并裁出1.5 mm宽的条状切口。再切出0.3 mm深的肩部和身体槽。确保其能适配支架。
注意:果蝇体型存在个体差异(尤其是性别、年龄、基因型或物种不同),可能需要调整胶带设计。若果蝇头部容易偏离中心,可在颈部槽上方临时加贴一个V形胶带(图3)。同时,在颈部槽内及V形胶带上涂抹数微升润滑脂。
- 可选:可提前准备用于固定果蝇身体位置的胶带(见下文)。参照图2B (顶部)的设计,将约2 cm宽的胶带从中间切开,并裁出1.5 mm宽的条状切口。再切出0.3 mm深的肩部和身体槽。确保其能适配支架。
2. 放置果蝇
注意:1至4日龄的雌性果蝇最为理想,因为雌性果蝇头部较大,比雄性更易于解剖,且年轻果蝇的体壁较柔软。为了提高果蝇在行走实验中的活动性,可将实验安排在昼夜节律活动较高的时段(ZT0或ZT11)进行,使用含葡萄糖的生理盐水(例如103 mM NaCl、3 mM KCl、5 mM TES、8 mM 海藻糖 2 H2O、10 mM 葡萄糖、26 mM NaHCO3、1 mM NaH2PO4、2.5 mM CaCl2·2 H2O、4 mM MgCl2·6 H2O),在仅提供水的环境中饥饿果蝇长达24小时,以及在实验期间将环境温度升高至约28 °C。至少提前一天 剪除翅膀也有助于减少飞行尝试,从而增加行走行为的频率7,29,30。
- 将培养皿或移液枪头盒盖内装满冰,上面放置一张实验用纸巾,然后将固定装置倒置放在纸巾上。
- 用吸管将果蝇从培养瓶中吸入并吹至冰上,使其在低温下麻痹(注意确保冰未融化,以免果蝇被淹)。
- 当果蝇停止活动后,使用钝头镊子将其滑入固定装置中,使颈部位于槽口内(可夹住翅膀基部固定),如图4(左)所示。果蝇的双眼应相对于槽口两侧处于对称位置(图4,中)。如有需要,可在头部顶端涂抹1 µL石蜡,防止下一步使用的胶水蔓延至头后部,之后可将其清除。
- 用纸巾和少量冰覆盖果蝇身体,确保其在此步骤及下一步操作过程中不会移动(图4,右)。另一种防止果蝇腿部触及头部的方法是在头部下方贴一小段胶带(见图6)。
3. 固定头部
- 从完全后侧视角(围绕外侧轴,见图5A)将头部置于约20°角的位置。此角度可在减小成像深度与保持前腿自由活动及最小化颈部拉伸之间取得平衡。
- 使用卷起的纸巾(图5B),在头部周围涂抹紫外光固化胶,注意避免污染感兴趣的感官区域(触角、喙和/或眼睛)。进行味觉实验时,将喙拉出,并在其基部涂抹胶水以防止移动。若不进行味觉实验,则最好将喙推入头部并用胶水固定,以最大限度减少其移动(图6)。
- 用紫外光照射胶水5秒使其固化。用卷起的纸巾小心清洁头部周围区域,去除残留的液态胶水,以防其粘附到腿部和/或污染感官区域。
注意:如有需要,可用砂纸打磨胶带表面以增强胶水附着力。 - 使用一条细胶带或卷起的纸巾将腿部移至前方(如果尚未在前方),以避免下一步操作中损伤腿部。
4. 摆放身体位置
注意:此步骤需快速完成;应在果蝇从麻醉状态恢复之前完成。
- 取出冰盒并将支架翻转。用纸巾吸去果蝇周围的水分。
- 将步骤1中制备的体部固定胶带覆盖在孔洞上,轻轻将果蝇身体压下(图7)。注意不要过度拉伸颈部。
5. 封闭孔洞
- 用胶带封住所有剩余的大孔。
- 在头部背面和颈部区域涂抹约 1 µL 的油脂,以确保胶水不会润湿这些区域。
- 用卷好的纸巾将紫外光固化胶涂抹在胶带周围、上方以及胸部(中胸背板上部)表面,以固定样品。用紫外光照射约 5 秒使胶水固化。
注意:应尽量减少紫外光的使用,因为它可能严重影响果蝇的健康。 - 用实验室纸巾小心擦去多余的油脂和未固化的胶水。
- 在头部上方加入约 1 mL 生理盐水。用镊子将气泡推至一侧。将盖玻片盖在盐水上并翻转固定装置,检查正面是否有渗漏。若发现渗漏,应移除盐水并修补漏洞(可通过添加更多胶水或油脂)。
注意:如有需要,此时可暂停操作。可为果蝇提供一小块纸巾或泡沫塑料球供其行走,以防止挣扎并使其镇静。
6. 解剖头部
注意:以下步骤请使用磨尖的镊子。必须使用非常精细的镊子,因为钝的镊子会增加打开头部角质层的难度,并可能导致果蝇头部或脑组织的额外损伤。此步骤中强放大倍数会有所帮助。为此,可将双目显微镜的目镜更换为30倍目镜。
- 在颈部两侧中央深色角质层三角区的基部各做两个切口(参见图8A中的十字标记)。
- 沿深色三角区周围切割,并移除该部分角质层。
- 此时应可见脑部肌肉16和食道穿过的孔洞,且该部位呈现节律性运动(视频1展示了肌肉荧光标记果蝇中的这种节律性运动)。小心捏住该区域顶端,切断肌肉16,注意避免刺破食道。若脑部节律性运动停止,表明肌肉16可能已被移除;但有时节律运动可能暂时暂停,随后重新开始。因此,需密切观察节律性运动,必要时重复此步骤。
- 将剩余角质层切成小块并小心移除。注意避免过度牵拉角质层。建议使用镊子像剪刀一样操作,逐片剪除组织。可从之前已移除深色三角区的中线边缘开始,逐步向两侧推进。
注意:若存在脂肪体,可用角质层碎片轻轻刮除。 - 用镊子夹住气囊,缓慢而稳定地逐个将其拉出并移除。
结果
上述制备方法可用于在显微镜下观察完整的大脑,适用于大规模三维成像,例如传统的双光子显微镜或共聚焦显微镜,也适用于更快的成像技术,如光片显微镜31及其他结构照明显微镜技术(综述见32),或光场显微镜28。
在观察行为并保持感觉器官功能完整的同时实现全脑观测,有助于回答多个科学问题。
首先,果蝇在静息状态、行为过程中以及对刺激产生反应时,其大脑的整体活动是怎样的?作为示例,我们展示了使用光场显微镜获得的数据,这些数据揭示了果蝇在对刺激和行为反应期间的大脑激活情况。例如,在视频 2中,钙探针在所有神经元中表达(nsyb-GAL4 与 UAS-syt-GCaMP6s(左侧)或 UAS-GCaMP6M(右侧)),并施加了一阵气味刺激。请注意,该实验装置能够全面观察大脑在对刺激反应期间的活动情况。利用黑腹果蝇(Drosophila)强大的遗传工具,可将这些传感器的表达限制在特定的神经元亚型中。在视频 3中,我们将钙传感器的表达限制在多巴胺能和5-羟色胺能神经元中(TH-GAL4、DDC-GAL4 与 UAS-GCaMP6M)。请注意,随着果蝇行走行为的发生,整个大脑呈现出强烈的同步性活动,这得益于在行为过程中对全脑活动的实时观测。除了钙信号外,其他物理或化学信号也可通过成像技术进行观测(例如,利用电压传感器28,33、代谢产物传感器34,35或特定神经调质传感器36)。
为了更具体地理解脑活动的作用,我们可以探究哪些脑区参与了特定行为、对刺激的反应或自发的活动模式。这些数据确实可用作无偏筛选,通过主成分分析和独立成分分析等技术提取功能区域。图9A以不同颜色展示了不同的功能区域。功能区域的形态和定位可用于与解剖模板比对,从而识别对应的脑区,某些情况下还可识别神经元类型。此外,一旦与解剖模板对齐,即可在解剖学定义的脑区内对荧光信号值进行平均,以进行定量分析(见图9B)。例如,将分层高斯模型应用于图9B中的数据表明,在行走期间这些区域的活动更强(ΔF/F中位数为0.029,95%可信区间=[0.017, 0.041]),而在理毛期间则无显著活动(ΔF/F中位数 = -0.0049,95%可信区间=[-0.016, 0.0059])。
该制备方法能够同时记录不同功能区域的活动,从而加深对功能网络动力学特性的理解。这一点非常重要,因为迄今为止研究过的所有大脑中,脑区之间均存在高度的反馈性连接,且越来越多的研究表明,即使是感觉区域也会对动物的行为状态产生响应。可研究的方面包括功能图谱特性(例如模块化结构)以及可用动力系统模型拟合的时空活动模式(实例参见8)。
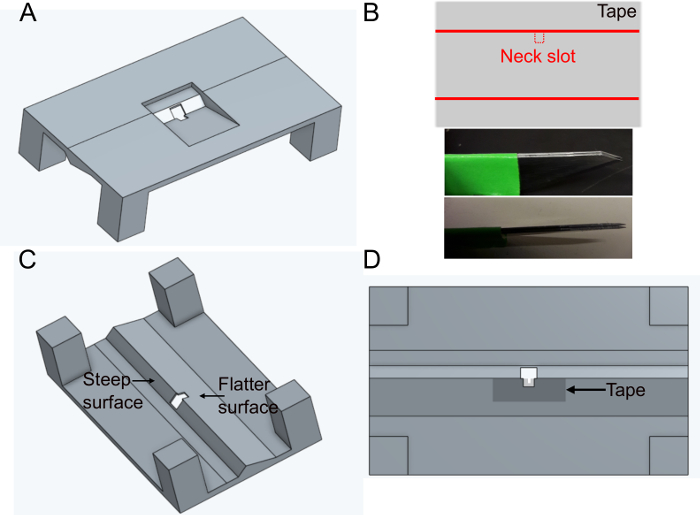
图1:准备样品 holder(步骤1)。A) holder 设计(俯视图)。B) 颈部狭缝的制备。上图:胶带设计,下图:用于切割颈部狭缝的平行刀片。C) 从底部观察 holder 的视图。D) 底部视图,指示颈部狭缝胶带的粘贴位置。请点击此处查看此图的放大版本。
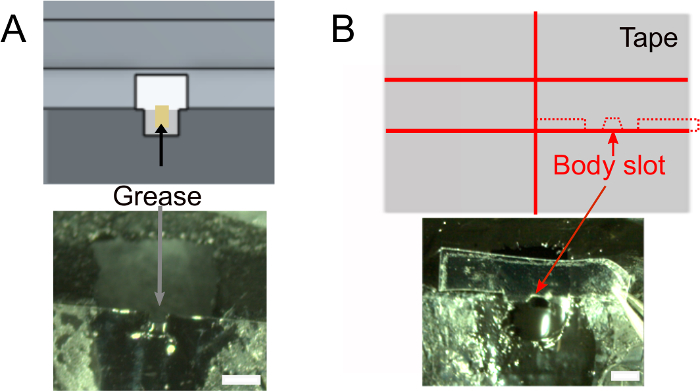
图 2:进一步的准备工作(步骤 1)。A) 在颈部槽中加入润滑脂,以防止胶水覆盖头部背面,并防止生理盐水泄漏。比例尺:1 mm。B) 上图:用于下压身体的胶带形状;下图:确保胶带与固定装置匹配。请点击此处查看该图的放大版本。
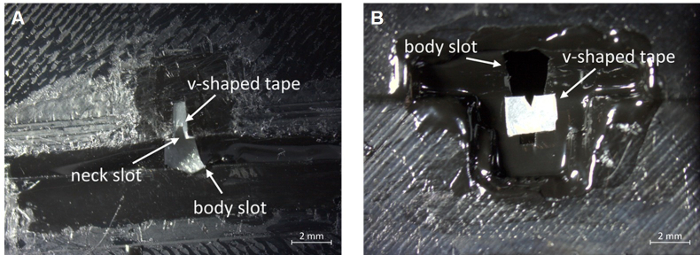
图3:放置V形胶带以辅助居中。(A)底视图。(B)顶视图。比例尺,2 mm。请点击此处查看此图的放大版本。
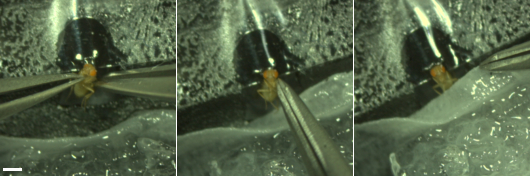
图 4:放置果蝇(步骤 2)。左侧,使用两把钝头镊子将果蝇身体放置,使其颈部位于颈部槽内。中间,调整头部位置,使眼睛分别位于槽边缘的两侧,果蝇头部保持正直。右侧,用覆盖冰块的组织将果蝇固定,防止其移动。比例尺为 1 mm。请点击此处查看该图的放大版本。
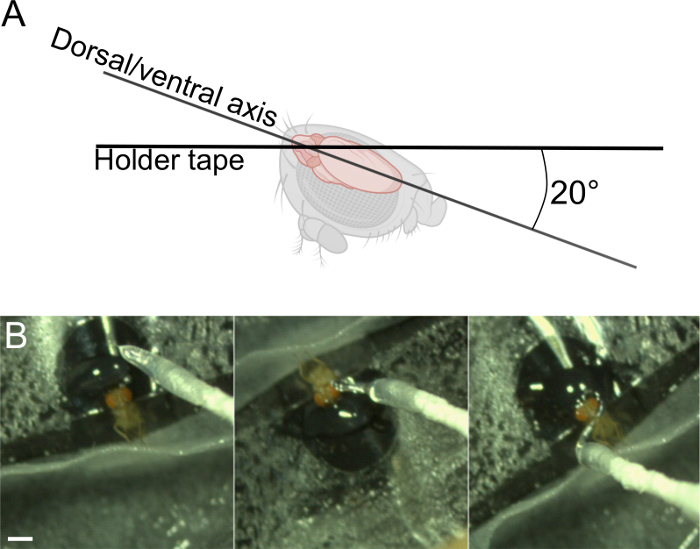
图 5:固定头部(步骤 3)。A) 头部的理想角度。B) 在头部周围添加紫外胶,避免覆盖感兴趣的感觉区域。比例尺,1 mm。请点击此处查看此图的放大版本。
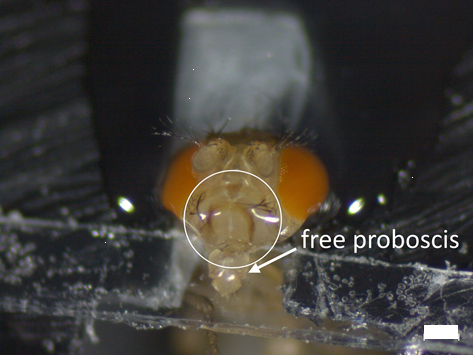
图6:在步骤3中,可使喙器的尖端和触角避开胶水。 白色圆圈标示了紫外胶水涂抹的区域。箭头指示在嗅觉和味觉实验中需留出、不接触胶水的部分。注意可选的胶带可防止腿部接触胶水区域。比例尺为200 µm。请点击此处查看该图的放大版本。
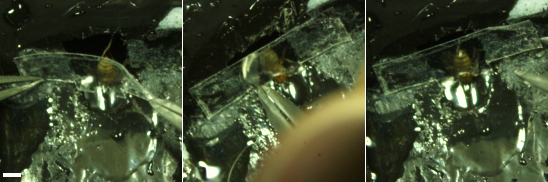
图7:粘贴背部胶带(步骤4.2)。在步骤1中制备的胶带(见图2左侧)用于固定昆虫身体并覆盖固定器上的大孔。比例尺,1 mm。请点击此处查看该图的放大版本。

图8:解剖步骤(步骤6)。A-B) 在深色三角区域基部两侧(交叉标记处)进行剪切,并移除该部分体壁 C)。D) 和 E) 移除肌肉16,然后轻柔地去除其余体壁 F)、气囊 G) 以及肌肉。H) 已解剖的头部。比例尺:200 µm。请点击此处查看此图的放大版本。
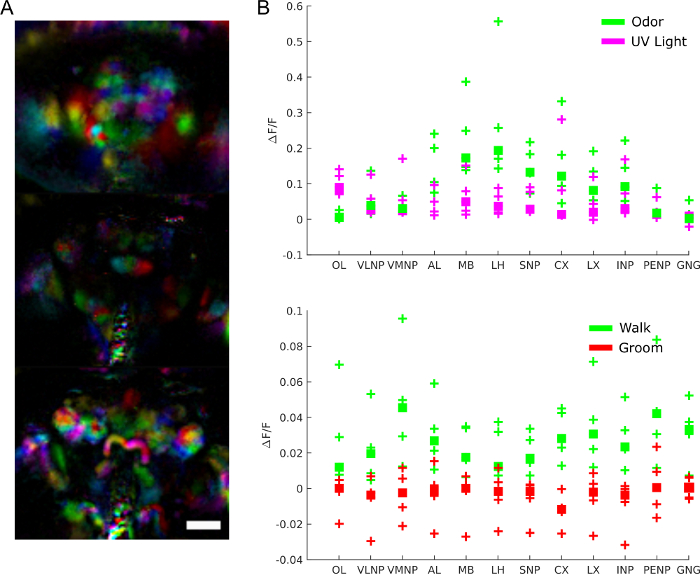
图9:代表性结果。A) 利用PCA和ICA方法提取的功能性脑区(方法见文献28),图像来自在光场显微镜下(25倍,NA=0.95,配备匹配的f/12微透镜阵列)对全身性表达GCaMP6的果蝇进行的成像。比例尺:100 µm。B) 大脑主要区域在对刺激和行为反应期间的平均钙活动(改编自文献28)。请点击此处查看该图的放大版本。
视频 1:肌肉 16 的运动(步骤 6.3)。 在肌肉中表达了 GFP。请注意从气管正上方的孔洞产生的泵动运动。请点击此处下载该视频。
视频 2:两种不同制备条件下果蝇对气味响应时的全神经元钙活动。 将意大利香醋喷向果蝇。使用光场显微镜(25倍,数值孔径 NA=0.95,配备匹配的 f/12 微透镜阵列)对全神经元钙活动(nsyb-GAL4 驱动子,左侧为 UAS-syt-GCaMP6s,右侧为 UAS-GCaMP6M)进行成像。光场图像随后按照参考文献28,37中所述方法进行重构。请点击此处下载该视频。
视频 3:行为过程中特定神经元类型的钙活动。 在多巴胺能和5-羟色胺能神经元中表达 GCaMP6(使用 TH-GAL4 和 DDC-GAL4)。结合果蝇遗传工具,该制备方法可在行走期间观察到多个区域神经活动显著增强。 请点击此处下载该视频。
补充材料。 请点击此处下载该文件。
讨论
Drosophila 是少数几种能够在执行复杂行为时对整个大脑进行成像的成年动物之一。本文介绍了一种制备果蝇并暴露其全脑以实现持续全脑活动成像的方法。需注意以下几个关键点。
解剖果蝇(D. melanogaster)等小型动物具有较大挑战性,因此该方法需要大量练习和耐心才能掌握。然而,经过训练后,整个操作可在30分钟内完成,并能获得可重复的实验结果。
我们提出的方法还存在一些局限性。首先,将果蝇头部从其自然位置倾斜会导致颈部拉伸,可能对结缔组织、神经或肌肉造成损伤。其次,尽管腹侧亚食道区(SEZ)在光学上可及,但它位于半透明的食道下方,会降低该区域的成像强度和分辨率。最后,尽管固定装置在大多数方向上无法被触及,果蝇有时仍能感知其存在,并试图通过推挤装置来逃脱。
尽管存在这些局限性,但在动物与复杂、自然环境相互作用和导航时,通过行为过程中和对刺激反应的全脑成像所获得的综合数据,将有助于在全网络水平上解析大脑功能。
披露
作者无任何利益冲突需要披露。
致谢
感谢Heidi Miller-Mommerskamp提供的技术帮助,以及Iveth Melissa Guatibonza Arevalo对稿件提出的宝贵意见。本实验方案的初始版本由Ralph Greenspan实验室开发。本研究工作得到了德国研究基金会(DFG)的支持,特别是IGK获得的FOR2705(TP3)项目资助,以及SA获得的西蒙斯基金会(Aimon – 414701)和Kavli脑与心智研究所(资助编号#2017-954)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| #5 镊子 | FST by DUMONT | 11252-30 | 直头尖端 0.05 x 0.02 mm,Dumoxel,11 cm 长 |
| #55 镊子 | FST by DUMONT | 11255-20 | 直头尖端 0.05 x 0.02 mm,Inox,11 cm 长 |
| 30倍目镜 | yegren | WF30-9-30-H | WF30X/9 高眼点广视野目镜光学镜片,适用于体视显微镜或生物显微镜,30X,30 mm,无刻度 |
| AHOME/UV 手电筒 | 深圳市亿佳万科技有限公司 | B07V2W9543 (ASIN) | 365 nm |
| Fotoplast 凝胶/UV 胶 | Dreve Otoplastik GmbH | 44791 | GHS07, GHS08 |
| 亮面透明胶带 | 3M Scotch | ||
| KIMTECH Science/精密擦拭纸 | Kimberly-Clark Professional | 7552 | 11 x 21 cm |
| KL 1500 LCD/显微镜光源 | Schott | ||
| Leica MS5 显微镜 | Leica | WF30X/9 | |
| 指甲油 | Opi Products Inc., N. Hollywood | 6306585338 | 黑色 |
| 生理盐水:Hepes NaH2PO4 NaHCO3 MgCl2 CaCl2 NaCl KCl 蔗糖 海藻糖 | Sigma Aldrich | ||
| 手术刀 | Werner Dorsch GmbH | 78 621; B07SXCXWFS (ASIN) | 软手柄 |
| 真空润滑脂 | Dow corning | 0020080 /100 gr | Moly Kote 111 化合物润滑脂 阀门密封润滑脂 100 g |
参考文献
- Papanicolaou, A. C. The Oxford Handbook of Functional Brain Imaging in Neuropsychology and Cognitive Neurosciences. , Oxford University Press. (2017).
- Zong, W., et al. Fast high-resolution miniature two-photon microscopy for brain imaging in freely behaving mice. Nature Methods. 14, 713-719 (2017).
- Musall, S., Kaufman, M. T., Juavinett, A. L., Gluf, S., Churchland, A. K. Single-trial neural dynamics are dominated by richly varied movements. Nature Neuroscience. 22, 1677-1686 (2019).
- Ahrens, M. B., Engert, F. Large-scale imaging in small brains. Current Opinion in Neurobiology. 32, 78-86 (2015).
- Sokolowski, M. B. Drosophila: Genetics meets behaviour. Nature Reviews Genetics. 2, 879-890 (2001).
- Venken, K. J. T., Bellen, H. J. Emerging technologies for gene manipulation in Drosophila melanogaster. Nature Reviews Genetics. 6, 167-178 (2005).
- Zheng, Z., et al. A Complete Electron Microscopy Volume of the Brain of Adult Drosophila melanogaster. Cell. 174, 730-743 (2018).
- Aimon, S., Grunwald Kadow, I. C. Studying complex brain dynamics using Drosophila. Journal of Neurogenetics. 34, 171-177 (2020).
- Fiala, A., et al. Genetically Expressed Cameleon in Drosophila melanogaster Is Used to Visualize Olfactory Information in Projection Neurons. Current Biology. 12, 1877-1884 (2002).
- Wang, J. W., Wong, A. M., Flores, J., Vosshall, L. B., Axel, R. Two-Photon Calcium Imaging Reveals an Odor-Evoked Map of Activity in the Fly Brain. Cell. 112, 271-282 (2003).
- Mann, K., Gallen, C. L., Clandinin, T. R. Whole-Brain Calcium Imaging Reveals an Intrinsic Functional Network in Drosophila. Current Biology. 27, 2389-2396 (2017).
- Liang, X., Holy, T. E., Taghert, P. H. Synchronous Drosophila circadian pacemakers display nonsynchronous Ca2+ rhythms in vivo. Science. 351, 976-981 (2016).
- Harris, D. T., Kallman, B. R., Mullaney, B. C., Scott, K. Representations of Taste Modality in the Drosophila Brain. Neuron. 86, 1449-1460 (2015).
- Yoshihara, M. Simultaneous recording of calcium signals from identified neurons and feeding behavior of Drosophila melanogaster. Journal of Visualized Experiments. , e1(2012).
- Strutz, A., Völler, T., Riemensperger, T., Fiala, A., Sachse, S. Calcium imaging of neural activity in the olfactory system of Drosophila. Neuromethods. 72, 43-70 (2012).
- Seelig, J. D., et al. Two-photon calcium imaging from head-fixed Drosophila during optomotor walking behavior. Nature Methods. 7, 535-540 (2010).
- Fisher, Y. E., Lu, J., D'Alessandro, I., Wilson, R. I. Sensorimotor experience remaps visual input to a heading-direction network. Nature. 576, 121-125 (2019).
- Green, J., Vijayan, V., Mussells Pires, P., Adachi, A., Maimon, G. A neural heading estimate is compared with an internal goal to guide oriented navigation. Nature Neuroscience. 22, 1460-1468 (2019).
- Shiozaki, H. M., Ohta, K., Kazama, H. A Multi-regional Network Encoding Heading and Steering Maneuvers in Drosophila. Neuron. 106, 126-141 (2020).
- Huang, C., et al. Long-term optical brain imaging in live adult fruit flies. Nature Communications. 9, 872(2018).
- Kohatsu, S., Koganezawa, M., Yamamoto, D. Female contact activates male-specific interneurons that trigger stereotypic courtship behavior in Drosophila. Neuron. 69, 498-508 (2011).
- Grover, D., Katsuki, T., Greenspan, R. J. Flyception: imaging brain activity in freely walking fruit flies. Nature Methods. 13, 569-572 (2016).
- Cohn, R., Morantte, I., Ruta, V. Coordinated and Compartmentalized Neuromodulation Shapes Sensory Processing in Drosophila. Cell. 163, 1742-1755 (2015).
- Fiala, A., Spall, T. In Vivo Calcium Imaging of Brain Activity in Drosophila by Transgenic Cameleon Expression. Science Signaling. 2003, (2003).
- Silbering, A. F., Bell, R., Galizia, C. G., Benton, R. Calcium imaging of odor-evoked responses in the Drosophila antennal lobe. Journal of Visualized Experiments. , (2012).
- Bilz, F., Geurten, B. R. H., Hancock, C. E., Widmann, A., Fiala, A. Visualization of a Distributed Synaptic Memory Code in the Drosophila Brain. Neuron. 106, 963-976 (2020).
- Berry, J. A., Cervantes-Sandoval, I., Chakraborty, M., Davis, R. L. Sleep Facilitates Memory by Blocking Dopamine Neuron-Mediated Forgetting. Cell. 161, 1656-1667 (2015).
- Aimon, S., et al. Fast near-whole-brain imaging in adult Drosophila during responses to stimuli and behavior. PLOS Biology. 17, 2006732(2019).
- Azevedo, A. W., et al. A size principle for recruitment of Drosophila leg motor neurons. Elife. 9, (2020).
- Haberkern, H., et al. Visually Guided Behavior and Optogenetically Induced Learning in Head-Fixed Flies Exploring a Virtual Landscape. Current Biology. 29, 1647-1659 (2019).
- Li, W., et al. SCAPE Microscopy for High Speed , 3D Whole-Brain Imaging in Drosophila Melanogaster. Biomed. Opt. Congr. 2016, 4-6 (2016).
- Wu, Y., Shroff, H. Faster, sharper, and deeper: structured illumination microscopy for biological imaging. Nature Methods. 15, 1011-1019 (2018).
- Bando, Y., Grimm, C., Cornejo, V. H., Yuste, R. Genetic voltage indicators. BMC Biology. 17, 71(2019).
- Plaçais, P. -Y., et al. Upregulated energy metabolism in the Drosophila mushroom body is the trigger for long-term memory. Nature Communications. 8, 15510(2017).
- Gándara, L., Durrieu, L., Behrensen, C., Wappner, P. A genetic toolkit for the analysis of metabolic changes in Drosophila provides new insights into metabolic responses to stress and malignant transformation. Scientific Reports. 9, 19945(2019).
- Andreoni, A., Davis, C. M. O., Tian, L. Measuring brain chemistry using genetically encoded fluorescent sensors. Current Opinion in Biomedical Engineering. 12, 59-67 (2019).
- Broxton, M., et al. Wave optics theory and 3-D deconvolution for the light field microscope. Optics Express. 21, 25418-25439 (2013).
重印与许可
