我们介绍了一种分离和培养原代小鼠胚胎腭部间充质细胞的方案,用于进行二维(2D)生长和伤口修复实验的延时成像。同时提供了分析延时成像数据的方法,以确定细胞流的形成及定向运动能力。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
分离与原代小鼠胚胎腭间充质细胞的延时成像以分析集体运动特性
* These authors contributed equally
本文内容
摘要
摘要
腭的发育是一个动态过程,包括两侧腭突在舌侧垂直生长,随后抬升并融合至舌上方。该过程中的缺陷可导致腭裂,这是一种常见的出生缺陷。近期研究表明,腭突抬升涉及一个重塑过程,使腭突的方向从垂直转变为水平。腭突间充质细胞在此动态重塑过程中的作用一直难以研究。基于延时成像的定量分析最近被用于显示小鼠胚胎原代腭间充质(MEPM)细胞能够自组织形成集体性运动。定量分析可识别出具有腭突抬升缺陷的小鼠模型中突变型MEPM细胞的差异。本文描述了从E13.5胚胎中分离和培养MEPM细胞的方法,特别适用于延时成像,并确定集体运动的各种细胞特性,包括细胞流形成、形态排列以及运动方向持续性的量化指标。本文提出,MEPM细胞可作为研究腭突间充质在抬升动态过程中作用的替代模型。这些定量方法将使颅面研究领域的研究人员能够评估和比较对照细胞与突变细胞中集体运动的特性,从而加深对腭突抬升过程中间充质重塑的理解。此外,MEPM细胞为研究集体细胞运动提供了一种罕见的间充质细胞模型。
引言
腭的发育已被广泛研究,因为腭发生过程中的缺陷会导致腭裂——一种常见的出生缺陷,可单独出现,也可作为数百种综合征的一部分发生。1,2胚胎腭的发育是一个涉及胚胎组织运动和融合的动态过程。该过程可分为四个主要阶段:1)腭突的诱导,2)腭突在舌侧垂直生长,3)腭突抬升至舌上方,4)腭突在中线处融合。1,3,4在过去几十年中,已鉴定出许多表现出腭裂的小鼠突变体5,6,7,8. 对这些模型的表征已 表明在腭突诱导、增殖和融合阶段存在缺陷;然而,腭突抬升缺陷却较为罕见。因此,探究腭突抬升的动态过程成为一个引人关注的研究领域。
对一些具有腭突提升缺陷的小鼠突变体进行细致分析后,目前的模型表明,腭突的最前部区域似乎发生向上翻转,而在腭部中后区域则发生从垂直方向到水平方向的运动或 “重塑”""1,3,4,9,10,11。腭突的内侧缘上皮可能启动了这一重塑过程所需的信号,随后由腭突间充质驱动该过程。最近,许多研究人员在表现出涉及腭突的短暂口腔粘连的小鼠模型中发现了腭突提升延迟12,13。间充质的重塑包括细胞的重新排列,以在水平方向形成隆起,同时在垂直方向回缩腭突9,10,14。在多种被提出影响腭突提升及潜在间充质重塑的机制中,包括细胞增殖15,16,17、趋化梯度18以及细胞外基质成分19,20。由此产生了一个重要问题:在Specc1l-缺陷小鼠中观察到的腭突提升延迟是否也部分源于腭突重塑缺陷,而这种重塑缺陷是否可能表现为原代MEPM细胞行为的内在缺陷21?
原代MEPM细胞已广泛应用于颅面领域的多项研究,涉及基因表达22,23,24,25,26,27,28,29,少数研究涉及细胞增殖30,31和迁移25,31,32,但尚无用于集体细胞行为分析的研究。本研究通过二维培养和伤口修复实验进行MEPM细胞的延时成像,结果表明MEPM细胞表现出定向运动,并形成密度依赖性的细胞流,具备集体运动的特征21。此外,Specc1l 突变细胞形成的细胞流较窄,且细胞迁移轨迹高度不一致。这种运动协调性的缺失被认为可导致Specc1l 突变胚胎腭板抬升的延迟13,21。因此,利用原代MEPM细胞进行的这些相对简单的实验,可作为研究腭板抬升过程中间充质重塑的替代方法。本文描述了原代MEPM细胞的分离与培养,以及二维培养和伤口修复实验的延时成像与分析方法。
访问受限。请登录或开始试用以查看此内容。
方案
所有涉及动物的实验均依照堪萨斯大学医学中心机构动物护理和使用委员会批准的方案进行,并遵循其指南和规定(方案编号:2018-2447)。
1. 收集 E13.5 胚胎
- 使用 CO₂ 处死怀孕雌性小鼠2 吸入式麻醉室或经机构动物护理与使用委员会批准的程序。立即进行解剖。
- 通过去除皮肤和腹膜暴露腹腔下半部分。切除包含E13.5胚胎的两侧子宫角。
- 将子宫短暂置于预热的 37 °C 用无菌磷酸盐缓冲液(PBS)冲洗掉多余的血液、毛发或其他碎屑。将子宫置于盛有无菌PBS的无菌10 cm培养皿中。
- 使用小剪刀沿子宫的长度方向剪开子宫壁,以暴露每个仍处于卵黄囊中的胚胎。移除包围胚胎的卵黄 sac,但如有需要,应保留用于基因分型。每取出一个胚胎后,立即将其放入含有 PBS 的 12 孔板的独立孔中。
2. 从胚胎中分离腭突(图1)
注意:每次处理完一个胚胎后,需对不锈钢解剖器械(参见材料表)进行灭菌,先将其放入盛有100%乙醇(EtOH)的烧杯中,然后置于350 °C的器械灭菌器中加热10秒,最后再放入第二个盛有100%乙醇的烧杯中冷却。
- 使用无菌的带孔勺子将胚胎转移至一个新的盛有 MEPM 培养基的 10 cm 培养皿中,培养基成分为含 10% 胎牛血清(FBS)、L-谷氨酰胺(4 mM L-Glu)以及抗生素青霉素和链霉素(50 单位/mL)的杜尔贝科改良必需培养基(DMEM)。
- 使用无菌剪刀在下颌线以下位置切除胚胎头部(图 1A,红色虚线)。将无菌精细 #5 镊子的一端插入胚胎口中,保持其紧贴颊部内侧,推动镊尖穿过组织直至从颅骨后方穿出,以移除下颌。
- 将镊子沿 图 1B 中黄色线方向定位,使镊子另一端(仍位于胚胎外侧)悬于耳道正上方,然后闭合镊子以剪切组织。如有必要,可使用另一把精细镊子沿已闭合镊子的接缝处滑动,以切断未完全分离的组织。
- 对胚胎头部另一侧重复上述步骤。继续进行夹捏-剪切操作,彻底移除下颌、舌体及颅骨下部,暴露腭突。
- 如 图 1C 所示(绿色线),在眼睛上方稍高位置剪切以去除颅骨。操作时将头部侧放(左侧或右侧朝下),将小型不锈钢剪刀的尖端分别置于胚胎眼水平稍上方的颅骨前后两侧,快速剪下一刀以切除颅顶,形成一个平整的表面,该表面对于后续操作的稳定性至关重要,从侧面观察时应如 图 1D 所示。
- 将头部剩余部分倒置,使头部上表面(已去除颅骨)平整地贴附在培养皿底部,为后续腭突的分离提供稳定支撑。此时可观察已暴露并朝上的腭突结构,其表现为头部前半部分中央沟槽两侧的两条隆起脊状结构(图 1E)。
- 用镊子将头部剩余部分固定于培养皿中,以在分离腭突时保持其稳定。操作方法为:将一把精细镊子的一端插入头部鼻区附近、腭突前方的组织中,另一端插入颅底、腭突后方的组织中,并保持固定,以便进行腭突的切除。
- 用一只手固定头部,选择任一侧腭突首先进行分离。将另一把精细镊子的两个尖端插入腭突外侧基底部的组织中,夹闭以切断组织(图 1F)。随后沿腭突内侧基底部以及前后两端重复此操作,以完全将其从头部组织上分离。
- 轻柔提起腭突,根据需要进行额外的夹捏操作,以彻底将其从周围组织中游离。
- 重复前两步操作,以移除第二侧腭突。
- 在腭突已从周围组织中完全游离并置于 PBS 中后(图 G),使用无菌塑料移液吸头将腭突吸入移液器中,并转移至 1.5 mL 微量离心管中,同时加入约 500 µL PBS。在处理同窝其余样本期间,将装有腭突的离心管置于冰上保存。
注:也可选择在解剖完成后立即将腭突直接放入含有预热胰蛋白酶(0.25%)的 1.5 mL 微量离心管中(替代冰上保存)。此方法可使样本保持更新鲜状态,但需注意对每个样本单独计时后续各操作步骤,而不能将所有样本统一处理。
3. MEPM 细胞的培养
注意:在此所述条件下,腭部上皮细胞无法存活至第一次传代,从而获得纯的腭部间充质细胞培养物。所有步骤均须在组织培养罩内采用无菌技术进行。
- 从1.5 mL离心管中吸弃PBS,注意在此过程中不要将腭板组织一并丢弃。立即向每管含有腭板组织的样品中加入200 µL预热至37 °C的0.25%胰蛋白酶。使用1000 µL移液枪头在胰蛋白酶中轻轻反复吹打腭板组织,以加速消化过程。
- 将离心管在37 °C下孵育5分钟,然后再次吹打各管样品以促进组织解离。继续在37 °C下孵育5分钟,并再次吹打一次,以完成组织的完全解离。
注意:腭板组织必须完全或几乎完全解离,悬浮于胰蛋白酶中,无可见的组织块残留。 - 向每个1.5 mL离心管中加入800 µL MEPM培养基(步骤2.1)。在200 × g下离心5分钟以收集细胞。弃去上清液,将细胞沉淀重悬于1 mL MEPM培养基中。
- 将MEPM细胞接种至含MEPM培养基的6孔组织培养板中。将细胞置于37 °C、5% CO2的培养箱中孵育12小时,使其贴附于塑料表面。
注意:过夜培养后,绝大多数细胞(约90%)将完成贴壁。此时贴壁细胞形态较为均一,呈三角形或略呈细长形。 - 每天更换培养基:轻轻吸去旧培养基,立即加入1 mL预热的无钙镁PBS,孵育约1分钟。随后吸去PBS,并加入3 mL预热的MEPM培养基。
- 当细胞达到100%汇合时进行传代。
注意:MEPM细胞应几乎每日倍增一次。- 传代时,轻轻吸去旧培养基,立即加入无钙镁的预热PBS孵育约1分钟。吸去PBS后,加入0.5 mL预热的0.25%胰蛋白酶。
- 在37 °C孵育约5分钟,或直至轻轻晃动培养皿时细胞从皿底脱落。细胞脱落后,立即向消化液中加入5 mL预热的MEPM培养基以终止消化。
- 使用10 mL血清移液管将细胞轻柔转移至15 mL锥形离心管中,在200 × g下离心5分钟以收集细胞。吸去胰蛋白酶和培养基,将细胞沉淀重悬于3 mL预热的MEPM培养基中。用移液枪轻柔地将1 mL细胞悬液接种至6孔板的一个孔中,再加入2 mL MEPM培养基,使终体积为3 mL。
注意:此操作相当于1:3传代。MEPM细胞最多可传代三次。MEPM细胞的接种密度具有一定灵活性,具体细胞数量取决于所用培养容器。然而,若传代密度过低,细胞将无法正常增殖,因此在细胞贴壁后,其汇合度应至少达到20–25%。
4. MEPM 细胞的冷冻保存
- 将胰蛋白酶消化后的MEPM细胞离心沉淀后,用MEPM培养基重悬细胞,调整细胞浓度至约 1 × 10⁶ 个/mL。将细胞悬液分装至冻存管中,并使终浓度为5%的二甲基亚砜存在于细胞悬液中。盖紧冻存管,轻轻颠倒混匀,立即放入程序降温盒中,以1 °C/min的速率降温冷冻。
- 将降温盒置于-80 °C超低温冰箱中过夜。次日,将冻存管转移至液氮罐中进行长期保存。
- 复苏冻存的MEPM细胞
- 从液氮罐中取出冻存管,在室温下解冻,直至内容物开始液化。将管内液体转移至含有9 mL预热MEPM培养基的15 mL锥形离心管中。
- 在200 × g 条件下离心,使细胞沉淀。用1 mL MEPM培养基重悬细胞,将细胞悬液转移至6孔板中的一个孔内,再加入2 mL温热的MEPM培养基,使终体积为3 mL。
- 将细胞置于含5% CO2 的37 °C培养箱中培养,每日更换培养基。
5. MEPM 细胞活体成像——二维集体迁移实验(图2)
- 准备用于活体成像的培养板。
- 使用小型手术剪刀或锋利的解剖刀将无菌的2孔硅胶插件修剪至高度约1 mm。每个样本准备一个插件。
- 用镊子将截短的2孔硅胶插件置于6孔板孔的中央。沿所有边缘按压,确保其完全贴附。
- 按照本方案第4.3节中的步骤解冻冻存细胞。对MEPM细胞进行计数,并以300个细胞/mm接种2 缩短的硅胶插入物总体积为40-50 µL 每孔加入MEPM培养基。将细胞在37℃、5% CO₂培养箱中过夜培养。 37 °C 在含5% CO₂的培养箱中2.
- 第二天,准备进行活细胞实时成像。
- 使用带有载物台培养箱和自动成像功能的相差显微镜。向载物台培养箱的储水槽中加水,以减少培养基的蒸发;将温度设定为 37 °C 和 CO2 至5%。在将6孔板放入载台培养箱前,等待约30分钟,使湿度充分上升。
- 使用与以下设置等效的参数进行延时成像。
- 选择4倍物镜以获得较大的视野和相差滤镜。
注意:通常不需要自动对焦、自动寻找样本、z轴层扫和自动照明。 - 每孔选择两个显微视野以捕获缩短的硅胶插入物的管腔。确保所有成像位置均正确对焦。
注意:成像过程中可调整图像平面,但通常无需进行此类调整。 - 选择所需的图像输出文件类型,然后根据需要选择或取消选择成像后选项,如自动视频生成和水印。如适用,请选择相位差作为成像模式。
注意:使用水印可能会妨碍后续的图像处理步骤。 - 将记录时长设置为72 h,程序设置为每10 min拍摄一次图像。
注意:通常仅需成像 48 小时,但在达到 72 小时之前,可在任意时间点停止成像,已采集的图像不会丢失。 - 确保环境箱按照5.3.1节要求正常运行。保存这些设置(常规)并开始成像。
- 选择4倍物镜以获得较大的视野和相差滤镜。
- 继续成像直至72小时(或指定时间)。
6. MEPM 细胞在伤口修复实验中的活体成像(图3)
- 准备用于活细胞成像的培养板。使用镊子将一个无菌的2孔硅胶插件置于6孔板孔的中央,并沿所有边缘按压,确保其完全贴附。每个样本均需准备一个2孔插件。
- 按照本方案第4.3节的步骤解冻冻存细胞。对MEPM细胞进行计数,必要时将细胞浓缩至至少350个细胞/µL。
- 以每孔100 µL MEPM培养基的体积,将1400个细胞/mm2接种至硅胶插件中。将细胞在37 °C、含5% CO2的培养箱中培养48小时,每天更换培养基。
- 48小时后,按照第5.3和5.4节所述准备显微镜进行活细胞延时成像。在将细胞放入载物台培养箱前,立即向孔中(插件外部)加入3 mL预热的MEPM培养基,然后小心移除硅胶插件。
注意:分隔两个腔室的壁会留下一个间隙,即为“伤口”。 - 按照5.4节所述开始延时成像,但需注意以下差异:
- 使用更高倍率的物镜(例如10倍)。为捕捉伤口闭合过程,沿每条伤口选择5个视野,使伤口与图像的垂直轴平行。
- 72小时后或伤口完全闭合时停止成像。
7. 延时图像序列的计算分析
注意:在配备标准计算工具(如 Python 解释器、C 编译器和 shell)的计算机上执行以下操作(参见材料表)。
- 融合度分析
注意:该步骤可用于估算稀疏培养中的细胞增殖,或量化伤口愈合实验。为检测细胞占据的区域,需对图像亮度的局部标准差应用分割阈值。该代码此前已由 Wu 等人描述。33 以及 Neufeld 等人34 并在 http://github.com/aczirok/cellconfluency 获取。- 确定图像的分割阈值。例如,若要查看阈值为 4 时的分割结果,请执行以下命令
segment.py -i inout-image.jpg -S 4 -test output.jpg
然后检查输出结果(output.jpg).
注意:如果阈值过低,显微图像中的背景区域会被误判为有细胞覆盖;相反,如果阈值过高,则有细胞覆盖的区域将无法被正确识别。最佳阈值应使这两类误差均降至最低。 - 使用提供的 area.sh 脚本计算一系列图像的汇合度值
area.sh -S 4 img_001.jpg img_002.jpg .... > confluency.dat
注意:判别阈值 4 在步骤 1 中已验证,结果已保存至文件 confluency.dat通过将图像分类至相应的文件夹,图像文件名列表可被替换为 通配符 注释:
area.sh -S4 *.jpg > confluency.dat - 用于伤口闭合实验,转换融合度数据 A(t)- 细胞覆盖面积随时间变化的百分比及伤口边缘的迁移速度 V 作为
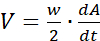
其中 w 表示视野的宽度,dA/dt 是 A(t) 对时间的导数,即细胞覆盖面积的扩张速率。
- 确定图像的分割阈值。例如,若要查看阈值为 4 时的分割结果,请执行以下命令
- 细胞运动图谱
- 执行粒子图像测速(PIV)算法以表征细胞运动性,并提取图像对之间局部运动“光流”的程度,但不用于识别单个细胞。
注意:此处初始窗口大小为 50 µm 如Zamir等人所详细描述的那样,被使用。35 和 Czirok 等人36,初始窗口大小为 50 µmPIV 分析为每个图像帧 t 及图像中的位置 x 提供速度场 v(x,t)。 - 根据第7.1节确定的细胞占据区域,通过在该区域内进行空间平均,从v(x,t)中提取细胞运动的平均速度。
- 执行粒子图像测速(PIV)算法以表征细胞运动性,并提取图像对之间局部运动“光流”的程度,但不用于识别单个细胞。
- 手动细胞追踪
注意:虽然PIV分析可自动评估细胞运动性,但若要重点关注单个细胞的行为,通常需要进行手动追踪。尽管已有多种工具提供此功能,但如果能在初始标记放置后对其进行修改,并支持在时间上向前和向后双向追踪,则将非常有益。- 使用自主开发的 Python 工具(http://github.com/donnagreta/cm_track)进行细胞追踪,该工具还提供删除轨迹片段等基本编辑功能。
注意:该手动追踪工具会生成一个文本文件,其中包含细胞 i 在时间 t 的位置 P(i,t),并以此方式调用
cm_track.py -i 图像/ -o track.dat
其中延时图像位于文件夹 images/ 中,位置数据收集在文件中 track.dat (图4).
- 使用自主开发的 Python 工具(http://github.com/donnagreta/cm_track)进行细胞追踪,该工具还提供删除轨迹片段等基本编辑功能。
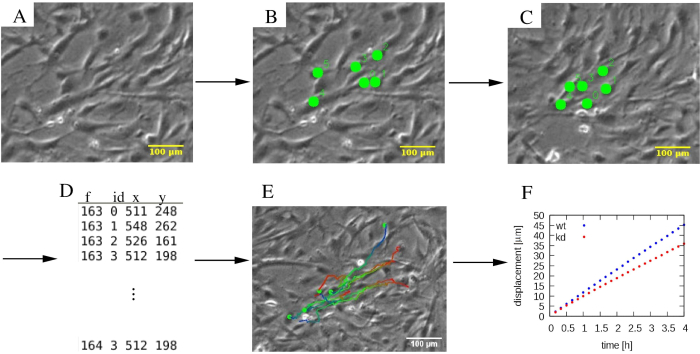
图 4:单个细胞轨迹的分析。(A)相差显微镜延时图像经过(B, C)手动追踪处理,标记细胞(绿色点)。(D)每个被区分的细胞(以其编号标识)在每一帧 f 中的位置(x, y)被记录下来。(E)轨迹可叠加在显微图像上,并以颜色编码表示时间信息。例如,在每条轨迹中,从蓝色到红色的色谱表示逐渐靠后的轨迹片段,其中蓝色和红色分别标记细胞的起始和最终位置。(F)可提取轨迹的各种统计特性(如均方位移),用于表征不同细胞群体的运动能力,在本例中包括野生型(wt,蓝色)和敲低型(kd,红色)MEPM 细胞。比例尺代表 100 µm。请点击此处查看该图的放大版本。
- 使用第二个工具在图像上叠加轨迹,调用命令为
visdat.py -d track.dat -i images/ -o overlay/ -l999 -r3 -C2 - 在 overlay 文件夹中收集已叠加轨迹的图像。
注意:本示例中,细胞位置数据存储在文件 track.dat 中,而时间序列图像位于 images 文件夹内。其余参数用于控制所绘制轨迹的最大长度(-l)、符号大小(-r)以及配色方案(-C)。
- 分析单个细胞的轨迹
- 通过总路径长度来表征轨迹
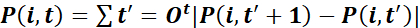 ,
以及向伤口方向的净位移
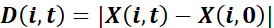 ,
其中X表示P在垂直于伤口方向上的投影:当伤口平行于y轴时,即为位置的x坐标。 - 对每个细胞i和时间点t,计算引导效率为
 。在合适的时间点t,通过这些单细胞测量值的群体平均值来表征培养物37。
- 通过总路径长度来表征轨迹
- 细胞的集体流动运动
- 通过移动细胞周围邻近细胞的平均速度来表征细胞运动的局部空间相关性,方法如前所述38,39。
注:计算代码可在 https://github.com/aczirok/flowfield 获取。- 将参考系的方向(前、后、左、右)与每个向量v(x,t)对齐(图5A)。将每个周围的细胞或PIV速度向量分配至参考系中相应的位置单元(图5B)。重复该过程,使每个向量依次作为参考系的原点(图5C,D),从而使某一速度向量可被分配至多个单元。
注:一个数据点可能位于某一向量的前方,同时位于另一向量的左侧。 - 将所有参考系旋转至统一方向(图5C,F),并进行合并(图5G)。
注:合并后速度数据各单元的平均值为一个速度向量(U),可反映空间相关性:该平均值表示共享的速度分量(图5H)。 - 用指数函数
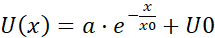 对U(x)流场进行拟合,其中a, x0和U0为拟合参数。在三个拟合参数中,重点关注x0,即相关长度(图5I,J),它表示局部速度-速度相关性消失的特征距离。
- 将参考系的方向(前、后、左、右)与每个向量v(x,t)对齐(图5A)。将每个周围的细胞或PIV速度向量分配至参考系中相应的位置单元(图5B)。重复该过程,使每个向量依次作为参考系的原点(图5C,D),从而使某一速度向量可被分配至多个单元。
- 通过移动细胞周围邻近细胞的平均速度来表征细胞运动的局部空间相关性,方法如前所述38,39。
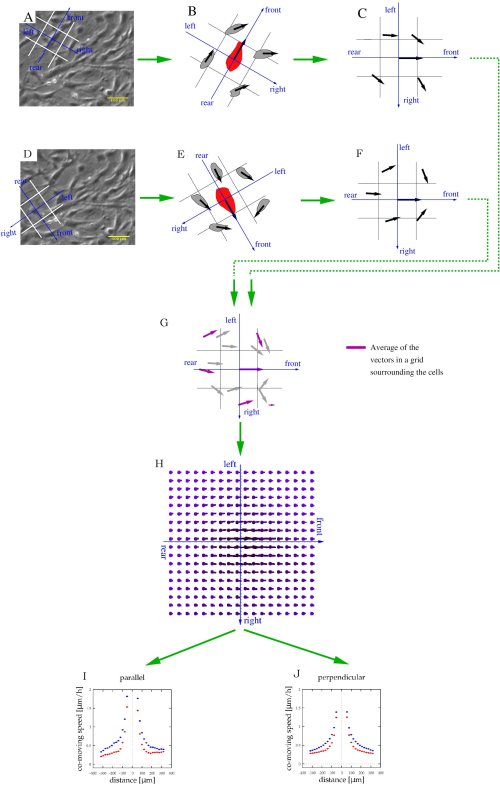
图 5:培养细胞流形成特征的表征。(A,D)使用来自图 4A的相差时间推移图像来识别细胞运动。对于每个移动的细胞,将参考坐标系(蓝色)和空间分箱(白色)共同对齐,以将邻近细胞分类为位于前方、后方、左侧或右侧。(B,E)邻近细胞的速度(黑色矢量)相对于同一参考坐标系进行分析(C,F)。该过程对每个细胞和每个时间点重复进行。(G)在汇总这些局部信息后,每个分箱将包含多个速度矢量(灰色),可通过取平均值得到相对于一个平均运动细胞在不同位置处的平均共运动速度(品红色箭头)。(H)因此,平均速度图可表征相对于一个移动细胞在不同位置处的典型细胞速度。(I,J)最后,沿前后(平行)轴和左右(垂直)轴对该矢量场进行采样。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
腭突的解剖过程如图1所示。切口顺序的设计旨在最大限度减少组织滑动。在移除头部后(图1A、B),去除下颌(图1B、C)。对头部上部进行切开(图1C、D),以便将组织倒置后固定(图1E),从而观察(图1E,虚线)、夹取(图1F)并切除腭突(图1G)。
将单个胚胎中切除的成对腭突在35 mm培养皿或6孔板的孔中进行胰蛋白酶消化并培养。不推荐使用较大的培养皿,因为细胞密度过低,不利于最...
访问受限。请登录或开始试用以查看此内容。
讨论
腭突板抬升是一种从垂直方向到水平方向的重塑事件1,3,4,9,11。据推测,这一重塑过程需要腭突板间充质细胞协调一致地活动。对野生型MEPM细胞的分析表明,这种细胞行为是内在的,并且可以被量化21。因此,这些检测方法可用于揭示新建立或已有腭裂小鼠模型中腭突板抬升的原发性缺陷。第1和第2节中所述方法可使研究人员分离、培养并冻存多份原代MEPM细胞。这些细胞可用于多种实验应用,包括本文所述的二维培养和伤口修复检测。二维培养结合延时成像,提供了一种简单的方法,可在不同细胞密度条件下测定细胞的基本特性。本文介绍了一种评估细胞排列和细胞流形成的方法,这两者是细胞集体运动的特征(图4)。伤口闭合检测常用于评估细胞迁移能力...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本项目部分得到了美国国立卫生研究院基金 DE026172(I.S.)和 GM102801(A.C.)的支持。I.S. 还部分得到了生物医学研究卓越中心(COBRE)基金(美国国立普通医学科学研究所 P20 GM104936)、堪萨斯生物医学研究卓越创新网络基金(美国国立普通医学科学研究所 P20 GM103418)以及堪萨斯智力与发育障碍研究中心(KIDDRC)基金(尤妮斯·肯尼迪·施莱佛国立儿童健康与人类发育研究所 U54 HD090216)的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 250 mL 烧杯(x2) | Fisher Scientific | FB-100-250 | |
| CO2 | Matheson Gas | UN1013 | |
| 15 mL 圆锥管(x1) | Midwest Scientific | C15B | |
| Debian 操作系统 | 延时图像的计算分析 | ||
| 含 4 mM L-谷氨酰胺和丙酮酸钠的杜尔贝科改良伊格尔培养基/高糖 | Cytiva Life Sciences | SH30243.01 | |
| 乙醇,100% | Decon Laboratories | 2701 | |
| EVOS FL Auto | ThermoFisher Scientific | AMAFD1000 | |
| EVOS 载台培养箱 | ThermoFisher Scientific | AMC1000 | |
| EVOS 载台容器架,多孔板用 | ThermoFisher Scientific | AMEPVH028 | |
| 胎牛血清 | Corning | 35-010-CV | |
| 精细 #5 不锈钢镊子(x2) | Fine Science Tools | 11295-10 | 解剖 |
| 器械灭菌珠浴仪 | Fine Science Tools | 18000-45 | |
| 1.5 mL 微型离心管 | Avant | 2925 | |
| 直头不锈钢显微解剖剪 | Roboz | RS-5910 | 解剖 |
| NucBlue(Hoechst)活细胞即用型探针 | ThermoFisher Scientific | R37605 | |
| 青霉素-链霉素溶液,100x | Corning | 30-002-CI | |
| 硅胶插件,双孔 | Ibidi | 80209 | |
| 小型带孔不锈钢勺 | Fine Science Tools | MC17C | 解剖 |
| 弹簧剪,4 mm | Fine Science Tools | 15018-10 | |
| 无菌 10 cm 培养皿 | Corning | 430293 | |
| 无菌 12 孔板 | PR1MA | 667512 | |
| 无菌 6 孔板 | Thermo Fisher Scientific | 140675 | |
| 无菌 PBS | Corning | 21-031-CV | |
| 无菌塑料球状移液管 | ThermoFisher Scientific | 202-1S | |
| 胰蛋白酶,0.25% | ThermoFisher Scientific | 25200056 |
参考文献
- Bush, J. O., Jiang, R. Palatogenesis: morphogenetic and molecular mechanisms of secondary palate development. Development. 139 (2), 231-243 (2012).
- Mossey, P. A., Little, J., Munger, R. G., Dixon, M. J., Shaw, W. C. Cleft lip and palate. Lancet. 374 (9703), 1773-1785 (2009).
- Lan, Y., Xu, J., Jiang, R. Cellular and molecular mechanisms of palatogenesis. Current Topics in Developmental Biology. 115, 59-84 (2015).
- Li, C., Lan, Y., Jiang, R. Molecular and cellular mechanisms of palate development. Journal of Dental Research. 96 (11), 1184-1191 (2017).
- Gritli-Linde, A. The etiopathogenesis of cleft lip and cleft palate: usefulness and caveats of mouse models. Current Topics in Developmental Biology. 84, 37(2008).
- Meng, L., Bian, Z., Torensma, R., Vonden Hoff, J. W. Biological mechanisms in palatogenesis and cleft palate. Journal of Dental Research. 88 (1), 22-33 (2009).
- Dixon, M. J., Marazita, M. L., Beaty, T. H., Murray, J. C. Cleft lip and palate: understanding genetic and environmental influences. Nature Reviews Genetics. 12 (3), 167-178 (2011).
- Kousa, Y. A., Schutte, B. C. Toward an orofacial gene regulatory network. Developmental Dynamics. 245 (3), 220-232 (2016).
- Jin, J. Z., et al. Mesenchymal cell remodeling during mouse secondary palate reorientation. Developmental Dynamics. 239 (7), 2110-2117 (2010).
- Yu, K., Ornitz, D. M. Histomorphological study of palatal shelf elevation during murine secondary palate formation. Developmental Dynamics. 240 (7), 1737-1744 (2011).
- Chiquet, M., Blumer, S., Angelini, M., Mitsiadis, T. A., Katsaros, C. Mesenchymal remodeling during palatal shelf elevation revealed by extracellular matrix and F-actin expression patterns. Frontiers in Physiology. 7, 392(2016).
- Paul, B. J., et al. ARHGAP29 mutation is associated with abnormal oral epithelial adhesions. Journal of Dental Research. 96 (11), 1298-1305 (2017).
- Hall, E. G., et al. SPECC1L regulates palate development downstream of IRF6. Human Molecular Genetics. 29 (5), 845-858 (2020).
- Walker, B. E., Fraser, F. C. Closure of the secondary palate in three strains of mice. Journal of Embryology and Experimental Morphology. 4 (2), 176-189 (1956).
- Jin, J. Z., Li, Q., Higashi, Y., Darling, D. S., Ding, J. Analysis of Zfhx1a mutant mice reveals palatal shelf contact-independent medial edge epithelial differentiation during palate fusion. Cell Tissue Research. 333 (1), 29-38 (2008).
- Kouskoura, T., et al. The etiology of cleft palate formation in BMP7-deficient mice. PLoS One. 8 (3), 59463(2013).
- Lan, Y., Zhang, N., Liu, H., Xu, J., Jiang, R. Golgb1 regulates protein glycosylation and is crucial for mammalian palate development. Development. 143 (13), 2344-2355 (2016).
- He, F., et al. Wnt5a regulates directional cell migration and cell proliferation via Ror2-mediated noncanonical pathway in mammalian palate development. Development. 135 (23), 3871-3879 (2008).
- Lan, Y., Qin, C., Jiang, R. Requirement of hyaluronan synthase-2 in craniofacial and palate development. Journal of Dental Research. 98 (12), 1367-1375 (2019).
- Yonemitsu, M. A., Lin, T. Y., Yu, K. Hyaluronic acid is required for palatal shelf movement and its interaction with the tongue during palatal shelf elevation. Developmental Biology. 457 (1), 57-68 (2020).
- Goering, J. P., et al. SPECC1L-deficient palate mesenchyme cells show speed and directionality defect. Scientific Reports. 11 (1), 1452(2021).
- Fantauzzo, K. A., Soriano, P. PI3K-mediated PDGFRalpha signaling regulates survival and proliferation in skeletal development through p53-dependent intracellular pathways. Genes and Development. 28 (9), 1005-1017 (2014).
- Vasudevan, H. N., Soriano, P. SRF regulates craniofacial development through selective recruitment of MRTF cofactors by PDGF signaling. Developmental Cell. 31 (3), 332-344 (2014).
- Vasudevan, H. N., Mazot, P., He, F., Soriano, P. Receptor tyrosine kinases modulate distinct transcriptional programs by differential usage of intracellular pathways. Elife. 4, 07186(2015).
- Gao, L., et al. 2,3,7,8-Tetrachlorodibenzo-p-dioxin and TGFbeta3-mediated mouse embryonic palatal mesenchymal cells. Dose Response. 17 (1), 1559325818786822(2019).
- Iyyanar, P. P. R., Nazarali, A. J. Hoxa2 inhibits bone morphogenetic protein signaling during osteogenic differentiation of the palatal mesenchyme. Frontiers in Physiology. 8, 929(2017).
- Jiang, Z., Pan, L., Chen, X., Chen, Z., Xu, D. Wnt6 influences the viability of mouse embryonic palatal mesenchymal cells via the beta-catenin pathway. Experimental and Therapeutic Medicine. 14 (6), 5339-5344 (2017).
- Liu, X., et al. Negative interplay of retinoic acid and TGF-beta signaling mediated by TG-interacting factor to modulate mouse embryonic palate mesenchymal-cell proliferation. Birth Defects Research Part B: Developmental and Reproductive Toxicology. 101 (6), 403-409 (2014).
- Bush, J. O., Soriano, P. Ephrin-B1 forward signaling regulates craniofacial morphogenesis by controlling cell proliferation across Eph-ephrin boundaries. Genes & Development. 24 (18), 2068-2080 (2010).
- Mo, J., Long, R., Fantauzzo, K. A. Pdgfra and Pdgfrb genetically interact in the murine neural crest cell lineage to regulate migration and proliferation. Frontiers in Physiology. 11, 588901(2020).
- He, F., Soriano, P. A critical role for PDGFRalpha signaling in medial nasal process development. PLoS Genetics. 9 (9), 1003851(2013).
- Fantauzzo, K. A., Soriano, P. Generation of an immortalized mouse embryonic palatal mesenchyme cell line. PLoS One. 12 (6), 0179078(2017).
- Wu, K., Gauthier, D., Levine, M. D. Live cell image segmentation. IEEE Transactions on Biomedical Engineering. 42 (1), 1-12 (1995).
- Neufeld, Z., et al. The role of Allee effect in modelling post resection recurrence of glioblastoma. PLoS Computational Biology. 13 (11), 1005818(2017).
- Zamir, E. A., Czirok, A., Rongish, B. J., Little, C. D. A digital image-based method for computational tissue fate mapping during early avian morphogenesis. Annals of Biomedical Engineering. 33 (6), 854-865 (2005).
- Czirok, A., et al. Optical-flow based non-invasive analysis of cardiomyocyte contractility. Scientific Reports. 7 (1), 10404(2017).
- Biggs, L. C., et al. Interferon regulatory factor 6 regulates keratinocyte migration. Journal of Cell Science. 127, Pt 13 2840-2848 (2014).
- Czirok, A., Varga, K., Mehes, E., Szabo, A. Collective cell streams in epithelial monolayers depend on cell adhesion. New Journal of Physics. 15, 75006(2013).
- Szabo, A., et al. Collective cell motion in endothelial monolayers. Physical Biology. 7 (4), 046007(2010).
- Gulyas, M., Csiszer, M., Mehes, E., Czirok, A. Software tools for cell culture-related 3D printed structures. PLoS One. 13 (9), 0203203(2018).
- Soderholm, J., Heald, R. Scratch n' screen for inhibitors of cell migration. Chemistry & Biology. 12 (3), 263-265 (2005).
- Riahi, R., Yang, Y., Zhang, D. D., Wong, P. K. Advances in wound-healing assays for probing collective cell migration. Journal of Laboratory Automation. 17 (1), 59-65 (2012).
- Svensson, C. M., Medyukhina, A., Belyaev, I., Al-Zaben, N., Figge, M. T. Untangling cell tracks: Quantifying cell migration by time lapse image data analysis. Cytometry Part A. 93 (3), 357-370 (2018).
- Fantauzzo, K. A., Soriano, P. PDGFRbeta regulates craniofacial development through homodimers and functional heterodimers with PDGFRalpha. Genes & Development. 30 (21), 2443-2458 (2016).
- Rafi, S. K., et al. Anti-epileptic drug topiramate upregulates TGFβ1 and SOX9 expression in primary embryonic palatal mesenchyme cells: Implications for teratogenicity. PLoS ONE. , In Press (2021).
访问受限。请登录或开始试用以查看此内容。
重印与许可
