本文介绍了两种可用于模拟肠道顶膜特异性相互作用的实验方案。类器官来源的肠道单层细胞培养和气液界面(ALI)培养可形成高度分化的上皮层,且可同时从管腔侧和基底侧进行操作;而极性翻转的肠道类器官则将其顶膜暴露在外,适用于高通量检测。
方法文章
利用肠道类器官模型研究顶端特异性相互作用的培养方法
* These authors contributed equally
本文内容
摘要
摘要
肠道上皮的内衬由一层特化的上皮细胞构成,这些细胞将其顶面暴露于管腔中,并对外部信号作出响应。近年来,体外培养条件的优化使得肠干细胞微环境得以重建,并推动了先进的三维(3D)培养系统的开发,能够重现上皮细胞的组成与结构组织。嵌入细胞外基质(ECM)中的肠道类器官可长期维持培养,并自发组织形成具有明确极性、包含内部管腔和外部暴露基底面的上皮结构。然而,这种肠道类器官的封闭结构特性给体外研究带来了挑战,限制了对上皮顶面的接触,从而阻碍了对营养吸收以及宿主-微生物群/宿主-病原体相互作用等生物学机制的探究。本文中,我们介绍了两种可促进接触类器官上皮顶面并支持特定肠细胞类型分化的实验方法。首先,我们展示了如何通过去除ECM诱导上皮细胞极性的翻转,从而生成顶面朝外的三维类器官(apical-out 3D organoids)。其次,我们描述了如何从肠道类器官来源的单细胞悬液中建立二维(2D)单层培养体系,该体系包含 成熟且已分化的多种细胞类型。这些技术为在体外研究上皮顶面与外界信号之间的特异性相互作用提供了新工具,并推动类器官作为实现精准医学研究平台的应用。
引言
肠道上皮是人体内第二大上皮组织,由一层极性细胞构成,负责促进营养物质的吸收,并作为抵御外界环境侵害的屏障1。顶膜侧与基底外侧之间的这种区分使上皮细胞能够执行多种功能。顶膜侧面向管腔,介导上皮细胞与外界刺激物及微生物的相互作用,同时促进营养物质的吸收;而基底外侧则含有细胞间连接结构和细胞-基质黏附装置,并与免疫系统细胞及其他组织进行交互2。这些连接结构形成一层不可渗透的单层细胞,附着于基底膜上,既发挥屏障作用,又将吸收的营养物质输送至周围机体组织。
建立能够在体外重现这些肠道功能的培养系统一直具有挑战性3。传统的体外模型利用转化的人结肠直肠癌细胞系(如 Caco-2)来生成二维单层培养物。尽管这些模型能够模拟吸收区室的多种功能,但它们无法完全重现肠道上皮的组成和功能,从而限制了关键的功能特征和应用4,5。
类器官作为一种由干细胞生成的先进三维培养系统,能够自我组织并分化为特定器官的细胞类型,这一发展在肠道上皮体外研究中具有突破性意义6。肠道类器官被包埋在类似于基底膜的细胞外基质(ECM)中,并形成细胞-基质连接,使这些培养物能够维持上皮的顶-基底极性。类器官具有封闭的结构,其顶面朝向腔内区域,从而模拟了肠道的结构。尽管这种封闭结构为研究方向特异性功能提供了机会,但它限制了对上皮顶面进行操作和观察的实验。为克服这些局限,研究人员已尝试多种方法,包括二维和三维条件下的类器官碎片化、类器官显微注射以及单层培养物的建立7。类器官碎片化会导致结构组织的丧失和细胞连接的破坏,从而使上皮顶面暴露于培养基中。该技术利用碎片在接种至细胞外基质后重新形成类器官的再生能力,已被用于感染性疾病及宿主-病原体相互作用的建模研究8,9。然而,同时暴露顶面和基底面可能引发对感染的非特异性反应。
一种可接触类器官腔面并保持其结构架构和细胞连接的替代方法是将因子显微注射到类器官的腔内。该方法已被广泛用于研究宿主与病原体的相互作用,并在体外模拟Cryptosporidium10、H. pylori11和C. difficile12对胃肠道上皮的影响。利用类似技术,已确定产pks+的大肠杆菌(E. coli)菌株对肠上皮的致突变潜能13。尽管该方法有效,但考虑到需要注射大量类器官才能获得可测量的效应,类器官显微注射是一项费力且效率低下的操作,因而限制了其在高通量检测中的应用。
近年来,肠道类器官的研究进展已提供了建立二维单层类器官培养物的方法,从而暴露其顶面14,15,16,17。这些由类器官衍生的单层细胞能够重现肠道上皮的关键体内特性。它们具有生理相关的细胞组成,包含分化细胞和干细胞群体,并可模拟隐窝-绒毛轴上的细胞多样性。由于保留了顶-基底极性,这些单层结构固有的特性使得顶面和基底侧均易于接触,且培养基更换可模拟肠道内的流体流动和废物清除,从而实现长期培养。这些特点使类器官衍生的单层细胞适用于研究管腔内相互作用,并为上皮屏障完整性和通透性研究提供了更优越的模型18,19。
研究表明,上皮细胞极性在MDCK球状体中受到细胞外基质(ECM)蛋白的严格调控20,21,最近在人肠道类器官中也发现类似现象22。去除ECM组分或抑制介导细胞-基质连接的整合素受体,会导致肠道类器官出现极性反转,使上皮的顶面暴露于培养基中22。这一方法引起了感染性疾病研究领域科研人员的关注,因为它能够在三维条件下方便地接触上皮顶面,并适用于高通量检测。本文介绍了一种基于Amieva实验室近期研究工作22的改进方案,可促进生成能快速暴露其顶面的三维肠道类器官。同时,我们还概述了一种可高效、可重复地由肠道类器官衍生出二维肠上皮单层细胞的实验方案。
方案
人肠道类器官培养物的建立方法如其他文献所述23。类器官的培养维持按照肠道类器官扩增培养基(参见材料表)的产品信息表(PIS)中所述方法进行。
1. 肠类器官极性的翻转
注意:本节将概述三维肠道类器官极性翻转的实验方案。该方案详细介绍了在培养板中悬浮培养、建立具有暴露顶膜表面的极化类器官的具体步骤。本方案旨在作为终点检测使用,尽管类器官在此构型下可维持超过两周,并保留少量干细胞群体,使其在传代后能够重新形成顶膜向内的类器官结构。
- 使用抗粘附溶液包被培养器皿和试管
注意:为了最大限度地增加顶端朝外的肠道类器官数量并防止其非特异性黏附于培养器皿,通常需要预先包被培养器皿。下述步骤描述了使用抗黏附溶液对培养器皿和塑料器皿进行包被的方法。- 按照以下步骤包被将在实验方案悬浮部分使用的培养板。
- 向24孔组织培养板的每个孔中加入0.5 mL抗黏附溶液。
- 轻轻晃动培养板,使溶液均匀覆盖孔的表面及孔壁。
- 将培养板在1,300 x g条件下离心 g 10 分钟。
- 使用移液器或1 mL移液管从每个孔中移除抗粘附溶液。
- 用含15 mM HEPES的DMEM/F-12培养基(DMEM/F12)洗涤各孔,每孔1 mL。
- 向每个洗涤后的孔中加入 0.5 mL DMEM/F-12,将培养板置于 37 °C、5% CO₂ 条件下保存2 直至使用。
注意:若不立即使用,包被好的酶标板可在培养箱中保存至少1周。
- 按照以下步骤包被本方案中使用的15 mL离心管。
- 向15 mL离心管中加入4 mL抗黏附溶液。
- 轻轻旋动试管,使溶液均匀分布在管壁表面。
- 将离心管在1,300 x g 10分钟。
- 从管中移除抗粘附溶液。
- 用5 mL DMEM/F-12洗涤离心管1次,并吸除DMEM/F-12。离心管现可使用。
注意:若不立即使用,加入5 ml DMEM/F12,于4 °C保存。包被的试管可在4 °C条件下保存至少一周。
- 按照以下步骤包被将在实验方案悬浮部分使用的培养板。
- 通过悬浮培养实现肠道类器官的极性翻转
注意:以下步骤概述了先前在标准ECM圆顶条件下培养的肠道类器官的翻转过程。此处描述的实验流程适用于24孔板中的一个孔。若使用其他培养器皿,请相应调整体积。- 小心移除并弃去每个含有类器官的孔中的培养基,注意不要破坏基底膜细胞外基质 类器官。在进行下一步之前,确保类器官的直径为150–250 µm(通常在第3–5天)。 开始倒置程序。
- 每孔加入1 mL预冷的解离溶液。
- 室温(15-25 °C)孵育1分钟。
- 向一个15 mL离心管中加入至少2 mL抗黏附溶液,用于包被塑料枪头。
- 向一个15 mL离心管中加入至少2 mL DMEM/F-12,用于洗涤经抗黏附溶液冲洗过的塑料枪头。
- 用抗黏附溶液包被1 mL移液枪头,从1.2.4步骤中的含抗黏附溶液的试管中吸取1 mL溶液,重复吹打三次。
- 用预冷的DMEM/F-12洗涤枪头,从1.2.5步骤中的DMEM/F-12溶液中吸取1 mL,重复吹打3次。
- 使用包被的枪头,通过缓慢移液小心地将类器官从基质胶中分离。注意不要破坏或 将类器官进行破碎处理。
- 将类器官悬液转移至经抗黏附溶液处理的培养板(来自步骤1.1.1)。
- 将培养板置于4 °C摇床中振荡30分钟,可使用旋涡摇床,转速为70 rpm。
注意:避免剧烈振荡,例如涡旋震荡样本,因为这可能导致类器官破碎。气泡和泡沫的形成可能是剧烈振荡的迹象。 - 30分钟后,取出培养板。使用经抗黏附溶液处理的1 mL移液枪头,轻轻吹打溶液上下混合。
- 将培养板置于4 °C摇床中振荡15分钟,可使用旋涡摇床,转速为70 rpm。
- 移除培养板,静置让类器官依靠重力沉降(室温下1-2分钟)。在显微镜下观察培养板,确认类器官是否已沉淀。
注意:避免剧烈震荡培养板,以免导致已沉降的类器官重新悬浮。 - 类器官沉降后,尽可能吸除消化液,并加入1.5 mL DMEM/F-12进行洗涤。
- 让类器官沉淀,并尽可能移除上清液。重复洗涤步骤一次。
注意:在进行任何洗涤步骤之前,需在显微镜下观察培养板,以确认类器官是否已充分沉降。 - 尽可能吸除 DMEM/F-12,加入 0.5 mL 肠类器官扩增培养基。置于 37 °C、5% CO₂ 条件下培养。2.
- 次日,将培养板倾斜25至30度角,沿孔壁吸除部分培养基,进行部分换液。小心移除0.4 mL培养基,避免吸走悬浮的类器官。
- 加入0.4 mL 肠类器官扩增培养基。在37 °C、5% CO₂条件下培养。2 3天。
注意:3 天后,大多数类器官应具有顶端朝外的极性,但可能已形成较大的聚集体。 - 如果已形成聚集体,使用1 mL移液枪(枪头经抗黏附溶液处理,处理方法见步骤1.2.6和1.2.7)反复吹打20次以剪切聚集体,吹打过程中需将枪头末端抵住培养板底部。
- 将培养板置于 37 °C、5% CO₂ 条件下培养2 第二天使用肠类器官扩增培养基(如1.2.17节所述)进行完全换液。
- 培养2天后(悬浮培养第5天),可将顶膜朝外的肠类器官用于后续实验。
2. 由三维肠道类器官建立肠道细胞二维单层及气液界面(ALI)培养体系
注意:本节将概述从肠道类器官生成二维单层培养物的实验方案。该技术的优势在于可在含有细胞培养膜插件的组织培养板中建立具有暴露顶面的融合性、极化单层培养体系。尽管单层细胞在浸没式单层培养条件下即开始分化,但在达到融合状态后,通过转换为气液界面(ALI)培养可进一步促进其分化。单层培养及后续的气液界面培养方案均旨在作为终点检测使用;虽然单层培养物仍维持少量干细胞群体,但一旦建立后,两者均无法高效地进行传代和扩增。
- 为肠道单层细胞培养制备培养基和培养板
- 按照制造商提供的说明配制用于单层培养的肠道类器官分化培养基(参见 材料清单)。仅将Y-27632添加至1周内使用的培养基中,终浓度为10 µM。若不立即使用,应于4 °C保存。
- 将胰蛋白酶-EDTA(0.05%)预热至37 °C。
- 在接种单层培养物前至少 2 小时,按如下方法制备 2% ECM 包被溶液。
- 在冰上解冻ECM,按1:50比例加入冷的无菌PBS,配制2%溶液。准备足够量的溶液,以便向每个6.5 mm(0.33 cm²)Transwell小室的上室加入100 µL。2) 细胞培养膜插件,根据较大或较小的培养体系相应调整体积。
- 每孔加入 100 µL,将每块板在 37 °C、5% CO₂ 条件下孵育2 直到使用前(至少在接种前2小时)。
- 用于单层培养和生成的肠道类器官解离
- 从培养箱中取出适量的类器官培养孔。参考 表1 有关推荐的各类培养器皿收获孔数。
- 吸除类器官培养物中的全部培养基,注意不要破坏基质胶穹顶结构。
- 向每个孔中加入1 mL解离液。
- 在室温(15–25 °C)孵育至少1分钟。
- 使用1 mL移液器,上下剧烈吹打以破坏类器官的穹顶结构并释放类器官。
- 将每个孔中悬浮的类器官汇集至一个15 mL锥形管中。在室温下轻轻振荡或摇动孵育10分钟。此步骤可将用于接种多个孔的类器官合并于同一管中,每管体积最多可达10 mL。
- 以 200 x 离心 g 4 °C下离心5分钟。
- 移除并弃去上清液。加入5 mL冰冻的DMEM/F-12重悬类器官。
- 混合后再次以200 x g离心 g 4 °C 下离心 5 分钟。
- 吸除上清液,尽可能去除干净,注意不要扰动沉淀。
注意:部分残留的细胞外基质可能仍存在于沉淀中;然而,这不应显著影响类器官的解离。 - 加入1 mL预热(37 °C)的0.05%胰蛋白酶-EDTA溶液重悬类器官,充分混匀以确保均匀悬浮。若细胞数量较多或存在大量细胞外基质,可额外添加最多1 mL胰蛋白酶-EDTA溶液。
- 37 °C 下孵育 5–10 分钟。
- 用1 mL移液器充分混匀,尽可能将类器官打散。类器官应完全解离为单个细胞或小片段。若在充分吹打后仍有较大片段或完整类器官存在,需在37 °C下继续用胰蛋白酶-EDTA孵育3–5分钟。
注意:使用胰蛋白酶-EDTA 消化时间不得超过 20 分钟,否则可能导致细胞活力下降。 - 当类器官充分解离后,加入等体积的DMEM/F-12(例如,每1 mL胰蛋白酶-EDTA加入1 mL DMEM/F-12),并上下吹打充分混匀。在此步骤中,通过向DMEM/F-12中加入10%胎牛血清(FBS)以灭活胰蛋白酶-EDTA。
- 200 x g 离心碎片 g 在 2-8 °C 下离心 5 分钟。
- 如果解离后的类器官无法形成沉淀,这种情况较为常见,可能是由于解离细胞释放的黏液积聚所致。此时,应通过反复吹打充分混匀细胞,然后以200 x g再次离心。 g 在 2-8 °C 下离心 5 分钟。
- 小心地尽可能吸除上清液,仅留下细胞沉淀。
- 将细胞重悬于每孔100 µL的肠道类器官分化培养基(含10 µM Y-27632)中以进行接种。根据孔径大小适当调整体积。
- 从培养箱中取出包被好的培养板(步骤 3.1.4 中制备),并移除每孔中的多余细胞外基质。
- 向每个细胞培养小室的上室中加入 100 µL 细胞悬液。
- 向每个细胞培养插件的下层小室中加入 500 µL 肠类器官分化培养基。
- 在37 °C、5% CO2条件下孵育。
- 每隔2至3天更换上室和下室中的培养基。单层细胞培养通常在7天内达到汇合,往往在2至3天内即可达到汇合。
- 建立气液界面(ALI)培养
注意:如有需要,可通过将浸没式肠上皮单层培养转化为气液界面(ALI)培养,进一步促进细胞分化。该培养方法可增加分化细胞类型的数量,尤其是分泌型谱系细胞,如杯状细胞和肠内分泌细胞。- 按照上述步骤 2.2.1–2.2.23 所述方法在细胞培养小室中建立单层培养,并维持该培养物达到至少 4 天的 100% 汇合度。
- 为建立气液界面(ALI)培养,移除上室和下室中的培养基。向下室中加入新鲜的肠道类器官分化培养基(含Y-27632),上室保持为空。
- 37 °C、5% CO₂ 条件下孵育2.
- 每隔2-3天更换下室培养基,使单层细胞至少分化1周。
- 如有需要,用无菌 PBS 冲洗上室以去除多余的黏液积聚。
在这些条件下,气液界面培养可维持至少2-3周。
结果
类器官由活检样本按照先前描述的方案23以及肠类器官扩增培养基的产品信息单(参见材料表)进行制备。图1A,左图展示了在类器官扩增培养基中以穹顶状培养的肠类器官表型。在此培养条件下,类器官呈现囊状形态,其特征是由一层薄(10–25 µm)的上皮包裹形成管腔(图1A,右图)。在此阶段,肠上皮的顶端朝向管腔,而基底外侧则与周围的细胞外基质接触。当大多数类器官达到所需大小时,去除细胞外基质,并将类器官转为悬浮培养。细胞与细胞外基质连接的丧失会触发类器官发生极性翻转过程,导致类器官上皮极性逆转,使上皮的顶端暴露于培养基中,而基底外侧则被内化。
在某些培养条件下,悬浮培养的类器官会发生聚集和融合,这种现象在培养的前3天尤为明显(图1B,左图)。采用剪切法可使类器官脱离并继续培养数天,且再聚集程度极低(图1B,右图)。
在细胞外基质(ECM)滴中培养的肠类器官持续扩张(图1C,左图),并在围绕管腔的上皮基底侧自发形成次级出芽结构,形似小型隐窝(图1C,右图)。在同一时间点,未添加细胞外基质、悬浮培养5天的类器官仍可继续发育(图1D,左图)。极性翻转的特征表现为围绕类器官核心的上皮增厚(30–40 µm),并呈现出多种形态:细长形(图1D,右图和补充图1A)、囊状(补充图1B)以及不规则形(补充图1C)。此类变化常伴随类器官内部管腔空间缩小,从而影响其整体大小。
还可通过分析肠道特异性极性标志物的表达来确认高效的翻转。顶端朝外的肠道类器官中,细胞核明显定位于类器官腔内,如4′,6-二脒基-2-苯基吲哚(DAPI)信号所示。顶端标志物(如VILLIN(图2A)和ZO-1(图2B))的表达位于上皮外侧,即暴露于培养基的一侧。这种定位与在细胞外基质(ECM)中培养的肠道类器官所观察到的情况形成鲜明对比。嵌入细胞外基质的类器官经细胞核(DAPI)、VILLIN(图2C)和ZO-1(图2D)染色后显示,其顶面朝向类器官腔内,表现出典型的顶-基底极性。
必须完全去除细胞外基质(ECM),才能实现肠道类器官的有效极性翻转。偶尔可在悬浮培养中观察到部分被ECM残留物包围的类器官,呈现囊状形态,提示上皮极性翻转失败(补充图2A)。对这些类器官进行免疫荧光染色分析,结果显示细胞核(DAPI)位于上皮的基底外侧,而ZO-1表达于面向类器官腔内的顶端区域(补充图2B),证实不完全的ECM去除会导致顶-基底极性的保留,其情况与嵌入ECM中的类器官相似。
建立肠单层培养物的实验方案在接种后7天内可形成融合的单层培养物,通常在接种后仅2-3天即可达到融合状态。成功的关键因素之一是用于接种单层的细胞数量和质量。图3A,左图展示了在6.5 mm细胞培养膜插入物中接种约150,000个细胞的理想密度示例。该数值并非固定不变,可能因供体及原始类器官培养物的质量而有较大差异;因此,应根据这些变量优化接种细胞数量。若接种密度过低或细胞质量较差(图3A,右图),可能导致细胞附着不足,无法形成融合的单层培养物。
单层细胞形成后(图3B),细胞之间会形成紧密连接,呈现出鹅卵石样外观(图3B,左图)。如果未能形成融合的单层细胞(图3B,右图),则单层细胞通常表现为“斑块状”,即存在部分细胞贴壁质量良好的区域,但这些区域之间存在较大间隙。此类培养物无法在基底侧与顶侧腔室之间形成有效的屏障功能,因此不适用于所述的检测实验。融合的单层细胞会将其含有VILLIN的刷状缘朝向上皮的顶侧,细胞核则位于细胞的基底外侧极(图4B)。相邻细胞之间会形成由多种蛋白质复合物(包括ZO-1)构成的细胞间连接(图4B)。这些连接结构的存在是上皮细胞培养物实现屏障功能的关键。
一旦细胞达到融合状态,在气液界面(ALI)培养条件下,细胞会进一步分化(图3C)。此时可见少量圆形的杯状细胞,单层细胞结构也呈现出更为褶皱的形态。尽管在浸没式培养的上皮中也存在杯状细胞(图4A),但在ALI分化后其数量更为显著。上皮内的杯状细胞会分泌黏液,导致上皮表面呈现模糊的外观。通过针对分泌的黏蛋白MUC2进行染色,可观察到杯状细胞及其分泌的黏液(图4A、C和D);此外,通过检测MUC2表达水平的升高,可定量评估杯状细胞数量的增加(补充图3A)。这种凝胶状的黏液层无需去除,其会附着在上皮表面,并在多次洗涤后仍保留。若确需清除,可用黏液溶解剂(如10 mM N-乙酰半胱氨酸或50 µg/mL DTT)洗涤培养物以去除过量黏液。除了杯状细胞数量增加外,ALI培养还能促进肠内分泌细胞(以CHGA表达为标志)(补充图3B)和成熟肠吸收细胞(以KRT20表达为标志)(补充图3C)的比例上升。
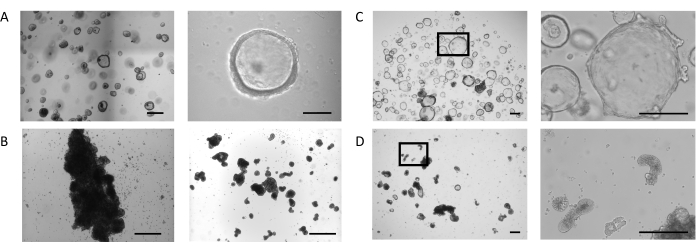
图1:顶端朝外肠类器官生成的各个阶段。(A)第4天具有理想大小类器官的类器官穹顶代表性图像(左图,比例尺 = 500 µm)。类器官壁较薄,具有开放的管腔结构(右图,比例尺 = 100 µm)。(B)悬浮培养3天后出现广泛聚集的孔板代表性图像(左图,比例尺 = 200 µm)。剪切后团块碎片的图像(右图,比例尺 = 200 µm)。(C)第7天类器官穹顶中肠类器官的代表性图像。类器官呈现扩张的管腔,并在上皮基底外侧形成小芽状结构(左图20倍放大,右图对标注区域进行100倍放大,比例尺 = 200 µm)。(D)去除细胞外基质(ECM)并继续悬浮培养5天后的肠类器官代表性图像。类器官呈现致密形态,上皮增厚,并将顶端面向培养基暴露(左图20倍放大,右图对标注区域进行100倍放大,比例尺 = 200 µm)。请点击此处查看该图的放大版本。
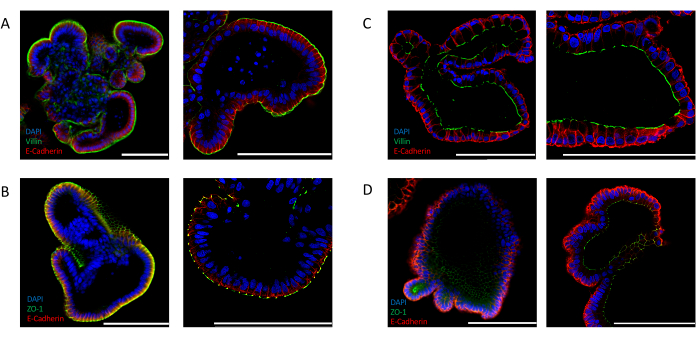
图 2:肠道类器官中细胞极性标志物的免疫荧光染色。顶端朝外(A,B)和顶端朝内(C,D)取向的肠道类器官分别用顶端标志物 ZO-1 和 VILLIN,以及上皮标志物 E-CADHERIN(红色)进行染色。DAPI(蓝色)用于显示细胞核。左侧面板显示 25 倍放大下的图像,右侧面板显示不同类器官在 63 倍放大下的图像(仅面板 C 显示同一类器官在 25 倍和 63 倍下的图像)。(A) 顶端朝外的肠道类器官经 VILLIN(绿色)和 E-CADHERIN(红色)染色,显示其顶端面向培养基暴露。(B) 顶端朝外的肠道类器官经 ZO-1(绿色)和 E-CADHERIN(红色)染色,显示紧密连接的存在以及顶-基底极性的逆转。(C) 包埋于 Matrigel 中的肠道类器官经 VILLIN(绿色)和 E-CADHERIN(红色)染色,显示其顶端面向类器官腔内。(D) 包埋于 Matrigel 中的肠道类器官经 ZO-1(绿色)和 E-CADHERIN(红色)染色,显示面向类器官腔内的顶端紧密连接。(比例尺 = 100 µm)。类器官采用免疫荧光染色,并依据已发表的方案进行成像24,25。请点击此处查看此图的高清版本。
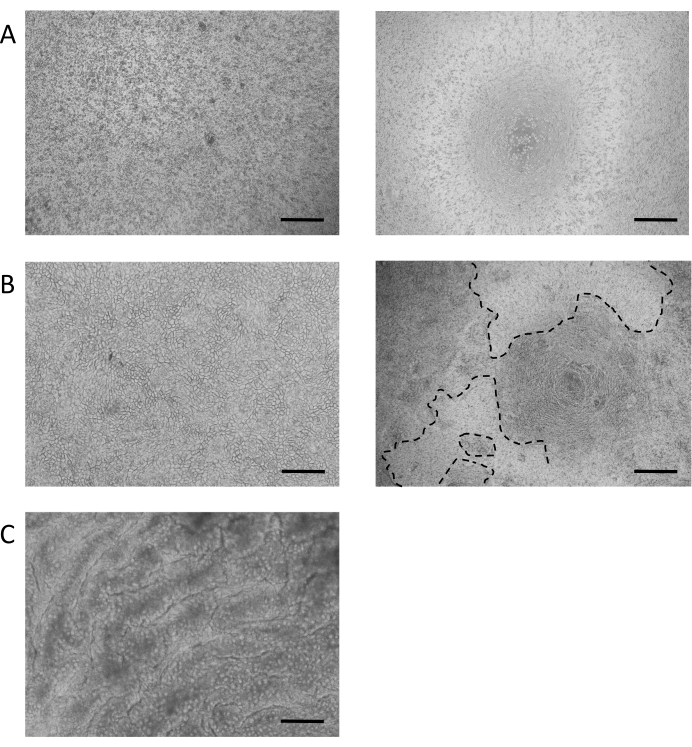
图3建立肠道单层培养体系 (A) 使用 0.05% 胰蛋白酶-EDTA 处理后的三维类器官代表性图像。类器官被解离为单细胞或小细胞团,以准备接种单层培养。左图:单层培养中适宜接种密度的示例,每约 150,000 个细胞 100 µL 在6.5 mm细胞培养膜插件上。右图:接种密度不足的示例 <每50,000个细胞 100 µL 在6.5 mm细胞培养膜插件上。B代表性明场图像显示浸没培养的单层细胞。左图:100% 汇合的单层细胞,呈现典型的铺路石样形态。右图:约 50% 汇合的单层细胞。单层细胞中的间隙(以虚线标示)随着时间推移,因肠干细胞持续增殖而逐渐闭合。C) 分化7天后ALI培养的代表性明场图像。(比例尺 = 200 µm). 请点击此处以查看此图的放大版本。
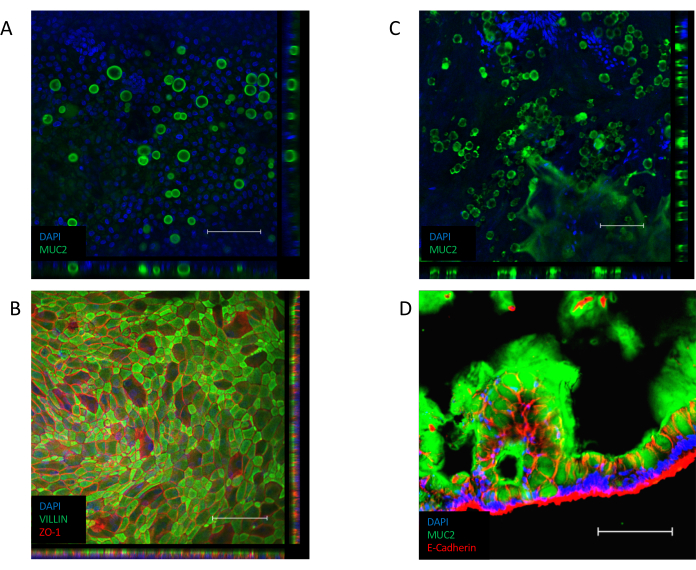
图4:单层培养物中分化细胞标志物的免疫荧光染色。(A)黏蛋白MUC2在浸没式单层培养物中的免疫荧光染色Z堆栈图像,显示单层培养物中存在杯状细胞(绿色 = MUC2,蓝色 = DAPI)。(B)浸没式单层培养物的免疫荧光染色Z堆栈图像。VILLIN在上皮顶端的染色(绿色)表明刷状缘的存在,ZO-1染色(红色)表明细胞间紧密连接的存在(蓝色 = DAPI)。(C)气液界面(ALI)分化单层培养物中黏蛋白MUC2的免疫荧光染色Z堆栈图像,显示ALI单层培养物中杯状细胞数量显著增多(绿色 = MUC2,蓝色 = DAPI)。(D)ALI分化单层培养物的冷冻切片,经MUC2(绿色)和E-CADHERIN(红色)染色,显示上皮中存在杯状细胞,并沿单层培养物顶端侧分泌黏液。(比例尺 = 200 µm)。单层培养物采用已发表的方案进行免疫荧光染色并成像26,27。请点击此处查看此图的放大版本。
补充图1:悬浮培养条件下顶面朝外肠类器官的表型谱。 (A,B,C)在去除细胞外基质后第5天,悬浮培养中维持的肠类器官形态的额外代表性图像。类器官极性已发生反转,结构变得更加致密,上皮增厚,且类器官的顶面朝向外侧。类器官可呈现多种形态:细长形(A)、囊状(B)和不规则形(C)。(比例尺 = 100 µm)。请点击此处下载该文件。
补充图2:在悬浮培养中,当存在残留的基底膜基质培养基时,肠类器官无法实现极性翻转。(A)ECM去除不完全且类器官极性翻转失败的代表性图像。类器官周围仍残留Matrigel,导致上皮极性维持为顶膜向内(apical-in)的方向。类器官呈现囊状形态,由一层薄的上皮包围管腔(比例尺 = 200 µm)。(B)在悬浮培养条件下观察到的未发生极性翻转的类器官代表性图像。细胞核(蓝色 = DAPI)和E-CADHERIN(红色)位于基底外侧,ZO-1(绿色)表达于面向类器官管腔的顶膜侧(比例尺 = 100 µm)。请点击此处下载该文件。
补充图3:单层培养中分化细胞标志物的基因表达。 (A,B,C)在肠道类器官分化培养基中培养的浸没式和气液界面(ALI)单层培养物中,MUC2、CHGA 和 KRT20 的表达水平,相对于在肠道类器官扩增培养基中培养的三维类器官,通过qPCR测定。建立浸没式单层培养可提高每种分化细胞标志物的表达;然而,以气液界面培养方式进行分化可使各标志物的表达呈指数级增加。误差线 = ± 标准误。 请点击此处下载该文件。
| 单层培养耗材 | 待收获肠道类器官的孔数(每孔接种50 µL类器官滴) |
| 6.5 mm Transwell 插件 | 1 - 2 孔 |
| 12 mm Transwell 插件 | 3 - 4 孔 |
| 6孔板 | 6 - 8 孔 |
| 24孔板 | 3 - 4 孔 |
| 96孔板 | 1 - 2 孔 |
表1:不同培养器皿中肠类器官收获所需的孔数
讨论
上皮类器官模型已成为强大的研究平台,可用于模拟组织结构、疾病进展以及筛选治疗手段23,28,29。类器官显微注射技术进一步增强了类器官在感染性疾病建模中的能力,因为它允许病原体与宿主上皮细胞的顶侧直接相互作用。近年来显微注射技术的进步已优化了类器官的注射速度,最高可达每小时注射90个类器官。注射后的类器官仍能维持其屏障功能,且腔内低氧环境有利于专性厌氧菌在注射后的存活30。然而,研究发现同一孔中类器官群体存在异质性,这种差异体现在大小和形态31、关键基因的表达水平32以及增殖速率33等方面。同一类器官群体对化合物(如佛司可林和PGE2)或霍乱毒素的反应差异也已有报道28,33。这些结果凸显了在研究中需要使用大量类器官的必要性,同时也限制了管腔注射技术的广泛应用。
传统的类器官培养依赖于将类器官包埋在水凝胶中进行培养和扩增。然而,水凝胶可能限制物质扩散并产生浓度梯度,从而增加类器官的异质性34。此外,已有文献报道存在较高的变异性,这种变异性不仅存在于不同培养批次和供体之间,也存在于相同的实验条件下。供体来源、水凝胶的生化特性以及类器官作为培养系统本身固有的异质性,都是可能增加实验变异性并限制下游应用结果可重复性的重要因素。本文所描述的两种方法均可简便地暴露上皮细胞的顶侧,从而通过直接向培养基中添加目标化合物或病原体来模拟其作用。减少水凝胶的使用可降低由技术性误差带来的实验变异性。
顶膜朝外的肠道类器官保留了类器官模型系统的关键特征,与二维单层培养相比,其可扩展性更适用于高通量检测。然而,由于类器官保持了三维结构,基底侧的可及性受限,可能阻碍需要同时接触两侧的研究。
我们已证明,肠道类器官的极性翻转依赖于细胞外基质(ECM)的有效且彻底的去除,同时保持类器官结构的完整性。使用解离溶液去除ECM以及使用抗黏附溶液防止类器官黏附于塑料器皿,均有助于改进Co, J. Y.及其同事22所发表方案的整体效率,特别是在生成用于下游应用的顶膜外翻类器官数量方面。
此外,我们观察到,当类器官直径小于250 µm时,本方案可实现更高效的类器官翻转;而使用较大的类器官可能导致类器官产出量减少,这是由于移液操作引起的碎片化所致。使用宽口吸头(如材料表中所列)可能有助于较大类器官的处理。然而,由于施加的机械力较低,宽口吸头在细胞外基质(ECM)解离方面效果不如标准吸头。因此,在处理较大类器官时,可能需要重复步骤1.2.9–1.2.11,以充分破坏并完全清除所有ECM残留物。
悬浮培养的类器官可存活至少2周。在此期间之后,我们观察到形态学变化以及细胞死亡数量增加。顶端朝外型类器官中存在增殖细胞22,这使得能够重建顶端朝内型肠道类器官培养体系。该过程可通过将顶端朝外型类器官解离为单个细胞,并将其包埋于细胞外基质(ECM)中,使用肠道类器官扩增培养基进行培养来实现。
在描述悬浮培养中建立肠道类器官的实验方案时,常遇到的一个局限性是形成大块聚集体。这会影响多个变量,如效率、形态特征的可重复性、化合物通透性以及旁分泌信号传导。与Co, J. Y.及其同事发表的方案类似,我们在此证实,在悬浮培养3天后,至少97%的悬浮类器官实现了极性翻转,且未发生剪切损伤。然而,与该文献不同的是,我们引入了一个机械解离步骤,以减少大块聚集体的形成并提高产量。由于该操作可能损伤类器官的上皮层,我们额外延长了2天的类器官孵育时间,以确保上皮层完全恢复,从而为后续应用提供高质量的培养物。采用培养摇床或旋转烧瓶进行持续振荡,可能有助于减少类器官融合事件、最小化碎片化并增强氧合。这些替代方法可延长培养时间、减少细胞死亡,并促进顶膜外翻型肠道类器官的进一步分化。
与极性倒转的类器官相比,由类器官衍生的二维单层培养具有若干优势和局限性。本文所述方案可快速建立融合的单层细胞培养体系,通常在不到7天内完成,并可选择长期维持培养达较长时间(最长可达10周)。本方案及所用培养基还可高效诱导大量细胞分化,而此类分化能力在其他类器官衍生的单层培养体系中并不总是存在16。在细胞培养小室膜上建立单层结构,可同时接触上皮的顶膜和基底外侧膜,因此特别适用于屏障完整性和上皮转运研究。这种简化的可及性也使其更适用于感染和药物处理研究。此外,这些培养物保留了供体特有的多种特征,因而适用于个体化患者研究。气液界面(ALI)培养方法还有助于分泌型和吸收型细胞共同构成更具功能性的上皮层,从而更真实地模拟人肠上皮结构。这些培养体系的相对稳定性也使其能够长期维持,为长期研究提供了可能。然而,该方法的局限性在于需要大量细胞才能建立融合的单层结构,且必须维持完全融合状态,才能实现顶膜腔室与基底外侧腔室之间的功能性分隔。此外,在三维类器官培养中可模拟的隐窝样结构特征,在建立单层培养后也会丧失。尽管如此,该培养体系实验操作便捷,且易于接触上皮的顶膜和基底外侧膜,因而成为研究肠道生理学的有力工具。
披露
G. S.、W. C. 和 S. S. 是位于剑桥(英国)的 STEMCELL Technologies Ltd. 的员工。M. S.、F. E.、S. L.、A. E. 和 R. K. C. 是位于温哥华(加拿大)的 STEMCELL Technologies Inc. 的员工。
致谢
本研究由“地平线2020”资助项目OrganoVIR 812673“用于病毒研究的类器官——一项创新性培训网络项目(ITN)”资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 抗黏附冲洗液 | STEMCELL Technologies Inc. | 7010 | 用于包被培养器皿。正文中称为抗黏附溶液。 |
| 15 mL 锥形离心管 | STEMCELL Technologies Inc. | 38009 | |
| Corning Matrigel 基质(生长因子减少型,无酚红) | Corning | 356231 | 用于类器官系的维持与建立的细胞外基质(ECM)。 |
| Costar 6.5 mm 或 12 mm Transwell 小室 | STEMCELL Technologies Inc. | 38023/38024 | 用于二维单层培养。 |
| Costar 24 孔 平底组织培养处理板 | STEMCELL Technologies Inc. | 38017 | 用于类器官系的维持与建立。 |
| D-PBS(不含 Ca++ 和 Mg++) | STEMCELL Technologies Inc. | 37350 | 用于洗涤 |
| 二甲基亚砜(DMSO) | Millipore Sigma | D2650 | 小分子的重悬 |
| 含 15 mM HEPES 的 DMEM/F-12 培养基 | STEMCELL Technologies Inc. | 36254 | 用于洗涤 |
| 温和细胞解离试剂(GCDR) | STEMCELL Technologies Inc. | 7174 | 用于去除 Matrigel。正文中称为解离试剂。 |
| IntestiCult 类器官生长培养基(人源) | STEMCELL Technologies Inc. | 6010 | 用于类器官系在分化前的扩增。正文中称为肠道类器官扩增培养基。 |
| IntestiCult 类器官分化培养基(人源) | STEMCELL Technologies Inc. | 100-0214 | 用于单层建立及三维分化。正文中称为肠道类器官分化培养基。 |
| 胰蛋白酶-EDTA(0.05%) | STEMCELL Technologies Inc. | 7910 | 用于二维单层的建立。 |
| Y-27632 | STEMCELL Technologies Inc. | 72302 | RHO/ROCK 通路抑制剂,可抑制 ROCK1 和 ROCK2。用于二维单层的建立。 |
| 宽口吸头 | Corning | #TF-1005-WB-R-S | 用于类器官操作 |
参考文献
- Gehart, H., Clevers, H. Tales from the crypt: new insights into intestinal stem cells. Nature Reviews Gastroenterology and Hepatology. 16 (1), 19-34 (2019).
- Schneeberger, K., Roth, S., Nieuwenhuis, E. E. S., Middendorp, S. Intestinal epithelial cell polarity defects in disease: lessons from microvillus inclusion disease. Disease Models & Mechanisms. 11 (2), (2018).
- Klunder, L. J., Faber, K. N., Dijkstra, G., Van Ijzendoorn, S. C. D. Mechanisms of cell polarity - Controlled epithelial homeostasis and immunity in the intestine. Cold Spring Harbor Perspectives in Biology. 9 (7), 0227888(2017).
- DiMarco, R. L., Hunt, D. R., Dewi, R. E., Heilshorn, S. C. Improvement of paracellular transport in the Caco-2 drug screening model using protein-engineered substrates. Biomaterials. 129, 152-162 (2017).
- Sun, H., Chow, E. C., Liu, S., Du, Y., Pang, K. S. The Caco-2 cell monolayer: usefulness and limitations. Expert Opinion on Drug Metabolism & Toxicology. 4 (4), 395-411 (2008).
- Clevers, H. Modeling development and disease with organoids. Cell. 165 (7), 1586-1597 (2016).
- Dutta, D., Heo, I., Clevers, H. Disease modeling in stem cell-derived 3D organoid systems. Trends in Molecular Medicine. 23 (5), 393-410 (2017).
- Zhang, Y. -G., Wu, S., Xia, Y., Sun, J. Salmonella-infected crypt-derived intestinal organoid culture system for host-bacterial interactions. Physiological Reports. 2 (9), 12147(2014).
- Nigro, G., Rossi, R., Commere, P. -H., Jay, P., Sansonetti, P. J. The cytosolic bacterial peptidoglycan sensor Nod2 affords stem cell protection and links microbes to gut epithelial regeneration. Cell Host & Microbe. 15 (6), 792-798 (2014).
- Heo, I., et al. Modelling Cryptosporidium infection in human small intestinal and lung organoids. Nature Microbiology. 3 (7), 814-823 (2018).
- Bartfeld, S., et al. In vitro expansion of human gastric epithelial stem cells and their responses to bacterial infection. Gastroenterology. 148 (1), 126-136 (2015).
- Leslie, J. L., et al. Persistence and toxin production by Clostridium difficile within human intestinal organoids result in disruption of epithelial paracellular barrier function. Infection and Immunity. 83 (1), 138-145 (2015).
- Pleguezuelos-Manzano, C., et al. Mutational signature in colorectal cancer caused by genotoxic pks(+) E. coli. Nature. 580 (7802), 269-273 (2020).
- Fernando, E. H., et al. A simple, cost-effective method for generating murine colonic 3D enteroids and 2D monolayers for studies of primary epithelial cell function. American journal of physiology. Gastrointestinal and Liver Physiology. 313 (5), 467-475 (2017).
- Moon, C., VanDussen, K. L., Miyoshi, H., Stappenbeck, T. S. Development of a primary mouse intestinal epithelial cell monolayer culture system to evaluate factors that modulate IgA transcytosis. Mucosal Immunology. 7 (4), 818-828 (2014).
- Wang, Y., et al. Long-term culture captures injury-repair cycles of colonic stem cells. Cell. 179 (5), 1144-1159 (2019).
- Noel, G., et al. A primary human macrophage-enteroid co-culture model to investigate mucosal gut physiology and host-pathogen interactions. Scientific Reports. 7, 45270(2017).
- VanDussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Thorne, C. A., et al. Enteroid monolayers reveal an autonomous WNT and BMP circuit controlling intestinal epithelial growth and organization. Developmental Cell. 44 (5), 624-633 (2018).
- Wang, A. Z., Ojakian, G. K., Nelson, W. J. Steps in the morphogenesis of a polarized epithelium: I. Uncoupling the roles of cell-cell and cell-substratum contact in establishing plasma membrane polarity in multicellular epithelial (MDCK) cysts. Journal of Cell Science. 95 (1), 137-151 (1990).
- Wang, A. Z., Ojakian, G. K., Nelson, W. J. Steps in the morphogenesis of a polarized epithelium: II. Disassembly and assembly of plasma membrane domains during reversal of epithelial cell polarity in multicellular epithelial (MDCK) cysts. Journal of Cell Science. 95 (1), 153-165 (1990).
- Co, J. Y., et al. Controlling epithelial polarity: a human enteroid model for host-pathogen interactions. Cell Reports. 26 (9), 2509-2520 (2019).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Dodt, H. -U., et al. Ultramicroscopy: three-dimensional visualization of neuronal networks in the whole mouse brain. Nature Methods. 4 (4), 331-336 (2007).
- Fujii, M., et al. Human intestinal organoids maintain self-renewal capacity and cellular diversity in niche-inspired culture condition. Cell Stem Cell. 23 (6), 787-793 (2018).
- Crowley, S. M., et al. Intestinal restriction of Salmonella Typhimurium requires caspase-1 and caspase-11 epithelial intrinsic inflammasomes. PLoS Pathogens. 16 (4), 1008498(2020).
- Rees, W. D., et al. Enteroids derived from inflammatory bowel disease patients display dysregulated endoplasmic reticulum stress pathways, leading to differential inflammatory responses and dendritic cell maturation. Journal of Crohn's & Colitis. 14 (7), 948-961 (2020).
- Dekkers, J. F., et al. A functional CFTR assay using primary cystic fibrosis intestinal organoids. Nature Medicine. 19 (7), 939-945 (2013).
- Almeqdadi, M., Mana, M. D., Roper, J., Yilmaz, ÖH. Gut organoids: mini-tissues in culture to study intestinal physiology and disease. American Journal of Physiology. Cell Physiology. 317 (3), 405-419 (2019).
- Williamson, I. A., et al. A high-throughput organoid microinjection platform to study gastrointestinal microbiota and luminal physiology. Cellular and Molecular Gastroenterology and Hepatology. 6 (3), 301-319 (2018).
- Kassis, T., Hernandez-Gordillo, V., Langer, R., Griffith, L. G. OrgaQuant: human intestinal organoid localization and quantification using deep convolutional neural networks. Scientific Reports. 9 (1), 12479(2019).
- Gracz, A. D., et al. A high-throughput platform for stem cell niche co-cultures and downstream gene expression analysis. Nature Cell Biology. 17 (3), 340-349 (2015).
- Gunasekara, D. B., et al. Development of arrayed colonic organoids for screening of secretagogues associated with enterotoxins. Analytical Chemistry. 90 (3), 1941-1950 (2018).
- Shin, W., et al. Spatiotemporal gradient and instability of Wnt induce heterogeneous growth and differentiation of human intestinal organoids. iScience. 23 (8), 101372(2020).
重印与许可
