目前在非人灵长类动物中实施的光遗传学技术需要向大脑内注射病毒载体。理想的注射方法应具有可靠性,并且对于许多应用而言,能够靶向任意深度的单个位点,且这些位点可在死后组织学分析中被清晰、明确地识别。本文介绍了一种具备上述特性的注射方法。
本文内容
摘要
摘要
光遗传学技术彻底改变了神经科学研究,并有望在神经系统疾病的基因治疗中发挥同样重要的作用。然而,光遗传学的临床应用需要在动物模型中证明其安全性和有效性,理想情况下应使用非人灵长类动物(NHP),因为它们在神经系统上与人类具有高度相似性。目前潜在可用于神经科学和医学研究的候选载体数量庞大,但尚无高通量的方法来测试这些载体。因此,亟需一种能够向非人灵长类动物脑内进行多个空间位置精确且体积可控的病毒载体注射,并能通过死后组织学方法明确识别注射位点的技术。本文所述即为此类方法。注射套管由聚四氟乙烯和不锈钢管连接构成,该套管可高压灭菌、一次性使用,且具有极低的最小装载体积,非常适合注射昂贵且高浓度的病毒载体溶液。通过在死腔中填充惰性红色染色矿物油,并与载体溶液形成清晰可见的弯月面,可实现对注射速率和体积的即时且准确测量。矿物油从套管后端注入,从而降低与病毒载体共注射的风险。套管可在10分钟内完成装载,注射操作可在20分钟内完成。该方法适用于对清醒或麻醉状态下的动物进行注射。当用于递送高质量病毒载体时,该技术可实现光遗传学蛋白的强效表达,从而实现对非人灵长类动物神经活动和行为的光学调控。
引言
在非人灵长类动物(NHP)中,光遗传学技术通常涉及将病毒载体直接注射到大脑中。其中一类非常适合此类应用的载体是 基于腺相关病毒(AAV)的载体。这些载体由蛋白质衣壳包裹单链DNA基因组构成,而该基因组又包含启动子、视蛋白基因,以及可选的其他蛋白质编码序列和基因调控元件。分子克隆技术的进步 促进了这些组分的改造与组合,从而推动新型载体的开发。因此,可用于非人灵长类动物光遗传学研究的AAV载体种类日益增多,数量迅速扩大。
目前,AAV 载体在非人灵长类动物光遗传学中的应用效能尚需验证 体内这一事实严重阻碍了研究进展。动物的使用必须尽可能节制,而在单个动物体内测试多种载体时,需要根据神经结构谨慎选择注射位点,并确保各注射位点之间有足够的距离以避免病毒扩散相互干扰。准确的组织学评估要求 注射需在空间和体积上精确。一种先前用于局灶性递送药理学试剂的注射技术1,2,3,4 已对该注射技术进行改进和简化以实现此类注射。该技术成本低廉,使用可弃用且可消毒的组件,适用于麻醉或清醒行为状态的猴,可靶向任意深度的不同脑区。以下方案详细描述了可弃用组件的制备及注射操作的逐步流程 在非人灵长类动物脑部的注射。讨论了该技术的优缺点。
方案
所有实验均遵循《实验动物护理和使用指南》的规定进行,并超过了实验动物资源研究所和国际实验动物护理评估与认证协会推荐的最低要求。所有 操作均经过华盛顿大学动物护理与使用委员会批准(UW IACUC 方案编号 #4167-01)。五只健康的猕猴(2只恒河猴 Macaca mulatta,3只食蟹猴 Macaca nemestrina;雄性,4-11岁)参与了本研究。所有外科手术过程中均使用无菌器械并采用无菌技术。
1. 制备套管(图1A)
- 各部分的制备
- 钝化尖端 使用圆盘砂轮机打磨皮下注射针头(30 G,13 mm 长)。
- 剪切 不锈钢管(30 G,内径 = 0.16 mm,外径 = 0.31 mm),根据目标脑区的深度裁剪至适当长度(注射大脑皮层背侧表面时,25 mm 长度较为合适)。使用圆盘砂轮机将切好的管子一端磨成斜面,另一端打磨平滑。用铰刀去除管子内壁的毛刺。
- 切割聚四氟乙烯(PFTE) 导管(内径 = 0.23 mm) ± 0.02 mm,壁厚 = 0.23 mm ± 0.02 毫米,1 毫米对应 42 纳升 ± 7 nL 液体)调整至适合所加载病毒载体溶液体积的长度(1 µL 向量溶液占据24 mm管路)。通过插入钝化皮下注射针头来扩宽PTFE管的两端。
- 将钝化的皮下注射针插入聚四氟乙烯管的一端约5 mm。将不锈钢管的无斜面端插入另一端约5 mm(图1A).
- 进行注射前测试。通过套管的皮下针座注入过滤水。确认水从不锈钢斜面端口流出 确保管尖处无漏水,且任意连接处均无渗漏。
2. 麻醉动物的注射操作步骤
- 手术准备
- 使用材料表中的方法对手术器械和用品进行灭菌。
- 如需定位深部脑结构,术前进行头部 MRI 扫描(图 2A)。
- 手术开始前,使用氯胺酮(10–15 mg/kg)对动物进行镇静,并通过肌肉注射给予抗生素(头孢唑林)和镇痛药(缓释型布托啡诺和美洛昔康)。随后通过隐静脉或头静脉的静脉导管给予丙泊酚。
- 对动物进行气管插管并转为异氟烷气体麻醉。通过稳定的心率、血压、呼吸频率、骨骼肌松弛以及无眼睑反射或回缩反射来确认麻醉效果充分。
- 剃除动物头部毛发。在角膜上涂抹人工泪膏以防止干燥。
- 注射区域准备
- 将动物头部固定于立体定位仪框架中。 使用纱布蘸取外科消毒液擦拭剃净的皮肤,轻压以清除任何碎屑,再用异丙醇冲洗。重复此过程三次。用无菌开窗洞巾覆盖动物。切开皮肤并分离肌肉。将操纵器安装至立体定位臂上,调整其位置以对准目标脑区,并使用灭菌笔在颅骨上标记开颅位置。
- 取下立体定位操纵器并实施开颅。如需要,切开硬脑膜(例如,以观察脑沟解剖标志)。随后将操纵器重新安装至立体定位臂上。
- 病毒载体溶液装载(图 1C)
- 使用 P20 移液器将病毒载体溶液轻柔转移至灭菌的 PCR 管中,避免产生气泡。
- 将斜面朝下的导管连接至垂直放置的立体定位固定装置。将 1 mL 鲁尔锁注射器连接至导管的皮下针座。
- 将导管的斜面端浸入病毒载体溶液中。
注意:注射器应已预先连接;若在此时连接,会将气泡引入病毒载体溶液中。 - 通过 1 mL 注射器施加轻微负压,将溶液吸入导管内。肉眼观察溶液与空气之间的弯月面。
- 病毒载体溶液装载完成后,继续施加轻微负压,直至溶液到达针座处。取下 1 mL 注射器,并向皮下针座中注入有色矿物油。
注意:应沿针座内壁缓慢注入油液,以在油与病毒载体溶液之间形成清晰的弯月面,并避免产生气泡。 - 将皮下针座连接至三通鲁尔锁止流阀的两个开放端口之一。
注意:若将皮下针连接至关闭端口,会在油后方引入不必要的气压。 - 关闭连接皮下针座的端口,用空气填充 1 mL 注射器,并将其连接至其余两个端口中的任意一个。最后关闭止流阀的剩余端口,使注射器与导管连通。
- 缓慢向导管内推入空气。当有色油出现在 PTFE 管内的钝针尖端时,检查溶液与有色油之间是否存在空气。
- 若存在空气,对注射器施加负压,使有色油退回针座内。清除气泡后施加正压,直至在导管斜面尖端可见一滴病毒载体溶液。
- 取下 1 mL 注射器以释放油后方的多余气压,并关闭止流阀,防止病毒载体因重力作用从导管中流出。
- 将塑料尺用胶带固定在 PTFE 管上,用于测量注射过程中弯月面的移动(图 1B,D,F)。
- 导管插入目标脑区(图 1B)
- 将导管固定至立体定位操纵器上。
- 由非无菌助手手动将泵管(末端为鲁尔锁接头)传递给术者。术者应隔着无菌套袖的壁抓握 鲁尔锁接头,将第二个无菌止流阀固定 在接头上,用胶带将套袖紧密缠绕固定 ,然后松开套袖的领口,使其在重力作用下沿管路自然下垂 。
- 将连接导管管路的止流阀与连接空气泵的止流阀相连。 将空气泵设为低压,开启后逐渐增加压力,直至油推动溶液前进并通过导管,使导管尖端可见一滴病毒载体溶液。
- 调整 PTFE 管上塑料尺的位置,以便测量注射过程中弯月面的移动。
- 使用立体定位操纵器将导管缓慢下放,记录其尖端到达表面(硬脑膜或软脑膜)时的深度。
- 将导管下放至注射轨迹中最深的注射位点。表面会出现凹陷。若注射表层皮层,应通过手术显微镜或放大镜目视确认导管已穿透表面。
- 为减少组织压缩导致的定位偏差,可缓慢下放导管(1 mm/min),或快速下放(0.5 mm/s)并在最深处停留 1–5 分钟,或超过最深注射点 500 µm 后再回撤。
- 注射
- 使用电动空气泵在 10–30 秒内注射 0.5 µL 病毒载体溶液。通过观察 PTFE 管中有色油与病毒载体溶液之间的弯月面移动来确认注射流速。
- 等待 1 分钟后,将导管回撤至轨迹上的下一个注射位点。
- 完成最后一次注射后,将导管留置 10 分钟,以防止病毒载体外流。
- 回撤导管,并将其丢弃至生物危害锐器容器中。
- 可选:在病毒载体注射位点附近注射少量荧光微珠(≤1 µL),以利于死后识别注射位点。
- 根据需要,在其他位置重复此操作以注射其他病毒载体溶液(图 2B)。
- 手术关闭
- 缝合硬脑膜、肌肉和皮肤。
- 将猴从立体定位仪框架中取出,并移除所有监测电缆。
- 在吞咽反射恢复后,停止异氟烷麻醉并拔管。
- 提供术后治疗(美洛昔康 3–5 天,头孢氨苄 7–10 天)。至少每 10 分钟监测一次动物 ,直至其能够维持稳定的直立坐姿。
3. 清醒行为动物的手术及AAV载体注射(图1D)
注意:如以下所述,该技术的一种变体可用于对清醒且行为正常的猴子进行脑内注射。
- 同步注射与记录
- 为记录注射部位的电活动,将套管外表面用环氧树脂(底部约15 mm)和聚酰亚胺管(剩余长度)进行包被。 通过刮除尖端的环氧树脂暴露金属部分(Injectrode, 图 1F)2或者,将导管和一根独立的细胞外电极并排插入双通道套管中 导管(双通道导管, 图1E).
- 将套管插入目标脑区。
- 将猴子放入实验舱内,固定其头部,并使用标准技术清洁颅骨上安装的记录室。
- 将导管固定到微型驱动装置上。将注射套管插入导管中。
- 将套管向前推进,直至其尖端从导管中伸出。
- 将旋塞连接至电动空气泵。为确认系统功能正常,使用空气泵从尖端推出一滴载体溶液,并观察油-载体溶液弯月面是否移动以确认其流动。
- 将套管回撤约5 mm至导管内,以在导管插入脑组织时保护套管免受损伤。将导管插入脑内。
- 使用微驱动装置将套管推进至注射位点。通过电生理记录确定目标位点(图2C)或刺激。

图1:手术与装置设置。(A)注射套管。图中显示了套管的各个组成部分。右下角插图为套管尖端的放大图像,比例尺:500 µm。(B)麻醉状态下猴的手术设置。将猴置于手术巾下的立体定位仪框架中。呼吸机(V)、静脉输液管(IV)、血压监测仪(BP)和血氧饱和度监测仪(O2)均连接至猴体。使用立体定位微操纵器将注射套管插入目标区域。通过与空气压缩机(左下角插图,蓝色)相连的电动气泵(左下角插图,棕色)注入载体溶液。在注射过程中,将塑料尺(上方插图)粘贴至聚四氟乙烯(PTFE)管上,用于测量有色油(上方插图,红色)与载体溶液(上方插图,无色)之间弯月面的移动。(C)将载体溶液装入套管的装置设置。(D)猴在实验隔间内接受载体溶液注射时的情景。动物头部由三个稳定柱固定,眼动位置通过巩膜搜索线圈系统记录。使用微电极夹持器/驱动器固定并推进注射套管至目标深度。通过USB摄像头(插图)监测有色油与载体溶液之间的弯月面来控制注射过程。(E)双通道导管套管注射。双通道导管套管夹持器/驱动器同时固定注射套管和微电极(见插图)。(F)注射电极(Injectrode)。通过刮除环氧树脂涂层暴露套管尖端的金属部分,从而实现对神经元的电学记录(插图,比例尺:500 µm)。(G)激光刺激装置。双通道导管套管夹持器/驱动器同时固定光纤和微电极(见插图)。请点击此处查看该图的放大版本。

图2:AAV注射位点示意图。 (A) 大脑 MRI 矢状位图像,显示在初级运动皮层和初级视觉皮层的注射位点 Macaca nemestrina. (B) 从背侧表面观察对应的阿特拉斯图谱,显示套管相对于中央沟(初级运动皮层)和初级视觉皮层的位置。C通过注射电极在上丘进行的单细胞记录。一个被分离出的单细胞 注射前(右上)在注射后消失(右下)。(D注射轨迹(白色箭头)。比例尺: 500 µm. 请点击此处以查看该图的放大版本。
4. 组织学用脑组织处理
- 注射后等待6-8周以达到最大效果 转基因表达
注意:最佳持续时间取决于所使用的特定病毒载体 实验。 - 使用常规组织学技术处理脑组织,以评估转导效率和特异性5,6,7.
结果
展示转基因表达 体内 使用此处所述手术注射方法向非人灵长类动物脑内进行立体定位注射,选择了两种载体,其含有可在不同神经元类型中驱动超级黄色荧光蛋白-2(SYFP2)表达的增强子8,9病毒载体在 PHP.eB 衣壳10,经碘克沙醇离心纯化,随后浓缩至高滴度(>1E13 病毒基因组/mL(通过qPCR测定)。取体积为 0.5 µL 在每个处注射 皮层内沿十条轨迹的十个深度进行注射,总注射体积为 5 µL/track. 图 3A-C 显示 通过SYFP2表达 成年雄性小鼠初级视皮层注射PVALB亚类特异性AAV载体CN2045后113天的抗GFP免疫染色 Macaca nemestrina在皮层各层中广泛分布的许多非锥体神经元可稳健检测到SYFP2转基因,且大多数表达SYFP2的神经元对PVALB也呈免疫阳性反应7. 图3D 显示在注射L5神经元亚类特异性AAV载体CN2251后64天,初级运动皮层中SYFP2的天然表达。所有标记SYFP2的神经元均具有 具有清晰的锥体形态,胞体局限于第5层,并具有特征性的粗大顶树突。这些数据明确表明,通过立体定位注射靶向特定细胞类型的AAV载体,可在非人灵长类动物脑内新皮层神经元的特定群体中实现转基因表达的精确控制。

图3:通过向非人灵长类动物脑内注射 AAV 载体介导的细胞类型特异性 SYFP2 表达示例。 (A固定样品的落射荧光显微照片 注射PVALB亚类特异性AAV载体113天后猕猴初级视皮层切片。比例尺:1 mm。 (B,C方框区域的高倍放大图像,显示 在 A. (B) 抗GFP信号。 (C) 抗PVALB信号。比例尺: 250 µm. (D固定切片中天然SYFP2荧光的落射荧光显微照片 来自注射了第5层特异性投射神经元AAV病毒载体64天后的猕猴初级运动皮层。比例尺: 500 µm. 请点击此处以查看此图的放大版本。
为了验证该注射技术在神经生理学和行为学光遗传学操控中的实用性,共进行了三项实验,每项实验使用一只不同的猕猴(Macaca mulatta)。在第一项实验中(图4A-D),将携带通道视紫红质-2转基因的腺相关病毒载体(AAV1-hSyn1-ChR2-mCherry)注射至左侧上丘(SC)。注射在19个不同深度进行,每隔250 µm注射一次,总体积为12 µL。在第二项实验中(图4E-G),将3 µL的AAV1-hSyn-ArchT-EYFP溶液注射至脑桥被盖网状核(NRTP)。在第三项实验中(图4H-K),将24 µL的AAV9-L7-ChR2-mCherry溶液注射至小脑皮层6。每次注射后六至八周,通过双通道导管插入一根光纤和一根钨 电极至脑内(图1G)。
图4B展示了SC 神经元对蓝光(450 nm)的反应。在40 mW的连续光照(1.2 s)下,记录到一系列连续的动作电位(图4B,上图)。在40 mW强度下,1 ms持续时间的光脉冲未能引发动作电位(图4B,中图);但在唯一测试的另一功率水平160 mW下,该光脉冲可稳定引发动作电位,潜伏期为2.7 ± 0.6 ms(图4B,下图)。使用脉冲序列刺激(160 mW,频率:300 Hz,占空比:15%,持续时间:300 ms)可一致地诱发扫视眼动,平均潜伏期为97 ± 32 ms,平均幅度为10.4°,平均角度为47°(向右上方;图4C)。
与通过皮层下丘(SC)亚阈值电刺激改变扫视增益的研究结果一致11,12,在15°、18°和20°向左及向下(225°)扫视后对SC进行光刺激,逐渐降低了扫视增益(图4D)。增益的这种降低需要约250次试验(绿色圆圈)才能恢复至适应前的增益水平(黑色圆圈),证实其基于长期可塑性。
在第二个实验中(图4E),苔藓纤维投射 来自NRTP 对小脑皮层(小叶VIc和VII)的眼动相关蚓部(OMV)进行了光学抑制。 图4F 显示OMV中荧光标记的苔藓纤维和玫瑰花结(插图)。通过光纤将589 nm黄色激光照射至OMV,并使用附近的钨电极记录浦肯野细胞活动。 图 4G 显示NRTP投射在光遗传学失活前(灰色)和失活后(橙色)的简单峰电活动(图 4G,顶部)。失活前,浦肯野细胞表现出双簇放电模式 12° 向右扫视(图 4G,中层,灰色)。在 失活后,放电频率降低,并转变为簇状放电-暂停模式(图 4G,中间,橙色)。比较这两种反应模式表明 苔藓纤维输入至浦肯野细胞通过驱动第二次脉冲放电影响扫视减速阶段图 4G,中间,绿色)。在光遗传学失活期间,向右扫视的变异性降低,这与以下观点一致:扫视参数在试次间的一些变异性源于苔藓纤维所传递信号的变异性图4G,底部,橙色。
在第三个实验中(图 4H),通过光遗传学方法刺激OMV的小脑浦肯野细胞(图 4I)。一串短光脉冲(1.5毫秒脉冲,65毫瓦,50赫兹)增强了孤立浦肯野细胞的简单峰电活动(图4J,顶部)单个 1.5毫秒光脉冲常引发 >1个简单峰电位(simple spike)图4J,底部)。在扫视期间进行光遗传学简单峰电位激活(10毫秒光脉冲,60毫瓦),可增加扫视幅度(图 4K),证实了浦肯野细胞对眼动爆发发生器的去抑制作用。
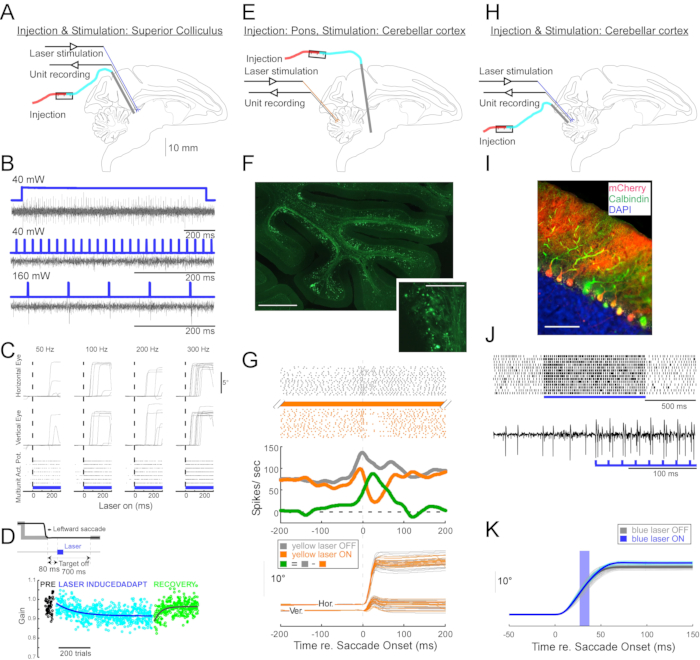
图4清醒猴中进行的三项光遗传学实验的总结 (A-D实验1,全神经元兴奋:在上丘(superior colliculus)进行病毒注射、激光刺激和单细胞记录A). (B) 激光刺激诱发的代表性单位活动。C),激光刺激诱发的眼动水平分量(上)和垂直分量(中),以及神经元活动的栅格图(下)。D) 激光刺激诱导扫视适应的代表性实验过程。每次扫视后80毫秒给予刺激(100个持续0.5毫秒的激光脉冲,见插图)。随着试验次数增加,扫视增益(扫视幅度 / 目标幅度)逐渐降低。E-G实验2,通路特异性抑制:将病毒载体注射至脑桥被盖网状核,随后在动眼神经小叶进行激光刺激和单细胞记录E). (F) 动眼神经小叶的组织学切片,显示标记的苔藓纤维(比例尺:1 mm)及其玫瑰花结结构(插图,比例尺: 100 µm). (G) 激光刺激开启与关闭条件下浦肯野细胞活动(上:点阵图,中:平均放电率)及视觉引导扫视轨迹(下)。灰色:激光关闭试验,橙色:激光开启试验,绿色:橙色与灰色之差。H-K实验3,细胞类型特异性激活:在眼动小叶(oculomotor vermis)中进行病毒注射、激光刺激和单细胞记录H). (I动眼神经小叶的组织学切片,显示标记的浦肯野细胞。比例尺: 100 µm. (J) 激光刺激诱发的浦肯野细胞简单峰电位活动。上图:14次试验的点阵图。下图:单次代表性试验的电压迹线。K视觉引导扫视在有无激光刺激下的轨迹。扫视期间施加10毫秒光脉冲可增加扫视幅度。激光开启试验中的单个扫视轨迹(青色)及其平均轨迹(蓝色);激光关闭试验中的单个扫视轨迹(浅灰色)及其平均轨迹(深灰色)。光波长 450 nm 实验1和实验3中为589 nm 实验 2. 请点击此处以查看此图的放大版本。
讨论
非人灵长类动物光遗传学技术的进步对精确、可靠的颅内注射方法提出了需求。本报告所述方法的优势在于成本低廉,使用可高温灭菌和一次性组件,并能够靶向任意深度的不同脑区。该方法还可通过调节空气阀门的控制速度,实现对注射速度和注射体积的精确控制。可通过短暂增加气压以清除堵塞,随后迅速降低压力,避免因持续加压导致的后续过量注射。一次性组件的使用降低了不同注射位点之间交叉污染的风险。
该注射方案的关键步骤包括制备高质量的导管、在装载过程中避免引入气泡,以及选择间距不过近的注射位点。通常情况下,相距≥1厘米的注射位点可转导非重叠区域,但该经验法则受病毒血清型、滴度、启动子、注射体积、靶标及检测方法的影响。选择不直接相连的注射位点,可避免视蛋白沿轴突运输以及轴突间传播倾向所带来的潜在干扰因素 某些AAV血清型可用于逆向转导。
该方法可用于在非人灵长类动物(NHP)麻醉状态下结合立体定位仪(图3)进行注射,也可在清醒且头部固定状态下进行注射(图4)。前者的优势在于可利用立体定位坐标精确靶向注射位点,并可通过急性硬脑膜切开术直观确认套管针的穿刺位置(在清醒猴中通过慢性颅骨开窗切开硬脑膜会增加感染风险)。后一种方法的优势在于减少了存活手术的次数,从而降低了动物的应激反应,同时可与行为过程中的电生理记录相兼容,并可使用与注射后实验中植入光纤所用的相同坐标系和仪器设备。在清醒猴中进行注射的技术还可通过使用人工硬脑膜进一步改进13,14,15,这将带来额外优势,包括能够直接观察注射位点以及显示成功转导的组织荧光信号。
在非人灵长类动物(NHP)中已采用多种其他AAV注射技术。最近,已开发出一种多通道注射装置,可将AAV载体均匀递送至较大的NHP大脑皮层区域16。使用对流增强递送也可获得类似效果17,18。这些方法旨在最大化转导范围,这是一个重要的目标 ,但与本方法所追求的空间精确性有所不同。
另一种替代方法是通过硼硅酸盐管注射AAV载体,该管一端研磨成尖锐的斜面,另一端连接至汉密尔顿注射器。5,6该方法与本文所述方法具有诸多相似之处。病毒载体被置于一段导管中,导管内病毒后方的空间充满染色油,通过观察油-载体界面的移动来监测载体的流动情况。 弯月面。这种替代技术所需的设备和准备工作较少,但需要通过负压将油从斜面尖端吸入硼硅酸盐玻璃管中,并随后经由同一路径加载载体。这不可避免地会导致微量油被递送至脑组织。此外,根据我们的经验,硼硅酸盐玻璃管的直径需约为350 µm才能穿透硬脑膜,即使经过斜面处理,其造成的机械损伤仍大于本文所述的较细金属套管(图 2D使用30 G导管是因为其临界屈曲载荷足够高,能够实现硬脑膜穿透,即使长度在1–10 cm范围内也能保持稳定性,且与PTFE匹配 管路紧密且不易堵塞。33 G 管路 更容易堵塞和弯曲,且与PTFE管连接更困难。36 G管的刚性不足 穿透非人灵长类动物硬脑膜。
另一种替代注射技术是将气泵的输出端连接至装有载体的拉制玻璃微量移液管的尾部19。通过气泵提供的直接且间歇性的气压,将载体从移液管尖端推出,从而无需使用油介质。与上述单管法类似,弯月面与套管尖端之间不存在任何材料连接点,降低了泄漏风险。然而,玻璃移液管尖端的锐利锥形结构较为脆弱,无法穿透非人灵长类动物(NHP)的硬脑膜或靶向深层脑区结构。
披露
作者无任何利益冲突需要披露。
致谢
本研究由WaNPRC/ITHS P51OD010425(JTT)、美国国立卫生研究院(NIH)资助项目EY023277(YK的R01项目)、EY030441(GH的R01项目)、MH114126(JTT、Boaz Levi、Ed Lein的RF1项目)支持。 MH120095 (JTT 和 GH 的 UG3) EY028902(RS 的 R01 项目),由 NIH 基金 OD010425(WaNPRC 的 P51 项目)和华盛顿大学专利研究基金 A148416 资助。 作者感谢 Yasmine El-Shamayleh 和 Victoria Omstead 在组织学方面的帮助,Refugio Martinez 在病毒载体克隆方面的贡献,以及 John Mich 在非人灵长类动物脑组织处理中的协助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| <强>设备: 立体定位仪套装 | |||
| <强>项目 | |||
| 内六角扳手 | BONDHUS | 10936 | STERRAD |
| 导管固定器 | KOPF | 1770 | STERRAD |
| 载体(操作器) | KOPF | 1404 | STERRAD |
| 载体平台 | KOPF | 1430 | NA |
| 载体架 | KOPF | 1449 | STERRAD |
| 眼、耳、口部横杆 | KOPF | 1430 | NA |
| 立体定位基座 | KOPF | 1210 | NA |
| <强>设备: 导管 | |||
| <强>项目 | |||
| 1 mL 鲁尔锁式注射器 | BD | 309628 | NA(已灭菌包装) |
| 套管针* | (自制——见下文) | NA | 蒸汽(高压灭菌器) |
| 彩色油** | (自制——见下文) | NA | NA |
| 试管架升降器 | Cole-Parmer | UX-08057-10 | STERRAD |
| 滤尖 | Genesee Scientific | 23-404 | NA(已灭菌包装) |
| 荧光微珠 | Lumafluor | R170 | NA |
| P20 移液器 | Gilson | FA10003M | NA |
| PCR管 | 奥林巴斯塑料公司 | 22-161 | STERRAD |
| 三通阀 | Cole-Parmer | 3060004 | STERRAD |
| 试管架 | 自制的 | NA | STERRAD |
| 载体溶液 | (自制) | NA | NA |
| <强>设备: 电动空气泵套装 | |||
| <强>项目 | |||
| 电动空气泵 | World Precision Instruments | PV830 | NA |
| 脚踏板 | World Precision Instruments | 3260 | NA |
| 管盖 | EZ Drape | A400-1000 | NA(已灭菌包装) |
| <强>设备: 普通外科手术器械 | |||
| <强>项目 | |||
| 烧杯 | MEDLINE | azlon | STERRAD |
| 毛刺 | STRYKER | 277-10-235 | STERRAD |
| 双头组织镊 | Fine Science Tools | 18067-11 | STERRAD |
| 铺巾 | MEDLINE | DYNJP3004 | NA(已灭菌包装) |
| 持针器 | Miltex | 6-118 | STERRAD |
| 钻孔 | STRYKER | Q9R-5400 | NA |
| 钻头 | STRYKER | 277-82-87 | STERRAD |
| 纱布 | MEDLINE | NON26334 | NA(已灭菌包装) |
| 止血蚊式钳 | Miltex | 7-2, 7-4 | STERRAD |
| 光操控器 | SKYTRON | Stellar XL | STERRAD |
| 持针器 | Miltex | 8-2 | STERRAD |
| 骨膜剥离器 | Miltex | 18-1968 | STERRAD |
| 咬骨钳 | Miltex | 17-4800 | STERRAD |
| 生理盐水 | BAXTER | 2F7122 | STERRAD |
| 手术刀 | 巴德-帕克 | 372610 | STERRAD |
| 剪刀 | Miltex | 5-12, 5-114 | STERRAD |
| Senn拉钩 | Miltex | 28065 | STERRAD |
| 无菌手套 | MEDLINE | Triumph Micro | NA(已灭菌包装) |
| 抽吸 | medela | 200-4869 | NA |
| 吸头 | MEDLINE | DYNDFR12S | NA(已灭菌包装) |
| 吸管 | COVIDEN | 8888301614 | NA(已灭菌包装) |
| 手术衣 | MEDLINE | DYNJP2002S | NA(已灭菌包装) |
| 外科手术笔 &和尺子 | MEDLINE | DYNJSM03 | NA(已灭菌包装) |
| 缝合 | COVIDEN | SL-635 | NA(已灭菌包装) |
| 组织镊 | Miltex | 6-114 | STERRAD |
| 毛巾钳 | Miltex | 7-504 | STERRAD |
| 木制拭子 | MEDLINE | MDS202095 | NA(已灭菌包装) |
| <强>设备: 套管针 | |||
| <强>项目 | |||
| 皮下注射针头 | EXELINT 国际公司 | 26437 | NA(已灭菌包装) |
| 不锈钢管 | K-TUBE | K30R | NA |
| PTFE 管 | ZEUS | 216200 | NA |
| <强>设备: 彩色油 | |||
| <强>项目 | |||
| 液体蜡烛染料浓缩液 | PremiumCraft | 红色/粉红色 | NA |
| 矿物油 | Vi-Jon | S0883 | NA |
| STERRAD:低温过氧化氢气体等离子体 |
参考文献
- Kojima, Y., Robinson, F. R., Soetedjo, R. Cerebellar fastigial nucleus influence on ipsilateral abducens activity during saccades. Journal of Neurophysiology. 111 (8), 1553-1563 (2014).
- Kojima, Y., Soetedjo, R. Elimination of the error signal in the superior colliculus impairs saccade motor learning. Proceedings of the National Academy of Sciences of the United States of America. 115 (38), 8987-8995 (2018).
- Kojima, Y., Soetedjo, R., Fuchs, A. F. Effects of GABA agonist and antagonist injections into the oculomotor vermis on horizontal saccades. Brain Research. 1366, 93-100 (2010).
- Kojima, Y., Soetedjo, R., Fuchs, A. F. Effect of inactivation and disinhibition of the oculomotor vermis on saccade adaptation. Brain Research. 1401, 30-39 (2011).
- De, A., El-Shamayleh, Y., Horwitz, G. D. Fast and reversible neural inactivation in macaque cortex by optogenetic stimulation of GABAergic neurons. eLife. 9, 52658(2020).
- El-Shamayleh, Y., Kojima, Y., Soetedjo, R., Horwitz, G. D. Selective optogenetic control of Purkinje cells in monkey cerebellum. Neuron. 95 (1), 51-62 (2017).
- Mich, J. K., et al. Functional enhancer elements drive subclass-selective expression from mouse to primate neocortex. Cell Reports. 34 (13), 108754(2021).
- Graybuck, L. T., et al. Enhancer viruses for combinatorial cell subclass-specific labeling. Neuron. (21), 00159(2020).
- Michel, J., Benninger, D., Dietz, V., van Hedel, H. J. Obstacle stepping in patients with Parkinson's disease. Complexity does influence performance. Journal of Neurology. 256 (3), 457-463 (2009).
- Chan, K. Y., et al. Engineered AAVs for efficient noninvasive gene delivery to the central and peripheral nervous systems. Nature Neuroscience. 20 (8), 1172-1179 (2017).
- Kaku, Y., Yoshida, K., Iwamoto, Y. Learning signals from the superior colliculus for adaptation of saccadic eye movements in the monkey. Journal of Neuroscience. 29 (16), 5266-5275 (2009).
- Soetedjo, R., Fuchs, A. F., Kojima, Y. Subthreshold activation of the superior colliculus drives saccade motor learning. Journal of Neuroscience. 29 (48), 15213-15222 (2009).
- Kleinbart, J. E., et al. A modular implant system for multimodal recording and manipulation of the primate brain. Annual International Conference of the IEEE Engineering in Medicine and Biology Society. IEEE Engineering in Medicine and Biology Society. Annual International Conference. 2018, 3362-3365 (2018).
- Arieli, A., Grinvald, A., Slovin, H. Dural substitute for long-term imaging of cortical activity in behaving monkeys and its clinical implications. Journal of Neuroscience Methods. 114 (2), 119-133 (2002).
- Ruiz, O., et al. Optogenetics through windows on the brain in the nonhuman primate. Journal of Neurophysiology. 110 (6), 1455-1467 (2013).
- Fredericks, J. M., et al. Methods for mechanical delivery of viral vectors into rhesus monkey brain. Journal of Neuroscience Methods. 339, 108730(2020).
- Bankiewicz, K. S., et al. Convection-enhanced delivery of AAV vector in parkinsonian monkeys; in vivo detection of gene expression and restoration of dopaminergic function using pro-drug approach. Experimental Neurology. 164 (1), 2-14 (2000).
- Yazdan-Shahmorad, A., et al. Widespread optogenetic expression in macaque cortex obtained with MR-guided, convection enhanced delivery (CED) of AAV vector to the thalamus. Journal of Neuroscience Methods. 293, 347-358 (2018).
- Nathanson, J. L., Yanagawa, Y., Obata, K., Callaway, E. M. Preferential labeling of inhibitory and excitatory cortical neurons by endogenous tropism of adeno-associated virus and lentivirus vectors. Neuroscience. 161 (2), 441-450 (2009).
重印与许可
