本文描述了CRISPR干扰技术(CRISPRi)在钩端螺旋体属(Leptospira)中实现特异性基因沉默的应用。Leptospira细胞通过接合转化方式导入表达dCas9(催化失活的Cas9)和单导向RNA(sgRNA)的质粒,其中sgRNA负责与目标基因组位点进行碱基配对。本文还介绍了验证基因沉默效果的方法。
方法文章
钩端螺旋体(Leptospira)致病种中CRISPR干扰(CRISPRi)技术在基因沉默中的应用
* These authors contributed equally
本文内容
摘要
摘要
钩端螺旋体病是一种全球被忽视的人畜共患病,每年导致至少100万例病例和近6万例死亡。该疾病由钩端螺旋体属的致病性且具有毒力的细菌引起。 钩端螺旋体,可通过与细菌直接接触或间接暴露于受污染的水或土壤而感染。家养和野生动物作为感染的储存宿主,通过尿液将定植于肾脏肾小管中的钩端螺旋体排入环境。钩端螺旋体突变株的构建 钩端螺旋体 对于评估和理解感染的致病机制至关重要。CRISPR干扰(CRISPRi)已被证实是一种简单、经济且特异性强的病原体基因沉默工具 钩端螺旋体因此,获得包含dCas9和引导RNA的质粒构建体的方法学细节,以及将质粒递送至目标细胞的方法 钩端螺旋体 通过与 E. coli 菌株β2163的使用以及接合子的回收与鉴定方法将被描述。此外,近期报道的Hornsby-Alt-Nally(HAN)培养基可实现突变菌落在琼脂平板上的相对快速分离与筛选。
引言
钩端螺旋体病是一种被忽视的全球性人畜共患病,由致病性且具有毒力的Leptospira属物种引起。在人类中,该疾病每年在全球范围内导致超过100万例病例和6万名死亡1,2。迄今为止,尚无针对该病的长期有效疫苗。鉴定毒力因子和致病机制对于开发更有效的治疗和预防策略至关重要。因此,构建基因突变并评估其表型的能力对于功能基因组学分析至关重要3。
在致病性Leptospira中构建突变株的方法,长期以来被认为效率低下、耗时耗力、成本高昂且难以实施。随着近年来CRISPR干扰技术(CRISPRi)在腐生性4和致病性5钩端螺旋体中的应用,这一局面发生了根本性转变。
基因沉默通过表达两个组分实现:一种来自化脓性链球菌(Streptococcus pyogenes)的CRISPR/Cas(clustered regularly interspaced short palindromic repeat/CRISPR associated)酶Cas9的催化失活变体(dCas9),以及可根据目标序列进行编辑的单导向RNA(sgRNA)6,7,8。当dCas9蛋白与sgRNA结合后,通过沃森-克里克碱基配对被引导至特定DNA靶位点,从而对RNA聚合酶的延伸造成空间位阻,阻碍基因转录,最终导致基因沉默7(图1)。
本论文旨在描述用于表达dCas9和sgRNA的质粒构建方法,以及供体之间的接合 E. coli β2163 及受体 钩端螺旋体 细胞、接合子回收,以及最终对选定突变菌落的验证。
方案
1. 原间隔序列的确定与质粒构建
注意:本节描述了构建sgRNA并进一步连接至pMaOri.dCas9的第一步,即选择合适的原间隔序列(图1)。该原间隔序列包含一段针对目标序列的20个核苷酸序列。
- 在 GenBank(https://www.ncbi.nlm.nih.gov/genbank)获取目标沉默基因的核苷酸序列。将其提交至 CHOPCHOP 网络服务器(http://chopchop.cbu.uib.no/),在选择 Streptococcus pyogenes Cas9 和 PAM(原间隔序列邻近基序)为 NGG 后,设定参数为"Fasta Target"。将参数定义为"CRISPR/Cas9",PAM(原间隔序列邻近基序)为 NGG。
- 根据所得结果,选择评分最高(绿色箭头所示)的原间隔序列,其位置应尽可能靠近编码区的 5´端;最重要的是,该序列必须位于模板链(负链)上,因为 sgRNA 必须与基因的编码链配对,才能实现完全的基因沉默。
注:NGG 基序不包含在最终的 sgRNA 序列中。 - 使用lipL32 启动子表达单链向导 RNA(sgRNA),该 sgRNA 在 5' 端包含一段可变的 20 个核苷酸序列,在 3' 端包含一段保守的 dCas9 支架序列。将称为原间隔序列的 20-nt 序列连接至lipL32 启动子(在其 5´端)和 sgRNA 支架序列(3'端)之间(图 1B)。
注:对于明确界定的lipL32 启动子,可采用 Zhukova 等人9报道的从 -334 到转录起始位点(TSS)的启动子区域。参见补充文件以获取最终的 sgRNA 表达盒序列。 - 通过连续 PCR5 构建 sgRNA 表达盒,或由商业公司合成该片段。
- 获得表达盒后,将其在两端通过XmaI 限制性酶切位点(cccggg)连接至 pMaOri.dCas9 质粒4。
- 用XmaI 限制性内切酶对 sgRNA 表达盒和 pMaOri.dCas9 质粒进行双酶切,随后进行连接反应(图 1B)。
- 由于 pMaOri11(以及由此衍生的 pMaOri.dCas9)具有 R6K-gamma 复制起点,克隆步骤需在 dT 营养缺陷型的E. coli 菌株 π110 中进行。
注:有关连接和克隆筛选的详细实验方案,请参阅 Fernandes 和 Nascimento 之前的出版物12。由 sgRNA 引导的 dCas9 将结合至目标基因的编码链,从而阻碍 RNA 聚合酶的延伸(图 1C),最终实现基因沉默。
2. 通过接合转化Leptospira
注意:此步骤的示意图见图2。配制HAN培养基和HAN平板的方法请参考Hornsby等13及Fernandes等5的研究。
- 培养致病菌 钩端螺旋体 在 HAN 培养基中于 29 或 37 °C 培养细胞13 在振荡条件下,将饱和培养物按1:100比例接种于新鲜HAN培养基中;通常, L. interrogans 血清型Copenhageni菌株Fiocruz L1-130需要4至6天达到适宜的细胞密度。
- 确保培养物在420 nm处的光密度(O.D.)达到0.2–0.4(相当于2至5 × 10⁸ CFU/mL)8 细胞/mL)后用于偶联。
注意:由于HAN培养基会随着细胞密度的增加而改变颜色(源于DMEM培养基中含有的酚红),需进行离心(4,000 x g,15 分钟,室温)加入 1 mL 培养基以去除钩端螺旋体,将上清液作为空白对照用于测定 O.D.
- 确保培养物在420 nm处的光密度(O.D.)达到0.2–0.4(相当于2至5 × 10⁸ CFU/mL)8 细胞/mL)后用于偶联。
- 转化接合的 E. coli 菌株β2163,DAP(二氨基庚二酸)营养缺陷型,含有携带sgRNA表达盒的质粒pMaOri.dCas9。对于 E. coli 转化,采用热激法或电穿孔法。以不含sgRNA表达盒的质粒pMaOri.dCas9进行转化作为对照。
- 热激转化时,将质粒DNA(100 ng)与化学感受态细胞混合 E. coli 细胞在冰上孵育30分钟。在42 °C下进行热激90秒,然后再次置于冰上5分钟。加入1 mL LB培养基复苏细胞,在37 °C下孵育1小时,随后进行涂板。
- 电穿孔时,使用电转感受态细胞与100 ng质粒DNA混合。电击参数设置为:1.8 kV、100 Ω和25 µF。按上述方法进行细胞复苏。
- 接种转化后的供体菌 E. coli 在添加二氨基庚二酸(DAP)(0.3 mM)和壮观霉素(40 μg/mL)的LB琼脂培养基中培养细胞,以筛选质粒。
- 接合前一日,根据钩端螺旋体培养物的光密度(O.D.)监测结果确定接合日期,并从每块平板上各挑选一个单菌落。
- 选择一个菌落 E. coli β2163 菌株分别接种于空质粒 pMaOri.dCas9 和含 pMaOri.dCas9sgRNA 的平板,加入 10 mL LB 培养基(含 DAP 和壮观霉素),37 °C 过夜培养。
- 第二天,将饱和培养物用10 mL新鲜LB培养基(含DAP,此处不加抗生素)按1:100稀释,直至OD420 nm 0.2–0.4。通常需要 2–3 小时 E. coli 以达到这些密度。
- 在BSL2生物安全柜内,将一个直径25 mm、孔径0.1 µm的混合纤维素酯膜过滤器置于玻璃底座上方,组装过滤装置。将一个15 mL玻璃漏斗放在其上方,并用弹簧夹固定两部分。将玻璃装置连接至真空泵,随后将培养物加入漏斗中进行过滤。
- 加入5 mL的 钩端螺旋体 将培养物加入漏斗中。加入一定体积的 E. coli 根据OD值确定1:1的比例420 nm 两种培养物的数值。开启真空泵,通过过滤浓缩细胞。细胞在膜过滤器中浓缩后,小心取出过滤器。确保培养基已完全通过膜过滤。
注意:过滤需要5到10分钟。 - 将滤膜置于市售的 EMJH 平板上(参见 材料表) 加入 DAP(0.3 mM)。确保细菌面朝上。于 29 °C 培养平板 24 小时。
注意:如果使用 HAN 或补充的实验室自制 EMJH14 使用培养板, E. coli 可能会增殖并打破预期的1:1比例,从而降低接合效率5. - 24小时后,从培养板中取出滤膜,将每张滤膜分别放入50 mL锥形管中。
- 使用1 mL液体HAN培养基,通过反复吹打和涡旋振荡从滤膜表面释放细胞。
- 通过暗视野显微镜观察复苏的混合细菌溶液,以检测细胞活力和运动性,并 钩端螺旋体:大肠杆菌 比例。
注意:在此阶段,应确保数量相等 E. coli 和 钩端螺旋体 可以观察到。 - 将100–200 μL该培养物涂布于含有0.4%灭活兔血清和40 μg/mL链霉素的HAN平板上。将平板置于37 °C、5% CO₂条件下培养。2 大气
注意:通常情况下, L. interrogans 血清型Copenhageni菌株Fiocruz L1-130在对照平板上5-7天形成菌落,在链霉素平板上8-10天形成菌落。此时, 大肠杆菌 由于对二氨基庚二酸(DAP)营养缺陷,将无法生长。 - 作为对照,将培养物按10倍稀释4 每毫升钩端螺旋体,并取100 μL接种至无抗生素的平板上,以监测钩端螺旋体的生长情况。
3. 菌落筛选及接合子生长与验证
注意:菌落通常在第10天时可见。然而,菌落并不容易观察。通常在此时间点,HAN平板因涂布后干燥的细胞而略显不透明,而钩端螺旋体(Leptospira)菌落可能表现为在灰白色背景上的透明晕环。建议从不同角度观察平板,以获得不同的光线入射角度,从而使菌落更加明显。在更长时间的培养后,菌落可能呈现更致密的形态,此时表现为在深色背景上的乳白色晕环。
- 向每支1.5 mL微量离心管中加入100 μL液体HAN培养基以回收突变株。从每块平板上至少挑取3个菌落。
- 借助移液器吸头"挖掘"琼脂以从平板中回收菌落,因为钩端螺旋体菌落可能位于琼脂内部。
注意:此步骤中会同时取到琼脂。应从含有空质粒pMaOri.dCas9的对照平板以及含有表达dCas9和单链引导RNA(针对目标基因设计)质粒的钩端螺旋体平板中取菌落。 - 将收集的菌落加入100 μL HAN培养基中,置于1.5 mL微量离心管内,并充分混匀。此阶段应尽可能破坏琼脂完整性以释放细胞。涡旋振荡悬液10秒。
- 借助移液器吸头"挖掘"琼脂以从平板中回收菌落,因为钩端螺旋体菌落可能位于琼脂内部。
- 通过暗视野显微镜在200–400倍放大下观察回收的细胞:取5 µL样品滴加于载玻片上,并立即加盖盖玻片。
- 确认从菌落中回收的钩端螺旋体为存活且具有活性。
- 在显微镜观察并确认存在活性钩端螺旋体后,将100 μL细胞转移至含有40 μg/mL链霉素的液体HAN培养基中。
- 在液体HAN培养基中培养后,使用引物pMaOri2 F(ACGCAATGTATCGATACCGAC)和R(ATAGGTGAAGTAGGCCCACCC)对培养物进行PCR检测,以确认质粒的存在,这些引物可识别sgRNA表达盒侧翼区域。
- 收集200 μL培养物,离心(4,000 × g,15分钟),弃去上清液,将沉淀重悬于20 μL水中。
- 将此悬液直接用作PCR模板,无需进行DNA提取12。
注意:含有pMaOri.dCas9质粒的细胞将扩增出281 bp的片段,而含有sgRNA表达盒质粒的细胞则扩增出723 bp的片段。
- 为验证基因沉默效果,对仅含有pMaOri.dCas9(阴性对照)和含有pMaOri.dCas9sgRNA的接合子细胞提取物进行免疫印迹分析。
- 每泳道上样相当于5 × 10⁷个细胞的蛋白样品至十二烷基硫酸钠(SDS)聚丙烯酰胺凝胶。
- 将蛋白电转至膜上,随后与特异性抗体孵育。除针对目标基因的抗体外,还需使用一种用于上样量对照的抗体。
- 将突变株培养物保存在含链霉素的HAN培养基中以维持质粒稳定性。若培养基中不添加抗生素,完全的基因沉默效应至少可持续三个传代过程5。
结果
尽管钩端螺旋体属(Leptospira spp.)基因组中的CG含量通常约为35%;但几乎每个基因都可能含有PAM序列5'NGG 3';在设计时需考虑该序列在模板链上的位置。在输入某个基因的编码序列(从起始密码子到终止密码子)后,根据CHOPCHOP的分析结果,必须在负链(-链,即模板链)上选择protospacer。需要注意的是,20个核苷酸的sgRNA protospacer序列中不应包含NGG基序。
若以1:1的供体与受体细胞比例,在添加DAP的EMJH琼脂平板表面进行接合反应24小时,并将200 μL回收的细菌悬液涂布于含链霉素的HAN琼脂平板上,则大约8–10天后应可观察到转接合子菌落(图3A)。通常情况下,涂布此体积样品每平板可获得20–40个菌落。为检测接合后细胞的存活情况,可将细胞涂布于不含抗生素的HAN平板。在此情况下,最早可在7天时观察到菌落。HAN平板在3% CO2环境中会变为淡黄色。
在挑取菌落后,将菌体接种于含壮观霉素的液体培养基中培养,随后使用全细胞及pMaOri2引物进行PCR,可用于对转接合子进行初步质量检测(图3B)。含有对照质粒pMaOri.dCas9的钩端螺旋体细胞应扩增出281 bp的产物,而含有用于基因沉默的质粒(即同时携带dCas9和sgRNA)的细胞则应扩增出723 bp的产物。pMaOri2正向(F)和反向(R)引物的设计位置位于XmaI限制性酶切位点的两侧,该位点是sgRNA表达盒连接时所使用的酶切位点。
在确认质粒存在后,可从培养基中收集细胞,用PBS洗涤两次,然后用于制备全细胞提取物以进行免疫印迹分析。如果基因沉默发生,则目标蛋白(在本例中为LipL32或LigA与LigB)应仅在野生型细胞以及含有pMaOri.dCas9的细胞中被检测到;即使延长曝光时间,含有pMaOri.dCas9sgRNA的细胞中也不应观察到相应蛋白(图3C)。
若计划开展基因沉默后评估钩端螺旋体毒力的实验,用于接合的培养物应为低传代的有毒力的Leptospira。在确认基因沉默后,可将多个等份样品冷冻保存以备不时之需。若被沉默的基因具有可测量的表型(例如基于先前重组蛋白的研究结果),则可使用这些培养物进行验证;在此情况下,仅含pMaOri.dCas9的细胞可作为阴性对照。
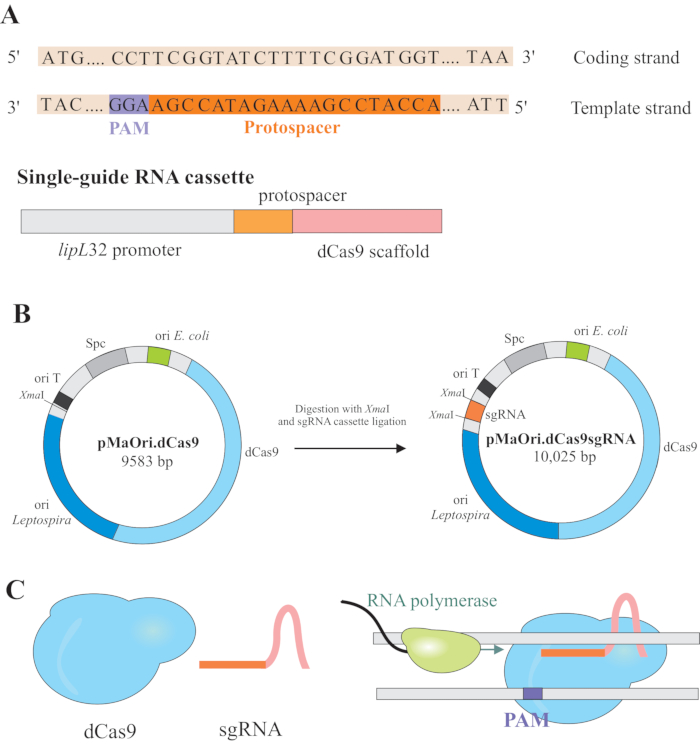
图 1:表达 dCas9 和 sgRNA 的质粒的构建。(A)在靶基因的模板链中选择一段 20 个核苷酸长度的前间隔序列,其后紧接 S. pyogenes dCas9 的 PAM 序列 5'-NGG-3',使得后续生成的 sgRNA 能够与对应的编码链进行 Watson-Crick 碱基配对,从而实现完全的基因沉默。(B)sgRNA 表达盒由 lipL32 启动子、20-nt 前间隔序列和 dCas9 支架序列组成。以 pMaOri.dCas9 质粒作为骨架,在 XmaI 限制性酶切位点处连接 sgRNA 表达盒。所获得的质粒命名为 pMaOri.dCas9sgRNA,将其导入钩端螺旋体中,dCas9 和 sgRNA 的共同表达介导了基因沉默。(C)sgRNA 引导的 dCas9 可作为 RNA 聚合酶延伸的物理屏障,从而阻碍转录过程。请点击此处查看该图的放大版本。
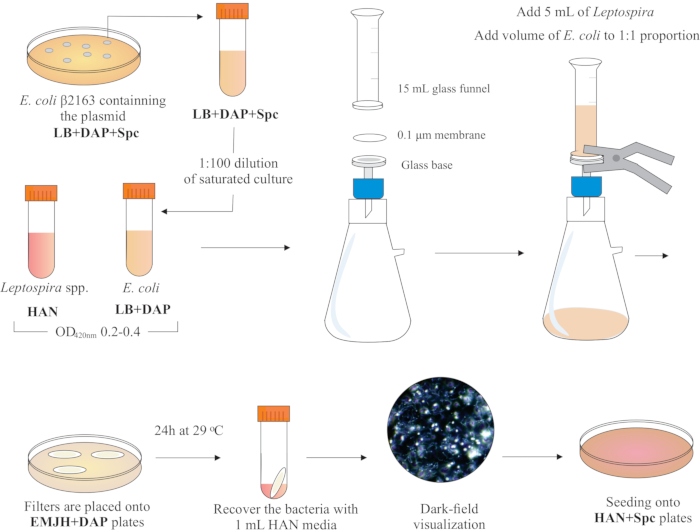
图2接合实验方案示意图。 所需的 钩端螺旋体 物种在HAN培养基中振荡培养至420 nm处光密度(O.D.)达到0.2–0.4(对数生长中期)。接合前一天,挑取一株重组供体菌落 E. coli 从添加了DAP和Spc的LB琼脂平板上挑取含有目的质粒的β2163菌落,并将其接种于添加相同成分的液体LB培养基中过夜培养。次日,取饱和培养物 E. coli 培养物在含有DAP的LB培养基中稀释,并培养至420 nm处的光密度(O.D.)达到0.2–0.4。同时,供体 E. coli 和受体 钩端螺旋体 以1:1的细胞比例混合后接种于表面 0.1 μm 在负压条件下使用过滤装置进行过滤。随后将滤膜置于添加了DAP的EMJH琼脂平板上,于37°C孵育24小时 29 °CEMJH培养基的使用限制 E. coli 增殖,并维持预期的1:1比例。通过移液管加入1 mL HAN培养基从滤膜上回收细菌,悬浮液在暗视野显微镜下观察。最后,100-200 μL 每种悬液接种于含0.4%兔血清的HAN琼脂平板上,并在 37 °C 在3% CO中2在此阶段,省略DAP,因此产生营养缺陷型 E. coli 不会生长。 请点击此处以查看此图的放大版本。
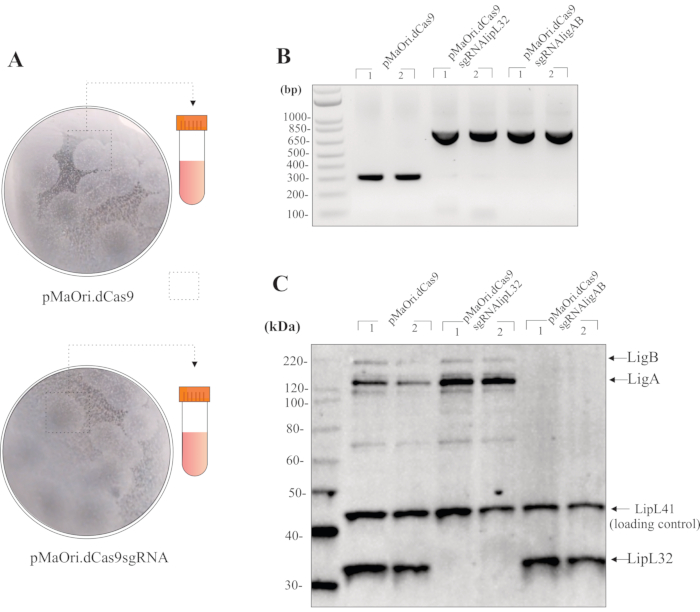
图3突变体评估的代表性结果。 (A含有平板上的菌落 钩端螺旋体 用空质粒 pMaOri.dCas9(后续实验的阴性对照)和含靶基因沉默的质粒 pMaOri.dCas9sgRNA 转化的菌落被挑取,在液体 HAN 中充分匀浆,并在含壮观霉素的液体 HAN 中培养。可通过使用跨越插入位点的引物进行 PCR 验证重组细胞 XmapMaOri.dCas9中的I位点。B在此情况下,仅含有 pMaOri.dCas9 的细胞产生 281 bp 的扩增片段,而含有同时具备 dCas9 和 sgRNA 的沉默质粒的细胞则显示出 723 bp 的扩增片段。在确认质粒存在后,通过免疫印迹分析验证基因沉默效果。C建议同时使用目标蛋白和上样对照蛋白的抗体进行孵育;在代表性免疫印迹中,全细胞提取物来自仅含有 pMaOri.dCas9 或同时含有靶向目标的 sgRNA 表达盒的接合子 lipL32(pMaOri.dCas9sgRNAlipL32)以及LigA和LigB(pMaOri.dCas9sgRNAligAB)基因的表达情况如图所示。通过与抗LipL32、抗LigAB及抗LipL41(非靶标蛋白,上样对照)共同孵育证实,在含有pMaOri.dCas9sgRNAlipL32的细胞中LipL32蛋白的表达被完全抑制,而在含有pMaOri.dCas9sgRNAligAB的细胞中LigA和LigB蛋白的表达均被抑制。 请点击此处以查看此图的放大版本。
补充文件:单导向RNA(sgRNA)表达盒序列。 sgRNA的转录由组成型lipL32启动子(加粗核苷酸)驱动。sgRNA由20个核苷酸组成,对应于原间隔序列,负责与靶基因的编码链进行碱基配对,以及dCas9支架序列(下划线核苷酸)。两端均包含XmaI限制性酶切位点(cccggg),用于与pMaOri.dCas9质粒进行连接。请点击此处下载该文件。
讨论
在对致病性15,16,17,18和腐生性19 Leptospira物种进行早期测序后,通过对基因组数据的挖掘,揭示了钩端螺旋体致病机制的多个方面。在大多数情况下,通过使用推测的钩端螺旋体表面暴露蛋白的重组对应物,并进一步推测其天然蛋白的功能,来探索蛋白功能20,21,22,23,24,25,26。
突变体的构建及其相应表型的评估是功能基因组学分析的关键组成部分。最初对Leptospira spp. 进行突变体构建是通过随机转座子插入诱变实现的27,28,29,30;然而,在经过大量且繁琐的分析以确定被中断基因的身份后,发现L. interrogans血清型Manilae中仅有15%的基因被中断27。随后通过同源重组实现了靶向基因敲除,该方法利用自杀性质粒将位于同源臂之间的抗生素抗性盒导入目标基因位点31,32。
通过应用这些技术,研究人员探索了钩端螺旋体基础生物学和毒力的多个方面31,33,34,35,36,37。E. coli-Leptospira 接合穿梭载体 pMaOri 11 的开发,使得外源成分能够递送并实现附加体质粒介导的基因沉默。
先前的研究表明,Cas9诱导的双链断裂对Leptospira spp.具有致死性,因此可采用该酶的催化失活变体dCas9,以实现腐生性和致病性菌种中的基因沉默4, 5。通过使用质粒pMaOri.dCas9作为sgRNA表达盒连接的骨架,可实现特异且稳定的基因沉默,这是因为dCas9和sgRNA均得到表达;与dCas9结合的sgRNA将通过沃森-克里克碱基配对引导该蛋白至目标位点。
为实现完全的基因沉默,应根据目的基因的模板链设计原间隔序列,以确保sgRNA与编码链发生碱基配对。根据平均C+G含量为35%的情况 钩端螺旋体 spp. 中,PAM 序列 5'-NGG-3' 每 100 bp 至少会出现 3 次。因此,基因组中的几乎任何基因均可被靶向 钩端螺旋体 将至少包含一个PAM。然而,如果未找到NGG序列基序,则可评估替代的NAG序列基序。
既往的基因沉默技术,如锌指蛋白和类转录激活因子效应物(TALE),依赖于为每个靶点构建不同的蛋白质,使得这些技术费力且成本高昂38。而对于CRISPRi而言,可变部分仅为sgRNA,因此只需改变其5'端的20个碱基对即可。完整的、稳定的、靶向性的基因沉默不仅在Leptospira spp.4,5中被观察到,也在其他细菌中实现8,39,40,41。
HAN 培养基的研制13 显著缩短菌落形成所需的培养时间,有利于突变体的回收,并允许 钩端螺旋体 在37℃下培养 oC. 然而,在偶联步骤中不推荐使用,因为 E. coli 能够在该培养基中剧烈增殖,并打破供体细胞与受体细胞之间预期的1:1比例。在此阶段,添加DAP的EMJH培养基是更优的选择,因为 E. coli 在此培养基中增殖能力较差。需要指出的是,一些实验室会制备 内部 补充的EMJH培养基,可能含有其他支持生长的成分 E. coli 细胞
本文所述的接合转化方案已针对L. interrogans血清型Copenhageni菌株Fiocruz L1-130进行了优化,并已证实对近期从土壤样本中分离出的一种致病菌株的转化同样有效5。初步尝试使用该方案对L. borgpetersenii物种的不同血清型进行接合转化时,发现其效率较低。因此,在使用其他Leptospira物种或血清型时,应通过实验经验确定最佳接合条件,包括供体与受体细胞的比例、初始细胞密度、接合培养基及接合时间(24小时和48小时)。可以合理推测,不同的Leptospira物种和血清型在不同接合转化方案下的表现可能存在差异。
尽管腐生型Leptospira菌落在平板上相对容易观察,但致病型菌落的观察则更具挑战性。通常情况下,使用添加了0.4%兔血清和壮观霉素的HAN培养基,可在第10天观察到接合转化子菌落。根据我们的经验,菌落最初表现为培养基表面的透明晕环。在本视频方案中展示的是培养14天后形成的较密集菌落,因为透明菌落难以拍摄。在此阶段,通过旋转平板以改变光线入射角度,并在白色与黑色背景之间切换,有助于识别菌落。
对于突变体的验证,免疫印迹提供了一种直接的方法;然而,由于并非总有针对目标蛋白的抗体,因此可采用其他策略来验证基因沉默。使用靶基因及其组成型对照基因的引物进行定量逆转录PCR(qRT-PCR)是一种有效的验证方法,因为sgRNA引导的dCas9可阻断基因的转录。如果目标基因在蛋白质凝胶中表现为一条明确的蛋白条带,可通过SDS-PAGE证明其沉默,如lipL32基因沉默所示5。若脂多糖(LPS)生物合成相关基因被沉默,可采用LPS染色法进行验证;对于编码具有明确底物的酶类的基因,使用显色底物进行动力学检测也是一种有效的策略;在L. biflexa中,β-半乳糖苷酶基因的沉默已通过X-gal和ONPG(邻硝基苯基-β-半乳糖苷)底物得到验证4。
在确认基因沉默后,可设计实验进一步评估表型。若沉默的是细菌黏附素,可进行结合实验;血清攻击实验已证实LigA和LigB在致病性Leptospira5抵抗血清杀伤中的作用。也可利用突变株接种动物以评估毒力的减弱情况;此时,接种突变株的动物应与仅携带pMaOri.dCas9质粒的细胞感染的动物进行比较。
综上所述,本方案描述了在致病性Leptospira菌种中利用HAN培养基应用CRISPRi进行基因沉默的方法,可在10天内促进突变株的恢复。基因沉默结合功能基因组学分析将加深我们对Leptospira致病机制的理解,并最终推动更有效的疾病预防策略的开发。
披露
作者无任何利益冲突需要披露。
致谢
美国农业部(USDA)是一个提供平等机会的供应商和雇主。本出版物中提及的贸易名称或商业产品仅用于提供具体信息,并不意味着美国农业部对此表示推荐或认可。本研究工作得到了巴西圣保罗研究基金会(FAPESP)的资助(项目编号 2014/50981-0);LGVF 获得了 FAPESP 提供的博士后奖学金资助(项目编号 2017/06731-8 和 2019/20302-8)。资助机构在研究设计、数据收集与分析、发表决定以及稿件撰写过程中均未发挥任何作用。作者还感谢美国农业部视觉服务部的 Hannah Hill 和 Alexander Grimes 为本视频实验方案提供的拍摄与剪辑工作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.1 µm 孔径混合纤维素酯膜 | Millipore | VCWP02500 | 用于细菌接合的过滤 |
| 2,6-二氨基庚二酸(DAP) | Sigma | D1377 | 用于营养缺陷型 E. coli β2163 的培养 |
| 优质琼脂(Agar Noble) | BD & Company | 214230 | 用于制备固体 EMJH 和 HAN 平板 |
| 细菌琼脂(Bacto Agar) | BD & Company | 214010 | 用于制备固体 LB 平板 |
| Clarity Western ECL 底物 | Biorad | 170-5060 | 化学发光底物 |
| dNTP 混合物 | Thermo Fisher | 10297-018 | 用于 PCR 反应的 dNTPs |
| 玻璃微量分析滤器 | Millipore | XX1012530 | 用于细菌接合的过滤 |
| 成像系统 | Biorad | ChemiDoc MP | 化学发光检测 |
| LB 肉汤,Miller 型 | BD & Company | 244620 | 用于 E. coli 培养的溶原性液体培养基 |
| Leptospira EMJH 增菌液 | BD & Company | 279510 | 用于 EMJH 培养基的补充 |
| Leptospira EMJH 培养基基础 | BD & Company | 279410 | 用于钩端螺旋体的 EMJH 培养基 |
| Mini-PROTEAN TGX 12% 凝胶 | Biorad | 4568043 | 用于聚丙烯酰胺凝胶电泳 |
| 光密度读数仪 | Molecular Devices | SpectraMax M2 | 用于细菌培养物的光密度测定 |
| 磷酸盐缓冲液(pH 7.4) | Sigma | 806552 | 用于洗涤细菌沉淀的生理盐水溶液 |
| 壮观霉素 | Sigma | S0692 | 用于 pMaOri 载体质粒的筛选 |
| Taq DNA 聚合酶 | Thermo Fisher | EP0402 | 用于 PCR 反应的酶、缓冲液和 MgCl₂ |
| PCR 扩增仪 | Applied Biosystem | GeneAmp PCR System 9700 | 用于 PCR 反应的循环扩增 |
| 胸苷(dT) | Sigma | T9250 | 用于营养缺陷型 E. coli π1 的培养 |
| XmaI 限制性内切酶 | New Englan BioLabs | R0180L | 用于质粒和插入片段的酶切消化 |
参考文献
- Bharti, A. R., et al. Leptospirosis: A zoonotic disease of global importance. Lancet Infectious Disease. 3 (12), 757-771 (2003).
- Costa, F., et al. Global morbidity and mortality of Leptospirosis: A systematic review. PLoS Neglected Tropical Disease. 9 (9), 0003898(2015).
- Shapiro, R. S., et al. A CRISPR-Cas9-based gene drive platform for genetic interaction analysis in Candida albicans. Nature Microbiology. 3 (1), 73-82 (2018).
- Fernandes, L. G. V., et al. Gene silencing based on RNA-guided catalytically inactive Cas9 (dCas9): a new tool for genetic engineering in Leptospira. Science Reports. 9 (1), 1839(2019).
- Fernandes, L. G. V., Hornsby, R. L., Nascimento, A. L. T. O., Nally, J. E. Genetic manipulation of pathogenic Leptospira: CRISPR interference (CRISPRi)-mediated gene silencing and rapid mutant recovery at 37 C. Science Reports. 11 (1), 1768(2021).
- Jinek, M., et al. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Qi, L. S., et al. Repurposing CRISPR as an RNA-guided platform for sequence-specific control of gene expression. Cell. 152 (5), 1173-1183 (2013).
- Choudhary, E., Thakur, P., Pareek, M., Agarwal, N. Gene silencing by CRISPR interference in mycobacteria. Nature Communication. 6, 6267(2015).
- Zhukova, A., et al. Genome-wide transcriptional start site mapping and sRNA identification in the pathogen. Frontiers in Cell and Infectious Microbiology. 7, 10(2017).
- Demarre, G., et al. A new family of mobilizable suicide plasmids based on broad host range R388 plasmid (IncW) and RP4 plasmid (IncPalpha) conjugative machineries, and their cognate Escherichia coli host strains. Research in Microbiology. 156 (2), 245-255 (2005).
- Pappas, C. J., Benaroudj, N., Picardeau, M. A replicative plasmid vector allows efficient complementation of pathogenic Leptospira strains. Applied Environmental Microbiology. 81 (9), 3176-3181 (2015).
- Fernandes, L. G. V., Nascimento, A. L. T. O. Specific gene silencing in Leptospira biflexa by RNA-guided catalytically inactive Cas9 (dCas9). Methods in Molecular Biology. 2134, 109-122 (2020).
- Hornsby, R. L., Alt, D. P., Nally, J. E. Isolation and propagation of leptospires at 37 °C directly from the mammalian host. Science Reports. 10 (1), 9620(2020).
- Haake, D. A. Hamster model of leptospirosis. Current Protocols in Microbiology. , Chapter 12, Unit 12E.12 (2006).
- Nascimento, A. L., et al. Comparative genomics of two Leptospira interrogans serovars reveals novel insights into physiology and pathogenesis. Journal of Bacteriology. 186 (7), 2164-2172 (2004).
- Nascimento, A. L., et al. Genome features of Leptospira interrogans serovar Copenhageni. Brazillian Journal of Medical Biology Research. 37 (4), 459-477 (2004).
- Ren, S. X., et al. Unique physiological and pathogenic features of Leptospira interrogans revealed by whole-genome sequencing. Nature. 422 (6934), 888-893 (2003).
- Bulach, D. M., et al. Genome reduction in Leptospira borgpetersenii reflects limited transmission potential. Proceedings of the National Academy of Science U. S. A. 103 (39), 14560-14565 (2006).
- Picardeau, M., et al. Genome sequence of the saprophyte Leptospira biflexa provides insights into the evolution of Leptospira and the pathogenesis of leptospirosis. PLoS One. 3 (2), 1607(2008).
- Fernandes, L. G., et al. OmpL1 is an extracellular matrix- and plasminogen-interacting protein of Leptospira spp. Infections and Immunity. 80 (10), 3679-3692 (2012).
- Fernandes, L. G., et al. Leptospira spp.: Novel insights into host-pathogen interactions. Veterinary Immunology and Immunopathology. 176, 50-57 (2016).
- Castiblanco-Valencia, M. M., et al. Leptospiral immunoglobulin-like proteins interact with human complement regulators factor H, FHL-1, FHR-1, and C4BP. Journal of Infectious Diseases. 205 (6), 995-1004 (2012).
- Choy, H. A., et al. The multifunctional LigB adhesin binds homeostatic proteins with potential roles in cutaneous infection by pathogenic Leptospira interrogans. PLoS One. 6 (2), 16879(2011).
- Siqueira, G. H., et al. The recombinant LIC10508 is a plasma fibronectin, plasminogen, fibrinogen and C4BP-binding protein of Leptospira interrogans. Pathogen and Diseases. 74 (2), (2016).
- Teixeira, A. F., et al. Features of two new proteins with OmpA-like domains identified in the genome sequences of Leptospira interrogans. PLoS One. 10 (4), 0122762(2015).
- Kochi, L. T., et al. The interaction of two novel putative proteins of Leptospira interrogans with E-cadherin, plasminogen and complement components with potential role in bacterial infection. Virulence. 10 (1), 734-753 (2019).
- Murray, G. L., et al. Genome-wide transposon mutagenesis in pathogenic Leptospira species. Infections and Immunity. 77 (2), 810-816 (2009).
- Bourhy, P., Louvel, H., Saint Girons, I., Picardeau, M. Random insertional mutagenesis of Leptospira interrogans, the agent of leptospirosis, using a mariner transposon. Journal of Bacteriology. 187 (9), 3255-3258 (2005).
- Pětrošová, H., Picardeau, M. Screening of a Leptospira biflexa mutant library to identify genes involved in ethidium bromide tolerance. Applied Environmental Microbiology. 80 (19), 6091-6103 (2014).
- Slamti, L., Picardeau, M. Construction of a library of random mutants in the spirochete Leptospira biflexa using a mariner transposon. Methods in Molecular Biology. 859, 169-176 (2012).
- Croda, J., et al. Targeted mutagenesis in pathogenic Leptospira species: Disruption of the LigB gene does not affect virulence in animal models of leptospirosis. Infections and Immunity. 76 (12), 5826-5833 (2008).
- Picardeau, M., Brenot, A., Saint Girons, I. First evidence for gene replacement in Leptospira spp. Inactivation of L. biflexa flaB results in non-motile mutants deficient in endoflagella. Molecular Microbiology. 40 (1), 189-199 (2001).
- King, A. M., et al. High-temperature protein G is an essential virulence factor of Leptospira interrogans. Infections and Immunity. 82 (3), 1123-1131 (2014).
- Lambert, A., et al. FlaA proteins in Leptospira interrogans are essential for motility and virulence but are not required for formation of the flagellum sheath. Infections and Immunity. 80 (6), 2019-2025 (2012).
- Murray, G. L., et al. Leptospira interrogans requires heme oxygenase for disease pathogenesis. Microbes and Infections. 11 (2), 311-314 (2009).
- Ristow, P., et al. The OmpA-like protein Loa22 is essential for leptospiral virulence. PLoS Pathogens. 3 (7), 97(2007).
- Sasaki, Y., et al. Leptospiral flagellar sheath protein FcpA interacts with FlaA2 and FlaB1 in Leptospira biflexa. PLoS One. 13 (4), 0194923(2018).
- Gaj, T., Gersbach, C. A., Barbas, C. F. ZFN, TALEN, and CRISPR/Cas-based methods for genome engineering. Trends in Biotechnology. 31 (7), 397-405 (2013).
- Cress, B. F., et al. Rapid generation of CRISPR/dCas9-regulated, orthogonally repressible hybrid T7-lac promoters for modular, tuneable control of metabolic pathway fluxes in Escherichia coli. Nucleic Acids Research. 44 (9), 4472-4485 (2016).
- Zhao, C., Shu, X., Sun, B. Construction of a gene knockdown system based on catalytically inactive ("dead") Cas9 (dCas9) in Staphylococcus aureus. Applied Environmental Microbiology. 83 (12), (2017).
- Zhao, Y., et al. CRISPR/dCas9-mediated multiplex gene repression in Streptomyces. Biotechnology Journal. , 1800121(2018).
重印与许可
