我们开发了一种可重复的方法,以高细胞分辨率可视化非水解性荧光三磷酸腺苷(ATP)(一种ATP类似物)的内化过程。我们使用独立的实验验证了该方法 体外 和 体内 人肿瘤细胞系和移植人肿瘤组织的免疫缺陷小鼠的检测。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
通过大胞饮作用介导的ATP内化在人肿瘤细胞及肿瘤异种移植小鼠中的荧光显微镜检测
* These authors contributed equally
本文内容
摘要
摘要
三磷酸腺苷(ATP),包括细胞外ATP(eATP),已被证明在肿瘤发生发展的多个方面发挥重要作用,例如药物耐药性、上皮-间质转化(EMT)以及转移。肿瘤内eATP的浓度比正常组织高出103至104倍。eATP不仅作为信使分子激活嘌呤能信号通路以诱导EMT,还可通过癌细胞上调的大胞饮作用(一种特殊的内吞作用)被摄入细胞内,从而执行多种生物学功能。这些功能包括为依赖ATP的生化反应提供能量、在信号转导过程中提供磷酸基团,以及作为转录共因子促进或加速基因表达。ATP易于获取,其在癌症及其他领域的研究无疑将持续增长。然而,eATP的研究仍处于早期阶段,在全面揭示eATP及其被内化后的细胞内ATP所发挥的重要而多样的生物学活性之前,仍有许多未解的问题有待解答。
这些作者的实验室在早期细胞外ATP(eATP)研究中的贡献包括:利用非水解型荧光标记ATP结合高分子量与低分子量荧光葡聚糖(分别作为巨胞饮和内吞作用的示踪剂),并联合多种内吞抑制剂,通过显微成像技术对eATP的内化过程进行监测与表征。该成像方法被应用于肿瘤细胞系以及移植了人源肿瘤的免疫缺陷小鼠模型,以研究eATP的内化行为。 体外 和 体内本文描述了这些 体外 以及在 体内 方案,重点在于调整和优化检测条件,以确保在不同体系中成功开展由大胞饮作用/内吞作用介导的eATP内化检测。
引言
肿瘤内细胞外(即ie)营养物质的 opportune 摄取最近被认定为癌症代谢的一个关键特征1。其中一种重要的营养物质是ATP,因为肿瘤内细胞外ATP(ieATP)的浓度比正常组织高出103至104倍,范围可达数百µM至低mM水平2,3,4,5。作为一种关键的能量和信号分子,ATP在癌细胞和正常细胞的细胞代谢中均发挥核心作用6,7,8。细胞外ATP不仅参与癌细胞的生长,还可促进药物耐药性9。最近还发现了ATP此前未被认知的功能,例如其水溶性促进活性(hydrotropic activity),提示ATP可能参与阿尔茨海默病等疾病的发生10。事实上,我们对ATP在癌细胞、正常细胞及其他病变细胞中的功能理解仍远未完善。然而,由于ATP在细胞内的不稳定性及其高周转率,从技术上监测ATP跨细胞膜进入细胞内的动态过程仍具有挑战性。
为了解决这一问题并填补该研究领域的空白,开发了一种使用不可水解的荧光ATP(NHF-ATP)的方法(图1) 被用作替代物以可视化ATP的内化过程,并观察内化ATP在细胞内的空间定位 体外 和 体内11,12NHF-ATP 已被证明可替代内源性 ATP,用于研究 ATP 在动物细胞膜上的转运,该研究已在癌细胞系以及移植于免疫缺陷小鼠的人类肿瘤组织中开展。11,12此外,向细胞施加大胞饮抑制剂可阻断细胞外ATP的内化,表明细胞外ATP的胞内摄取涉及大胞饮机制。9,11,12该方案允许针对细胞特异性蛋白进行免疫共标记,从而确定哪种细胞类型内化了NHF-ATP。使用 体内 肿瘤异种移植和高分辨率显微镜技术可实现NHF-ATP在组织样本中的空间可视化,甚至可在单个细胞内进行观察。这些方法还允许进行定量分析,例如细胞摄取百分比、巨胞饮囊泡数量以及内化动力学。本文详细描述了NHF-ATP单独或与内吞示踪荧光葡聚糖联合使用时13,14,15,16可用于不同的实验条件下,研究ATP进入细胞后的内化过程及其在细胞内的定位。
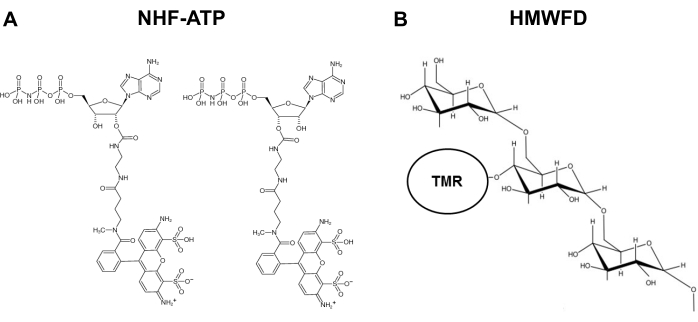
图 1:不可水解荧光 ATP 与四甲基罗丹明标记的高分子量荧光葡聚糖的结构。 (A)NHF-ATP 的结构。(B)HMWFD 的示意图。缩写:ATP = 腺苷三磷酸;NHF-ATP = 不可水解荧光 ATP;TMR = 四甲基罗丹明;HMWFD = 高分子量荧光葡聚糖。 请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
本文报告的所有操作均按照俄亥俄大学动物照护与使用委员会(IACUC)以及美国国立卫生研究院(NIH)的规定进行。
1. 选择不可水解的荧光ATP(NHF-ATP)和葡聚糖
- 根据所需的发射波长(例如,配备合适滤光片的成像系统)以及拟研究的特定胞吞过程,选择荧光染料标记的 NHF-ATP(图 1A)和胞吞示踪剂,即高分子量与低分子量荧光葡聚糖(TMR-HMWFD 和 TMR-LMWFD)(图 1B)。
2. ATP定位研究, 体外 (图2)
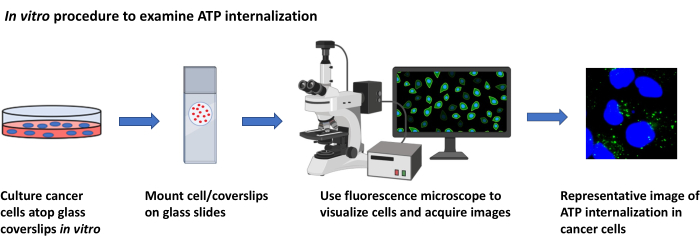
图2: 体外 检测ATP内化的实验步骤 使用荧光显微镜观察培养癌细胞中细胞外ATP内化的实验方案示意图 请点击此处以查看此图的放大版本。
- 细胞培养与细胞制备
注意:在组织培养罩内无菌条件下进行细胞培养。- 在37 °C水浴中预热含10% (v/v) 胎牛血清(FBS)和1% (v/v) 青霉素/链霉素的杜尔贝科改良伊格尔培养基(DMEM/FBS)、无菌磷酸盐缓冲液(PBS)以及0.25%胰蛋白酶/乙二胺四乙酸(EDTA)。
- 在100 mm组织培养皿中用DMEM/FBS培养人癌细胞。将细胞置于37 °C、5% CO2气氛的培养箱中维持培养。
- 当细胞达到汇合状态时,先移除培养基,然后用5 mL无菌PBS冲洗培养皿,吸除PBS后加入3 mL 0.25%胰蛋白酶。在37 °C、5% CO2气氛中孵育5 min以进行消化。
- 取出培养皿,加入6 mL DMEM/FBS以终止胰蛋白酶消化。将悬浮细胞转移至15 mL圆锥形离心管中,在800 × g 条件下离心5 min以沉淀细胞。
- 离心后吸除上清液,用移液器吸取10 mL DMEM/FBS重悬细胞沉淀。
- 使用血细胞计数板计数细胞密度和活率,并用DMEM/FBS将细胞悬液稀释至约7.5 × 104 个细胞/mL。
- 盖玻片准备与细胞接种
- 用70%乙醇清洗12 mm盖玻片,并用精细擦拭纸小心擦干。通过高压灭菌法对盖玻片及一对镊子进行灭菌处理。
- 在组织培养罩内,用镊子将一片盖玻片放入24孔组织培养板的每一孔中。
注意:后续将直接把带有细胞的盖玻片封片于显微镜载玻片上用于成像。 - 向含有灭菌盖玻片的24孔板中每孔加入300 µL细胞悬液(含DMEM/FBS),接种密度约为每孔2.5 × 104 个细胞。在37 °C、5% CO2条件下无菌孵育。
- 细胞饥饿处理
- 接种24小时后,移除各孔中的DMEM/FBS,立即向每孔加入300 µL预热的无血清DMEM,使细胞饥饿15–18小时,以诱导细胞对外源营养物质的摄取。
注意:15–18小时的饥饿时间是关键实验参数。
- 接种24小时后,移除各孔中的DMEM/FBS,立即向每孔加入300 µL预热的无血清DMEM,使细胞饥饿15–18小时,以诱导细胞对外源营养物质的摄取。
- NHF-ATP与HMWFD/LMWFD溶液的制备
- 使用分析天平在1.5 mL微量离心管中称取高分子量(70 kDa)荧光TMR-葡聚糖(TMR-HMWFD,1 mg/mL),该试剂作为巨胞饮小泡的示踪剂,或NHF-ATP(10 µmol/L),溶于无血清DMEM中。将离心管避光放置于37 °C水浴中15 min。
- 在室温下以12,000 × g 离心5 min。小心将澄清的上清液转移至新的1.5 mL微量离心管中,保留沉淀或不溶性晶体,以去除未溶解的颗粒。
- 将步骤4.1中制备的溶液加入各孔细胞中,在37 °C下孵育30 min。
注意:若需将HMWFD与NHF-ATP溶液混合后共孵育细胞,则应分别配制两倍终浓度的溶液,后续以1:1比例混合,以获得准确的工作浓度。试剂对光敏感,操作过程需避光。
- 细胞处理与固定
- 在新的24孔板中,向五个孔中各加入500 µL预热的PBS。
- 细胞孵育结束后,用镊子小心取出每一片盖玻片,将其浸入500 µL预热的PBS中进行冲洗。依次使用五个含PBS的孔重复冲洗五次。
注意:对载有细胞的盖玻片进行轻柔洗涤是本实验成功的关键。 - 最后一次PBS洗涤后,用精细擦拭纸轻拍盖玻片以吸除多余PBS,立即将盖玻片转移至预冷(4 °C)的3.7%甲醛溶液中(已预先加入24孔板中),在室温下固定15 min。
- 细胞固定期间,用70%乙醇预先清洁显微镜载玻片。从孔中取出盖玻片,每片盖玻片使用5 µL含细胞核染料4′,6-二脒基-2-苯基吲哚(DAPI)的水性封片剂封片于载玻片上。用纸巾或精细擦拭纸轻轻吸除多余的PBS。
- 荧光显微镜观察与图像采集
- 上述步骤完成后2至24小时内,使用落射荧光成像系统及数据采集软件获取细胞以及内化HMWFD和/或NHF-ATP的荧光图像。
注意:本小节描述使用配备落射荧光成像功能的Nikon NiU显微镜及Nikon NIS Elements软件进行图像采集的步骤。也可使用其他同类成像系统和采集软件,请遵循制造商的操作说明。- 将载玻片置于正置落射荧光显微镜的载物台上,以双目模式观察,并启动成像程序。
- 选择10倍物镜,调节载物台以确定焦平面,以蛇形路径从左至右扫描载玻片,识别感兴趣区域。
注意:不同细胞类型感兴趣区域的识别方式各异,某些细胞系或癌症类型对TMR-HMWFD和/或NHF-ATP的摄取程度存在显著差异。 - 切换至40倍物镜,并通过显微镜上的切换开关从双目模式转为图像采集模式。
- 点击成像程序中的实时质量图标,以预览并随后采集图像。
- 在注释与测量工具栏的OC面板中,为每个滤光片组或荧光通道设定曝光参数。
注意:由于各通道信号强度不同,需为每个通道选择合适的曝光时间。例如,DAPI通道曝光时间为200 ms,HMWFD通道为2 s,NHF-ATP通道为4 s。一旦确定各通道的曝光时间,应在所有不同处理或条件的图像中保持该设置不变。 - 各通道曝光参数设定完成后,使用多通道采集工具栏,以设定的曝光参数采集三通道图像。
注意:通过多通道ND采集模式可实现同一视野各通道的自动图像采集,物镜转塔切换期间快门自动关闭。 - 也可手动采集多通道图像:通过切换滤光片组,为每个通道分别设定曝光时间,在每次图像采集之间开关快门,并将各通道单独采集的图像进行叠加。
注意:ND采集模式可自动完成该过程并生成合并图像。 - 将图像保存为.nd2文件(Nikon Elements格式可保存元数据),同时保存包含合并通道图像及各单独通道图像的TIF文件。
注意:TIF文件可兼容更广泛的软件应用。 - 在分析工具栏中使用对象计数功能,对已保存的.nd2图像文件中NHF-ATP、TMR-HMWFD和/或TMR-LMWFD阳性细胞数量进行计数。
- 通过分析程序将数据导出至电子表格。
- 上述步骤完成后2至24小时内,使用落射荧光成像系统及数据采集软件获取细胞以及内化HMWFD和/或NHF-ATP的荧光图像。
- 数据量化与分析
- 对每种实验条件,采集50至100个细胞的图像用于量化分析。使用数据分析软件(落射荧光成像系统自带或其他软件)计数并计算每个细胞中荧光囊泡的平均数量。
- 采用适当的统计学方法对量化结果进行分析。
3. 肿瘤中ATP的内化 离体 (图3)
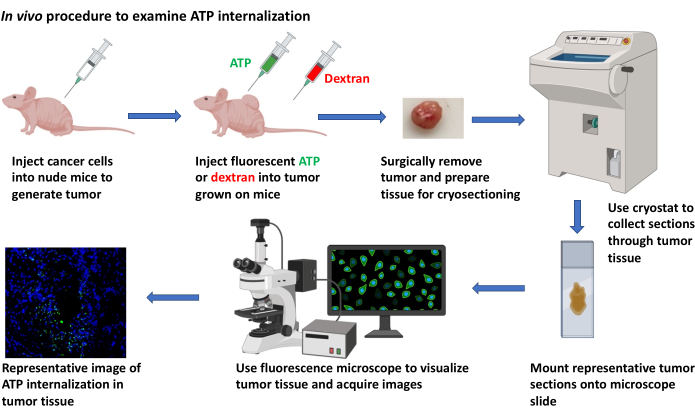
图3: 在体 检测ATP内化的实验步骤 利用冷冻切片和荧光显微镜观察异种移植瘤中细胞外ATP内化的实验方案示意图 请点击此处查看此图的放大版本。
- 用于移植的细胞培养物制备
- 在37 °C条件下,使用添加了FBS(终浓度为10% v/v)和1%(v/v)青霉素/链霉素的DMEM培养基,在225 cm2培养瓶中将癌细胞培养至80%汇合度。
- 用10 mL PBS洗涤细胞两次。将0.25%胰蛋白酶/EDTA预热至37 °C,加入8 mL胰蛋白酶/EDTA,37 °C孵育2分钟。
- 当细胞开始从培养瓶底部脱落时,使用10 mL无菌移液管加入8 mL DMEM/FBS。反复吹打两次以充分解离贴壁细胞,并用移液管将脱落的细胞转移至50 mL锥形离心管中。
- 使用10 mL移液管加入10 mL DMEM/FBS,收集所有残留的悬浮细胞至同一50 mL锥形离心管中。
- 将细胞悬液在600 × g、4 °C条件下离心4分钟。弃去上清液,用1 mL冰浴PBS重悬细胞。
- 使用血细胞计数板测定细胞密度。计数过程中保持细胞悬液置于冰上。
- 将细胞悬液在600 × g、4 °C条件下离心4分钟。弃去上清液,用冰浴PBS重悬细胞,使细胞密度达到每100 µL PBS含5 × 10⁶个细胞。将细胞悬液转移至1.5 mL微量离心管中。
- 皮下注射癌细胞以建立异种移植瘤模型
- 使用无乳胶注射器(1 mL)和精密滑动针头(27 G针头)进行癌细胞注射。
- 将细胞悬液(5 × 10⁶个细胞溶于100 µL PBS中)转移至1.5 mL微量离心管,用注射器吸取细胞悬液。
- 选择免疫缺陷(裸鼠)小鼠侧 flank 的注射位点,用75%乙醇轻轻清洁皮肤,并用无尘擦拭纸擦去多余乙醇。
- 进行皮下注射时,将针头与皮肤呈约10°角持握,针尖斜面朝上,刚好插入皮肤下方,使针头仅外露1–2 mm。在约10秒内缓慢推注细胞悬液。
- 注射完毕后,保持针头原位3–5秒,然后拔出针头,并用手指对注射部位施加轻柔但稳固的压力3–5秒,以防止注射内容物渗漏。
- 使用游标卡尺监测并测量肿瘤生长,直至肿瘤体积达到200–500 mm3。
- 肿瘤切除后使用的HMWFD和NHF-ATP溶液的制备
- 将300 µL 16 mg/mL HMWFD溶解于无血清DMEM(培养基)中,在37 °C水浴中孵育30分钟,并按上述方法在12,000 × g条件下离心5分钟。将溶液转移至1.5 mL微量离心管中。
- 将40 µL NHF-ATP类似物储备液(1 mM)加入160 µL无血清DMEM中,配制成0.2 mM NHF-ATP溶液。
- 实验孔板的制备
注:本实验设计用于检测HMWFD + NHF-ATP的细胞内化,反映巨胞饮小泡的摄取情况。- 按如下方式制备各孔:第1孔,对照组:200 µL无血清DMEM;第2孔,对照组:100 µL 16 mg/mL LMWFD + 100 µL无血清DMEM = 200 µL 8 mg/mL LMWFD;第3孔,对照组:100 µL 0.2 mM NHF-ATP + 100 µL无血清DMEM = 200 µL 0.1 mM NHF-ATP;第4孔,实验组:100 µL 16 mg/mL HMWFD + 100 µL 0.2 mM NHF-ATP = 200 µL含0.1 mM NHF-ATP和8 mg/mL HMWFD的混合溶液。
- 肿瘤组织的制备
- 通过颈椎脱臼法或根据IACUC批准的方案处死小鼠。
- 使用10号手术刀将分离的肿瘤切成约500–1,000 µm厚的切片。
- 将肿瘤切片置于含100 µM NHF-ATP和/或8 mg/mL H/LMWFD的无血清DMEM中,在37 °C、5% CO2条件下孵育40分钟。
注:孵育后,肿瘤组织代谢会导致培养基颜色发生变化。 - 用37 °C预热的PBS冲洗组织(24孔板中每次冲洗使用2 mL PBS)。
- 将组织转移至新的24孔板中,加入预热的新鲜PBS,轻轻振荡,重复冲洗四次。
- 冷冻包埋(制备冷冻组织块)
- 为每例待采集的肿瘤准备标识标签。剪一段2 cm长的实验室胶带,沿长度方向对折,使粘合面相对,形成标签。使用记号笔在标签上标注信息,例如小鼠/肿瘤编号。
- 将不锈钢组织模具直接放置于干冰上,以准备包埋模具。
注:干冰可能导致冻伤、灼伤和窒息。操作时应佩戴隔热手套,在通风良好的区域使用。切勿将干冰储存在密闭容器中,应使用可释放气体的容器(如泡沫塑料箱)储存。 - 在模具冷却的同时,将少量组织冷冻介质滴入10 mm细胞培养皿中,确保其体积足以完全浸没待采集的肿瘤组织。
- 使用带孔勺子捞取切除的肿瘤组织,并立即放入冷冻介质中,确保组织完全浸没。用带孔勺子轻轻滚动组织,使冷冻介质充分覆盖所有表面。
- 小心将组织移入含有冷冻介质的包埋模具中。将对应的标签垂直插入冷冻介质/模具中,使其固定。确保标签上的文字在介质外部清晰可见。
- 当冷冻完成(冷冻介质变为不透明白色)后,将组织块从模具中取出,置于干冰上,重复此过程处理每个肿瘤。在进行冷冻切片前,将组织块在-80 °C条件下储存数月。
- 组织样本切片的制备
- 为最大程度发现具有内化阳性信号的细胞并获得更具代表性的组织区域,使用冷冻切片机在-18至-20 °C条件下连续切取冷冻切片。
- 预冷冷冻切片机工具(刀片、剃刀片、防卷板、组织夹持器、毛笔),并将肿瘤组织块置于冷冻切片机腔室内平衡至-18至-20 °C。将刀片夹持器角度设置为5–10°。根据需要使用剃刀片修整组织块,并使用组织冷冻介质作为“胶水”将其固定在夹持器上。
- 将夹持器锁定在切片机的垂直位置,切片机每次手动旋转将推进设定距离(如10 µm)。将防卷板调整至略高于刀片的位置。在推进切片机前,小心用拇指滑过组织块底边,防止组织卷曲。
- 当切片机推进,组织切片落在金属板上时,使用毛笔引导切片并展开组织(如有需要)。
- 将显微镜载玻片悬于组织切片上方但不接触,使切片被载玻片吸附。
注:冷冻切片机刀片(高剖面、一次性)极为锋利,可能造成严重伤害。操作刀片和切片机时需格外小心。如有条件,应使用刀片保护装置。操作前需接受适当培训。 - 将肿瘤切成10 µm厚的切片,并立即将切片转移至带正电荷的玻璃载玻片上。
注:对于连续切片,首先在八张带正电荷的载玻片的左上角各收集一片10 µm厚的切片。然后通过切片机推进后续100–200 µm的组织并弃去。立即继续将所有切片转移至玻璃载玻片上。 - 接着,在每张载玻片上先前放置的组织切片旁再收集另一片10 µm厚的切片。重复此连续收集过程,直至每张载玻片上均含有八片组织切片,各切片间隔100–200 µm。切片应避光保存以维持荧光信号。
注:载玻片上的组织切片可在-80 °C的切片盒中储存数月。
- 为最大程度发现具有内化阳性信号的细胞并获得更具代表性的组织区域,使用冷冻切片机在-18至-20 °C条件下连续切取冷冻切片。
- 组织切片的固定
- 关键步骤:在-18至-20 °C条件下,用95%乙醇固定组织切片5分钟。
- 用室温PBS洗涤固定后的切片5分钟,然后使用10 µL含DAPI的水溶性封片剂将固定后的肿瘤切片封固于盖玻片下。
- 封片后12–24小时,按照前述培养细胞的方法,通过荧光显微镜观察固定后的肿瘤切片并采集图像。
- 荧光显微镜观察与图像采集
- 确定感兴趣区域并采集图像,方法见第2.6节。
- 数据定量与分析
- 对细胞进行定量并进行适当的统计学分析,方法见第2.7节。
4. 肿瘤内ATP的摄取,体内
- 按照第3.1节所述方法准备用于移植的细胞培养物。
- 通过皮下注射癌细胞以建立异种移植肿瘤
- 按照第3.2节所述方法建立异种移植肿瘤。
- 向异种移植肿瘤内注射ATP和/或葡聚糖
- 按照上述方法配制含或不含NHF-ATP(100 µM)的DMEM(对照溶剂)或8 mg/mL HMWFD或LMWFD的处理溶液。
- 使用1 mL注射器吸取50 µL上述任一处理溶液,并直接注射入每个异种移植肿瘤中。每种处理重复四次生物学重复实验。
- 组织采集与冷冻包埋
- 为待采集的每个肿瘤制备标识标签。剪取一段2 cm长的实验室胶带,沿长度方向对折,使粘合面相对。使用记号笔在标签上标记,例如小鼠/肿瘤编号。
- 注射后约5分钟,采用颈椎脱位法或根据IACUC批准的方案处死小鼠。
- 使用10号手术刀在肿瘤附近做切口,切口方向大致垂直于针头注射方向。使用镊子和手术剪将肿瘤组织从周围组织中分离切除。
- 根据肿瘤总体积大小,将肿瘤分割为两至四个1 cm2大小的组织块。
- 按照第3.6节所述方法准备包埋模具并进行组织包埋。确保从瘤内注射葡聚糖到冷冻包埋的采集时间不超过7–8分钟。
- 组织样本切片的制备
- 按照第3.7节所述方法收集连续肿瘤切片。
- 组织切片的固定
- 按照第3.8节所述方法对组织进行固定。
- 荧光显微镜观察与图像采集
- 确定感兴趣区域并进行图像采集,具体方法见第2.6节。
- 数据定量与分析
- 对细胞进行定量并进行适当的统计学分析,具体方法见第2.7节。
访问受限。请登录或开始试用以查看此内容。
结果
体外研究
通过NHF-ATP与HMWFD或LMWFD的共定位,证明了NHF-ATP的细胞内吞作用(图4)。该实验的成功主要依赖于使用适当浓度的NHF-ATP和葡聚糖,并确定合适的葡聚糖类型(聚赖氨酸型与中性型)。例如,在研究巨胞饮作用时,选择HMWFD,因为它仅被巨胞饮小体摄取13,14,15,16。相反,若研究网格蛋白和/或小窝蛋白介导的内吞作用,则应选择LMWFD,因为这些内吞相关内体体积较小,只能摄取LMWFD14,15,16。荧光葡聚糖有两...
访问受限。请登录或开始试用以查看此内容。
讨论
开发了一种用于分析非水解性ATP细胞内化作用的空间、时间和定量特征的方法。该方法可广泛适用于多种生物系统,包括各类肿瘤发生模型,并提供了相应的技术指导和代表性数据。为获得可解读的数据,在 体内 ATP内化研究(方案第4部分)中,从瘤内注射葡聚糖到冷冻包埋所经历的实验时间必须严格控制。在荧光显微镜成像前,对肿瘤切片后的组织切片进行固定是必要步骤。这两个关键步骤共同确保肿瘤细胞在成像过程中保留已内化的ATP。在分析ATP内化时另一个重要考虑因素是异种移植瘤的异质性。由于不同癌细胞类型的成瘤过程存在差异,可能需要针对该方法的某些环节进行优化,以确定适用于不同癌细胞的理想实验条件。为全面评估肿瘤中ATP的大胞饮作用,必须对整个肿瘤的不同区域进行组织切片成像,因为不同区域的驻留细胞及其内化胞外ATP(eATP)的能力可能存在差异。事实上,该方法在未来的研究中可能揭示不同癌细胞/肿瘤细胞间eATP内化机制的差异。
需要注意的是,NHF-ATP仅可用于取代非结合型ATP或放射性ATP进行内化研究,不能用于其他研究(如代谢研究),因为一旦NHF-ATP从细胞内的巨胞饮体和/或内体...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无竞争利益。
致谢
冰冻切片在俄亥俄大学组织病理学核心实验室现场完成。本工作部分由启动资金(俄亥俄大学文理学院)资助。 & 科学) 致 C Nielsen;NIH 资助 R15 CA242177-01 和 RSAC 奖项致 X Chen。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| A549 细胞,人肺上皮细胞,癌 | 美国国家癌症研究所 | n/a | 成本较低的来源 |
| 丙酮 | 费希尔科技公司 | S25904 | |
| 铝箔,雷诺兹 | 固安捷公司 | 6CHG6 | |
| 水性封片剂,ProLong Gold 抗荧光淬灭试剂 | 赛默飞世尔科技 | P36930 | |
| ATP 类似物 | 耶拿生物科学公司 | NK-101 | |
| 高压灭菌器,灭菌锅 | 固安捷公司 | 33ZZ40 | |
| 刀片,恒冷切片机用,高剖面 | C. L. Sturkey 公司 | DT554550 | |
| 游标卡尺 | 固安捷公司 | 4KU77 | |
| 细胞培养基,Ham's F12 营养混合物,无血清 | 密理博-西格玛公司 | 51651C-1000ML | |
| 带摆动转子的冷冻离心机 | 艾本德公司 | 5810R | |
| 氯仿 | Acros 有机化学公司 | 423555000 | |
| 锥形管,15 mL | VWR 公司 | 21008-216 | |
| 锥形管,50 mL | VWR 公司 | 21008-242 | |
| 盖玻片,玻璃,12 mm | 康宁公司 | 2975-245 | |
| 恒冷切片机,Leica CM1950 | 徕卡生物系统公司 | CM1950 | |
| 精密擦拭纸,Kim Wipes | 金佰利公司 | 34155 | |
| 葡聚糖,可被赖氨酸固定的,高分子量(HMW) | 英潍捷基公司 | D1818 | 分子量 = 70,000,四甲基罗丹明标记 |
| 葡聚糖,中性,高分子量(HMW) | 英潍捷基公司 | D1819 | |
| 杜尔贝科改良伊格尔培养基(DMEM),无血清 | 费希尔科技公司 | 11885076 | |
| 干冰 | 本地配送 | 定制订单 | |
| 落射荧光成像系统,Nikon NiU 及 Nikon NIS Elements 采集软件 | 尼康公司 | 定制订单 | |
| 乙醇 | 费希尔科技公司 | BP2818-4 | |
| 胎牛血清(FBS) | 赛默飞世尔科技 | 16000044 | |
| 镊子,Dumont #7,弯头 | 精细科学工具公司 | 11274-20 | |
| 镊子,Dumont #5,直头 | 精细科学工具公司 | 11254-20 | |
| 手套(小号、中号、大号) | 麦克罗弗莱克斯公司 | N191, N192, N193 | |
| 手套,MAPA Temp-Ice 700 保温手套(用于操作干冰) | 费希尔科技公司 | 19-046-563 | |
| 血细胞计数板 | 戴杰公司 | EF16034F EA | |
| 细胞培养箱 | 艾本德公司 | Galaxy 170 S | |
| 标签胶带 | 费希尔科技公司 | 159015R | |
| 记号笔,Sharpie(超细) | 史泰博公司 | 642736 | |
| 小鼠,免疫缺陷型(Nu/J) | 杰克逊实验室 | 2019 | |
| 微量离心机,accuSpin Micro17 | 费希尔科技公司 | 13-100-675 | |
| 微量离心管,Eppendorf 管(1.5 mL) | Axygen 公司 | MCT-150-C | |
| 显微镜载玻片盒 | 费希尔科技公司 | 50-751-4983 | |
| 针头,27 号 | 贝克顿-迪金森公司 | 752 0071 | |
| 画笔 | 固安捷公司 | 39AL12 | |
| 纸巾 | 史泰博公司 | 33550 | |
| 多聚甲醛 | Acros 有机化学公司 | 416785000 | |
| 青霉素/链霉素 | 吉布科公司 | 15140122 | |
| 穿孔勺,直径 15 mm,长度 135 mm | Roboz 外科器械公司 | RS-6162 | |
| 磷酸盐缓冲液(PBS) | 费希尔科技公司 | BP3991 | |
| 移液器吸头(10 μL) | 费希尔科技公司 | 02-707-438 | |
| 移液器吸头(200 μL) | 费希尔科技公司 | 02-707-411 | |
| 移液器吸头(1000 μL) | 费希尔科技公司 | 02-707-403 | |
| 移液管,血清学用(10 mL) | VWR 公司 | 89130-910 | |
| 移液器,Gilson P2 | 戴杰公司 | EF9930A | |
| 移液器起始套装,Gilson(2-10 μL,20-200 μL,200-1000 μL) | 戴杰公司 | EF9931A | |
| 平台式摇床 — 旋转式,台式 | 科尔-帕尔默公司 | EW-51710-23 | |
| 带正电荷的显微镜载玻片,Superfrost | 费希尔科技公司 | 12-550-15 | |
| 手术刀,10 号,Surgical Design 公司 | 费希尔科技公司 | 22-079-707 | |
| 手术剪,锐利,弯头 | 精细科学工具公司 | 14005-12 | |
| 图像分析软件,Nikon Elements | 尼康公司 | 定制订单 | |
| 图像分析软件,ImageJ(FIJI) | 美国国立卫生研究院 | n/a | 在线下载(免费) |
| 样本盘,30 mm(卡盘架),恒冷切片机配件 | 徕卡生物系统公司 | 14047740044 | |
| 染色缸,245 mm BioAssay 培养皿 | 康宁公司 | 431111 | |
| 注射器,1 cc | 贝克顿-迪金森公司 | 309623 | |
| 胶带,实验室用,19 mm 宽 | 费希尔科技公司 | 15-901-5R | |
| 计时器 | 费希尔科技公司 | 14-649-17 | |
| 组织培养皿,直径 100 × 15 mm | 费希尔科技公司 | 08-757-100D | |
| 组织培养瓶,225 cm2 | 赛默飞世尔科技 | 159933 | |
| 组织培养板,24 孔 | 贝克顿-迪金森公司 | 353226 | |
| 组织包埋模具,不锈钢 | Tissue Tek 公司 | 4161 | |
| 组织冷冻介质,最佳切割温度(OCT) | 费希尔科技公司 | 4585 | |
| 胰蛋白酶-EDTA(乙二胺四乙酸),0.25% | 吉布科公司 | 25200072 | |
| 水浴锅,Precision GP 2S | 赛默飞世尔科技 | TSGP2S |
参考文献
- Pavlova, N. N., Thompson, C. B. The emerging hallmarks of cancer metabolism. Cell Metabolism. 23 (1), 27-47 (2016).
- Pellegatti, P., et al. Increased level of extracellular ATP at tumor sites: in vivo imaging with plasma membrane luciferase. PLoS ONE. 3, 25992008(2008).
- Falzoni, S., Donvito, G., Di Virgilio, F. Detecting adenosine triphosphate in the pericellular space. Interface Focus. 3 (3), 20120101(2013).
- Michaud, M., et al. Autophagy-dependent anticancer immune responses induced by chemotherapeutic agents in mice. Science. 334, 1573-1577 (2011).
- Wilhelm, K., et al. Graft-versus-host disease is enhanced by extracellular ATP activating P2X7R. Nature Medicine. 16, 1434-1438 (2010).
- Vander Heiden, M. G., Cantley, L. C., Thompson, C. B. Understanding the Warburg effect: the metabolic requirements of cell proliferation. Science. 324, 1029-1033 (2009).
- Cairns, R. A., Harris, I. S., Mak, T. W. Regulation of cancer cell metabolism. Nature Reviews Cancer. 11, 85-95 (2011).
- Chen, X., Qian, Y., Wu, S. The Warburg effect: evolving interpretations of an established concept. Free Radical Biology & Medicine. 79, 253-263 (2015).
- Wang, X., et al. Extracellular ATP, as an energy and phosphorylating molecule, induces different types of drug resistances in cancer cells through ATP internalization and intracellular ATP level increase. Oncotarget. 8 (5), 87860-87877 (2017).
- Patel, A., et al. ATP as a biological hydrotrope. Science. 356, 753-756 (2017).
- Qian, Y., et al. Extracellular ATP is internalized by macropinocytosis and induces intracellular ATP increase and drug resistance in cancer cells. Cancer Letters. 351, 242-251 (2014).
- Qian, Y., Wang, X., Li, Y., Cao, Y., Chen, X. Extracellular ATP a new player in cancer metabolism: NSCLC cells internalize ATP in vitro and in vivo using multiple endocytic mechanisms. Molecular Cancer Research. 14, 1087-1096 (2016).
- Commisso, C., et al. Macropinocytosis of protein is an amino acid supply route in Ras-transformed cells. Nature. 497, 633-637 (2013).
- Li, L., et al. The effect of the size of fluorescent dextran on its endocytic pathway. Cell Biology International. 39, 531-539 (2015).
- Yanagawa, Y., Matsumoto, M., Togashi, H. Enhanced dendritic cell antigen uptake via alpha2 adrenoceptor-mediated PI3K activation following brief exposure to noradrenaline. Journal of Immunology. 185, 5762-5768 (2010).
- Hoppe, H. C., et al. Antimalarial quinolines and artemisinin inhibit endocytosis in Plasmodium falciparum. Antimicrobial Agents & Chemotherapy. 48, 2370-2378 (2004).
- Chaudry, I. H. Does ATP cross the cell plasma membrane. Yale Journal of Biology & Medicine. 55, 1-10 (1982).
- Pant, H. C., Terakawa, S., Yoshioka, T., Tasaki, I., Gainer, H. Evidence for the utilization of extracellular [gamma-32P]ATP for the phosphorylation of intracellular proteins in the squid giant axon. Biochimica et Biophysica Acta. 582, 107-114 (1979).
- Chaudry, I. H., Baue, A. E. Further evidence for ATP uptake by rat tissues. Biochimica et Biophysica Acta. 628, 336-342 (1980).
- Koppenol, W. H., Bounds, P. L., Dang, C. V. Otto Warburg's contributions to current concepts of cancer metabolism. Nature Reviews Cancer. 11, 325-337 (2011).
- Dang, C. V. Links between metabolism and cancer. Genes & Development. 26, 877-890 (2012).
- Israelsen, W. J., Vander Heiden, M. G. ATP consumption promotes cancer metabolism. Cell. 143, 669-671 (2010).
- Koster, J. C., Permutt, M. A., Nichols, C. G. Diabetes and insulin secretion: the ATP-sensitive K+ channel (K ATP) connection. Diabetes. 54, 3065-3072 (2005).
- Szendroedi, J., et al. Muscle mitochondrial ATP synthesis and glucose transport/phosphorylation in type 2 diabetes. PLoS Medicine. 4, 154(2007).
- Miyamoto, S., et al. Mass spectrometry imaging reveals elevated glomerular ATP/AMP in diabetes/obesity and identifies sphingomyelin as a possible mediator. EBioMedicine. 7, 121-134 (2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
