本文介绍一种从冻存小鼠肾脏中分离高质量细胞核的实验方案,该方法可提高肾髓质细胞类型的代表性,并避免酶解组织解离导致的基因表达异常。
方法文章
从成年小鼠肾脏中分离细胞核用于单细胞核RNA测序
* These authors contributed equally
本文内容
摘要
摘要
肾脏调节多种生物学过程,如水、电解质和酸碱稳态。肾脏的生理功能由多种细胞类型执行,这些细胞沿器官的皮髓质轴以复杂的结构排列。单细胞转录组学的最新进展加快了人们对肾脏生理和疾病中细胞类型特异性基因表达的理解。然而,单细胞RNA测序(scRNA-seq)常用的基于酶的组织解离方案通常需要新鲜(非存档)组织,会引入转录应激反应,并倾向于富集肾脏皮质中数量较多的细胞类型,导致髓质细胞在分析中代表性不足。
本文介绍了一种可避免上述问题的实验方案。该方案基于在 4 °C 条件下从冷冻的肾脏组织中分离细胞核。细胞核取自小鼠肾脏中央部位,包含皮质、外髓质和内髓质。这种方法减少了全肾样本中皮质细胞占比过高的问题,有利于髓质细胞的代表性,从而使数据能够充分反映整个皮髓质轴的细胞组成。本方案操作简便、快速且具有良好的可适配性,有助于推动单细胞核转录组学在肾脏研究中的标准化应用。
引言
肾脏具有高度复杂的组织结构。它们沿皮髓质轴分布,由功能和解剖上各不相同的节段组成,介导多种生物学功能,如细胞外液容量、电解质平衡以及酸碱稳态的调节1。
单细胞转录组学的进展使得对复杂组织进行深入表征成为可能,并加速了人们对肾脏生理、发育及疾病中节段和细胞类型特异性基因表达的理解2,3,4。
然而,单细胞RNA测序(scRNA-seq)中常用的基于酶解的组织解离方案存在多种缺点和局限性。根据具体方案的不同,这些方法会引发转录水平的应激反应,并导致组织解离偏向于更容易分离的皮质细胞类型5,6。尽管使用冷活性蛋白酶处理胚胎肾脏的方案能够在一定程度上减轻与应激相关的转录改变,但仍无法克服对皮质细胞的解离偏好,且可能难以直接适用于不同类型的病变肾脏组织7。此外,单细胞技术难以与冷冻组织样本兼容,其应用因此主要局限于未经存档的新鲜组织,从而使组织采集成为一项限制性因素6。
单核RNA测序(snRNA-seq)可克服这些局限性8,9。本文中,我们介绍一种从冷冻的成年小鼠肾脏组织中央切片中分离细胞核的实验方案(图1)10。该方案操作简便,为获得具有多样化肾细胞类型均衡代表性的RNA测序文库提供了一种标准化方法,适用于不涉及显著区域性组织变化的实验模型。在后一种情况下,本方案也可使用完整肾脏进行。
方案
所有动物实验均依照《动物福利法》(TierSchG)和《实验动物福利条例》(TierSchVersV)进行,并已获得本机构(MDC)当地主管部门和动物福利官员的批准。
1. 组织制备
- 为每只将要获取的肾脏准备一个6孔板,每孔加入2 mL 1×磷酸盐缓冲液(PBS)。另准备一个6孔板,每孔每肾加入2 mL RNA稳定溶液。将两个板预先在冰上预冷。
- 处死一只3至6月龄的雄性C57BL/6小鼠。将小鼠置于解剖托盘上,固定四肢,并用70%乙醇消毒腹部。
- 使用镊子和剪刀从腹部切开至肋骨区域。将肠道及其他器官轻轻拨向一侧,用剪刀小心剪断输尿管、肾动脉和肾静脉以取出肾脏。将肾脏放入预先准备好的冰冻1×PBS中清洗,并去除肾筋膜及残留脂肪组织,直至所有白色组织被清除(图2A)。
- 将肾脏置于冰冷的解剖板上,使用锋利的解剖刀或剃须刀片切取1–2 mm厚的中间切片。确保组织块包含完整的皮髓质轴(图2B)。使用显微解剖剪和镊子小心修剪中心组织块两侧的皮质部分。在解剖后的组织块中,皮质、外髓质和内髓质三个区段应清晰可辨(图2C)。
注意:切片厚度不应超过2 mm,重量不超过20 mg,以确保有足够的缓冲液充分裂解组织,并最大限度减少cDNA文库中的环境背景RNA。环境RNA会浪费测序容量,因其不与单个细胞核相关联。 - 将肾脏组织块转移至预先准备好的RNA稳定溶液中,于4 °C孵育24小时,以防止RNA降解。24小时后,移除RNA稳定溶液,将组织保存于-80 °C直至后续使用。用纸巾小心吸除多余液体。
2. 细胞核分离
- 清洗与准备步骤
- 使用70%乙醇和RNase去污染溶液清洁工作台面和移液器。
- 使用RNase去污染溶液清洁一个圆底2 mL组织研磨管及配套的研杵A和B,随后用70%乙醇和无RNase水冲洗(每个样品使用一套研磨管和研杵)。使其完全干燥。
- 将离心机预冷至4 °C。
- 在冰上为每个样品标记并预冷三个15 mL收集管、一个1.5 mL收集管、一个5 mL荧光激活细胞分选(FACS)收集管以及一个干燥的研磨管。
- 缓冲液配制
- 将核糖核苷-钒酸复合物储存液加热至65 °C,直至按制造商说明重悬为绿色至黑色的澄清溶液。11
- 按表1A所述配制含4%牛血清白蛋白(BSA)的1x PBS。另按表1B配制含0.04% BSA的1x PBS。使用0.2 µm无表面活性剂醋酸纤维素(SFCA)膜注射器滤器过滤两种溶液,并置于冰上备用。
- 配制核裂解缓冲液1(NLB1,表1C)。向15 mL管中加入4 mL用于核裂解缓冲液2(NLB2,表1D)的EZ裂解缓冲液,以及2 mL用于核悬浮缓冲液(NSB,表1E)的0.04% BSA/PBS。在使用前立即按以下方案所述向NLB2和NSB中加入RNase抑制剂溶液。置于冰上备用。
- 配制含10%蔗糖的EZ裂解缓冲液(蔗糖梯度缓冲液,表1F)。充分混匀后,使用0.2 µm SFCA膜注射器滤器将缓冲液过滤至新的15 mL管中。置于冰上备用。
- 组织匀浆与细胞裂解
注意:为最大限度减少RNA降解,所有操作均在冰上进行。研磨管、培养皿及所有缓冲液均需预先冷却。所有重悬步骤均通过小心移液完成核悬浮液的混匀。切勿涡旋样品,以免产生剪切力损伤细胞核。- 取冷冻的肾组织块,转移至冰上含有1 mL NLB1的60 mm聚苯乙烯培养皿中。
- 使用剃刀刀片或手术刀彻底切碎组织(图3A)。
- 剪去1 mL移液器吸头的尖端,将切碎的组织和缓冲液转移至研磨管中。确保所有组织碎片均被转移。必要时用缓冲液冲洗培养皿5–10次。
- 在冰上通过缓慢上下移动研杵A,在研磨管中匀浆悬浮液,共25次。避免因快速移动产生气泡(图3B)。
- 将匀浆液通过100 µm滤网过滤至预冷的15 mL收集管中,并用另1 mL NLB1冲洗滤网。
- 用冷的EZ核裂解缓冲液冲洗研磨管,弃去冲洗液。
- 将匀浆液重新转移回研磨管中,在冰上通过缓慢上下移动研杵B,匀浆悬浮液共15次。避免因快速移动产生气泡(图3C)。
- 将匀浆液转移至预冷的15 mL收集管中。用另2 mL NLB1冲洗研磨管,并确保所有组织碎片均转移至收集管。将匀浆液(总体积4 mL)在冰上孵育5分钟以裂解细胞。
- 细胞核纯化
- 将匀浆液通过40 µm滤网过滤至预冷的15 mL收集管中。在4 °C下,使用摆桶转子离心机以500 x g离心5分钟。同时,向NLB2(表1D)中加入RNase抑制剂溶液。
- 弃去上清液,注意不要扰动沉淀。小心地用4 mL NLB2重悬沉淀。
- 将1 mL蔗糖梯度缓冲液作为垫层小心地铺在悬浮液下方。在4 °C下,使用摆桶转子离心机以500 x g离心5分钟。同时,向NSB(表1E)中加入RNase抑制剂溶液。
- 离心后,轻柔地从离心机中取出收集管,操作时注意不要扰动两层液体。细胞碎片可见于两层之间。小心地先移除上层的碎片,再移除剩余上清液,注意不要扰动细胞核沉淀,然后小心地用1 mL NSB重悬沉淀。
注意:重悬体积取决于用于分离的组织量以及上一步离心后获得的沉淀大小。体积可能需要根据预期的细胞核数量进行调整。 - 将匀浆液通过20 µm滤网过滤至预冷的5 mL FACS收集管中。
3. 细胞核分选
- 向FACS收集管中的匀浆液加入每毫升NSB含20 µL的4′,6-二脒基-2-苯基吲哚(DAPI),使终浓度为2 µM,轻轻混匀。冰上孵育5分钟。
- 预先准备好预冷的1.5 mL收集管,其中加入20 µL的4% BSA /1x PBS,并加入0.5 µL RNase抑制剂溶液,使终浓度为1 U/µL。立即进行分选。
- 使用流式细胞分选仪对细胞核进行分选。
- 在将FACS收集管插入分选仪前,短暂混匀细胞核悬液。
- 根据前向散射光(FSC)和侧向散射光(SSC)设置第一个门P1,以排除碎片和聚集体(图4A)。
- 为排除空核、破损细胞核及多联体,基于DAPI-面积(DAPI-Area)与DAPI-高度(DAPI-Height)设置后续门控(DAPI-A vs DAPI-H)(图4B)。
- 将单个细胞核分选至含有4% BSA /1x PBS并添加了1 U/µL RNase抑制剂溶液的1.5 mL收集管中(该收集管已在步骤3.2中准备)。
4. 质量控制
- 在荧光显微镜下或自动计数板中对细胞核浓度进行至少两次独立测量,并评估悬液质量(图5)。
注意:最佳浓度范围为 700 - 1,200 个细胞核/µL。较低的细胞浓度(如 700 个细胞核/µL)可能更优,因为由此产生的 cDNA 文库中环境背景 RNA(不与单个细胞核相关的转录本)含量较低。 - 根据目标测序单细胞核回收量,计算所需细胞核悬液的体积。为避免细胞核聚集和 RNA 降解,应立即进行文库构建。
结果
为了评估本方案的性能,我们采用10x Genomics Chromium单细胞3'基因表达试剂盒(v3.1)进行文库构建,并使用Seurat软件包分析snRNA-seq数据12,13。
图6 展示了一个典型单核RNA测序(snRNA-seq)文库的结果。为了评估我们所获得细胞核的质量,我们绘制了基因数量与转录本数量(由唯一分子标识符(UMIs)定义)之间的关系图,并根据线粒体reads所占比例进行着色(图6A)。高质量的细胞核通常表现出较高的reads数,UMI数量与基因数量之间存在相关性,且线粒体reads比例较低。
在后续分析中,排除了基因计数少于500或多于4000,或线粒体RNA占比超过5%的细胞核(n = 828)。仅保留至少在三个细胞核中表达的基因。在剩余的6,000个细胞核中,我们共检测到约20,000个基因,每个细胞核的中位基因数为1,600,中位UMI数为2,800(图6B)。
聚类基于高度可变基因进行。我们共鉴定出18个聚类。细胞身份根据已知的标记基因进行注释(未展示)。某一细胞类型的子聚类被合并为一个聚类,最终得到共11种不同的细胞类型:足细胞(podocytes)、近端小管(PT)、细段(tL)、粗升支(TAL)、远曲小管(DCT)、连接小管(CNT)、集合管主细胞和闰细胞(CD-PC, A-IC, B-IC)、肾盂深部髓质上皮细胞(DMEP)以及内皮细胞。聚类富集标记基因的基因表达模式以点图形式展示(图6C),细胞类型聚类结果则在t分布随机邻域嵌入(t-SNE)图中呈现(图6D)。
为了评估样本中的细胞类型分布,我们计算了每种细胞类型的百分比(图6E),并据此确定近端小管(PT)与髓袢升支粗段(TAL)的比例。PT主要位于肾脏皮质区,在肾脏单细胞数据集中常被过度代表,原因是PT细胞易于解离且在全肾样本中数量丰富。而TAL则贯穿整个外髓质14。因此,PT与TAL组分的比例可作为衡量肾脏单细胞数据集中髓质细胞类型富集程度的一个良好指标。通常情况下,单细胞全肾数据集中的PT/TAL比例范围从8(未经发表的经冷蛋白酶处理的全肾组织数据)到酶解解离组织的4510,14,15。在本研究展示的单核RNA测序(snRNA-seq)数据集中,我们实现了PT/TAL比例为2的结果。该结果表明,在组织解剖过程中去除多余皮质并结合snRNA-seq技术,可显著改善肾脏细胞类型的代表性。
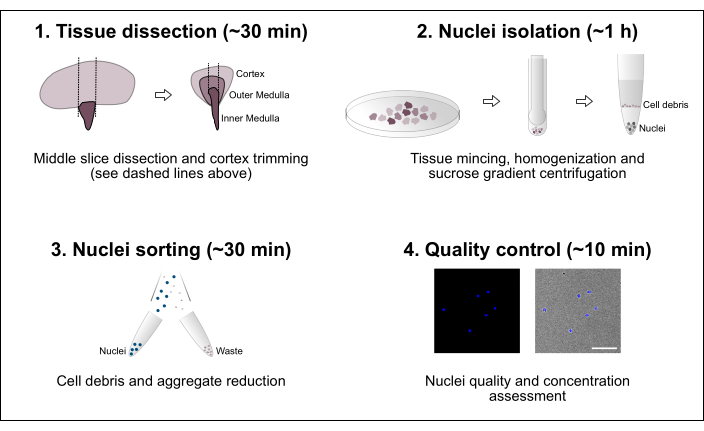
图 1:实验流程的示意图概览。 本实验方案包含四个主要步骤,依次为组织解剖、细胞核分离、细胞核分选,以及最终的纯度与浓度评估。比例尺 = 100 µm。 请点击此处查看该图的放大版本。

图2:肾脏解剖与组织制备。(A)解剖后完整肾脏的代表性图像。虚线表示获取1–2 mm厚中间切片所需的切割位置,该切片包含所有肾细胞类型的代表性区域。(B)所获中间切片的代表性图像。虚线表示从侧面修除皮质的切割线。(C)修除皮质后的中央肾组织块。皮质(C)、外髓(OM)和内髓(IM)清晰可辨。比例尺 = 500 µm。请点击此处查看该图的放大版本。

图3:组织匀浆与细胞核纯化。(A)代表性图像显示充分剪碎的肾组织。比例尺 = 500 µm。(B)第一次匀浆步骤后的匀浆液(使用研杵A在2 mL研磨管中研磨25次)。(C)第二次匀浆步骤后的匀浆液(使用研杵B在2 mL研磨管中研磨15次)。请点击此处查看该图的放大版本。
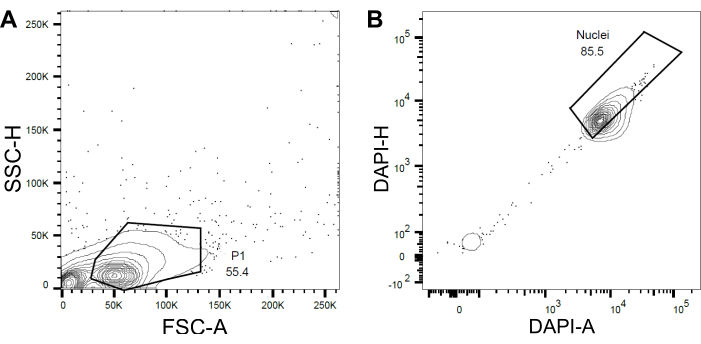
图 4:细胞核分选的设门策略。(A)首先根据前向散射(FSC)与侧向散射(SSC)设定门 P1,以排除碎片和聚集体。(B)随后根据DAPI-面积(DAPI-A)与DAPI-高度(DAPI-H)设定门,以排除空核、受损细胞核及多联体细胞核。请点击此处查看该图的放大版本。
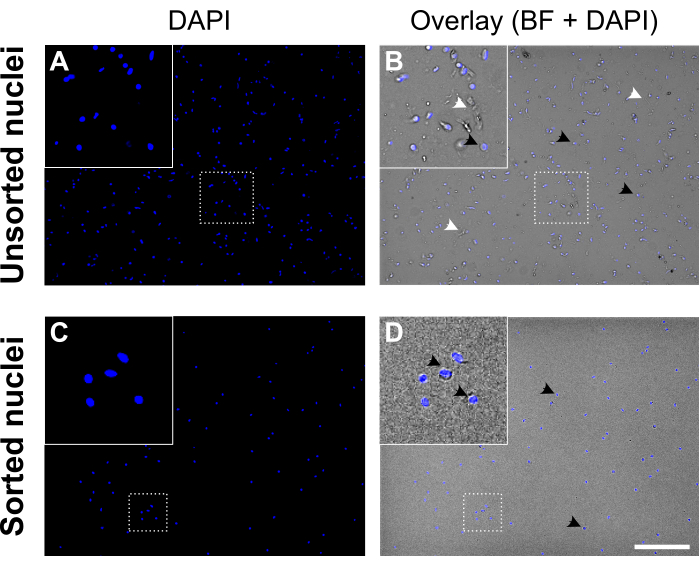
图5:细胞核分选前后的细胞核悬液。(A,C)DAPI染色的细胞核(蓝色)。(B,D)DAPI与明场(BF)通道的叠加图像。分选前(上图)细胞核悬液中含有细胞碎片和聚集体(以白色箭头标示)。分选后(下图)细胞核悬液明显更洁净。DAPI染色细胞核的示例以黑色箭头标示。高质量的细胞核呈圆形、表面光滑、核膜完整且彼此分离良好;而质量差的细胞核则皱缩、核膜破损。比例尺 = 250 µm。请点击此处查看该图的放大版本。
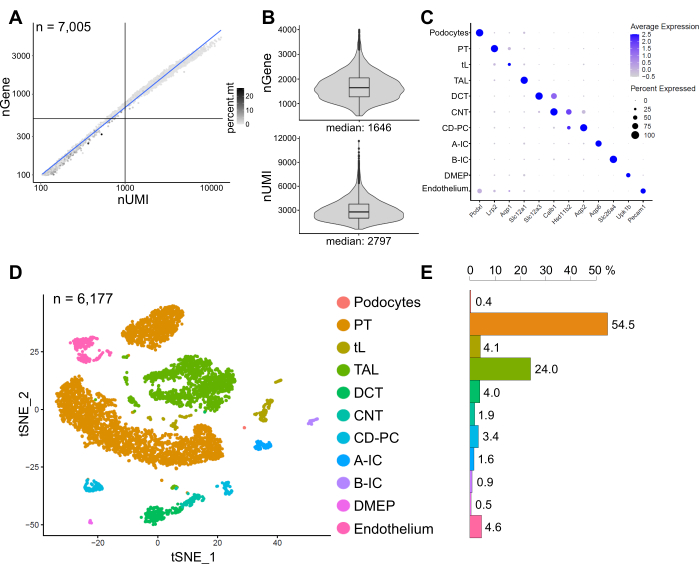
图6:代表性snRNA-seq数据集的质量控制与分析。(A)基因数量(nGene)与唯一分子标识符数量(nUMI)的关系图,颜色表示线粒体reads的比例(percent.mt)。低质量细胞核位于图中左下象限(n = 828),在后续分析中被排除。(B)snRNA-seq数据集中每个细胞核检测到的nGene和nUMI的分布及中位数,共包含6,177个细胞核(> 500个基因)。文库测序深度中位数约为每个细胞核8,200条比对reads。(C)点图显示各聚类富集标志基因(x轴)在不同细胞类型(y轴)中的表达模式。点的大小表示表达指定基因的细胞比例,颜色表示平均表达水平。(D)已鉴定细胞类型的t分布随机邻域嵌入(t-SNE)图。(E)snRNA-seq数据集中细胞类型的分布情况。PT,近端小管;tL,细段;TAL,粗升支;DCT,远曲小管;CNT,连接小管;CD-PC,集合管主细胞;A-IC,A型闰细胞;B-IC,B型闰细胞;DMEP,肾盂深部髓质上皮。请点击此处查看该图的放大版本。
| 试剂 | 终浓度 | 体积 (mL) | ||
| (A) 4 % BSA / PBS | ||||
| 含10%牛血清白蛋白的磷酸盐缓冲液 (PBS) | 4% | 2 | ||
| 不含钙或镁的1X磷酸盐缓冲液 (PBS) | - | 3 | ||
| (B) 0.04 % BSA / PBS | ||||
| 4 % BSA / PBS | 0.04 % | 0.5 | ||
| 不含钙或镁的1X磷酸盐缓冲液 (PBS) | - | 49.5 | ||
| (C) 细胞核裂解缓冲液1 (NLB1) | ||||
| Nuclear EZ Lysis Buffer | - | 4 | ||
| RiboLock RNase抑制剂 (40 U/µL) | 1 U/µL | 0.1 | ||
| 核糖核苷-钒酸复合物 (200 mM) | 10 mM | 0.2 | ||
| (D) 细胞核裂解缓冲液2 (NLB2) | ||||
| Nuclear EZ Lysis Buffer | - | 4 | ||
| RiboLock RNase抑制剂 (40 U/µL) | 1 U/µL | 0.1 | ||
| (E) 细胞核悬浮缓冲液 (NSB) | ||||
| 0.04 % BSA / PBS | - | 2 | ||
| RiboLock RNase抑制剂 (40 U/µL) | 1 U/µL | 0.05 | ||
| (F) 蔗糖梯度缓冲液 (10 % 蔗糖) | ||||
| 称取1 g蔗糖 | ||||
| 溶于6 mL Nuclear EZ Lysis Buffer中 | ||||
| 用Nuclear EZ Lysis Buffer定容至10 mL | ||||
| 通过0.2 µm注射器滤器过滤至新离心管中 | ||||
表1:溶液配方:(A)4% BSA/1x PBS 的配制。使用 0.2 µm SFCA 膜注射器滤器过滤,置于冰上保存直至使用。(B)0.04% BSA/1x PBS 的配制。使用 0.2 µm SFCA 膜注射器滤器过滤,置于冰上保存直至使用。(C)细胞核裂解缓冲液1(NLB1)的配制。所示体积为每份样品所需量。置于冰上保存直至使用。(D)细胞核裂解缓冲液2(NLB2)的配制。所示体积为每份样品所需量。按照实验方案中的说明,在使用前立即向 NLB2 中加入 RiboLock RNase 抑制剂。置于冰上保存直至使用。(E)细胞核悬浮缓冲液(NSB)的配制。所示体积为每份样品所需量。按照实验方案中的说明,在使用前立即向 NSB 中加入 RiboLock RNase 抑制剂。置于冰上保存直至使用。(F)蔗糖梯度缓冲液的配制。使用 0.2 µm SFCA 膜注射器滤器过滤,置于冰上保存直至使用。
讨论
单细胞转录组学有助于深入理解肾脏生理与疾病中细胞类型特异性的基因表达。本文提供了一种简单且可重复的方法,用于从冷冻的小鼠肾脏组织中标准化地分离高质量的单细胞核,以进行单核RNA测序(snRNA-seq)。
对于snRNA-seq,使用高质量的细胞核作为文库构建的起始材料至关重要,同时需在组织处理过程中避免RNA降解。因此,组织样本在解剖后应立即浸入RNA稳定溶液中孵育,以保护并稳定细胞内的RNA,并可实现样本在-80 °C条件下长期保存。当将本方案应用于未经RNA稳定溶液处理的冷冻组织(如存档样本)时,需进行预实验,并评估RNA质量,因为我们观察到未经RNA稳定溶液预孵育的速冻组织中RNA完整性显著下降。
通常情况下,适当的样品处理对于最大限度地回收完整且分散的单个细胞核至关重要。所有重悬步骤均应小心移液操作,以避免剪切力和物理损伤。用于最终细胞核重悬及细胞核分选的缓冲液应含有牛血清白蛋白(BSA),以防止细胞核丢失和聚集。
本方案中的缓冲液体积已针对非常小的组织样本(约15 mg)进行了优化。确保细胞完全裂解和充分洗涤,对于获得高质量的悬液至关重要。较大的组织块或完整的肾脏样本会导致细胞核浓度过高,从而引起结块和聚集、环境RNA丰度升高,以及整体悬液质量较差。如果处理较大的样本或其他组织,强烈建议进行预实验,以确定使环境RNA水平最低的最佳缓冲液体积。必须仔细检测细胞核和RNA的质量及浓度,因为过载会导致整体性能下降。
此外,大量的细胞碎片会导致游离RNA水平升高,这些游离RNA不与单个细胞核相关,从而对测序结果产生负面影响。通过蔗糖垫离心澄清细胞核悬液可在一定程度上缓解这一问题,但也可能导致细胞类型表征出现偏差,例如会排除密度较高、体积较小的细胞核(如免疫细胞中的细胞核)16。如果对此存在担忧,则应省略蔗糖梯度步骤。相比之下,我们发现基于DAPI染色的流式细胞术对于减少细胞碎片含量、制备高质量的单细胞核悬液至关重要。
与单细胞方法相比,单核分离具有显著优势8。该方法适用于适当冷冻保存的组织,使组织采集更加灵活,并避免了基于酶的组织解离过程,从而防止引入转录水平的应激反应6,17。此外,该方法克服了传统酶解方法倾向于选择肾皮质中易于解离的细胞类型所带来的偏差,这种偏差可能导致在某些基于酶的方法中髓质细胞类型的代表性不足5,6,10。
使用肾脏中央部分而非整个肾脏组织可进一步节约资源,并校正如前所述的高丰度细胞类型的过度代表问题10。然而,根据所研究的小鼠模型或表型不同,使用整个肾脏样本而非单一切片中段可能更具优势。整个肾脏样本可能更能代表真实的细胞比例,或反映整个肾脏中发生的变化;而修剪后的中间切片则在研究髓质表型或样本材料有限时显示出优势。因此,这一选择高度依赖于具体实验需求,应谨慎考虑。
披露
作者无任何利益冲突需要披露。
致谢
感谢柏林马克斯·德尔布吕克分子医学中心(亥姆霍兹协会)科学基因组学平台提供的技术支持。
JL 和 KMSO 得到了德国研究基金会(DFG)研究培训组 GRK 2318 以及研究单位 FOR 2841 的资助。KMSO 还得到了合作研究基金 1365 的支持。AB 的研究资金来自 DFG 授予 NR 的戈特弗里德·威廉·莱布尼茨奖。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 细胞分选仪 | - | - | 用于荧光激活细胞分选(FACS);例如 BD FACSAria 细胞分选仪。 |
| Centrifuge 5810 R | Eppendorf | 5811000015 | |
| Countess 细胞计数板载玻片 | Invitrogen | C10228 | |
| Countess II FL 自动细胞计数仪 | Invitrogen | AMQAF1000 | 需配备 DAPI 滤光片组以计数细胞核。或者,可在荧光显微镜下手动计数细胞核。 |
| 4′,6-二脒基-2-苯基-吲哚二盐酸盐(DAPI) | Biotrend | 40043/b | 配制浓度为 100 µM 的储存液。用于细胞核染色,终浓度为 2 µM。 |
| D(+)-蔗糖 ≥99.9%,超纯,无 DNA酶、RNA酶 | VWR | 0335-500G | |
| DNA LoBind 微量离心管(1.5 mL) | Eppendorf | 22431021 | |
| 70% 乙醇 | - | - | |
| FACS 管 | pluriSelect | 43-10100-46 | |
| KIMBLE Dounce 组织研磨器套装 2 mL 完整版 | Sigma-Aldrich | D8938-1SET | |
| Minisart 注射器滤器 0.2 µm | Sartorius | 16534-GUK | |
| 无核酸酶水 | Invitrogen | AM9937 | |
| Nuclei EZ Prep 细胞核分离试剂盒 | Sigma-Aldrich | NUC-101 | 缓冲液配制需要使用 Nuclei EZ 裂解缓冲液(货号 N3408)。 |
| PBS(磷酸盐缓冲液)1X,不含钙和镁 | Corning | 21-040-CV | |
| 聚苯乙烯培养皿,60 mm | Sigma-Aldrich | P5481 | |
| 含 10% 牛血清白蛋白的磷酸盐缓冲液(PBS) | Sigma-Aldrich | SRE0036 | |
| pluriStrainer Mini 100 µm | pluriSelect | 43-10100-46 | |
| pluriStrainer Mini 20 µm | pluriSelect | 43-10020-40 | |
| pluriStrainer Mini 40 µm | pluriSelect | 43-10040-40 | |
| 聚苯乙烯离心管(15 mL) | Falcon | 352099 | |
| 剃须刀片 | - | - | |
| RiboLock RNase 抑制剂(40 U/µL) | Thermo Fisher | EO0384 | |
| 核糖核苷-钒酸复合物 | New England Biolabs | S1402S | 请遵循制造商说明(https://international.neb.com/products/s1402-ribonucleoside-vanadyl-complex#Product%20Information)。使用时将 200 mM 储存液在 65 °C 孵育,重悬为绿色至黑色透明溶液。 |
| RNAlater 稳定溶液 | Invitrogen | AM7020 | |
| RNase AWAY | Fisher Scientific | 11952385 |
参考文献
- Thomas, R. S. Kidney modeling and systems physiology. Wiley Interdisciplinary Reviews: Systems Biology and Medicine. 1 (2), 172-190 (2009).
- Potter, S. S. Single-cell RNA sequencing for the study of development, physiology and disease. Nature Reviews Nephrology. 14 (8), 479-492 (2018).
- Park, J., Liu, C. L., Kim, J., Susztak, K. Understanding the kidney one cell at a time. Kidney International. 96 (4), 862-870 (2019).
- Clark, A. R., Greka, A. The power of one: advances in single-cell genomics in the kidney. Nature Reviews Nephrology. 16 (2), 73-74 (2020).
- Lake, B. B., et al. A single-nucleus RNA-sequencing pipeline to decipher the molecular anatomy and pathophysiology of human kidneys. Nature Communications. 10 (1), 2832(2019).
- Wu, H., Kirita, Y., Donnelly, E. L., Humphreys, B. D. Advantages of single-nucleus over single-cell RNA sequencing of adult kidney: Rare cell types and novel cell states revealed in fibrosis. Journal of the American Society of Nephrology. 30 (1), 23-32 (2019).
- Adam, M., Potter, A. S., Potter, S. S. Psychrophilic proteases dramatically reduce single-cell RNA-seq artifacts: a molecular atlas of kidney development. Development. 144 (19), 3625-3632 (2017).
- Habib, N., et al. Massively parallel single-nucleus RNA-seq with DroNc-seq. Nature Methods. 14 (10), 955-958 (2017).
- Muto, Y., et al. Single cell transcriptional and chromatin accessibility profiling redefine cellular heterogeneity in the adult human kidney. Nature Communications. 12 (1), 2190(2021).
- Hinze, C., et al. Kidney single-cell transcriptomes predict spatial corticomedullary gene expression and tissue osmolality gradients. Journal of the American Society of Nephrology. 32 (2), 291(2021).
- Berger, S. L. Isolation of cytoplasmic RNA: ribonucleoside-vanadyl complexes. Methods in Enzymology. 152, 227-234 (1987).
- Butler, A., Hoffman, P., Smibert, P., Papalexi, E., Satija, R. Integrating single-cell transcriptomic data across different conditions, technologies, and species. Nature Biotechnology. 36 (5), 411-420 (2018).
- Stuart, T., et al. Comprehensive Integration of single-cell data. Cell. 177 (7), 1888-1902 (2019).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Kirita, Y., Wu, H., Uchimura, K., Wilson, P. C., Humphreys, B. D. Cell profiling of mouse acute kidney injury reveals conserved cellular responses to injury. Proceedings of the National Academy of Sciences of the United States of America. 117 (27), 15874-15883 (2020).
- Schneeberger, S., et al. The neuroinflammatory interleukin-12 signaling pathway drives Alzheimer's disease-like pathology by perturbing oligodendrocyte survival and neuronal homeostasis. bioRxiv. , 441313(2021).
- Nguyen, Q. H., Pervolarakis, N., Nee, K., Kessenbrock, K. experimental considerations for single-cell RNA sequencing approaches. Frontiers in Cell and Developmental Biology. 6, 108(2018).
重印与许可
