本文介绍了一种详细的实验方案,用于开展线粒体应激检测和糖酵解速率检测 离体 使用商用生物分析仪检测视网膜组织样本。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
线粒体呼吸是所有细胞中关键的能量生成途径,尤其是具有高度活跃代谢的视网膜感光细胞。此外,感光细胞还表现出类似癌细胞的高有氧糖酵解活性。精确测量这些代谢活动可为生理条件及疾病状态下细胞稳态提供有价值的见解。目前已开发出基于微孔板的高通量检测方法,用于测量活细胞中的线粒体呼吸及其他多种代谢活动。然而,这些方法绝大多数是针对培养细胞设计的,尚未针对完整组织样本及离体(ex vivo)应用进行优化。本文详细描述了一种基于微孔板荧光技术的分步操作方案,用于直接测量完整离体(ex vivo)视网膜组织中的氧消耗率(OCR),以评估线粒体呼吸活性,以及细胞外酸化率(ECAR),以反映糖酵解水平。该方法已成功应用于成年小鼠视网膜的代谢活性评估,并展示了其在研究衰老和疾病相关细胞机制中的应用价值。
引言
线粒体是一种关键细胞器,通过协调多种重要的生理过程来调控细胞代谢、信号传导、稳态和细胞凋亡1。线粒体作为细胞的“能量工厂”,通过氧化磷酸化(OXPHOS)生成三磷酸腺苷(ATP),为几乎所有细胞活动提供能量。细胞中大部分氧气在线粒体中被代谢,在有氧呼吸过程中作为电子传递链(ETC)的最终电子受体。少量ATP也可通过细胞质中的糖酵解产生,其中葡萄糖被转化为丙酮酸,丙酮酸可进一步转化为乳酸,或被转运至线粒体内氧化为乙酰辅酶A,后者是三羧酸循环(TCA循环)的底物。
视网膜是哺乳动物中代谢最活跃的组织之一2,表现出高水平的线粒体呼吸作用和极高的耗氧量3。视杆细胞和视锥细胞含有高密度的线粒体4,而氧化磷酸化(OXPHOS)是视网膜中产生大部分ATP的途径5。此外,视网膜还高度依赖有氧糖酵解6,7,将葡萄糖转化为乳酸5。线粒体缺陷与多种神经退行性疾病相关8,9;由于视网膜具有独特的高能量需求,因此特别容易受到代谢缺陷的影响,包括影响线粒体OXPHOS4和糖酵解10的缺陷。线粒体功能障碍和糖酵解缺陷与视网膜11,12和黄斑变性13疾病、年龄相关性黄斑变性10,14,15,16以及糖尿病性视网膜病变17,18有关。因此,对线粒体呼吸和糖酵解的准确测量可为评估视网膜的完整性和健康状况提供重要参数。
线粒体呼吸可通过测定氧气消耗率(OCR)来评估。由于葡萄糖转化为丙酮酸并进一步转化为乳酸的过程会导致质子外排,引起细胞外环境酸化,因此细胞外酸化率(ECAR)的测定可反映糖酵解通量。视网膜由多种细胞类型组成,这些细胞之间具有紧密的相互关系和活跃的协同作用,包括底物的交换6,必须在保持完整层状结构和神经环路的全视网膜组织背景下分析线粒体功能与代谢。在过去几十年中,克拉克型氧2 电极及其他氧微电极已被用于测量视网膜中的氧气消耗19,20,21这些氧电极在灵敏度方面存在显著局限性,需要较大的样品体积,且必须持续搅拌悬浮样品,这通常会导致细胞和组织结构的破坏。本文所述方案采用基于微孔板的荧光技术,用于检测新鲜分离组织中的线粒体能量代谢。 离体 小鼠视网膜组织。该方法利用少量样本(1 mm 打孔)即可同时实现对 OCR 和 ECAR 的中等通量实时检测 离体 视网膜组织,同时避免了悬浮和持续搅拌的需要。
本文演示了在新鲜分离的视网膜打孔组织上进行线粒体应激检测和糖酵解速率检测的实验步骤。该方案可在ex vivo(离体)组织环境中测定与线粒体相关的代谢活性。与使用培养细胞进行的检测不同,本方法获得的读数反映的是组织水平上的整体能量代谢,并受到组织内不同细胞类型之间相互作用的影响。本方案在先前发表的版本22,23基础上进行了改进,以适配安捷伦 Seahorse XF24 细胞外通量分析仪(XFe24)及其胰岛捕获板(Islet Capture plate)。检测所用培养基、注射化合物浓度以及检测循环次数和持续时间均已针对视网膜组织进行了优化。本文提供了视网膜打孔组织制备的详细分步操作流程。有关程序设置和数据分析的更多信息可参考仪器制造商的用户指南24,25,26。
访问受限。请登录或开始试用以查看此内容。
方案
所有小鼠实验方案均获得国家眼科研究所动物护理与使用委员会(NEI ASP# 650)的批准。小鼠饲养于12小时光照-12小时黑暗循环环境中,并依据《实验动物护理与使用指南》、实验动物资源研究所以及公共卫生服务政策中关于实验动物人道护理与使用的相关规定进行管理和护理。
1. 水合传感器盒及测定培养基的制备
- 实验前一天,在校准板的每个孔中加入 1 mL 校准液。将 Hydro-Booster 盖置于其上,并从盖上的开口处插入传感器盒。检查以确保传感器完全浸没在校准液中。将传感器盒在 37 ˚C、无 CO2 的培养箱中孵育过夜,以激活荧光探针。
注意:为防止蒸发,可在培养箱内放置盛水托盘以保持湿度,同时用透明塑料膜包裹传感器盒卡匣。 - 通过向 Seahorse DMEM 培养基中添加葡萄糖、丙酮酸钠和谷氨酰胺至所需浓度,配制检测用培养基。本文所报道的实验中,检测培养基中各底物的终浓度分别为:6 mM 葡萄糖、0.12 mM 丙酮酸钠和 0.5 mM 谷氨酰胺。每块检测板所需的 40 mL 检测培养基均于实验当天新鲜配制。
- 按照仪器制造商的说明,在分析仪中设置检测程序26。本实验所展示的检测程序设置如下:先进行 5 个循环以测定基础值,然后注入 A 孔试剂,接着进行 4 个循环测量,随后注入 B 孔试剂,再进行 4 个循环测量。每个循环包括混合(3 min)、等待(2 min)和检测(3 min)三个阶段。
2. 包被胰岛捕获微孔板的网状插件
- 通过将 20 µL 细胞贴附培养基(例如 Cell-Tak)与 171 µL 的 0.1 M 碳酸氢钠和 9 µL 的 1 M NaOH 混合,制备包被液。
- 打开含有网格插件的盒盖。将 8 µL 包被液移液至每个网格插件上。使用移液枪头轻轻涂抹或铺展液滴,使包被液均匀分布在网格插件的整个表面。
- 盖上盒盖,于室温孵育至少 25 分钟,使包被液被充分吸附。
- 直接向网格插件中加入 4 mL 检测培养基进行洗涤。轻轻振荡盒子,确保所有网格插件均被检测培养基冲洗。
- 将网格插件置于一旁备用。此时已可使用。
3. 准备注射用化合物
- 从 -80 °C 冰箱中取出 Bam15(10 mM)、Rotenone(10 mM)、Antimycin A(10 mM)和 2-DG(500 mM)的储备液分装管,在室温下解冻。
注意:2-DG 储备液可直接使用。其他药物需稀释成工作液。 - 将 10 mL 检测培养基置于 37 °C 水浴中预热。
- 使用两步稀释法将 10 mM Bam15 储备液稀释为 50 µM 工作液:取 20 µL 10 mM 储备液与 20 µL DMSO 混合,得到 5 mM 中间储备液;再取 10 µL 上述 5 mM 中间储备液与 990 µL 预热的检测培养基混合,获得最终的 50 µM 工作液。
- 通过两步稀释法将 10 mM Rotenone 和 10 mM Antimycin A 储备液稀释并混合,制备 10 µM Rotenone/Antimycin A(Rot/AA)工作液:分别取 10 µL 10 mM Rotenone 和 10 µL 10 mM Antimycin A 储备液,加入 80 µL DMSO 中,得到 1 mM Rot/AA 中间储备液;再取 10 µL 上述 1 mM 中间储备液与 990 µL 预热的检测培养基混合,获得最终的 10 µM Rot/AA 工作液。
- 在实验当天新鲜配制上述注射用化合物的工作液,并置于室温下备用,待装入传感器微孔板的加样孔时使用。
4. 视网膜解剖与视网膜打孔制备
- 根据美国兽医协会(AVMA)《安乐死指南》27,采用 CO2 窒息法处死小鼠。
注意:动物在 CO2 室内停留的时间不得超过实施安乐死所需时间。 - 摘除眼球并置于冰上预冷的 1× PBS 缓冲液中,放入培养皿,随后将其置于解剖显微镜下。
- 使用显微剪小心剪除附着在眼球外侧的额外直肌,并剪断视神经。
- 用 30 G 针头在角膜边缘(角膜缘)处刺一个小孔,作为显微剪的插入点;然后使用精细解剖显微剪沿角膜边缘进行环形切割,将其与后部眼杯分离。
- 使用锋利的解剖镊子将角膜、晶状体和玻璃体从眼杯上移除。
- 使用精细解剖显微剪在眼杯边缘的巩膜层上做数个小切口,注意避免损伤视网膜层。用两把锋利的解剖镊子分别夹住切口两侧的巩膜组织,小心地向外牵拉,将巩膜层从神经视网膜上剥离。沿眼杯周围重复此操作,直至完全去除巩膜,获得完整的视网膜杯。
- 使用解剖显微剪在视网膜杯上做放射状切口,使其展平,并形成若干独立的区域。
注意:根据操作者解剖技能及处理新鲜视网膜组织的经验,可将视网膜杯切割为 3 至 5 个独立部分。 - 使用直径为 1 mm 的活检打孔器,从展平后的视网膜杯各部分中分别切取一个视网膜圆片。
注意:应确保每个视网膜圆片与视神经乳头的距离相等。 - 用镊子将预先包被的网格插入物转移至解剖用培养皿中。借助两把超细睫毛刷,将视网膜打孔圆片放置于网格插入物中央,使节细胞层朝下紧贴网格,光感受器层朝上。
注意:常有部分 RPE 细胞仍附着于光感受器层,这些细胞的色素沉着可作为判断视网膜圆片方向的参考指标。
5. 加载传感器盒注射端口并进行校准
- 从37 °C培养箱中取出水合后的传感器 cartridge 板盒。移除 Hydro-Booster 盖子,并将传感器 cartridge 放回功能板上。
- 将所需体积的注射化合物工作液加入相应的进样口。将移液器枪头保持45°角,将枪头插入进样口一半深度,枪头斜面紧贴进样口对侧壁,轻柔地将化合物依次加入各进样口。避免引入气泡。
- 具体检测所用的每孔进样口加样体积请参考仪器用户手册。在本论文所展示的实验中,向A孔加入68 µL的50 µM Bam15工作液(用于线粒体应激检测)或68 µL的10 µM Rot/AA工作液(用于糖酵解速率检测);向B孔加入75 µL的10 µM Rot/AA工作液(用于线粒体应激检测)或75 µL的500 mM 2-DG工作液(用于糖酵解速率检测)。
- 所有孔位(包括背景校正孔和空白孔)的进样口均需加样,以确保正常注射。背景校正孔的各进样口应加入相应的化合物溶液;空白孔的各进样口可用检测培养基替代化合物溶液。
- 将已加样的传感器 cartridge 板(不加盖)放入分析仪中,开始检测前的校准程序。校准完成后,程序将自动暂停,等待将功能板更换为含有视网膜穿孔组织的胰岛捕获板。
6. 加载胰岛捕获板并启动检测运行
- 向胰岛捕获板的每个孔中加入 607 µL 检测培养基。
- 使用镊子夹住含有视网膜打孔组织的网状插件边缘,从培养皿中取出。轻轻将网状插件底部在吸水纸上轻敲,以去除多余液体,然后将其放入胰岛捕获板的孔中。重复此步骤,直至所有带有视网膜打孔的网状插件均被放置到胰岛捕获板中。在背景校正孔和空白孔中放入不含组织的空网状插件。
- 使用两把格拉夫镊子小心而轻柔地按压每个网状插件的边缘,确保其牢固地插入胰岛捕获板底部。
- 将装载好的胰岛捕获板放入 37 °C 培养箱中,预热 5 分钟。
- 校准完成后,弹出校准用工具板,更换为已去除盖子并装载了视网膜打孔组织的胰岛捕获板。
- 继续进行检测程序。
7. 运行终止与数据存储
- 运行结束后,弹出含有视网膜穿孔的传感器盒和胰岛捕获板。数据将自动保存为 .asyr 文件。
- 根据制造商的用户指南26,使用配套的数据分析软件查看和分析数据。
- 使用导出功能导出数据的 .xslx 文件,该文件可通过电子表格软件进行查看和分析。
8. 保存视网膜打孔样本
- 实验结束后,从仪器中取出培养板,移除传感器盒,并使用移液器轻轻吸出每个孔中的检测培养基。
- 重新盖上盖子,并用封口膜条密封培养板的四周。
- 在 -80 °C 下保存。
- 进行归一化处理时,定量每孔中 punched 组织的总 DNA 或总蛋白含量。
9. 数据分析
- 线粒体应激检测
注意:所测得的OCR值(totalOCR)代表组织的总耗氧量。注射Bam15(解偶联剂)后,OCR从基础水平(totalOCR)升高基础的)提升至最高水平(totalOCR最大) 并在 Rot/AA 注射后下降。Rot/AA 注射后的残余 OCR 值(totalOCRRot/AA)代表非线粒体氧消耗。- 将线粒体相关的耗氧量计算为:
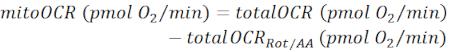 (公式 1)28
- 将线粒体备用容量(MRC)计算为:
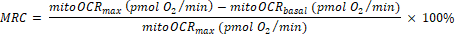 (公式 2)29
注意:在注射 Bam15 前的 5 次测量中,最后一次读数被记为“基础”值(用于总 OCR)基础的 和 mitoOCR基础的)。Bam15注射后4次测量中的最高读数被用作“最大值”(用于总OCR)最大 和 mitoOCR最大值). Rot/AA 注射后4次测量值中的最低读数用作总OCRRot/AA.
- 将线粒体相关的耗氧量计算为:
- 糖酵解速率检测
注意:所测得的ECAR值(totalECAR)代表组织代谢活动引起的培养基总体酸化。通常情况下,细胞外微环境的酸化主要源于糖酵解产物乳酸的外排。线粒体三羧酸(TCA)循环中底物的分解代谢会产生CO₂,其溶于水后亦可导致细胞外环境酸化。2,该过程还通过水合生成碳酸氢盐使细胞外环境酸化。- 从总ECAR中减去线粒体贡献的培养基酸化率(mitoECAR),得到糖酵解相关的ECAR(glycoECAR)。
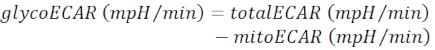 (公式 3)28
注意:线粒体呼吸与三羧酸循环是紧密偶联的过程。CO₂的产生2 线粒体的氧气消耗速率(OXPHOS)可通过线粒体氧消耗率(mitoOCR)进行测量。 - 将 mitoECAR 计算为:
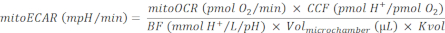 (公式 4)28
其中,CCF(CO2 贡献因子(Contribution Factor)是一个通过经验计算得出的比值,表示H的量+ CO 的贡献2介导的酸化作用与每种 O2 OXPHOS 中的消耗量。该系统的 CCF 预先确定为 0.6028准确测量培养基酸化程度取决于培养基的缓冲能力、仪器pH传感器的灵敏度以及有效测量室的容量。此处,BF(缓冲因子)是一个参数 原位 实验缓冲容量,表示可中和的 H⁺ 或 OH⁻ 的量+ 或 OH- 加入有效测量室中,以使pH值改变1个单位。当使用定制的检测培养基时,可按照缓冲因子(Buffer Factor)方案,向检测培养基中滴定已知量的酸来确定缓冲因子(BF)30本方案中使用的Seahorse DMEM培养基(pH 7.4)具有预确定的缓冲能力(BF)为2.60 mmol H+/L/pH。本方案中使用的胰岛捕获板具有一个 Vol微室 = 16.6 µL31体积缩放因子 Kvol 是一个经验确定的常数。胰岛捕获板的 Kvol 值无法直接获得,但可通过微孔板的数值计算得出。28,根据其微腔体积差异校正后,为0.41。
注意:Rot/AA 的注射会抑制线粒体呼吸,迫使组织转为通过糖酵解产生 ATP,从而导致乳酸外排增加和细胞外酸化率(ECAR)测量值上升。加入 2-DG 后,糖酵解被终止,此时残余的 ECAR 测量值反映的是非糖酵解性和非线粒体性的培养基酸化。 - 将糖酵解储备能力(GRC)计算为:
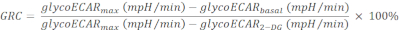 (公式 5)32
其中,Rot/AA注射前5次测量中最后一次的读数被视为“基础”值(glycoECAR)基础的)。Rot/AA注射后4次测量中的最高读数被用作“最大值”(glycoECAR最大)。采用注射2-DG后4次测量中的最低读数作为糖酵解ECAR2-DG.
- 从总ECAR中减去线粒体贡献的培养基酸化率(mitoECAR),得到糖酵解相关的ECAR(glycoECAR)。
- 归一化
注意:在比较不同年龄组的视网膜组织读数或野生型与病理/退行性样本之间的读数时,归一化至关重要,因为这些样本的细胞数量可能存在差异。- 使用市售试剂盒评估每个视网膜 punch 样本中的 DNA 含量33,34.
- 或者,使用放射免疫沉淀分析缓冲液(RIPA缓冲液)从视网膜 punched 组织中提取总蛋白,并以蛋白含量进行归一化。
注意:成年小鼠视网膜的表面积先前已被确定约为 20 mm2,每片视网膜含有约650万个细胞35因此,每个直径为1 mm的视网膜组织 punch 约占单个视网膜的1/25,含有约26万个细胞。在将视网膜 punch 的数据与其他组织样本或培养细胞的数据进行比较时,可参考这些数值。
访问受限。请登录或开始试用以查看此内容。
结果
本文报告的数据代表了使用4月龄转基因Nrl-L-EGFP小鼠(C57B/L6背景)36新鲜分离的1 mm视网膜打孔组织进行的线粒体应激实验(显示OCR轨迹,图1)和糖酵解速率实验(显示OCR和ECAR轨迹,图2)。这些小鼠在视杆光感受器中特异性表达GFP,但不影响正常的视网膜发育、组织学结构和生理功能,已被广泛用作视网膜研究中的野生型对照。本实验中使用了两只Nrl-L-GFP同窝小鼠。在本实验方案中,Nrl-L-GFP小鼠表达的GFP不会干扰OCR和ECAR的检测结果。每只视网膜取5个打孔组织,共使用10个打孔组织进行线粒体应激实验,另10个用于糖酵解速率实验。实验中使用Seahorse XF DMEM培养基(pH 7.4,含6 mM葡萄糖、0.12 mM丙酮酸钠和0.5 mM谷氨酰胺)以及Seahorse XFe24胰岛捕获板。此处展示的代表性数据使用相同直径(1 mm)的打孔器获得,但未根据DNA/蛋白质含量进行归...
访问受限。请登录或开始试用以查看此内容。
讨论
本文提供了使用微孔板法检测线粒体呼吸和糖酵解活性的详细操作步骤 离体,新鲜解剖的视网膜打孔组织。该方案已优化以:1)确保使用合适的检测培养基 离体 视网膜组织;2)采用适当尺寸的视网膜打孔圆片,以获得处于仪器最佳检测范围内的OCR和ECAR读数;3)对网状插入物进行包被,以增强视网膜打孔组织的黏附性,确保测量周期中的稳定读数;4)使用每种注射药物化合物的最佳浓度;以及5)调整循环周期长度,以确保在每一步骤中线粒体状态达到平台期。所用试剂和实验方案已对先前发表的版本进行了修改23 以适应新一代 Seahorse XFe24 仪器,取代先前方案中使用的 Ames 缓冲液23此处使用基础 Seahorse DMEM 培养基,通过分别添加葡萄糖、谷氨酰胺和丙酮酸,可自定义燃料来源的组成。这也有助于开展多种实验,可在培养基中单独提供或去除特定的燃料底物。在本实验所展示的检测中,培养基中葡萄糖(6 mM)、谷氨酰胺(0.5 mM)和丙酮酸(0.12 mM)的浓度均与 Ames 缓冲液一致,该浓度已被证实适用于视网膜组织...
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
本研究由国家眼科研究所院内研究计划(ZIAEY000450 和 ZIAEY000546)资助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1X PBS | Thermo Fisher | 14190-144 | |
| 2-脱氧葡萄糖(2-DG),500 mM 储存液 | Sigma | D6134 | 溶于 Seahorse XF DMEM 培养基中,需提前配制 |
| 30 号针头 | BD Precision Glide | 305106 | |
| 抗霉素 A(Antimycin A),10 mM 储存液 | Sigma | A8674 | 溶于 DMSO,需提前配制 |
| Bam15,10 mM 储存液 | TimTec | ST056388 | 溶于 DMSO,需提前配制 |
| 活检打孔器,1 mm | Integra Miltex | 33-31AA | |
| Cell-Tak | Corning Life Sciences | CB40240 | |
| CO₂ 窒息室 | |||
| 解剖镊 - Dumont #5 | Fine Science Tools | 11251-10 | 直头 |
| 解剖镊 - Dumont #7 | Fine Science Tools | 11274-20 | 弯头 |
| 解剖显微镜 | |||
| DMSO | Sigma | D2438 | |
| Graefe 镊 | Fine Science Tools | 11051-10 | 弯头,带齿 |
| 显微剪刀 | Fine Science Tools | 15004-08 | 弯头 |
| NaOH 溶液,1 M | Sigma-Aldrich | S8263 | 水溶液,需提前配制 |
| 鱼藤酮(Rotenone),10 mM 储存液 | Sigma | R8875 | 溶于 DMSO,需提前配制 |
| Seahorse 校准液 | Agilent | 100840-000 | |
| Seahorse XF 1.0 M 葡萄糖 | Agilent | 103577-100 | |
| Seahorse XF 100 mM 丙酮酸 | Agilent | 103578-100 | |
| Seahorse XF 200 mM 谷氨酰胺 | Agilent | 103579-100 | |
| Seahorse XF DMEM 培养基 | Agilent | 103575-100 | pH 7.4,含 5 mM HEPES |
| Seahorse XFe24 胰岛捕获通量试剂盒 | Agilent | 103518-100 | 包含传感器微板和胰岛捕获微孔板 |
| Seahorse XFe24 细胞外通量分析仪 | Agilent | ||
| 碳酸氢钠溶液,0.1 M | Sigma-Aldrich | S5761 | 水溶液,需提前配制 |
| 超细睫毛刷 | Ted Pella | 113 |
参考文献
- Nunnari, J., Suomalainen, A. Mitochondria: In sickness and in health. Cell. 148 (6), 1145-1159 (2012).
- Wong-Riley, M. T. Energy metabolism of the visual system. Eye Brain. 2, 99-116 (2010).
- Yu, D. Y., Cringle, S. J. Oxygen distribution and consumption within the retina in vascularised and avascular retinas and in animal models of retinal disease. Progress in Retina and Eye Research. 20, 175-208 (2001).
- Barot, M., Gokulgandhi, M. R., Mitra, A. K. Mitochondrial dysfunction in retinal diseases. Current Eye Research. 36 (12), 1069-1077 (2011).
- Joyal, J. S., Gantner, M. L., Smith, L. E. H. Retinal energy demands control vascular supply of the retina in development and disease: The role of neuronal lipid and glucose metabolism. Progress in Retina and Eye Research. 64, 131-156 (2018).
- Hurley, J. B., Lindsay, K. J., Du, J. Glucose, lactate, and shuttling of metabolites in vertebrate retinas. Journal of Neuroscience Research. 93 (7), 1079-1092 (2015).
- Haydinger, C. D., Kittipassorn, T., Peet, D. J. Power to see-Drivers of aerobic glycolysis in the mammalian retina: A review. Clinical and Experimental Ophthalmology. 48 (8), 1057-1071 (2020).
- Wright, A. F., et al. Lifespan and mitochondrial control of neurodegeneration. Nature Genetics. 36, 1153-1158 (2004).
- Bossy-Wetzel, E., Schwarzenbacher, R., Lipton, S. A. Molecular pathways to neurodegeneration. Nature Medicine. 10, Suppl 2-9 (2004).
- Leveillard, T., Philp, N. J., Sennlaub, F. Is retinal metabolic dysfunction at the center of the pathogenesis of age-related macular degeneration. International Journal of Molecular Sciences. 20 (3), (2019).
- Vlachantoni, D., et al. Evidence of severe mitochondrial oxidative stress and a protective effect of low oxygen in mouse models of inherited photoreceptor degeneration. Human Molecular Genetics. 20 (2), 322-335 (2011).
- Grenell, A., et al. Loss of MPC1 reprograms retinal metabolism to impair visual function. Proceedings of the National Academy of Science U. S. A. 116 (9), 3530-3535 (2019).
- Wright, A. F., Chakarova, C. F., Abd El-Aziz, M. M., Bhattacharya, S. S. Photoreceptor degeneration: genetic and mechanistic dissection of a complex trait. Nature Reviews in Genetics. 11 (4), 273-284 (2010).
- Jarrett, S. G., Boulton, M. E. Consequences of oxidative stress in age-related macular degeneration. Molecular Aspects of Medicine. 33 (4), 399-417 (2012).
- Rozing, M., et al. Age-related macular degeneration: A two-level model hypothesis. Progress in Retina Eye Research. 76, 100825(2020).
- Yokosako, K., et al. Glycolysis in patients with age-related macular degeneration. Open Ophthalmology Journal. 8, 39-47 (2014).
- Bek, T. Mitochondrial dysfunction and diabetic retinopathy. Mitochondrion. 36, 4-6 (2017).
- Yumnamcha, T., Guerra, M., Singh, L. P., Ibrahim, A. S. Metabolic dysregulation and neurovascular dysfunction in diabetic retinopathy. Antioxidants. 9 (12), Basel. (2020).
- Futterman, S., Kinoshita, J. H. Metabolism of the retina. I. Respiration of cattle retina. Journal of Biological Chemistry. 234 (4), 723-726 (1959).
- Linsenmeier, R. A. Effects of light and darkness on oxygen distribution and consumption in the cat retina. Journal of General Physiology. 88 (4), 521-542 (1986).
- Medrano, C. J., Fox, D. A. Oxygen consumption in the rat outer and inner retina: light- and pharmacologically-induced inhibition. Experiments in Eye Research. 61 (3), 273-284 (1995).
- Kooragayala, K. Quantification of oxygen consumption in retina ex vivo demonstrates limited reserve capacity of photoreceptor mitochondria. Investigative Ophthalmology and Visual Science. 56 (13), 8428-8436 (2015).
- Adlakha, Y. K., Swaroop, A. Determination of mitochondrial oxygen consumption in the retina ex vivo: applications for retinal disease. Methods in Molecular Biology. 1753, 167-177 (2018).
- Agilent Mitocondrial stress test user guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/XF_Cell_Mito_Stress_Test_Kit_User_Guide.pdf (2021).
- Agilent Glycolytic rate assay user guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/103344-400.pdf (2021).
- Agilent wave 2.6 user guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/S7894-10000_Rev_C_Wave_2_6_User_Guide.pdf (2021).
- AVMA Guidelines for the Euthanasia of Animals. , Available from: https://www.avma.org/sites/default/files/2020-01/2020-Euthanasia-Final-1-17-20.pdf (2021).
- Improving Quantification of Cellular Glycolytic Rate Using Agilent Seahorse XF Technology. , Available from: https://www.agilent.com/cs/library/whitepaper/public/whitepaper-improve-quantification-of-cellular-glycolytic-rate-cell-analysis-5991-7894en-agilent.pdf (2021).
- Report Generator User Guide Agilent Seahorse XF Cell Mito Stress Test. , Available from: https://www.agilent.com/cs/library/usermanuals/public/Report_Generator_User_Guide_Seahorse_XF_Cell_Mito_Stress_Test_Single_File.pdf (2021).
- Agilent Seahorse XF Buffer Factor Protocol. , Available from: https://www.agilent.com/cs/library/usermanuals/public/usermanual-xf-buffer-factor-protocol-cell-analysis-S7888-10010en-agilent.pdf (2021).
- Agilent sensor cartridges and cell culture microplates. , Available from: https://www.agilent.com/cs/library/brochures/5991-8657EN_seahorse_plastics_brochure.pdf (2021).
- Agilent Seahorse XF Glycolysis Stress Test Kit User Guide. , Available from: https://www.agilent.com/cs/library/usermanuals/public/XF_Glycolysis_Stress_Test_Kit_User_Guide.pdf (2021).
- Fan, Y. Y. A bioassay to measure energy metabolism in mouse colonic crypts, organoids, and sorted stem cells. American Journal of Physiology-Gastrointestinal and Liver Physiology. 309, 1-9 (2015).
- Huang, L., et al. Ductal pancreatic cancer modeling and drug screening using human pluripotent stem cell- and patient-derived tumor organoids. Nature Medicine. 21 (11), 1364-1371 (2015).
- Jeon, C. J., Strettoi, E., Masland, R. H. The major cell populations of the mouse retina. Journal of Neuroscience. 18 (21), 8936-8946 (1998).
- Akimoto, M., et al. Targeting of GFP to newborn rods by Nrl promoter and temporal expression profiling of flow-sorted photoreceptors. Proceedings of the National Academy of Science U. S. A. 103 (10), 3890-3895 (2006).
- Kenwood, B. M., et al. Identification of a novel mitochondrial uncoupler that does not depolarize the plasma membrane. Molecular Metabolism. 3 (2), 114-123 (2014).
- Corso-Diaz, X., et al. Genome-wide profiling identifies DNA methylation signatures of aging in rod photoreceptors associated with alterations in energy metabolism. Cell Reports. 31 (3), 107525(2020).
- Berkowitz, B. A., et al. Mitochondrial respiration in outer retina contributes to light-evoked increase in hydration in vivo. Investigative Ophthalmology and Visual Science. 59 (15), 5957-5964 (2018).
- Joyal, J. S., et al. Retinal lipid and glucose metabolism dictates angiogenesis through the lipid sensor Ffar1. Nature Medicine. 22 (4), 439-445 (2016).
访问受限。请登录或开始试用以查看此内容。
重印与许可
