本方案介绍了一种快速、高效且温和的方法,适用于从持续生长的小鼠门齿、小鼠磨牙以及人类牙齿中分离单细胞,以进行单细胞RNA测序分析。
本文内容
摘要
摘要
小鼠和人类牙齿是单细胞转录组学或其他应用中快速高效分离细胞的难点器官。牙髓组织富含细胞外基质,需要经历漫长而繁琐的解离过程,通常超出单细胞转录组学可接受的时间范围。为了避免基因表达的人工改变,从动物安乐死到单细胞分析之间的时间必须尽可能缩短。本研究提供了一种快速方案,可从小鼠和人类牙齿中获得高质量的单细胞悬液,适用于单细胞RNA测序(scRNA-seq)。该方案基于加速的组织分离步骤、酶消化以及后续单细胞悬液的制备,能够实现组织的快速且温和处理,从而允许使用更多的动物或人类样本制备出高活力且转录变化最小的细胞悬液。预计该方案不仅可为从事小鼠或人类牙齿scRNA-seq研究的研究人员提供指导,也可推广至其他富含细胞外基质的组织,如软骨、致密结缔组织和真皮。
引言
单细胞RNA测序是解析 体内 细胞群体结构、层级、相互作用与稳态1,2然而,该分析的结果在很大程度上取决于其第一步——从结构复杂且高度有序的组织中制备出高质量的单细胞悬液。这包括保持细胞活性,并防止细胞基因表达谱发生非预期的人工改变3,4此类变化可能导致群体结构的错误表征以及对所收集数据的误解。
已针对多种组织开发出特定的分离方案5,6,7,8。这些方案通常采用机械解离,并结合多种蛋白水解酶进行进一步孵育。常用的酶包括胰蛋白酶、胶原酶、分散酶、木瓜蛋白酶6,7,8,9,或市售的酶混合物,如Accutase、Tryple等5。影响转录组质量最关键的步骤是酶消化过程。研究表明,在37 °C下长时间酶孵育会影响基因表达,并导致许多应激相关基因的上调10,11,12,13。分离过程的另一个关键参数是总时长,因为已有研究显示,组织缺血后细胞转录组会发生改变14。本方案提供了一种温和且高效的方法,用于从小鼠和人类牙齿中分离单细胞,其速度优于以往用于复杂组织细胞分离的其他方案5,6,9,11,13,15,16。
本方案介绍了如何快速从坚硬的牙齿中分离软组织,并制备适用于单细胞RNA测序(scRNA-seq)的单细胞悬液。该方法仅需一次离心步骤,通过减少组织处理和消化时间,并在大部分操作过程中将组织和细胞保持在4 °C,从而最大限度地降低非预期的转录变化。本实验流程以从小鼠门齿、磨牙以及人类智齿中分离细胞为例进行展示,但原则上应适用于其他牙齿组织 用于研究不同生物体中其他牙齿的发育。完整方案的流程图如图所示。 图1该方案最近已被用于构建从小鼠和人类牙齿获得的牙细胞类型图谱1.
方案
所有动物实验均依照国际和当地法规进行,并经捷克共和国教育、青年和体育部批准(MSMT-8360/2019-2;MSMT-9231/2020-2;MSMT-272/2020-3)。本方案已在雄性和雌性野生型C57BL/6和CD-1小鼠以及基因修饰型Sox10::iCreER小鼠中进行测试。T2 小鼠17 (与多种报告系统结合)在C57BL/6背景下进行。涉及人体样本的实验已获得布尔诺马萨里克大学医学院伦理委员会的批准 & 捷克共和国布尔诺圣安妮大学医院
1. 实验装置与溶液配制
- 仪器设置
- 将离心机预冷至 4 °C。
- 将孵育室加热至 37 °C。
- 启动荧光激活细胞分选(FACS)仪器,并将分选仪的所有温度(包括收集管架)设置为 4 °C。执行仪器质量控制,设定液滴延迟时间。
- 设定初步的门控策略并进行测试分选。
注:使用 FACS 时,请采用 100 µm 喷嘴。
- 配制溶液(步骤 1.2.1–1.2.3)。
- 洗涤液:在 HBSS(Hanks 平衡盐溶液)中新鲜配制 2% FBS(胎牛血清)。
- 消化液混合物:将胶原酶 P(3 U/mL)新鲜配制并完全溶解于 HBSS 中。
- 可选:新鲜配制含 BSA(0.04%)的 HBSS,并将分析级甲醇置于 -20 °C 冰箱中预冷,用于在 -80 °C 保存单细胞悬液。
注:步骤 1 需在实验开始前完成。所用溶液的组成详见补充表 1。
2. 实验动物和人牙的准备
- 准备实验动物(小鼠)。
- 根据当地规定对小鼠实施安乐死;例如,采用先前所述的麻醉剂过量方法1。
警告:实验动物人道安乐死的规定因地区而异。务必始终遵循有效的当地规定。 - 立即进行组织解剖步骤(步骤3)。
注意:如果实验动物的组织无法立即解剖(例如,由于需从动物饲养设施转移),应将实验动物置于冰上,并尽快进行组织解剖。为从磨牙牙髓中获得更多的细胞,建议使用较年轻(6周龄及以下)的动物。随着年龄增长,牙髓体积会减小。小鼠的门牙在年龄增长过程中大多能保持其结构,因此可使用不同年龄的动物进行组织解剖。
- 根据当地规定对小鼠实施安乐死;例如,采用先前所述的麻醉剂过量方法1。
- 准备人牙
注意:人牙因临床需要而被拔除。每例诊断均经个体化处理,且牙齿拔除均由经验丰富的口腔外科医生完成。- 将新鲜拔除的牙齿立即放入含有冰冻HBSS的50 mL离心管中,并将管子置于冰上,直至进一步处理。
注意:为获得最高的细胞产量,建议使用25至30岁以内患者的阻生智齿。
- 将新鲜拔除的牙齿立即放入含有冰冻HBSS的50 mL离心管中,并将管子置于冰上,直至进一步处理。
3. 组织解剖
- 握住实验动物头部后方,从其头部腹侧观察,使尾部朝外。
- 使用小型锋利剪刀,迅速去除下颌区域的皮肤,暴露下颌弓、下颌两半之间的软组织以及邻近的面部肌肉。
- 从下颌两侧各做一深部切口:首先沿下颌骨颊侧的咬肌至颞下颌关节处,然后沿下颌骨内侧部分穿过口腔底部(见补充图1)。
- 从口腔内外两侧切断下颌骨周围的所有肌肉和韧带,直至颞下颌关节。
注意:避免切割骨骼,以免损伤门齿最顶端的部分。 - 使用弯头镊子夹住下颌骨并将其取出。随后用剪刀沿下颌联合处剪开,将解剖得到的下颌骨分为两半(见补充图1)。
- 使用工业级低絮擦布擦拭下颌骨两半上残留的软组织。待两部分下颌骨均清理干净后,将其放入预先准备好的含冰上冷HBSS的培养皿中。
注意:自此步骤起,所有操作均需在冰上进行。小鼠门齿和磨牙的进一步解剖应在具有黑色背景的体视显微镜下完成。 - 小鼠下颌门齿
- 解剖下颌门齿时,移除带有全部三颗磨牙的牙槽嵴,并在对应第一与第二磨牙之间位置横向敲裂下颌弓。
注意:此步骤使用11号锋利手术刀片和镊子完成(见材料表)。 - 小心地将门齿从其余牙槽窝中拉出。
注意:若操作成功,提取出的门齿应包含完整的顶端结构,包括具有完整颈环的上皮组织。 - 如有需要,使用镊子和手术刀去除仍附着在门齿上的骨碎片。
- 将解剖得到的门齿放入新鲜的冰上冷HBSS中,并进一步分离目标组织:颈环、牙髓或牙齿其他部分。
- 将分离出的软组织置于10 cm培养皿中央的一滴新鲜冰上冷HBSS液滴中,保持在冰上。
- 解剖下颌门齿时,移除带有全部三颗磨牙的牙槽嵴,并在对应第一与第二磨牙之间位置横向敲裂下颌弓。
- 小鼠下颌磨牙
- 解剖下颌磨牙时,使用手术刀片将牙槽嵴从下颌骨其余部分完全切除。
- 将分离出的牙槽嵴转移至培养皿中的新鲜冰上冷HBSS中,并小心去除附着在牙根上的所有残留牙槽骨碎片。
- 将去除牙槽骨的磨牙置于新鲜冰上冷HBSS中。为暴露牙髓,从根尖侧开始使用尖头精细镊子逐步去除部分牙本质,直至暴露牙髓腔。
- 一旦到达牙髓腔,使用一对尖头镊子小心分离牙髓组织,并将牙髓软组织置于保持在冰上的10 cm培养皿中央的一滴新鲜冰上冷HBSS液滴中。
注意:由于小鼠磨牙牙髓极小,应相应调整体视显微镜的放大倍数。
- 人牙
- 再次用冰上冷HBSS清洗人牙,以去除残留血液。
- 将牙齿放入三个厚壁无菌塑料袋中,使用铸铁台式工程虎钳压裂牙齿。使用平面钳口以避免刺穿塑料袋。
- 缓慢收紧虎钳,直至听到牙齿破裂声;取出牙齿,放入培养皿中的新鲜冰上冷HBSS中。
- 使用两把镊子取出牙髓组织,清除所有硬组织残余,并将其放入保持在冰上的10 cm培养皿中央的一滴冰上冷HBSS液滴中。
警告:人体组织可能具有潜在感染性。操作人体组织时,应使用防护装备以避免直接接触。
4. 单细胞悬液的制备
- 准备一个15 mL离心管,加入2.5 mL消化液,该消化液由完全溶解于HBSS中的胶原酶P(3 U/mL)组成。使用前将溶液置于冰上保存。
注意:务必使用新鲜配制的胶原酶P;切勿冷冻分装的酶液。胶原酶P的活性在不同批次间存在差异。稀释前应检测所用批次的酶活性。胶原酶P的活性依赖钙离子,而冻干粉中已含有足够量的钙离子,因此无需额外在酶混合液中添加钙。胶原酶P不会被FBS灭活,但可被螯合剂(如乙二胺四乙酸 - EDTA)灭活。通过将胶原酶P稀释于洗涤液(含2% FBS的HBSS)中,可有效终止解离过程。已有研究表明,添加FBS可提高细胞活力以及分选后获得的细胞总数18。 - 使用10号圆形手术刀片将组织在各个方向上切割成尽可能小的碎片。将组织碎片重新聚集于液滴中央,并反复使用10号圆形手术刀片切割组织团块。重复此过程数次,直至组织被充分切碎。
- 使用1 mL移液器吸头将切碎的组织碎片转移至已准备好的消化液中。
注意:若同时处理较多动物样本,应将组织分装至多个含有胶原酶P的离心管中。每管最大处理量为约10颗小鼠门牙的牙髓组织。对于磨牙,因其牙髓体积较小,可适当增加每管处理的牙髓数量。若使用人牙组织,每管最多处理2-3个牙髓,具体数量视牙髓大小而定。 - 将离心管放入预热至37 °C的摇床培养箱中。将管子在摇床内倾斜至60°角,并将转速设定为150-200 rpm,以确保管内液体持续悬浮运动。
- 每隔3-4分钟,使用1 mL移液器吸头剧烈吹打悬浮液,以彻底分散所有团块。
注意:随着时间推移,团块会逐渐变小、变软,直至几乎完全消失。 - 总孵育时间为15-20分钟。孵育结束后,进行最后一次吹打,然后缓慢加入预冷的洗涤液,使最终体积达到12 mL。
- 使用50 µm细胞滤网过滤悬浮液,以去除残留的团块或钙化组织碎片。
- 取10-20 µL过滤后的细胞悬液,在离心过程中使用细胞计数板(血细胞计数器)进行细胞计数。在4 °C条件下以300 x g离心5分钟。使用10 mL移液管吸除上清液。
注意:若细胞数量过少,无法在稀释后的悬液中准确计数,可跳过细胞计数步骤,直接将全部细胞用于后续操作。 - 可选步骤:进行固定与保存21。
- 将沉淀物(最多107个细胞)重悬于100 µL HBSS + BSA(0.04%)中。
- 加入400 µL预冷的 甲醇,并缓慢混匀。
- 将细胞悬液置于冰上孵育15分钟。
- 储存于-80 °C直至后续处理(不超过1个月)。
- 将沉淀物重悬于洗涤液中,目标浓度为每微升洗涤液含700-1200个细胞。
- 将离心管置于冰上,等待后续处理。
注意:如有需要,可进行固定并储存于-80 °C。但建议立即进行单细胞RNA测序(scRNA-seq)的后续操作。后续步骤将根据具体的单细胞RNA测序方案而定。若scRNA-seq方案使用微流控系统(部分单细胞RNA测序公司采用),则应根据制造商的指导,直接或在细胞分选后加载细胞。 - 如需进行流式细胞分选(FACS),请进入第5步。
5. 荧光激活细胞分选(FACS)
- 分选前,准备细胞分选仪器。
- 将整个系统冷却至 4 °C,进行仪器质量控制,设置液滴延迟时间和偏转板电压。将收集管放入收集管架中。
注意:为避免额外的离心步骤导致不可避免的细胞损失,建议将细胞直接分选至含有少量(25–50 µL)洗涤液的微量离心管(1.5 mL)中。
- 将整个系统冷却至 4 °C,进行仪器质量控制,设置液滴延迟时间和偏转板电压。将收集管放入收集管架中。
- 可选:在进行流式细胞分选(FACS)前进行活率染色。
- 在 FACS 前将碘化丙啶加入细胞悬液中,使其终浓度为 0.5 µg/mL,在 4 °C 下孵育 15 分钟。
- 将样品加载至细胞分选仪中。设置严格的设门策略以去除细胞碎片、双联体和死细胞。将细胞分选至预先准备好的收集管或多孔板中。图 2 展示了一个设门策略的示例。
注意:为尽量减少操作步骤并加快实验流程,建议采用严格的设门策略(如 图 2 所示),而非使用活率染色。如需从已分离的细胞群体中进一步分离免疫细胞,可进行 CD45 抗体染色。具体操作为:将细胞悬液重悬于 100 µL 染色液(PBS + 2% FBS + 抗-CD45-APC 标记抗体,1/100 稀释)中,在冰上避光孵育 15 分钟后直接进行 FACS 分析。
结果
以一只6周龄雄性C57BL/6小鼠的两颗下门牙为材料,进行了典型的单细胞分离。根据本方案,制备了单细胞悬液,并随后进行了单细胞测序。所制备的单细胞悬液通过流式细胞分选(FACS)进行分析与分选(图2)。首先,应用FSC-A(前向散射,面积)与SSC-A(侧向散射,面积)散点图,并采用适当的设门策略,筛选出具有预期大小和颗粒度的细胞群体,以去除细胞碎片以及双联细胞或细胞聚集体(图2A)。该筛选出的群体(P1)占所有检测事件的38%,进一步用于分析;通过FSC-A与FSC-H(前向散射,高度)参数去除残余的双联细胞(图2B)。不含双联细胞的P2群体占P1群体的95%,可用于后续的单细胞RNA测序(scRNA-seq)。此外,也可通过额外设门进一步筛选目标细胞群体(例如荧光蛋白表达或活/死细胞染色)。为检测最终悬液中活/死细胞的比例,进行了碘化丙啶(PI)染色(图2C)。P3群体中PI-(活细胞)的比例占其母代P2群体的98.4%,占总事件的35.5%。最终被过滤掉的死亡(PI+)细胞总数为1887个。
未进行活力染色、适用于RNA测序(P2)的最终获得细胞数为118,199个,来自两只小鼠切牙的牙髓组织。这意味着每颗下颌切牙可获得近60,000个活细胞。
为了明确最终单细胞悬液中免疫细胞的数量,采用了两种方法。首先,使用CD45抗体染色并进行后续的流式细胞术(FACS)分析;作为补充方法,分析了单细胞RNA测序(scRNA-seq)数据中免疫细胞(CD45+)的总数。FACS分析结果显示,CD45+细胞占14.44%(其中活细胞占13.20%,死细胞占1.24%)(图3A)。scRNA-seq数据分析显示,表达CD45的细胞占10.90%(图3B)。scRNA-seq数据中CD45+细胞比例的降低可能是由于scRNA-seq分析过程中额外的阈值筛选所致。
以小鼠门齿为例的代表性数据表明,该实验方案结合严格的设门策略,能够从单个小鼠牙齿中高效获取大量细胞,且无需额外使用活率染色。免疫细胞(CD45+)的比例较低(13.2%)。此外,先前研究已表明免疫细胞在维持牙齿稳态中具有重要作用,因此在FACS过程中将其从单细胞RNA测序分析中去除,在某些应用中可能适得其反。

图1:实验方案示意图。 图示了从小鼠和人牙齿制备单细胞悬液的不同步骤,包括温度条件和预计所需时间。请点击此处查看该图的放大版本。

图 2:设门策略示例。 使用 FSC-A 和 SSC-A 设门获得 P1 门,代表具有预期大小和颗粒度的细胞群体,同时排除细胞碎片、细胞外基质碎片及大多数大颗粒事件(A)。随后,将 P1 群体绘制于 FSC-H 与 FSC-A 散点图中,以排除细胞双联体(B)。然后,利用碘化丙啶(propidium iodide)检测 P2 群体中死细胞的存在情况(C)。各门中事件/细胞数量显示于(D)中。(FSC-A - 前向散射,面积;SSC-A - 侧向散射,面积;FSC-H - 前向散射,高度;PI - 碘化丙啶)。请点击此处查看该图的放大版本。
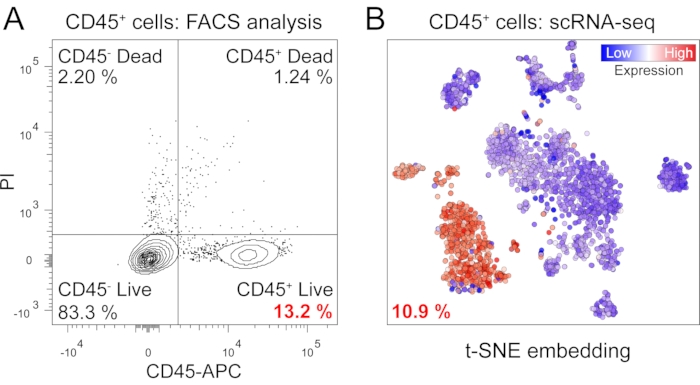
图 3:免疫细胞的定量分析。通过使用抗 CD45 抗体染色并结合碘化丙啶染色进行活/死细胞分析的 FACS 方法对免疫细胞进行定量(A)。在单细胞 RNA 测序(scRNA-seq)分析过程中进一步对免疫细胞进行了定量(B)。(CD45-APC —— 抗 CD45 别藻蓝蛋白偶联抗体;PI —— 碘化丙啶;t-SNE —— t 分布随机邻域嵌入)。 请点击此处查看该图的高清版本。
补充图1:下颌骨解剖过程示意图。 虚线表示建议的切割位置。TMJ——颞下颌关节,m. masseter——咬肌。请点击此处下载该文件。
补充表1:本研究中使用溶液的组成。 请点击此处下载该表格。
讨论
在细胞或分子水平上研究牙齿和骨骼通常具有挑战性,因为形成这些组织的细胞被多种坚硬的基质所包围19。对牙科组织进行单细胞RNA测序的主要目标之一,是需要快速获得目标细胞,同时避免其转录组发生任何人为改变。为实现这一目标,已开发出一种高效且适用于从小鼠和人牙髓中分离细胞的实验方案,可快速制备适用于所有转录组学应用的单细胞悬液。该方案通过快速组织分离、尽量减少组织和细胞操作步骤,以及优化机械和酶消化过程,确保了高效性。
本方案最关键的步骤是快速组织处理和充分的单细胞悬液制备8,9。采用手动方法获取牙髓组织,避免使用牙科钻头或其他产热设备。过热可能导致热休克蛋白及其他基因的人工表达,最终使分析得到的基因表达模式不能真实反映原始组织的状态20。手动采集组织可能是一个具有挑战性的步骤,通常需要事先进行一定训练。随后将牙髓组织切成小块,并在37 °C下进行酶消化。除15-20分钟的酶消化外,整个操作流程均在4 °C下进行。组织处理尤其是酶消化过程已尽可能缩短至最短时间,因为长时间在37 °C孵育可能导致基因表达模式发生变化10。建议在酶消化前先机械去除牙本质。牙本质及与牙髓相连的前期牙本质含有大量胶原蛋白,其过量存在可能降低消化液的作用效率。研究表明,组织离体(或生物体死亡)后,细胞会迅速开始改变其基因表达模式 12。因此,细胞分离与处理应尽快完成。本方案将从组织分离(动物安乐死)到制备单细胞悬液的处理时间缩短至35-45分钟。
该技术的一种替代性改进方法是细胞保存以备后续使用,可通过甲醇固定实现。根据方案21所述,甲醇固定的细胞悬液可在-80 °C保存长达1个月。然而,应尽可能直接进行单细胞RNA测序(scRNA-seq),因为已有研究表明,甲醇固定的单细胞悬液所获得的单细胞数据可能出现应激相关基因表达升高以及环境RNA污染等问题22。此步骤可能需要根据试剂盒制造商的说明书进行额外调整。
在首次应用本方案之前,建议进行若干验证步骤以测试该技术。根据我们的经验,建议测试上述方案中的关键步骤。此外,建议测试胶原酶P溶液的有效性以及组织解离步骤的操作效果。具体而言,在开始胶原酶P孵育后的约前5分钟内,组织块应会相互聚集,这是一种常见现象。应每隔3至4分钟使用1 mL移液器将聚集体打散,随着时间推移,聚集体应逐渐变小,直至几乎不可见。
此外,建议在离心前以及过滤前后使用细胞计数板进行细胞计数,以检测因上清液去除不充分可能导致的细胞损失。如果最终的单细胞悬液需要进一步纯化,可采用荧光激活细胞分选(FACS)。细胞分选不仅能够去除碎片或死细胞,更重要的是可富集带有荧光标记的细胞13,19。为避免细胞分选仪中产生剪切应力或堵塞,应使用较大口径的喷嘴(85 µm 或 100 µm),这将进一步提高分选后细胞的存活率。
该技术已在小鼠和人类牙齿上进行了设计和测试。主要的限制因素是老年小鼠(磨牙)和人类牙齿中牙髓组织减少,导致细胞数量较少。如果需要获取更多的细胞,或需获取老年患者牙齿中的细胞,一种可能的解决方案是处理更多数量的牙齿,并将它们合并为同一批次,随后作为单个样本进行处理。
二十多年前,首次采用胶原酶I和中性蛋白酶的混合酶液分离出人牙髓的活细胞23。自那时起,牙髓细胞的分离技术得到广泛应用,并发展出多种不同的方法5,6,7,8。本文所介绍方法的关键意义在于对所有分离步骤进行了优化,使分离过程快速且温和,从而确保最终获得的细胞悬液具有适用于单细胞RNA测序(scRNA-seq)的高质量。通过延长酶消化时间可获得更高的细胞得率。本方案提供了一种高效的方法,可快速从人和小鼠牙齿中获取适合单细胞RNA测序的高质量单细胞。该技术有望仅通过轻微的技术调整,即广泛应用于其他组织或生物样本。
披露
作者声明无利益冲突。
致谢
J.K. 受马萨里克大学资助机构(MUNI/H/1615/2018)以及马萨里克大学医学院为青年研究人员提供的资金支持。J.L. 受马萨里克大学资助机构(MUNI/IGA/1532/2020)支持,并获得由布尔诺市市政当局资助的布尔诺博士人才奖学金。T.B. 受奥地利科学基金(Lise Meitner 项目:M2688-B28)支持。我们感谢 Lydie Izakovicova Holla 和 Veronika Kovar Matejova 在获取人牙方面提供的帮助。最后,我们感谢 Radek Fedr 和 Karel Soucek 在 FACS 分选方面的大力支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| APC 抗小鼠 CD45 抗体 | BioLegend | 103112 | |
| 牛血清白蛋白 V 组分 | Roche | 10735078001 | |
| CellTrics 50 µm,无菌 | Sysmex | 04-004-2327 | |
| 胶原酶 P(COLLP-PRO) | Roche | 11213857001 | |
| CUTFIX 手术刀片,图 10 | AESCULAP | 16600495 | |
| CUTFIX 手术刀片,图 11 | AESCULAP | 16600509 | |
| 胎牛血清(南美洲),超低内毒素 | Biosera | FB-1101/500 | |
| 不含 Ca2+ 和 Mg2+ 的汉克平衡盐溶液(HBSS) | SIGMA | H6648 | |
| 工业级低尘擦拭布,MAX60 | Dirteeze | MAX60B176 | |
| 工业级强力镊子,型号 660,弯型带齿尖头,150 mm | Value-Tec | 50-014366 | |
| 甲醇 A.G. | Penta | 21210-11000 | |
| 碘化丙啶溶液 | BioLegend | 421301 | |
| 手术刀柄 | CM Instrumente | AG-013-10 | |
| 血清移液管 10 mL,独立包装,200 支 | CAPP | SP-10-C | |
| 体视显微镜 | Leica | EZ4 | |
| 手术剪刀(9 cm) | CM Instrumente | AI-430-09Y | |
| 组织培养皿 Ø 100 mm | TPP | 93100 |
参考文献
- Krivanek, J., et al. Dental cell type atlas reveals stem and differentiated cell types in mouse and human teeth. Nature Communications. 11 (1), 4816(2020).
- Soldatov, R., et al. Spatiotemporal structure of cell fate decisions in murine neural crest. Science. 364 (6444), (2019).
- Machado, L., Relaix, F., Mourikis, P. Stress relief: emerging methods to mitigate dissociation-induced artefacts. Trends in Cell Biology. 0 (0), (2021).
- Nguyen, Q. H., Pervolarakis, N., Nee, K., Kessenbrock, K. Experimental considerations for single-cell RNA sequencing approaches. Frontiers in Cell and Developmental Biology. 6, (2018).
- Chiba, Y., et al. Single-cell RNA-sequencing from mouse incisor reveals dental epithelial cell-type specific genes. Frontiers in Cell and Developmental Biology. 8, (2020).
- Debnath, S., et al. Discovery of a periosteal stem cell mediating intramembranous bone formation. Nature. 562 (7725), 133-139 (2018).
- Kanton, S., Treutlein, B., Camp, J. G. Chapter 10 - Single-cell genomic analysis of human cerebral organoids. Methods in Cell Biology. 159, 229-256 (2020).
- Price, F. D., et al. Inhibition of JAK-STAT signaling stimulates adult satellite cell function. Nature Medicine. 20 (10), 1174-1181 (2014).
- vanden Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nature Methods. 14 (10), 935-936 (2017).
- O'Flanagan, C. H., et al. Dissociation of solid tumor tissues with cold active protease for single-cell RNA-seq minimizes conserved collagenase-associated stress responses. Genome Biology. 20 (1), 210(2019).
- van Velthoven, C. T. J., de Morree, A., Egner, I. M., Brett, J. O., Rando, T. A. Transcriptional profiling of quiescent muscle stem cells in vivo. Cell Reports. 21 (7), 1994-2004 (2017).
- Miyawaki-Kuwakado, A., et al. Transcriptome analysis of gene expression changes upon enzymatic dissociation in skeletal myoblasts. Genes to Cells. 26 (7), 530-540 (2021).
- Mattei, D., et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. International Journal of Molecular Sciences. 21 (21), 7944(2020).
- Ferreira, P. G., et al. The effects of death and post-mortem cold ischemia on human tissue transcriptomes. Nature Communications. 9 (1), 490(2018).
- He, W., Ye, J., Xu, H., Lin, Y., Zheng, Y. Differential expression of α6 and β1 integrins reveals epidermal heterogeneity at single-cell resolution. Journal of Cellular Biochemistry. 121 (3), 2664-2676 (2020).
- Machado, L., et al. In situ fixation redefines quiescence and early activation of skeletal muscle stem cells. Cell Reports. 21 (7), 1982-1993 (2017).
- Laranjeira, C., et al. Glial cells in the mouse enteric nervous system can undergo neurogenesis in response to injury. The Journal of Clinical Investigation. 121 (9), 3412-3424 (2011).
- Song, X., et al. Improved strategy for jet-in-air cell sorting with high purity, yield, viability and genome stability. FEBS Open Bio. 11 (9), 2453-2467 (2021).
- Greenblatt, M. B., Ono, N., Ayturk, U. M., Debnath, S., Lalani, S. The unmixing problem: A guide to applying single-cell RNA sequencing to bone. Journal of Bone and Mineral Research. 34 (7), 1207-1219 (2019).
- Charlebois, D. A., Hauser, K., Marshall, S., Balázsi, G. Multiscale effects of heating and cooling on genes and gene networks. Proceedings of the National Academy of Sciences. 115 (45), 10797-10806 (2018).
- Chen, J., et al. PBMC fixation and processing for Chromium single-cell RNA sequencing. Journal of Translational Medicine. 16 (1), 198(2018).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biology. 21 (1), 130(2020).
- Gronthos, S., Mankani, M., Brahim, J., Robey, P. G., Shi, S. Postnatal human dental pulp stem cells (DPSCs) in vitro and in vivo. Proceedings of the National Academy of Sciences of the United States of America. 97 (25), 13625-13630 (2000).
重印与许可
标签
