本方案描述了如何从猪肾和小鼠肝脏中提取含延胡索酰乙酰乙酸水解酶结构域蛋白1(FAHD1)。所列出的方法可针对其他感兴趣的蛋白质进行调整,并可根据其他组织类型进行修改。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
富马酰乙酰乙酸水解酶结构域包含蛋白1(FAHD1)是真核生物中FAH超家族首个被鉴定的成员,在线粒体中发挥草酰乙酸脱羧酶的功能。本文介绍了一系列从猪肾和小鼠肝脏中提取与纯化FAHD1的方法,包括快速蛋白液相色谱(FPLC)离子交换层析、FPLC制备型与分析型凝胶过滤层析,以及蛋白质组学方法。在完成总蛋白提取后,依次采用硫酸铵沉淀和离子交换层析对FAHD1进行分离提取 通过 一种利用离子交换和尺寸排阻色谱的连续策略。该代表性方法可适用于其他表达水平较高的目标蛋白,并可针对其他组织进行优化。从组织中纯化获得的蛋白可用于开发高质量的抗体,以及高效且特异的药理学抑制剂。
引言
真核生物中含FAH结构域的蛋白1(FAHD1)具有双重功能,可作为草酰乙酸(OAA)脱羧酶(ODx)1和酰基丙酮酸水解酶(ApH)2。该蛋白定位于线粒体2,属于广泛的FAH酶超家族1,2,3,4,5,6。尽管其ApH活性仅具次要意义,但FAHD1的ODx活性参与调控三羧酸循环(TCA循环)的通量1,7,8,9。草酰乙酸不仅在三羧酸循环中的关键柠檬酸合酶反应中必需,还可作为电子传递系统中琥珀酸脱氢酶的竞争性抑制剂,并作为出线粒体代谢物(cataplerotic metabolite)。在人脐静脉内皮细胞(HUVEC)中下调FAHD1基因表达会导致细胞增殖速率显著降低10,线粒体膜电位显著受抑,并伴随向糖酵解途径的转换。该作用模型涉及一种类似于线粒体功能障碍相关性衰老(MiDAS)11的表型8,其中线粒体内草酰乙酸水平由FAHD1的活性严格调控1,8,9。
重组蛋白更容易获得 通过 从细菌中表达与纯化12 而不是从组织中获取。然而,在细菌中表达的蛋白质可能因缺乏翻译后修饰而产生偏差,或存在其他问题(例如质粒丢失、细菌应激反应、二硫键形成异常或无法正确形成、无分泌或分泌效率低下、蛋白质聚集、蛋白酶切割等)。对于某些应用而言,需要从细胞裂解物或组织中获取蛋白质,以保留这些翻译后修饰和/或排除可能的实验假象。从组织中纯化的蛋白质有助于开发高质量的抗体,以及针对特定酶(如FAHD1)的高效且特异性的药理学抑制剂。13.
本文介绍了一系列从猪肾和小鼠肝脏中提取和纯化FAHD1的方法。所述方法需要快速蛋白液相色谱(FPLC),但其他步骤仅使用常规实验室设备。其他替代方法可参见 elsewhere14,15,16,17在总蛋白提取后,本方案包含一个检测阶段,其中讨论了硫酸铵沉淀和离子交换层析的子方案(图1)。在定义这些子步骤后,目标蛋白被提取 通过 一种结合离子交换和尺寸排阻色谱的FPLC顺序策略。根据这些指南,最终方案可针对其他目标蛋白进行个性化调整。
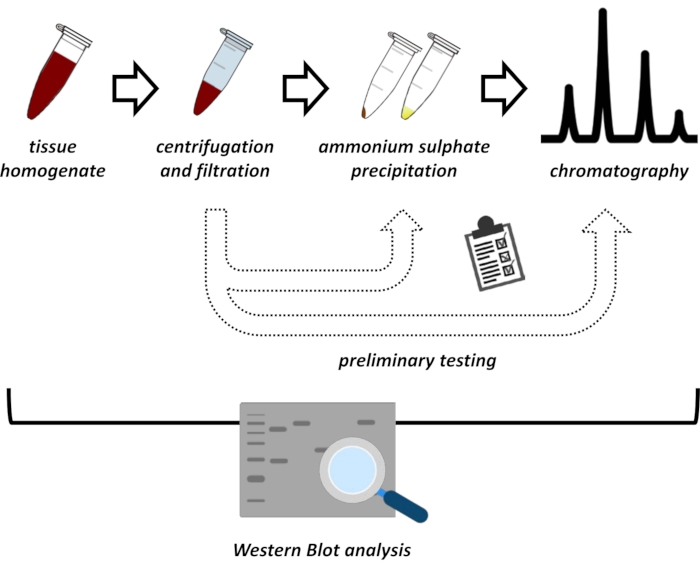
图1本方案的整体策略。 从上到下:从组织中提取蛋白质。制备组织匀浆,经离心和过滤。针对每一对上清液和沉淀物来源的样品,需进行硫酸铵沉淀和离子交换色谱(FPLC)测试,以探索最佳条件。在确定这些子步骤方案后,可进行蛋白质提取。 通过 硫酸铵沉淀、离子交换层析以及在不同pH和盐浓度条件下重复进行的凝胶过滤层析(FPLC)的依次操作步骤。所有步骤均需通过Western印迹进行监控。 请点击此处以查看此图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
所有实验均按照机构指南进行。猪肾购自当地超市,新鲜获取。肝脏组织取自维也纳大学生物医学衰老研究所(奥地利因斯布鲁克,Rennweg 10,6020 因斯布鲁克)在 Univ.-Doz. Dr. Pidder Jansen-Dürr 监督下饲养的 C57BL6 野生型小鼠,该项目负责人于 2013 年获得伦理许可(BMWF-66.008/0007-II/3b/2013)。小鼠的饲养及本项目中的使用均受奥地利教育、科学与研究部(BMBWF)于 2020 年 5 月 5 日签发的伦理许可编号 2020-0.242.978 的监管。
1. 准备工作
注意:在开始实验方案之前,需要准备若干材料,包括蛋白裂解缓冲液、粗组织样品和特异性抗体,以及常规化学品和耗材。
- 每 100 克组织净重配制 250 mL 蛋白裂解缓冲液:将 50 mM NaF、1 mM PMSF、2 µg/mL 抑肽酶和 1 mM 活化正钒酸盐加入 250 mL 1× PBS 中(见表 1)。使用 0.22 µm 注射器滤器对溶液进行过滤。
注意:正钒酸盐在使用前需进行活化,以转化为更有效的蛋白酪氨酸磷酸酶抑制剂18。活化正钒酸盐可从商业供应商处获得,也可按以下方法自行制备。- 在 ddH2O 中配制 200 mM 的(钠盐)正钒酸盐储备液。配制 10 mL 溶液时,将 368 mg Na3VO4 加入 9 mL 水中,搅拌溶解。完全溶解后,用 ddH2O 定容至 10 mL。
注意:不同来源的正钒酸钠溶液起始 pH 值可能不同,需采用以下重复步骤将 pH 值调节至 10。 - 根据溶液初始 pH 值,用 NaOH 或 HCl 将 pH 调至 10。当 pH > 10 时,溶液呈黄色。将溶液煮沸至无色,冷却至室温后检测 pH 值。若 pH > 10,加入少量 HCl 将 pH 调至 10。此时溶液可能再次变黄。
- 重复煮沸和冷却过程,直至溶液保持无色且 pH 稳定在 10(约 5–7 次)。此时加入 HCl 仅导致溶液轻微泛黄。 将活化后的正钒酸盐分装为每份 1 mL,于 -20 °C 保存。
- 在 ddH2O 中配制 200 mM 的(钠盐)正钒酸盐储备液。配制 10 mL 溶液时,将 368 mg Na3VO4 加入 9 mL 水中,搅拌溶解。完全溶解后,用 ddH2O 定容至 10 mL。
- 按每克组织 2 mL 裂解缓冲液准备离心管,并置于冰上。
注意:本方案使用了八个 50 mL 离心管,每个管中加入总共 30 mL 裂解缓冲液,用于处理一个猪肾(约 100–150 g);另使用两个离心管,每个管中加入 40 mL 裂解缓冲液,用于处理 20 个鼠肝(每个 1–2 g)。 - 准备组织:将组织置于放置于泡沫聚苯乙烯盒内冰上的预清洁玻璃板上进行解剖。将组织切成约 100 mg 的小块,以便于转移至相应离心管中进行后续裂解。将组织块转移至已准备好的离心管中(步骤 1.2)。
- 配制饱和硫酸铵溶液:将 500 mL ddH2O 加热至 70 °C,边搅拌边逐渐加入硫酸铵粉末(见材料表),直至不再溶解。将此(过)饱和溶液冷却至室温,并于 4 °C 过夜保存。
2. 总蛋白提取
注意:在使用冷蛋白裂解缓冲液制备样品后(见步骤1.3),应尽可能充分地匀浆组织。 通过 使用超声波探头进行超声处理,或按如下方法使用电动匀浆器。
- 组织匀浆
- 对于猪肾组织,最好将样品置于冰上,使用超声波探头对悬液进行超声处理(以中等振幅、50%占空比,进行10个循环,每个循环脉冲15秒,脉冲间隔30秒,以便在冰上冷却样品)。
- 对于小鼠器官,将悬液置于冰上,使用电动匀浆器进行匀浆(起始使用低强度,逐渐加速至中等强度)。定期用PBS清洗电动匀浆器,以清除可能堵塞设备的有机物质。
- 从样品中取出20 µL,在显微镜下检查匀浆组织的细胞是否已被充分破坏;若未完全破坏,则需重复匀浆步骤。
- 将离心管在台式离心机中以10,000 x g 离心30分钟,温度设为4 °C。
注:可选步骤,可将上清液在4 °C下以20,000 x g 再次离心30分钟,以去除可能被转移的初始沉淀中的少量组分。此步骤有助于简化后续2.3步骤中的过滤过程。 - 将上清液收集至新离心管中,并置于冰上。依次使用0.45 µm和0.22 µm的一次性注射器滤器对上清液进行过滤。将滤后上清液分装为每份10 mL,短期储存可于-20 °C冷冻,长期储存则置于-80 °C。
注:先使用0.45 µm滤器进行预过滤,可去除大部分颗粒,再通过0.22 µm滤器去除更细小的颗粒。若直接使用0.22 µm滤器,可能导致滤器堵塞。 - 取40 µL上清液,加入10 µL 5x SDS上样缓冲液(见表1),总体积为50 µL,用于SDS-PAGE/蛋白质印迹分析,随后在95 °C下煮沸10分钟。
- 可选步骤:将步骤2.2中获得的约100 µL沉淀重悬于900 µL的ddH2O中,并按上述方法制备用于SDS-PAGE/蛋白质印迹分析的样品。
注:在蛋白质印迹分析中,除阳性对照外,同时加入沉淀来源的样品,有助于判断蛋白表达水平是否较低,或抗体是否存在问题。
- 可选步骤:将步骤2.2中获得的约100 µL沉淀重悬于900 µL的ddH2O中,并按上述方法制备用于SDS-PAGE/蛋白质印迹分析的样品。
3. SDS-PAGE 和蛋白质印迹分析
注意:需要通过蛋白质印迹分析检测蛋白质的溶解性。以下描述使用湿转/槽式印迹系统进行电转印的实验方案(参见材料表)。其他地方可找到用于SDS-PAGE的替代方案19。
- 根据制造商说明制备不连续的12.5%聚丙烯酰胺SDS-PAGE凝胶(即在分离胶上方制备浓缩胶;参见 表1)。运行在步骤2中先前制备的样品(类似于步骤4、5和6;见下文)。
- 在第一个孔中加入蛋白质分子量标准品(参见 材料表)。加入5 ng的hFAHD1重组蛋白(来自细菌)12;参见 表1作为阳性对照加入第二孔中。
- 随后,加入20 µL待分析样品,并向其余所有孔中加入20 µL配制好的SDS-PAGE 1x上样缓冲液(即用ddH₂O将5x上样缓冲液稀释至1x)。2O) 使用 SDS 电泳缓冲液(见 表1).
- SDS-PAGE 完成后,进行蛋白质印迹分析,并使用针对 FAHD1 的现有抗体孵育膜(参见 表1).
注意:由于样品来源于粗组织匀浆,此时 SDS-PAGE 和蛋白质印迹分析的质量通常会受到影响;然而,检查目标蛋白是否溶于上清液中至关重要。以下方案已在中国台湾猪肾及多种小鼠器官(包括肝脏、心脏、脑组织和肾脏)中进行过测试。- 配制10倍Western印迹转膜缓冲液(参见 表1). 配制1×蛋白质印迹转膜缓冲液(参见 表1)并冷却至 4 °C。
- 将PVDF膜在甲醇中活化2分钟,随后用ddH₂O清洗膜2O 孵育 2 分钟。将膜置于 1× 蛋白质印迹转膜缓冲液中平衡 15 分钟。
- 用1×PBS缓冲液振荡洗涤SDS凝胶10分钟,以去除SDS电泳缓冲液,随后将凝胶置于1×Western印迹转膜缓冲液中孵育10分钟以进行平衡。根据制造商说明书组装电转印夹心装置(即将活化的PVDF膜与凝胶结合)。
- 运行印迹 通过 在装有冰块的聚苯乙烯泡沫盒中或在4 °C冷室中,以300 mA电流电转印1小时。 将PVDF膜转移至50 mL离心管中,使膜的暴露面朝向管内壁。用20 mL Western blot封闭缓冲液孵育膜(参见 表1)在4 °C下于试管滚转仪上孵育过夜(参见 材料表).
- 次日,将膜置于同一管中,加入20 mL Western印迹洗涤缓冲液(含0.1% (v/v) Tween 20的PBS),滚动孵育5分钟。随后在同一管中加入一抗,孵育膜2 (靶向 FAHD1;参见 表1在室温下轻轻滚动孵育1小时,使用Western blot封闭缓冲液按1:500比例稀释。
- 在同一个管中,加入20 mL Western印迹洗涤缓冲液,滚动孵育,每次10分钟,重复洗涤三次。 室温下用HRP标记的二抗孵育膜30分钟(参见 材料表) 用 5 mL 蛋白质印迹封闭缓冲液按 1:3000 比例稀释。
- 用 20 mL 的 Western 印迹洗涤缓冲液在同一管中清洗膜 3 次,每次 10 分钟,再用 1× PBS 清洗 2 次,每次 5 分钟。用镊子小心夹住膜的一边,用另一侧(下侧)边缘轻触一张纤维素膜或 Whatman 滤纸,以吸干膜上的液体。将膜(暴露面朝上)放置于洁净的玻璃板上。
- 使用移液器将1 mL预先配制的ECL Western印迹底物均匀覆盖整个膜,注意避免产生气泡。室温孵育ECL溶液3分钟,随后立即使用X射线胶片或成像系统显影。
注意:如果该蛋白在所有样品中均未检测到,仅在阳性对照中检测到,这可能表明该蛋白不溶,或其含量不足以被抗体检测到。若仅上样了少量纳克级的阳性对照,则前一种情况更有可能。若完全未检测到任何蛋白,应检查抗体的质量,可考虑改用多克隆抗体而非单克隆抗体。在极少数情况下(例如某些疏水性蛋白),蛋白在离心后可被检测到,但在过滤后无法检测。此时建议使用专用于疏水性蛋白的特殊滤膜装置。
- 可选步骤:在完成蛋白质印迹后,对PVDF膜进行染色,以检测蛋白质是否已成功从SDS-PAGE凝胶转移至PVDF膜。
注意:考马斯亮蓝染色适用于问题排查、方法开发和结果记录,但需注意采用本方案后,膜将无法用于后续的蛋白质印迹分析。Ponceau S 染色染色强度较弱,但如果需要对膜进行再次探针检测,则可选用该方法。- 准备含有染色液(考马斯亮蓝或Ponceau S)和脱色液的小型托盘。
- 使用镊子将膜放入染色液中,轻轻摇动,直至膜完全染色(5–10 分钟)。
- 将膜转移至脱色液中,摇动至溶液饱和(5-10 分钟)。重复脱色步骤,直至膜上可见蛋白条带;若完全未观察到条带,应延长染色孵育时间并重新染色。用镊子将膜置于玻璃板上晾干。
4. 检测:硫酸铵沉淀
注意:硫酸铵沉淀是一种通过改变蛋白质溶解度来实现蛋白质纯化的方法。在预实验中,逐步提高硫酸铵浓度,直至达到一个能够使尽可能多的蛋白质杂质沉淀、而FAHD1仍保留在溶液中的浓度。随后再次检测目标蛋白质的溶解度 通过 Western印迹分析
- 从步骤 2.3 继续:可选择解冻一份样品,或在蛋白质提取后直接进行(即不冷冻样品)。使用 0.22 µm 滤器过滤样品,以去除解冻后可能形成的沉淀物。在冰上准备六个 1.5 mL 离心管,每管加入 250 µL 样品。
- 在上述准备好的离心管中配制 5%、10%、15%、20%、25% 和 30% 的硫酸铵梯度稀释液,并用蛋白裂解缓冲液补足至终体积 1000 µL。将样品置于 4 °C 条件下,在管式旋转仪上孵育过夜(参见 材料表)。
- 使用台式离心机,在 4 °C 以 10,000 x g 离心 30 分钟,小心地将所有上清液转移至新的离心管中。将所得沉淀在空气中干燥,并分别用 1000 µL 去离子水(ddH2O)重悬。
- 对上一步获得的每一对重悬沉淀和上清液样品,取 40 µL 与 10 µL 5x SDS 上样缓冲液混合,于 95 °C 加热煮沸(开盖),直至大部分液体蒸发。随后,将沉淀重悬于含 50% DMSO 的去离子水(ddH2O)溶液中。
- 进行 SDS-PAGE(步骤 3),但以 80 V 恒压电泳运行 3 小时。对于每个硫酸铵浓度,成对加载来自重悬沉淀和上清液的样品(步骤 4.3)。随后进行 Western 印迹分析(步骤 3)。
- 检测目标蛋白(即 FAHD1)仍保留在上清液来源样品中的最高硫酸铵浓度。根据实验结果,确定目标蛋白的硫酸铵沉淀方案,供后续实验使用。
注意:已知硫酸铵会对 SDS-PAGE 和 Western 印迹造成干扰。随着硫酸铵浓度升高,Western 印迹分析的质量将下降。然而,与之前的步骤 3 类似,该分析用于评估目标蛋白在特定硫酸铵浓度下的溶解性。本方案旨在沉淀其他杂蛋白,而目标蛋白必须保持可溶状态。
5. 检测:使用FPLC进行离子交换色谱
注意:对于FPLC,带有电荷官能团的分子会结合到硅胶颗粒柱上,从而根据蛋白质表面电荷的不同实现分离。此步骤需分别使用阳离子交换柱和阴离子交换柱各进行一次(参见材料表)。阳离子或阴离子交换色谱的操作步骤相同,但所用缓冲液不同(参见表1);两种条件下均使用"低盐"(15 mM NaCl)和"高盐"(1 M NaCl)条件。对于所用色谱柱,推荐流速为1 mL/min。
- 使用阴离子或阳离子交换柱装配FPLC系统。用5个柱体积(CVs)的20%乙醇(溶于H₂O)冲洗色谱柱2O),随后进行5次ddH的循环伏安扫描2O. 或者,依次用1个柱体积的低盐缓冲液、高盐缓冲液,再用低盐缓冲液洗涤层析柱,直至洗脱图谱中不再出现新的洗脱峰为止,但至少需洗涤一次。
- 在小规模硫酸铵沉淀确定最佳方案后(步骤4),将该沉淀方案应用于10 mL原始组织匀浆(步骤2)。可选地,用低盐缓冲液对样品进行透析。
- 将样品上样至柱子(例如通过注射或使用样品泵),并收集穿流液。用1个柱体积的低盐缓冲液洗涤柱子。
- 在3个柱体积(CV)内建立线性梯度洗脱,从100%低盐缓冲液/0%高盐缓冲液逐渐变化至0%低盐缓冲液/100%高盐缓冲液。持续收集每1 mL的洗脱组分。梯度洗脱结束后,继续用高盐缓冲液运行,直至在1个柱体积范围内,色谱图中不再检测到与蛋白质相关的洗脱峰(280/255 nm处的紫外吸收)。
- 加入1 mL溶于0.5 M NaOH中的25% SDS(ddH₂O配制)2O)清洗柱子。随后用 3 个柱体积的 ddH₂O 依次洗涤柱子。2O 和 3 个 20% EtOH(ddH₂O 中)的 CV2O
- 收集所有洗脱峰组分和流穿组分的SDS-PAGE样品,并对其进行检测 通过 通过蛋白质印迹检测目标蛋白的存在(步骤3)。将收集的组分在液氮中速冻,并于-80 °C保存。
- Western 印迹分析完成后,解冻并合并含有目标蛋白的组分,弃去其余组分。使用另一种层析柱(即阳离子或阴离子交换柱)重复步骤 5.1–5.5。
- 在完成两根层析柱的探查后,为感兴趣蛋白制定一个FPLC程序,供后续实验使用。使用超滤离心管(10 kDa,参见 材料表)浓缩至2 mL。
注意:本系列实验有两种预期结果。其一,目标蛋白结合到了其中一列层析柱上,经洗脱后蛋白溶液已较为纯净;其二,在两种情况下蛋白均保留在穿流组分中。在后一种情形下,尽管目标蛋白存在于穿流组分中,该步骤的净化效果仍可能较为显著。例如猪肾和小鼠肝脏中的FAHD1蛋白,仍会执行离子交换步骤。若阳离子交换柱和阴离子交换柱均无法获得理想的净化效果,可尝试调节裂解液和缓冲液的pH,并在上样至FPLC前将样品对运行缓冲液进行透析。
6. 使用硫酸铵沉淀和FPLC的特定子方案进行蛋白质提取
注意:用于FPLC的硅胶柱中的多孔颗粒(参见材料表)可根据蛋白质的流体动力学半径对其进行分离。所述步骤应使用FPLC系统,通过尺寸排阻色谱法(SEC)进行。对于所用的SEC色谱柱(参见材料表),推荐流速为0.3 mL/min。
- 准备好所有必需的材料(参见步骤 1),并从组织中提取总蛋白(参见步骤 2)。对未用于检测的所有组织匀浆进行硫酸铵沉淀(参见步骤 4)。对于较大体积的裂解液,使用超滤离心过滤装置(10 kDa;见材料表)将其浓缩至 50 mL 或更小体积。
- 使用离子交换色谱进行第一步纯化(参见步骤 5)。
- 按照前述步骤所述,制备用于 Western 印迹的样品。进行 Western 印迹分析,并合并所有含有 FAHD1 的离子交换色谱组分。
- 使用超滤离心过滤装置(10 kDa)将蛋白溶液体积浓缩至 2 mL。依次使用 0.45 µm 和 0.22 µm 的针筒式滤器过滤溶液,以去除任何微小沉淀。
- 用 1 倍柱体积(CV)的 SEC 洗脱缓冲液(见表 1)平衡 SEC 柱,缓冲液中含 1 mM DTT。将样品上样至色谱柱,并运行色谱直至所有蛋白均被洗脱(1–2 CV)。
- 收集洗脱液中对应于色谱图显著峰(280/255 nm 紫外吸收)的 1 mL 组分,并按前述步骤所述,为每份收集的组分准备 50 µL 样品用于 SDS-PAGE 和 Western 印迹分析。使用液氮迅速冷冻所有组分,并于 -80 °C 保存。
- 依次用 1 CV 的 ddH2O 和 1 CV 的 20% EtOH(溶于 ddH2O)清洗 SEC 柱。进行 Western 印迹分析,并合并所有含 FAHD1 的组分。使用超滤离心过滤装置(10 kDa,见材料表)将蛋白溶液体积浓缩至 2 mL。
- 使用商用 BCA 蛋白定量试剂盒测定蛋白浓度(见材料表)。
注意:流动相的 pH 和盐浓度可能影响球状蛋白的洗脱行为20。酸性或碱性条件可能导致峰形不清晰,并增强蛋白与基质的相互作用,从而引起蛋白在柱上的部分滞留20。该效应可用于进一步纯化蛋白。重复步骤 6 并调整流速、pH 及盐浓度,可能提高蛋白纯度20。
7. 银染色
注意:需要对SDS-PAGE凝胶进行银染分析,以检测考马斯亮蓝染色无法观察到的蛋白质污染。以下方案是文献中报道的多种方案之一21。所有孵育步骤均需在洁净的玻璃托盘中振荡进行。含有银和甲醛的液体应收集至专用废液容器中,并按规定妥善处理。
- 将SDS-PAGE凝胶在冷室中用银染固定液(见表1)孵育过夜。在室温下用银染孵育液(见表1)孵育凝胶3小时。可选:加入戊二醛(见表1)以增强微弱条带的检测。用ddH2O清洗凝胶四次,每次10分钟。
- 将凝胶在银染银溶液(见表1)中孵育1小时。
注意:从此步骤开始,所有液体及凝胶本身均含有银和甲醛,具有毒性。 - 在剧烈振荡条件下,将凝胶置于银染显影液(见表1)中孵育,直至条带清晰可见。为终止反应,弃去显影液,并立即将凝胶放入银染终止液(见表1)中孵育至少10分钟。
注意:在步骤7.2和7.3中染色的条带会持续显色。若染色较弱,可能需要加入比规定量更多的甲醛。
访问受限。请登录或开始试用以查看此内容。
结果
FAHD1 蛋白采用本方案从猪肾和小鼠肝脏中提取。对于小鼠组织,需要多个器官以获得数毫克的蛋白 µg 在最终纯化步骤之后。因此,本文重点介绍从猪肾脏中提取FAHD1的方法,这是一个更具代表性的实验。从小鼠肝脏中提取FAHD1的操作旨在展示本方案可能遇到的困难与潜在问题。通常建议使用目标蛋白表达水平较高的组织器官进行纯化。人类蛋白质图谱22 可能有助于在模型系统中估算表达水平,或者可以使用不同的粗组织裂解液进行初步的蛋白质印迹实验以评估这些表达水平。所有蛋白质印迹分析中使用的阳性对照均为一种带标签的重组蛋白,其分子量略高。
作为首次实验,展示了从猪肾脏中提取FAHD1的过程。组织匀浆(步骤1)和总蛋白提取(步骤2)的过程见补充图1(各步骤的说明见图注)。后续实验使用了总裂解液的十分之一 aliquot。
对该裂解液进行了一次硫酸铵沉淀实验,通过将硫酸铵以不同浓度加入裂解液中(步骤4)(图2
访问受限。请登录或开始试用以查看此内容。
讨论
实验方案中的关键步骤
必须遵循蛋白质操作的通用准则,例如在冰上操作,并保持适中的 pH 和盐浓度条件。使用蛋白酶抑制剂有助于该方法的实施,而强烈建议使用蛋白酶体抑制剂。反复冻融样品可能导致蛋白质沉淀(至少部分沉淀),因此初始蛋白裂解液(步骤 2)的任何解冻分装样品都应连续处理,不得中断。通常建议在解冻后进行离心和过滤,以去除微小沉淀物。
从组织中获得的初始蛋白裂解液仍含有大量非蛋白质成分。可使用离子交换层析柱对裂解液进行澄清。即使目标提取蛋白不与离子交换柱结合,流出液通常也比上样溶液更澄清,便于后续步骤处理。这一点在从小鼠肾脏中提取FAHD1的过程中得到了验证(见图5A)。
方法的局限性与改进
本方案描述了一种从组织中提取FAHD1的实验方法。基于该策略,可衍生出从其他组织中提取FAHD蛋白(FAHD1、FAHD2)的通用方法,但个别情况可能需要进行特定调整。该方法的内在限制在...
访问受限。请登录或开始试用以查看此内容。
披露
作者无竞争性财务利益。
致谢
作者非常感谢艾丝·厄兹图尔克(Ayse Öztürk)和伊娃·阿尔贝蒂尼(Eva Albertini)提供的技术协助。用于生成肝组织的小鼠由奥地利因斯布鲁克大学生物医学衰老研究所(地址:奥地利因斯布鲁克市伦韦格10号,邮编6020)的皮德·詹森-杜尔大学副教授兼博士(Univ.-Doz. Dr. Pidder Jansen-Dürr)负责监管饲养。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.22 µm 滤器单元 | MERCK | SLGP033RS | Millex-HP,0.22 µm,PES 33 mm,非无菌 |
| 0.45 µm 滤器单元 | MERCK | SLHP033NS | Millex-HP,0.45 µm,PES 33 mm,非无菌 |
| 15 mL Falcon 管 | VWR | 734-0451 | 离心管 |
| 50 mL Falcon 管 | VWR | 734-0448 | 离心管 |
| 96 孔紫外微孔板 | Thermo-Fischer | 8404 | 紫外/可见光透明平底 96 孔板 |
| 丙烯酰胺/双丙烯酰胺溶液(40%,29:1 比例) | BIO-RAD | #1610147 | 用于灌制聚丙烯酰胺凝胶的 40% 丙烯酰胺/双丙烯酰胺溶液,29:1(3.3% 交联剂) |
| ÄKTA FPLC 系统 | GE Healthcare Life Sciences / Cytiva | - | 使用 GE Healthcare 的 FPLC 系统;存在多种定制版本;本研究使用的是 "ÄKTA pure" 系统 |
| Amicon Ultra-15,PLGC Ultracel-PL 膜,10 kDa | MERCK | UFC901024 | 用于蛋白质富集的离心过滤器;10 kDa 分子量截留值;15 mL |
| Amicon Ultra-4,PLGC Ultracel-PL 膜,10 kDa | MERCK | UFC801024 | 用于蛋白质富集的离心过滤器;10 kDa 分子量截留值;4 mL |
| 硫酸铵粉末 | MERCK | A4418 | 分子生物学级硫酸铵,≥99.0% |
| 过硫酸铵,试剂级,98% | MERCK | 215589 | 丙烯酰胺凝胶聚合的催化剂 |
| 考马斯亮蓝 R 250 | MERCK | 1125530025 | 用于电泳的考马斯亮蓝 R 250(C.I. 42660),Imperial Chemical Industries PLC 商标,CAS 6104-59-2,pH 6.2(10 g/L,H2O,25 °C) |
| 透析管纤维素膜 | MERCK | D9277 | 用于通过透析交换缓冲液的纤维素膜 |
| Eppendorf 管 1.5 mL | VWR | 525-1042 | 微量离心管;已高压灭菌 |
| HiLoad 26/600 Superdex 75 pg | GE Healthcare Life Sciences / Cytiva | 28989334 | HiLoad Superdex 75 pg 预装柱适用于重组蛋白的高分辨率凝胶过滤层析 |
| Immun-Blot PVDF 膜 | BIO-RAD | #1620177 | PVDF 膜是为荧光及多重荧光应用优化的蛋白质印迹膜 |
| Mini Trans-Blot 电泳转移装置 | BIO-RAD | #1703930 | 使用 Mini Trans-Blot 装置可快速转印 Mini-PROTEAN 预制胶和手工灌胶 |
| Mini-PROTEAN Tetra 垂直电泳槽(用于 Mini 预制胶) | BIO-RAD | #1658004 | 四块胶的垂直电泳系统,包含电极组件、配套运行模块、电泳槽、带电源线的盖子以及微型电泳槽缓冲液挡板 |
| Mono Q 10/100 GL | GE Healthcare Life Sciences / Cytiva | 17516701 | Mono Q 柱为强阴离子交换层析柱,用于蛋白质分析或小规模高分辨率纯化 |
| Mono S 10/100 GL | GE Healthcare Life Sciences / Cytiva | 17516901 | Mono S 柱为强阳离子交换层析柱,用于蛋白质分析或小规模高分辨率纯化 |
| PageRuler 预染蛋白 Marker,10 至 180 kDa | Thermo-Fischer | 26616 | 由 10 种蓝色、橙色和绿色染色的蛋白质(10 至 180 kDa)组成的混合物,用作蛋白质电泳(SDS-PAGE)和 Western 印迹中的分子量标准 |
| Pierce BCA 蛋白检测试剂盒 | Thermo-Fischer | 23225 | 一种双组分、高精度、兼容去垢剂的蛋白定量检测方法,用于测定蛋白质浓度 |
| Sonifier 250;带转换器的超声波细胞破碎仪 | Branson | - | 新型号见 https://www.emerson.com/documents/automation/brochure-sonifier-sfx250-sfx550-cell-disruptors-homogenizers-branson-en-us-168180.pdf |
| 猪抗兔免疫球蛋白/HRP(亲和纯化) | Agilent Dako | P0399 | 用于辣根过氧化物酶偶联的抗体可与所有类别的兔免疫球蛋白反应 |
| TEMED,1,2-双(二甲氨基)乙烷,TMEDA | MERCK | T9281 | TEMED(N,N,N′,N′-四甲基乙二胺)是一种可促进聚丙烯酰胺凝胶快速聚合的分子 |
| 管式滚轴混合器 | - | - | 通用试管旋转滚轴混合器;例如新型号见 https://labstac.com/de/Mixer/Roller/c/71 |
| 试管旋转混合器 | - | - | 通用试管旋转轮混合器;例如新型号见 https://labstac.com/de/Tube-Roller/p/MT123 |
| ULTRA-TURRAX;T 25 digital | IKA | 0003725000 | 新型号见 https://www.ika.com/de/Produkte-Lab-Eq/Dispergierer-Dipergiergeraet-Homogenisierer-Homogenisator-csp-177/T-25-digital-ULTRA-TURRAX-cpdt-3725000/ |
参考文献
- Pircher, H., et al. Identification of FAH domain-containing protein 1 (FAHD1) as oxaloacetate decarboxylase. Journal of Biological Chemistry. 290 (11), 6755-6762 (2015).
- Pircher, H., et al. Identification of human Fumarylacetoacetate Hydrolase Domain-containing Protein 1 (FAHD1) as a novel mitochondrial acylpyruvase. Journal of Biological Chemistry. 286 (42), 36500-36508 (2011).
- Kang, T. -W., et al. Senescence surveillance of pre-malignant hepatocytes limits liver cancer development. Nature. 479 (7374), 547-551 (2011).
- Hong, H., Seo, H., Park, W., Kim, K. K. -J. Sequence, structure and function-based classification of the broadly conserved FAH superfamily reveals two distinct fumarylpyruvate hydrolase subfamilies. Environmental Microbiology. 22 (1), 270-285 (2020).
- Timm, D. E., Mueller, H. A., Bhanumoorthy, P., Harp, J. M., Bunick, G. J. Crystal structure and mechanism of a carbon-carbon bond hydrolase. Structure. 7 (9), London, England. 1023-1033 (1999).
- Bateman, R. L., et al. Mechanistic inferences from the crystal structure of Fumarylacetoacetate Hydrolase with a bound phosphorus-based inhibitor. Journal of Biological Chemistry. 276 (18), 15284-15291 (2001).
- Weiss, A. K. H., et al. Structural basis for the bi-functionality of human oxaloacetate decarboxylase FAHD1. Biochemical Journal. 475 (22), 3561-3576 (2018).
- Etemad, S., et al. Oxaloacetate decarboxylase FAHD1 - a new regulator of mitochondrial function and senescence. Mechanisms of Ageing and Development. 177, 22-29 (2019).
- Weiss, A. K. H., et al. Regulation of cellular senescence by eukaryotic members of the FAH superfamily - A role in calcium homeostasis. Mechanisms of Ageing and Development. 190, 111284(2020).
- Petit, M., Koziel, R., Etemad, S., Pircher, H., Jansen-Dürr, P. Depletion of oxaloacetate decarboxylase FAHD1 inhibits mitochondrial electron transport and induces cellular senescence in human endothelial cells. Experimental Gerontology. 92, 7-12 (2017).
- Wiley, C. D., et al. Mitochondrial dysfunction induces senescence with a distinct secretory phenotype. Cell Metabolism. 23 (2), 303-314 (2016).
- Weiss, A. K. H., et al. Expression, purification, crystallization, and enzyme assays of Fumarylacetoacetate Hydrolase Domain-containing proteins. Journal of Visualized Experiments: JoVE. (148), e59729(2019).
- Weiss, A. K. H., et al. Inhibitors of Fumarylacetoacetate Hydrolase Domain Containing Protein 1 (FAHD1). Molcules. 26 (16), 5009(2021).
- Mizutani, H., Kunishima, N. Purification, crystallization and preliminary X-ray analysis of the fumarylacetoacetase family member TTHA0809 from Thermus thermophilus HB8. Acta Crystallographica Section F Structural Biology and Crystallization Communications. 63 (9), 792-794 (2007).
- Lee, C. H. A simple outline of methods for protein isolation and purification. Endocrinology and Metabolism. 32 (1), Seoul, Korea. 18-22 (2017).
- Amer, H. E. A. Purification of proteins: Between meaning and different methods). Proteomics Technologies and Applications. , (2019).
- Niu, L., Yuan, H., Gong, F., Wu, X., Wang, W. Protein extraction methods shape much of the extracted proteomes. Frontiers in Plant Science. 9, 802(2018).
- Gordon, J. A. Use of vanadate as protein-phosphotyrosine phosphatase inhibitor. Methods in Enzymology. 201, 477-482 (1991).
- Gallagher, S. R. SDS-polyacrylamide gel electrophoresis (SDS-PAGE). Current Protocols in Essential Laboratory Techniques. , (2012).
- Ahmed, U., Saunders, G. Effect of pH on Protein Size Exclusion Chromatography. , Available from: https://www.agilent.com/cs/library/applications/5990-8138EN.pdf (2011).
- Sørensen, B. K., et al. Silver staining of proteins on electroblotting membranes and intensification of silver staining of proteins separated by polyacrylamide gel electrophoresis. Analytical Biochemistry. 304 (1), 33-41 (2002).
- Fagerberg, L., et al. Analysis of the human tissue-specific expression by genome-wide integration of transcriptomics and antibody-based proteomics. Molecular & Cellular Proteomics. 13 (2), 397-406 (2014).
- Cytiva Life Fundamentals of size exclusion chromatography. , Available from: https://www.cytivalifesciences.com/en/us/solutions/protein-research/knowledge-center/protein-purification-methods/size-exclusion-chromatography (2022).
- Rosano, G. L., Ceccarelli, E. A. Recombinant protein expression in Escherichia coli: advances and challenges. Frontiers in Microbiology. 5, 172(2014).
- Rosano, G. L., Morales, E. S., Ceccarelli, E. A. New tools for recombinant protein production in Escherichia coli: A 5-year update. Protein Science: A Publication of the Protein Society. 28 (8), 1412-1422 (2019).
访问受限。请登录或开始试用以查看此内容。
重印与许可
