本实验方案旨在提供收集、固定和保存菌异养植物样品的详细步骤,并应用多种显微技术(如扫描电镜、透射电镜、光学显微镜、共聚焦显微镜和荧光显微镜),以研究菌根真菌在植物组织及经菌根真菌接种萌发的种子中的定殖情况。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
结构植物学是全面理解植物生态学、生理学、发育和进化不可或缺的视角。在研究菌根异养植物(即从真菌获取碳的植物)时,其结构适应性的显著特征、真菌对组织的定植模式以及地下器官的形态解剖结构,能够揭示这些植物的发育策略及其与作为营养来源的菌丝之间的关系。共生真菌的另一个重要作用与兰科种子的萌发密切相关;所有兰科(Orchidaceae)植物在种子萌发和幼苗阶段均为菌根异养(初期菌根异养),即使其中一些物种在成株阶段具备光合作用能力。由于兰科种子缺乏营养储备,真菌共生体对于提供底物并促进萌发至关重要。通过结构视角分析萌发的不同阶段,也有助于回答有关真菌与种子相互作用的重要科学问题。本文提出了多种成像技术,可用于揭示植物组织中的内生真菌。植物器官的徒手切片和薄切片可经染色后在光学显微镜下观察。可使用与小麦胚芽凝集素(wheat germ agglutinin)偶联的荧光染料对真菌进行标记,并与Calcofluor White共孵育,以在共聚焦显微镜下突出显示植物细胞壁。此外,本文还详细描述了针对菌根异养型兰科植物的扫描电镜和透射电镜技术,并探讨了将这些方法应用于相关植物的可能性。文中还详细描述了兰科种子的共生萌发(即在菌根真菌存在条件下的萌发)实验方案,以及如何制备不同萌发阶段所获得的结构,用于光学显微镜、共聚焦显微镜和电子显微镜的分析。
引言
植物学中的结构研究涵盖植物形态学与解剖学,是理解植物整体生物体的基础1,2,并为整合和促进有关植物生态学、生理学、发育及进化方面的知识提供了不可或缺的视角3。目前植物形态学与解剖学的研究方法包括近年来发展出的技术,也包括一百多年前建立的方案、设备与知识体系2。经典方法(如光学显微镜技术)与较新的技术(如共聚焦显微镜、X射线显微断层成像)的持续应用与改进,均基于一个共同的核心:即支撑方法学发展的理论知识。
植物解剖学与形态学的主要工具是图像。尽管存在一种误解,认为此类分析仅仅是简单的观察,从而为主观解释留出空间2解读所获得的图像需要了解该领域所采用的方法(仪器设备、分析类型、实验技术流程)、细胞组分、组织化学以及植物体本身(组织结构与功能、个体发育、形态适应性)。 通过 多种方法可用于关联形态与功能、解析结构的化学组成、验证分类单元的描述、理解植物病原体引起的感染以及其他类似评估。
研究菌根异养(MH)植物时 即通过菌根真菌获取碳的非光合作用植物4,5), 其结构适应性的显著特征、真菌在组织中的定殖模式以及地下器官的形态解剖结构,有助于阐明它们的发育策略及其与菌丝的关系,而菌丝正是养分的来源。菌根异养植物的地下器官通常表现出与土壤真菌共生相关的重要适应特征,因此开展这些解剖学和形态学研究至关重要6. MH类物种的地上器官不应被忽视,因为内生菌也可能存在于这些组织中,即使它们并非菌根真菌(个人观察,尚未发表)。
除了已充分证实菌根真菌在菌异养(MH)物种整个生命周期中的必要性外,即使是自养型兰花物种,在自然环境中也普遍存在一个初始的专性菌异养阶段7。这一现象的发生原因是兰花的胚胎未分化,且缺乏胚乳或子叶,因此在没有真菌伙伴提供营养支持的情况下,无法在自然环境中完成发育和定植4,8。鉴于此,共生萌发技术不仅可用于MH物种,也可应用于能够进行光合作用的兰花,以研究兰花与真菌在萌发及原球茎发育过程中的专一性关系,该方法已被广泛应用于濒危物种保护的相关研究中9,10,11。
在本方法汇编中,我们描述了用于解剖学研究的兰科菌根(MH)植物样品的采集、固定与保存的重要步骤(第1节),表面分析与样品选择(第2节),切片方法(徒手切片:第3节,石蜡切片:第4节,冷冻切片:第5节),染色与封片(第6节),真菌内生菌的荧光显微镜与共聚焦显微镜观察(第7节),扫描电子显微镜观察(第8节)以及透射电子显微镜观察(第9节)。此外,我们还介绍了一种兰科种子的共生萌发方法(MH及自养型,第10节),因为前述成像方法可成功应用于分析萌发过程中真菌对种子、原球茎及幼苗的定殖情况。
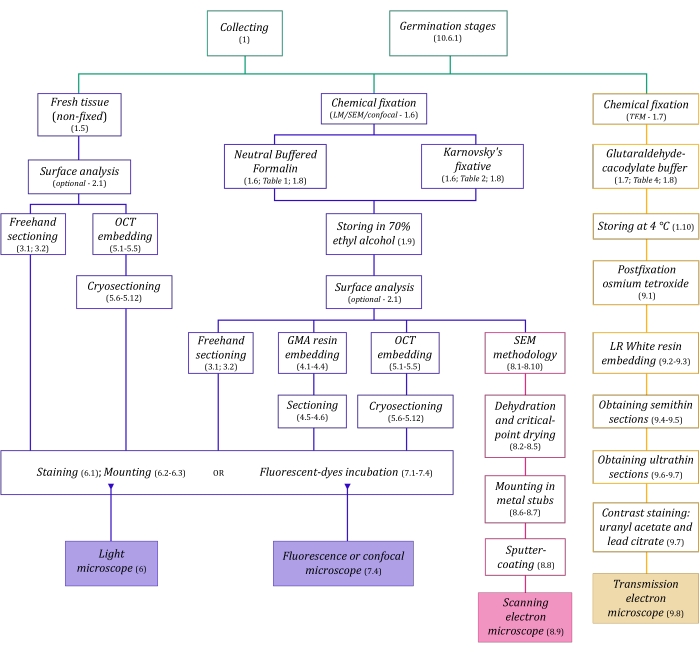
图1:成像方法的示意图总结。 图示标明了各步骤在相应实验方案中的详细说明位置。缩写:GMA = 甲基丙烯酸乙二醇酯,OCT = 最佳切削温度包埋剂,SEM = 扫描电子显微镜。 请点击此处查看该图的放大版本。
此处详细描述的显微技术(图1)之前需完成以下关键步骤:样品的采集、固定、脱水、包埋和切片。由于这些步骤会因所选技术的不同而有所变化(图1),因此必须提前规划,考虑需要准备并运送到采样现场的固定剂、样品在固定前的预处理方式、所采用的脱水流程(第1节),以及不同的包埋方案和切片方法(第4、5和9节)。图1 系统地总结了下文详述的每种显微技术所需的所有操作步骤。
访问受限。请登录或开始试用以查看此内容。
方案
1. 样品的采集、固定与保存
注意:完全菌异养植物通常可在阴暗的森林下层植被中找到12,13,主要分布在潮湿且枯落物丰富的区域,而部分菌异养植物则多见于较开阔的森林环境中12,13。菌异养植物通常具有形态和大小各异的发达地下器官。
- 采集菌根真菌(MH)物种时,应探索植株基部周围的土壤,注意不要损伤地下器官,避免将植株从土壤中拔出,以防地上部分与地下部分分离。
- 使用园艺铲小心挖掘地上结构周围区域,同时探查根、茎、根状茎和贮藏器官等地下结构,注意不要损伤这些结构。
- 去除土壤颗粒以保护脆弱结构,并用自来水轻轻冲洗这些器官以清除残留的土壤颗粒,随后固定样品。
- 与凋落物相关的菌根植物需格外注意;应小心采集通过菌丝与腐烂物质相连的器官,避免将这些器官从连接结构上强行拉下,因其极为脆弱。应保留具有此类连接的结构,并同时采集凋落物用于分析。
- 若选择使用成像技术分析新鲜材料,应将样品保存在密封的塑料袋中并保持适当湿度,使水分适量蒸发并润湿植株,但避免样品直接接触过多水分。应立即将样品运送至实验室,并在采集当天完成分析,分析时需注意确认样品是否仍保持良好状态。
- 将固定液携带至采样现场时,应使用密封良好的容器盛装。采集后应尽快使用以下任一固定液对样品进行固定,用于光学显微镜(LM)和扫描电子显微镜(SEM)观察:10%中性缓冲福尔马林(NBF14,Table 1)或改良卡诺夫斯基溶液(Karnovsky's solution15,Table 2)。改良卡诺夫斯基溶液可使用0.2 M磷酸盐缓冲液15配制,其配方见Table 3。
- 若需进行透射电子显微镜(TEM)分析,应在一滴戊二醛-二甲胂酸钠缓冲液(改良16,Table 4)中将样品切成4–3 mm大小,再进一步分割为1–2 mm厚的小段。丢弃在液滴外切割的边缘部分。立即将切片转移至收集管中,固定液体积应超过样品体积10倍以上,因其为加成型固定剂(即其分子可化学结合至被固定的蛋白质上16)。
警告:上述三种固定剂均具有高毒性。尤其在野外使用时应避免吸入。所有固定剂均应在通风橱中佩戴手套配制。切勿将二甲胂酸盐与酸混合,以免产生砷化氢气体16。 - 若固定后的样品在固定液中漂浮,表明植物组织内存在气体。空气及其他气体将阻碍固定液完全渗透样品2。可通过将样品重新切割为更小部分,并使用真空泵(-300 至 -400 inHg 压力)抽真空,直至所有样品沉入溶液底部,以去除组织中的气体17。注意:真空泵施加压力过大可能损伤样品。
- 在改良卡诺夫斯基溶液或10% NBF中固定至少48小时后,用0.2 M PB缓冲液(Table 3)清洗样品,并依次使用10%、30%、50%和最终70%乙醇进行系列脱水。对于脆弱样品,每个浓度脱水30分钟;对于较大样品,每个浓度脱水1小时或更长时间。
注意:70%乙醇溶液是保存样品的理想介质。样品可在70%乙醇中室温保存多年。切勿将植物材料长期保存在固定液中,因固定后去除固定剂是必不可少的步骤2。 - 在进行后固定(步骤9.1)前,将样品保存于戊二醛-二甲胂酸钠固定液中,置于4 °C条件下。
| 10% 中性缓冲福尔马林 (NBF)14 | |
| 步骤 1 | 在 80 mL 蒸馏水中加入 10 mL 37-40% 的甲醛溶液 |
| 步骤 2 | 向溶液中加入 0.4 g 磷酸二氢钠一水合物 (NaH2PO4·H2O) |
| 步骤 3 | 加入 0.65 g 无水磷酸氢二钠 (Na2HPO4) |
| 步骤 4 | 加蒸馏水定容至 100 mL |
表1:10%中性缓冲福尔马林配方14。
| Karnovsky's 溶液(改良版15) | |
| 步骤 1 | 在 20 mL 蒸馏水中,60–70 °C 下 |
| 步骤 2 | 加入 0.8 g 多聚甲醛(得到 4% w/v),搅拌 |
| 步骤 3 | 加入 1–4 滴 40% NaOH,并搅拌至溶液变澄清 |
| 步骤 4 | 冷却后加入 30 mL 0.2 M 磷酸盐缓冲液 pH 7.2(表 3) |
| 步骤 5 | 用 0.1 M PB(pH 7.2)稀释 25% 戊二醛,以获得 1% 戊二醛(终体积:约 60 mL) |
| 步骤 6 | 将 1% 戊二醛(步骤 5)加入步骤 4 所得溶液中,定容至 100 mL 固定液 |
表2:Karnovsky溶液配方(改良版15)。
| 0.2 M 磷酸盐缓冲液 (PB) pH 7.2 | |
| 步骤 1 | 将 14.196 g 无水磷酸氢二钠 (Na2HPO4) 加入 400 mL 蒸馏水中 |
| 步骤 2 | 加入 13.8 g 一水合磷酸二氢钠 (NaH2PO4·H2O) |
| 步骤 3 | 搅拌至溶液澄清 |
| 步骤 4 | 用蒸馏水定容至 500 mL |
| 步骤 5 | 调节 pH 至 7.2 |
| 步骤 6 | 配制 0.1 M PB 时,按 1:1 比例稀释 |
表3:0.2 M 磷酸盐缓冲液配方。
| 3% 戊二醛 0.2 M 卡可基酸钠缓冲液(改良法16) | |
| 步骤 1 | 0.2 M 卡可基酸钠缓冲液:将 4.28 g 三水合卡可基酸钠加入 100 mL 蒸馏水中 |
| 步骤 2 | 调节 pH 至 7.2 |
| 步骤 3 | 在 25 mL 步骤 2 的溶液(0.2 M 卡可基酸钠缓冲液,pH 7.2)中加入 12 mL 25% 戊二醛 |
| 步骤 4 | 用蒸馏水定容至 100 mL |
表4:3% 戊二醛 0.2 M 二甲胂酸钠缓冲液配方(改编自16)。
2. 固定与非固定材料中器官的表面分析
- 为分析器官中的表生菌丝,特别是地下器官以及与枯枝落叶接触的器官,应在解剖显微镜(立体显微镜)下观察固定或新鲜的样品,放大倍数为7.5倍或更高,具体取决于所分析的样品。
- 将样品浸没在固定液、70%乙醇(若储存在其中)或自来水(新鲜样品)中进行观察。避免解剖显微镜的直射光线,因其可能导致样品干燥和损伤。
- 在样品中寻找感兴趣的区域,以表生菌丝和根状菌索为指引。选择含有表生根状菌索的样品,因其可进行切片,以观察根和茎皮层细胞内的菌套和菌丝圈。
- 选定样品后,若样品尚未固定,则继续执行步骤1.6和1.9。如需要,可在不固定的情况下使用光学显微镜对新鲜样品进行拍照,方法见第3节所述。
- 使用与立体显微镜连接的相机采集器官表面、根状菌索及其他观察结构的图像。在此类情况下,应选择合适的背景颜色以与样品形成良好对比,并尽可能选择表面较光滑的背景材料(例如纸张)。
3. 植物器官的徒手切片
注意:植物器官的手工切片可能具有挑战性,尤其是对于微小且薄的结构。然而,在某些情况下,与薄切片相比,这些组织切片能够更清晰地显示菌丝及其他特征。
- 使用锋利的刀片对新鲜或固定的样品进行切片,尽可能切薄,并立即放入盛有水(若为新鲜样品)或70%乙醇(若为固定样品)的小培养皿中。用小号画笔操作切片,避免损伤。
- 为便于切取较难处理的材料(例如小型、薄而柔韧的器官),可将样品包裹于支撑结构内,如聚苯乙烯或Cecropia叶柄。雕刻支撑材料以适配样品,并对样品与支撑物整体进行薄切片。
- 按第6节所述方法对样品进行染色和封片。
4. 植物样品的树脂包埋与切片
- 根据样本的大小和组成,将保存在70%乙醇中的样本进一步在80%、96%以及两次100%乙醇中脱水,每次处理时间为30分钟至2小时。
- 按照制造商说明使用甲基丙烯酸乙二醇酯(GMA)树脂试剂盒。更多注意事项参见Gerrits和Horobin(1996)18。随后进行渗透和包埋操作。
警告:GMA树脂具有毒性,可能引起过敏反应以及对皮肤、眼睛和黏膜的刺激。应在通风橱中使用相关试剂,并佩戴手套。 - 根据样本大小选择聚乙烯包埋模具(例如,较大的样本使用13 mm × 19 mm × 5 mm,较小的样本使用6 mm × 8 mm × 5 mm)。注意样本在模具内的理想方向,可用细针辅助定位。
- 将样本静置以进行聚合,最好在室温下,直至完全固化。硬化过程通常需要数小时,但建议在次日脱模。聚合完成后,小心地将树脂块从模具中分离,并尽快进行后续操作,以避免树脂块弯曲。
- 打磨待粘附的树脂块表面,使其形成一个平整的面。使用中等黏度的液态氰基丙烯酸酯胶水将树脂块粘附到木制立方体上(推荐尺寸为2 cm × 2 cm × 3 cm)(见材料表)。确保树脂块完全固定,以免影响切片质量。
- 按以下方法在旋转式切片机中进行切片。
警告:切片机刀片非常锋利,可能造成伤害。操作时必须严格遵守所有安全规程。在接近刀片(例如更换样本块或润湿树脂)前,务必锁定粗调手轮并安装刀片安全护罩。一次性刀片应存放在专用容器中。更换刀片时需格外小心。
注意:可使用不同类型的刀片(如一次性或固定式;玻璃或钢制)对GMA树脂进行切片18。切片质量取决于刀片的锋利程度。确保刀片安装牢固且无松动。为获得更好的切片效果,可能需要定期更换一次性刀片。- 将木制立方体牢固地固定在样本夹持器上。通过调节定向螺丝调整切片方向,并利用刀片倾斜装置设定合适的刀角。选择切片厚度:修片时使用较厚设置,目标切片时使用较薄设置,因为较薄的GMA切片更易于贴附在载玻片上;建议植物组织切片厚度为5–8 µm。
- 开始前,如有必要,降低室温,因较高温度会降低切片质量。准备以下切片所需物品:盛有蒸馏水的烧杯、加热板、毛笔(至少两支)、尖头镊子、巴斯德移液管、载玻片、滤纸(或纸巾)以及铅笔(用于标记正在切片的样本)。
- 将加热板调节至50 °C,并将烧杯置于其上。注意加热板不同区域的温差(通常中心区域比边缘更热;建议将水加热于中心位置)。
- 取一张载玻片,用铅笔标记识别信息,然后用移液管将温热的蒸馏水均匀覆盖整个载玻片表面。如有需要,可使用溶液(如洗涤剂水溶液或70%乙醇)破坏水与玻璃之间的表面张力,使水均匀铺展。某些类型的载玻片需预先用70%乙醇清洗,以确保切片良好附着。
- 开始切片前,先逐步推进树脂块前端接近刀片。切勿在未推进样本块的情况下尝试切片,否则可能损坏设备或样本块。如有需要,可使用较厚设置(10 µm及以上)进行修块。
- 当接近理想切片位置时,用手轮进行稳定的一次性推进,一次性完成切片。注意观察树脂的湿润状态。切片过程中,若切片出现卷曲,可用蘸有蒸馏水的毛笔定期润湿被切割的树脂块表面。用纸巾吸除多余水分。
- 用尖头镊子将获得的切片转移至载玻片的水面上。GMA树脂遇水会延展。如有需要,可用毛笔轻轻展开并拉伸切片。用另一支毛笔持续清除刀片上的树脂残渣。切勿混用毛笔,以免刀片被润湿。
- 在载玻片上排列好所有目标切片后,擦干载玻片底面,并将其置于加热板上方。用滤纸轻轻吸除载玻片表面多余水分(可选)。待水分蒸发后,切片将牢固附着于载玻片上。切勿长时间放置,以防高温损伤切片。
- 将载玻片存放在玻片盒中,避免灰尘和阳光直射,用于后续染色及其他处理。载玻片可保存数年。
5. 植物样品的冷冻及使用冷冻切片机切片
注意:冷冻切片生物组织的关键在于减少样品冷冻过程中因冰晶形成而造成的损伤。通常通过灌注化学惰性溶液(如甘油或蔗糖)来进行冷冻保护19,20。
- 在样品切片前一天,执行以下步骤。
- 将 100 mL 的 0.2 M PB(表 3)加入 100 mL 蒸馏水中稀释,得到 200 mL 的 0.1 M PB。用 0.1 M PB 配制 10%、20% 和 30% 的蔗糖溶液(例如,配制 10% 溶液时,将 2 g 蔗糖加入 20 mL 缓冲液中)。
- 对于新鲜样品,用 0.1 M PB 洗涤 30 分钟;对于固定液中的样品,用配制固定液所用的相同缓冲液洗涤 30 分钟;对于保存在 70% 乙醇中的样品,依次用 50% 和 30% 乙醇进行水化,并在每种溶液中用 0.1 M PB 洗涤 1 小时。
- 将样品在 10% 蔗糖溶液中孵育 2 小时,随后在 20% 蔗糖溶液中孵育 2 小时,再在 30% 蔗糖溶液中孵育 2 小时,均在室温下进行。之后,在 4 °C 下于 30% 蔗糖溶液中过夜孵育(或至少孵育 3 小时;最长不超过 48 小时)。
- 在切片当天,用 0.1 M PB 配制 40% 和 50% 的蔗糖溶液;蔗糖溶液不可提前超过 12 小时配制。在 4 °C 下,每种浓度的蔗糖溶液中各孵育 2 小时。
- 用于包埋时,在小型模具中加入一层 OCT 包埋剂(最佳切割温度介质,用于样品的包埋与冷冻),并在 -20 °C 下冷冻。模具可使用常规组织学模具,但为便于脱模,也可使用小立方体作为框架并用胶带固定纸片或锡箔自制模具。
- 当模具中的 OCT 包埋剂底层完全冻结后,在冷冻切片机腔室(约 -27 °C)内操作。将经 50% 蔗糖溶液孵育的样品按预定切片方向放入模具中。通常立方体块的上表面更适合作为切片面。在模具上标记样品位置,以便后续修整包埋块时能准确定位并保持正确的方向。
- 用 OCT 包埋剂完全包裹样品,并排除所有接触样品的气泡。在 -20 °C 下冷冻。待包埋块完全冻结后,将其放入冷冻切片机腔室(约 -27 °C)。仅在使用前脱模,并注意观察标记以确认样品在包埋块内的位置。
- 由于 OCT 包埋剂易于用刀片切割,因此在将包埋块固定到夹头前应适当修整。在冷冻切片机的夹头上加少量 OCT 包埋剂,然后将包埋块固定,使其上表面朝向切片方向。面积较小的切面通常可获得更好的切片效果。等待包埋块牢固附着于夹头后,再进行测试,确认无误后开始切片。
- 将夹头牢固安装在夹头座上。通过调节定向螺钉调整切片方向,通过刀具倾斜调节装置调整刀片角度,并设定切片厚度。与常规树脂切片相比,本方法可切得更厚的切片。成功获得的切片厚度范围为 5–20 µm,其中较厚的切片更容易制备(卷曲更少,结构损伤更小)。
- 将冻结包埋块的切面推进至刀片边缘。切片前必须完成此步骤,否则包埋块可能从夹头上脱落或受损。如有必要,可使用较大切片厚度(10 µm 及以上)对包埋块进行修整。
- 当接近理想切面时,将防卷板(即能保持切片平整的透明板)置于刀片上方,并用手轮进行一次稳定的单向运动,使切片一次性完成。若防卷板需要调节(通常可相对于刀片进行调节)或刀片上有碎屑,则可能导致切片卷曲。应持续使用毛刷清洁刀片,以清除碎屑。
- 使用特殊载玻片以利于切片附着,例如硅烷化载玻片(市售或用丙酮中含 2% 氨基烷基硅烷溶液制备21),或用含 500 µg/mL 多聚-L-赖氨酸的蒸馏水溶液制备的载玻片21,或含 0.2% 明胶的载玻片(详见21)。将载玻片保持在室温下。
- 为使切片牢固附着于载玻片,抬起防卷板后迅速将载玻片接触切片。由于载玻片处于室温,切片会立即融化并粘附于载玻片上。注意将载玻片的处理面朝向切片,切片可能位于刀片上方或防卷板内侧。为避免切片卷曲,应在抬起防卷板后迅速完成此操作,并注意不要扭曲切片。
- 若需在同一张载玻片上添加新的切片,可将载玻片置于冷冻切片机腔室外(室温下)。待所有目标切片均附着于载玻片后,将其存放于冷冻切片机腔室内或冷冻柜中(-20 °C 或更低温度)。避免载玻片暴露于潮湿环境。应将载玻片保存在载玻片盒中,并用铅笔标记识别。
注:载玻片和 OCT 包埋块可在 -20 °C 下保存,但不宜过久。为获得最佳效果,建议在数天内使用。
6. 植物切片和内生菌的光学显微镜染色
注意:可用于植物切片的染色剂种类繁多。对内生真菌与植物组织进行差异染色具有挑战性。尽管并非染色方法,第7节中介绍了一种标记真菌结构的技术(使用麦胚凝集素偶联物进行荧光标记)。徒手切片(见第3节)、树脂切片(第4节)和冷冻切片(第5节)均可进行染色,但基于苯酚和酒精的染色剂在这些样本上应用较为困难,因为GMA树脂和OCT包埋剂在此类情况下容易从载玻片上脱落。
- 使用以下一种或多种常规染色方法对植物样品进行染色。
- 甲苯胺蓝 O22,23,这是一种广泛用于植物切片常规染色的方法。根据物种和组织类型,用 0.1 M 磷酸盐缓冲液(pH 6.8)或 0.09 M 柠檬酸盐缓冲液(pH 4.5–4.8)配制 0.05% 的甲苯胺蓝 O 溶液。将 GMA 树脂切片置于载玻片染色缸中,或在少量载玻片上滴加染液,孵育 2–10 分钟。孵育后用蒸馏水或缓冲液小心清洗,然后用蒸馏水封片或将载玻片在加热板上烘干,以制备永久切片,具体操作见步骤 6.3。
- 卢戈氏碘试剂2可用于检测淀粉的存在。用蒸馏水配制含 5% 碘(I2)和 10% 碘化钾(KI)的溶液。在载玻片上滴加少量染液,染色 2 分钟,然后用蒸馏水清洗。该组织化学检测通常用于临时切片。
- 苏丹 III、IV 和苏丹黑 B24,25可用于染色不同类型的脂质。将 0.3% 苏丹(III、IV 或黑 B)溶于 70% 乙醇中,加热至沸腾后冷却。取上清液,过滤后置于密闭的培养皿中孵育切片 15–30 分钟。用 70% 乙醇和蒸馏水小心清洗切片。用蒸馏水封片(通常仅用于临时切片)。
注意:由于苏丹染料以乙醇为溶剂,因此更适用于徒手切片。对 GMA 树脂切片进行染色时需格外小心,因其通常容易从载玻片上脱落。
- 对于临时切片,将切片置于水或甘油中封片后立即观察。可用指甲油密封盖玻片以延长保存时间。
- 对于永久切片,使用合成树脂(例如快速封片剂,参见 材料表)进行封片。滴加数滴封片剂(可略多于盖玻片面积),小心盖上盖玻片以避免产生气泡,并用晾衣夹将载玻片与盖玻片压紧直至完全干燥。用刀片去除干燥后多余的封片剂。
7. 荧光及共聚焦显微镜中应用荧光素标记的小麦胚芽凝集素
注意:该方法可应用于徒手切片(见第3节)、树脂切片(见第4节)和冷冻切片(见第5节)。与树脂切片相比,冷冻切片可提供较厚的样品,因此适用于共聚焦显微镜观察,但其厚度不及徒手切片。荧光素标记的小麦胚芽凝集素(WGA,参见材料表)可用于荧光显微镜下真菌的成像26。共聚焦显微镜并非必需,但其可提供植物结构清晰的三维图像27。
- 配制0.2 mg/mL WGA-荧光染料偶联物的0.1 M PB溶液28 (pH 7.2,参见步骤 5.1.1 和 表3). 配制1% 荧光增白剂(Calcofluor White)溶于0.1 M 磷酸缓冲液(PB,pH 7.2)的溶液。这些溶液应现配少量使用,因切片将直接与其孵育。
- 将玻璃载玻片上的切片在 WGA-荧光染料结合物溶液中孵育 30 分钟29,使用足量液体覆盖切片,然后在0.1 M PB中洗涤。
- 将切片置于calcofluor溶液中孵育,使用足量溶液作为封片介质。在观察期间可保持该溶液状态。
- 将盖玻片置于载玻片上,使用共聚焦显微镜或荧光显微镜观察,选用以下滤光片:TC/GFP(激发波长:470-440,发射波长:525-550,用于检测WGA-荧光染料标记的) 材料清单 - 真菌细胞壁在此滤光片下呈绿色荧光29DAPI(激发:358,发射:463,用于Calcofluor White)30.
注意:可以使用共聚焦显微镜的Z系列功能获取三维图像27.
8. 植物器官的扫描电子显微镜观察
- 在固定样品、进行脱水并储存在70%乙醇中(第1节)后,如有需要,可对样品进行切割以暴露扫描电镜(SEM)分析所需的表面(例如内部组织、卵巢结构)。应使用锋利且全新的剃刀刀片,单向切割,避免在SEM下出现切割区域损伤的假象。如有必要,可借助体视显微镜挑选样品,并根据金属样品台的可用空间确定样品尺寸。
- 使用乙醇系列对样品进行 SEM 脱水处理:80%、96% 和 2 次无水乙醇(≥99.8%)。小而精细的样品在每个浓度中保持 30 分钟,较大且致密的样品保持 1 小时。
- 使用滤纸折叠成小信封以整理样本,便于后续步骤操作;较大的样本可无需使用信封。用铅笔在信封上标注字母或数字以进行标识,并记录每个信封中所有样本的日志。将样本保存在无水乙醇中,但不宜长期存放,应尽快进行8.4步骤。
- 进行临界点(CP)干燥。按照标准操作程序运行临界点干燥仪。将样品置于压力腔内的无水乙醇(中间流体)中。在CO₂达到临界点后,逐步用乙醇置换并完成干燥过程。2 临界点(31 °C,7.3 × 106 Pa)中间液体溶解于过渡液体(液态二氧化碳)中,样品得以干燥31.
- CP 干燥后,应尽快将样品储存于干燥容器中,例如含有硅胶的密封烧瓶。若样品重新吸收空气中的湿气,可能导致其破坏31.
- 使用金属样品台安装样品。安装前,戴上手套操作样品台,将其浸入丙酮中5分钟以去除任何油脂,并使其自然晾干。使用导电双面碳胶带将样品固定在样品台上,并借助体视显微镜辅助定位样品,需注意扫描电镜图像仅能提供俯视视角。
- 使用尖头镊子操作样品时需小心,因为镊子接触的样品部位通常会受损,应尽量触碰远离感兴趣区域的部位(例如与胶带接触的区域)。将带有样品的样品台置于含硅胶的密封培养皿中保存。尽快进行步骤8.8。
- 使用溅射镀膜仪 在惰性气体(通常是氩气)的低压环境中,向样品表面沉积一层金属(通常为金或铂)31使用溅射镀膜仪时,请遵循标准操作程序。镀膜厚度取决于样品的表面形貌,通常在15–40 nm之间。32.
- 将包被好的载片置于含有硅胶的密封培养皿中,只要硅胶仍具有吸湿能力,样品可在此条件下保存数周。使用扫描电子显微镜对样品进行分析。该样品 在真空中 受到电子束轰击后,由此相互作用产生的信号被解析为图像31有关扫描电子显微镜的操作细节,请参阅 Jeffree 和 Read(1991)31 以及 Bozzola 和 Russell(1999)32.
- 重复使用探头时,需先撕下胶带,再用钢丝绒擦拭探头,随后用自来水冲洗,浸入无水乙醇中,充分干燥以防止构成金属发生氧化。
9. 透射电子显微镜
- 用1.7和1.10步骤所述的戊二醛-卡可基酸盐缓冲液对样品进行前固定。前固定12–24小时后,用0.2 M卡可基酸盐缓冲液(pH 7.25)洗涤样品3次,每次10分钟。用1%四氧化锇(OsO₄)进行后固定4) 置于 0.2 M 卡可基酸缓冲液中,室温避光固定 12 小时。用蒸馏水洗涤 3 次,每次 5 分钟。
注意:二甲胂酸盐和四氧化锇具有高毒性,切勿吸入。应在通风橱中使用,并遵循各自的安全数据表。 - 用30%、50%、70%和96%乙醇依次脱水,每个浓度处理2次,每次10分钟。然后用无水乙醇脱水3次,每次15分钟。
- 用亲水性丙烯酸树脂浸透样品(参见 材料清单),先用1:1树脂+无水乙醇混合液浸透1次,再用纯树脂浸透3次,每次8–12小时。将样品置于明胶胶囊中进行聚合。 60 °C 直至完全凝固(最长12小时)17).
- 仔细评估树脂块内样品的朝向;用剃刀切去树脂块的顶部,形成一个锥形,使样品集中在切片区。获取半薄切片(250–500 nm)。33 使用金刚石刀在超薄切片机中切片,并将切片置于载玻片上的数滴水中。
- 将载玻片置于加热板上保持 60 °C用甲苯胺蓝 O 染色切片,步骤同 6.1.1,并让染色完全干燥。用自来水小心冲洗。通过绘制四个象限评估所得切片,并选择最适合分析的象限。
- 修整包埋块,使锥形结构将选定的象限集中于包埋块的上表面。制备超薄切片(50–100 nm)。33,34厚度根据切片的干涉颜色进行评估:约70 nm的切片呈银金色,约100 nm的呈金色,约200 nm的呈蓝色34.
- 使用铜网从水中捞取超薄切片,并按照下述方法用醋酸铀和柠檬酸铅进行对比染色。
- 配制柠檬酸铅溶液(表5)并将最终溶液分装至微量离心管中,每管1 mL,冻存备用,使用前即刻解冻。
- 制备醋酸铀酰溶液:将0.625 g醋酸铀酰 [UO₂(CH₃COO)₂] 溶于12.5 mL双蒸水中,搅拌至完全溶解。2(CH3COO2] 加入 25 mL 新近煮沸并冷却的蒸馏水中。置于暗色容器中,于冰箱内保存。
警告:硝酸铅若被摄入具有毒性。1 N 氢氧化钠具有强腐蚀性。醋酸铀酰具有放射性和毒性,严禁摄入、吸入或与皮肤接触。 - 染色时,将两种已准备好的试剂分别装入带有滤器装置的3 mL注射器中(0.22 µm 孔,参见 材料表)。准备一个倒置的培养皿,并在其上覆盖一层密封热塑性薄膜(参见 材料表)并置于一个较大的培养皿内,边缘放置氢氧化钠颗粒以吸收二氧化碳232 (参见 图2).
- 弃去第一滴,然后在每张染色的载网上方滴加一滴醋酸铀,并添加三滴蒸馏水。对柠檬酸铅进行同样操作,并再添加三滴蒸馏水。
- 将载网(不透光面朝下,即切片所在面)在醋酸铀酰中孵育30分钟(时间可调)。在蒸馏水滴中漂洗3次,每次用滤纸在载网亮面轻轻吸干。随后在柠檬酸铅滴中重复孵育(30分钟)并进行漂洗。
- 至少 4 小时后,在透射电子显微镜下分析载网。在此显微镜中,一束电子穿过切片 在真空中 图像被投射到荧光屏上。有关透射电子显微镜操作的详细信息,请参阅 Bozzola 和 Russell(1999)32.
| 柠檬酸铅溶液(用于透射电镜对比染色) | |
| 步骤 1 | 用锡箔包裹烧杯 |
| 步骤 2 | 将 0.266 g 硝酸铅 [Pb(NO3)2] 溶于 6 mL 新近煮沸并冷却的蒸馏水中 |
| 步骤 3 | 振荡 2 分钟 |
| 步骤 4 | 加入 0.352 g 柠檬酸三钠 [Na3(C6H5O7).2H2O](溶液应呈现乳白色) |
| 步骤 5 | 振荡 15 分钟,用锡箔密封烧杯,并将溶液转移至 10 mL 烧杯中 |
| 步骤 6 | 加入 1.6 mL 1N NaOH 和 2.4 mL 蒸馏水(溶液应呈半透明状) |
| 步骤 7 | 如有必要,将 pH 值调节至接近 12 |
表5:柠檬酸铅溶液配方。
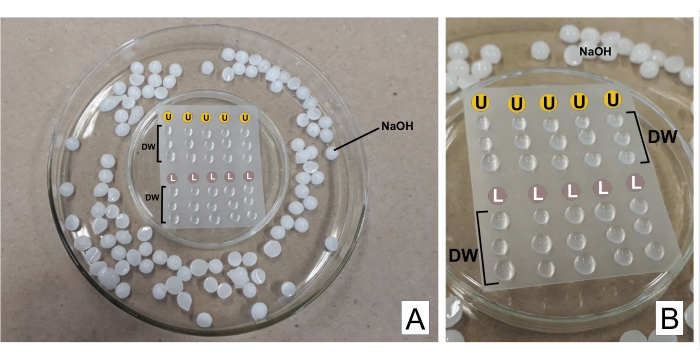
图2:使用柠檬酸铅和醋酸铀酰溶液的对比染色方案。(A)准备培养皿,其中一个倒置(位于中央),其上覆盖热塑性薄膜,以便可在其上方滴加液体,并置于一个较大的培养皿内。在中央培养皿周围放置NaOH颗粒。(B)在标有字母U的圆圈内滴加醋酸铀酰溶液,标有L的圆圈内滴加柠檬酸铅溶液。DW表示蒸馏水液滴。网格膜按列依次染色,因此可同时对五个网格膜进行染色,如图所示。请点击此处查看该图的放大版本。
10. 兰花种子的共生萌发
- 确保用于种子共生萌发的所有溶液和材料均为无菌状态,以避免污染。首先在121 °C条件下高压灭菌20分钟。种子共生萌发的步骤总结于图3中。
- 通过将果实和种子分别浸入含2%有效氯的次氯酸钠溶液中进行表面消毒,果实处理10–15分钟,种子处理7–10分钟,具体时间取决于种皮的硬度和厚度9。细小脆弱的种子可浸入1:1稀释的次氯酸钠溶液中。随后,用高压灭菌的蒸馏水清洗3次,以彻底去除残留的次氯酸钠溶液。
- 用丝网滤布过滤回收种子,并 直接用于萌发试验(推荐做法)。如有必要,可将种子置于装有硅胶的玻璃瓶内的滤纸信封中,在4 °C下密封保存,并用保鲜膜封口。将最后一次清洗的少量洗涤液转移至马铃薯葡萄糖琼脂培养基(PDA,39 g/L)中,以评估清洗过程的有效性。
- 在将种子接种于培养基之前,可通过氯化三苯基四氮唑(TTC)染色法评估其活力(可选),方法如下所述35。
- 取约10 mg种子置于微量离心管中,加入1 mL蒸馏水中含10%蔗糖的溶液,在光照条件下室温(约25 °C)孵育24小时。
- 用移液器吸除蔗糖溶液,加入1 mL蒸馏水中含1%四氮唑溶液(氯化三苯基四氮唑),在避光条件下于40 °C金属浴中孵育24小时。
- 用移液器吸除四氮唑溶液,用蒸馏水清洗种子2次或直至溶液完全去除,彻底吸除所有液体。如有需要,种子可在分析前于-20 °C冰箱中保存最多一周(同步骤10.3)。
- 将种子重悬于蒸馏水中,在光学显微镜下观察。具活力的种子呈现由浅红至深红色,无活力种子则保持其原有颜色。
- 采用以下改良的9操作流程进行兰科种子的共生萌发。
- 将种子接种于已高压灭菌的滤纸圆片(直径1–2 cm)上,置于含燕麦琼脂培养基(OMA,2.5 g/L燕麦片和7 g/L琼脂,pH 6)的培养皿中进行孵育。
- 在培养皿中央接种一块含有目标分离真菌菌丝的培养基片段(约1 cm2)。用保鲜膜密封培养皿,在黑暗条件下于约25 °C或更适宜真菌生长的室温下进行培养。
- 准备若干不含真菌接种的种子培养皿,作为萌发试验的阴性对照。
- 每周定期观察萌发结果,收集定性和定量数据,并对原球茎及幼苗进行拍照记录。应使用体视显微镜对种子和原球茎进行观察,以更准确地评估萌发情况。采用透射光源照明,因其可提供更高的对比度,便于更清晰地区分真菌菌丝与原球茎。
- 采集处于不同发育阶段的样品,固定后用于解剖学分析(第1节)。应用前述所有图像分析方法,研究种子、原球茎和幼苗在萌发过程中存在的内生真菌(光学显微镜——第4、5、6节;共聚焦与荧光显微镜——第7节;扫描电镜与透射电镜——第8、9节)。
- 根据表6的阶段分类标准生成定量结果。该分类描述了菌异养型兰科植物种子的典型发育过程。每周收集数据,并记录各发育阶段首次出现的日期。
- 此外,收集萌发率和萌发速度的定量数据。至少统计100粒种子,或定义若干计数视野35。每培养皿划定三个或以上计数区域,每个区域为固定且标准化面积的区域,并每周进行评估。根据生长指数(GI)公式计算所收集的数据:
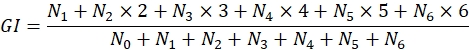
其中N0为0阶段计数的种子数,N1代表1阶段,依此类推至6阶段(记为N6)36。
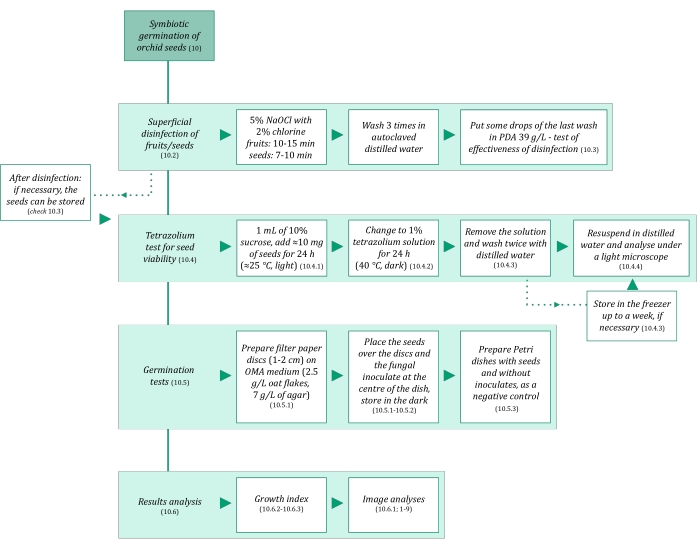
图3:种子共生萌发方法的示意图总结。 该示意图展示了实验方案中的详细步骤。缩写:OMA = 燕麦琼脂,PDA = 马铃薯葡萄糖琼脂。 请点击此处查看此图的放大版本。
| 萌发阶段 | 描述 |
| 0 | 未萌发 |
| 1 | 胚膨胀 |
| 2 | 种皮破裂 |
| 3 | 吸水毛发育 |
| 4 | 茎突起发育 |
| 5 | 保护鳞片(苞片)发育 |
| 6 | 初生根发育 |
表6:用于萌发试验周期性分析的原球茎发育阶段描述。 修改自Otero等36所描述的阶段。
访问受限。请登录或开始试用以查看此内容。
结果
在完成植物组织固定的必要步骤后,细胞结构在形态、体积以及细胞组分和组织的空间排列方面,均尽可能接近其活体状态16观察 化学固定后样本中此类性状图4). 图4C-F 在光学显微镜下能够充分代表固定良好的样本。按照所述固定步骤操作,并熟悉样本的结构,有助于分析固定效果。

图4:中国台湾MH兰科植物 Wullschlaegelia aphylla (Sw.) Rchb.f. 丝状根的表面观察与切片
访问受限。请登录或开始试用以查看此内容。
讨论
植物解剖学和形态学中的图像分析具有重要意义,有助于实现研究目标,并加深对菌异养植物与其不可或缺的内生真菌之间关系的理解,这一点已在对地下器官6,40、种子共生萌发的结构分析39以及地上和繁殖结构的研究中得到证实41。尽管结构植物学在过去十年中逐渐失去其在植物科学其他领域面前的声望与地位1,但在回答科学问题、揭示与植物发育、生态、生理及进化相关的新颖特征和关键性状方面,仍具有突出作用。这些方法共同构成了植物结构研究的基础,涵盖了菌异养植物分析中的若干重要方面。
提供了采集菌根异养植物(MH植物)的关键信息,因为若不谨慎操作,其发达的地下器官可能受损且无法完整采集。在采集和保存地下结构时,必须考虑这些结构的显著适应性特征6以及它们与土壤中真菌的紧密联系,这些真菌可能与自养植物
访问受限。请登录或开始试用以查看此内容。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢FAEPEX和FAPESP(2015/26479-6)提供的经费支持。MPP感谢Capes为其硕士阶段研究提供的奖学金(项目编号88887.600591/2021-00)以及CNPq的支持。JLSM感谢CNPq提供的生产力研究资助(303664/2020-7)。作者还感谢LME(电子显微镜实验室——巴西坎皮纳斯州立大学生物研究所)、INFABiC(细胞生物学应用光子学国家科学与技术研究所——巴西坎皮纳斯州立大学)和LaBiVasc(血管生物学实验室——巴西坎皮纳斯州立大学生物研究所DBEF部门)提供的仪器使用权限和技术协助;感谢LAMEB(巴西南部联邦大学)及Eliana de Medeiros Oliveira(巴西南部联邦大学)在冷冻保护方案方面的贡献;感谢LME在透射电子显微镜(TEM)实验方案方面的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 丙酮 | Sigma-Aldrich | 179124 | (用于扫描电镜样品台固定) |
| 琼脂(AA) | Sigma-Aldrich | A1296 | (用于种子萌发试验) |
| Calcofluor White 染色剂 | Sigma-Aldrich | 18909 | 荧光染料(检测纤维素) |
| 柠檬酸缓冲液,0.09 M,pH 4.8 | Sigma-Aldrich | C2488 | (用于甲苯胺蓝O染色) |
| 导电双面碳胶带 | Fisher Scientific | 50-285-81 | (用于扫描电镜) |
| 共聚焦显微镜 | Zeiss | (任意型号) | |
| 铜网 | Sigma-Aldrich | G4776 | (用于透射电镜) |
| 临界点干燥仪 | Balzers | (任意型号) | |
| 冷冻切片机 | Leica Biosystems | (任意型号) | |
| 体视显微镜 | Leica Biosystems | (= 立体显微镜,任意型号) | |
| Entellan | Sigma-Aldrich | 107960 | 快速封片介质,用于显微镜观察 |
| 纯乙醇(≥99.5%) | Sigma-Aldrich | 459836 | (= 乙醇,用于脱水过程) |
| 甲醛溶液,37% | Sigma-Aldrich | 252549 | (用于NBF溶液配制) |
| 中性缓冲福尔马林溶液,10% | Sigma-Aldrich | HT501128 | 组织学组织固定剂 |
| 透射电镜用明胶胶囊 | Fisher Scientific | 50-248-71 | (用于透射电镜树脂聚合) |
| 明胶溶液,2% 水溶液(H2O) | Sigma-Aldrich | G1393 | (稀释后用于载玻片制备——OCT粘附) |
| 戊二醛溶液,25% | Sigma-Aldrich | G6257 | (用于Karnovsky’s溶液配制) |
| HistoResin | Leica Biosystems | 14702231731 | 乙二醇甲基丙烯酸甲酯(GMA)包埋试剂盒 |
| 碘 | Sigma-Aldrich | 207772 | (用于卢戈氏碘液配制) |
| 硝酸铅(II) | Sigma-Aldrich | 228621 | Pb(NO3)2(用于透射电镜反差染色) |
| 光学显微镜 | Olympus | (任意型号) | |
| LR White 丙烯酸树脂 | Sigma-Aldrich | L9774 | 亲水性丙烯酸树脂,用于透射电镜 |
| 卢戈氏碘液 | Sigma-Aldrich | 62650 | (用于染色) |
| 样品固定用金属样品台 | Rave Scientific | (用于扫描电镜,不同型号) | |
| 切片机 | Leica Biosystems | 手动旋转切片机或其它型号 | |
| 燕麦培养基(OMA) | Millipore | O3506 | (用于种子萌发试验) |
| OCT 化合物,Tissue-Tek | Sakura Finetek USA | 4583 | 冷冻组织包埋介质 |
| 四氧化锇 | Sigma-Aldrich | 201030 | OsO4(用于透射电镜后固定) |
| Parafilm M | Sigma-Aldrich | P7793 | 密封用热塑性薄膜 |
| 多聚甲醛 | Sigma-Aldrich | 158127 | (用于Karnovsky’s溶液配制) |
| 聚-L-赖氨酸溶液,0.1% 水溶液(H2O) | Sigma-Aldrich | P8920 | (用于载玻片制备——OCT粘附) |
| Poly-Prep 载玻片 | Sigma-Aldrich | P0425 | 聚-L-赖氨酸涂层载玻片 |
| 聚乙烯模具杯托盘 | Polysciences | 17177A-3 | (6×8×5 mm,用于GMA树脂包埋样品) |
| 聚乙烯模具杯托盘 | Polysciences | 17177C-3 | (13×19×5 mm,用于GMA树脂包埋样品) |
| 碘化钾 | Sigma-Aldrich | 221945 | (用于卢戈氏碘液配制) |
| 马铃薯葡萄糖琼脂(PDA) | Millipore | 70139 | (用于种子萌发试验) |
| 扫描电子显微镜 | Jeol | (任意型号) | |
| 硅烷[(3-氨基丙基)三乙氧基硅烷] | Sigma-Aldrich | A3648 | (用于载玻片制备——OCT粘附) |
| 硅烷处理载玻片 | Sigma-Aldrich | S4651 | 硅烷涂层玻璃载玻片 |
| 橙色颗粒硅胶 | Supelco | 10087 | (用于干燥过程) |
| 三水合二甲胂酸钠 | Sigma-Aldrich | C0250 | (用于戊二醛-二甲胂酸钠缓冲液) |
| 氢氧化钠 | Sigma-Aldrich | S5881 | NaOH(用于Karnovsky’s溶液配制及透射电镜反差染色) |
| 次氯酸钠溶液 | Sigma-Aldrich | 425044 | NaClO(用于种子表面消毒) |
| 无水磷酸氢二钠 | Sigma-Aldrich | 71640 | Na2HPO4(用于NBF溶液和磷酸缓冲液配制) |
| 一水合磷酸二氢钠 | Sigma-Aldrich | S9638 | NaH2PO4·H2O(用于NBF和磷酸缓冲液) |
| 溅射镀膜仪 | Balzers | (任意型号) | |
| 蔗糖 | Sigma-Aldrich | S0389 | C12H22O11(用于冷冻保护和萌发试验) |
| 苏丹III | Sigma-Aldrich | S4131 | (用于染色) |
| 苏丹IV | Sigma-Aldrich | 198102 | (用于染色) |
| 苏丹黑B | Sigma-Aldrich | 199664 | (用于染色) |
| 注射器 | (3 mL,任意品牌,用于透射电镜反差染色) | ||
| 注射器滤器单元,Millex-GV 0.22 µm | Millipore | SLGV033R | PVDF材质,33 mm,γ射线灭菌(用于透射电镜反差染色) |
| Tek Bond 超级胶水 793 | Tek Bond Saint-Gobain | 78072720018 | 中等粘度液体氰基丙烯酸酯粘合剂 |
| 甲苯胺蓝O | Sigma-Aldrich | T3260 | (用于染色) |
| 透射电子显微镜 | Jeol | (任意型号) | |
| 氯化三苯基四氮唑 | Sigma-Aldrich | T8877 | (用于种子萌发的四氮唑试验) |
| 二水合柠檬酸三钠 | Sigma-Aldrich | S1804 | Na3(C6H5O7)·2H2O(用于透射电镜反差染色) |
| 超薄切片机 | Leica Biosystems | (任意型号) | |
| 醋酸铀酰 | Fisher Scientific | 18-607-645 | UO2(CH3COO)2(用于透射电镜反差染色) |
| 真空泵 | (任意型号) | ||
| 麦胚凝集素,Alexa Fluor 488 标记 | ThermoFisher Scientific | W11261 | 荧光染料标记凝集素(可检测唾液酸和N-乙酰氨基葡萄糖残基) |
参考文献
- Evert, R. F. Esau’s Plant Anatomy: Meristems, Cells, and Tissues of the Plant Body: Their Structure, Function, and Development. , John Wiley & Sons. Hoboken, NJ, USA. (2006).
- Yeung, E. C. T., Stasolla, C., Sumner, M. J., Huang, B. Q. Plant Microtechniques and Protocols. , Springer International Publishing. Cham, Switzerland. (2015).
- Sokoloff, D. D., Jura-Morawiec, J., Zoric, L., Fay, M. F. Plant anatomy: at the heart of modern botany. Botanical Journal of the Linnean Society. 195 (3), 249-253 (2021).
- Leake, J. R. The biology of myco-heterotrophic (‘saprophytic’) plants. New Phytologist. 127 (2), 171-216 (1994).
- Bidartondo, M. I. The evolutionary ecology of myco-heterotrophy. New Phytologist. 167 (2), 335-352 (2005).
- Imhof, S., Massicotte, H. B., Melville, L. H., Peterson, R. L. Subterranean morphology and mycorrhizal structures. Mycoheterotrophy. , Springer. New York, NY. 157-214 (2013).
- Rasmussen, H. N., Rasmussen, F. N. Orchid mycorrhiza: implications of a mycophagous life style. Oikos. 118 (3), 334-345 (2009).
- Rasmussen, H. N., Dixon, K. W., Jersáková, J., Těšitelová, T. Germination and seedling establishment in orchids: a complex of requirements. Annals of Botany. 116 (3), 391-402 (2015).
- Zettler, L. W. Terrestrial orchid conservation by symbiotic seed germination: techniques and perspectives. Selbyana. 18 (2), 188-194 (1997).
- Stewart, S. L., Kane, M. E. Symbiotic seed germination and evidence for in vitro mycobiont specificity in Spiranthes brevilabris (Orchidaceae) and its implications for species-level conservation. In Vitro Cellular & Developmental Biology - Plant. 43 (3), 178-186 (2007).
- Zhao, D. -K., et al. Orchid reintroduction based on seed germination-promoting mycorrhizal fungi derived from protocorms or seedlings. Frontiers in Plant Science. 12, 701152(2021).
- Selosse, M. A., Roy, M. Green plants that feed on fungi: facts and questions about mixotrophy. Trends in Plant Science. 14 (2), 64-70 (2009).
- Merckx, V. S. F. T., Mennes, C. B., Peay, K. G., Geml, J. Evolution and diversification. Mycoheterotrophy: The Biology of Plants Living on Fungi. , Springer. New York, NY. 215-244 (2013).
- Boon, M. E., Drijver, J. Routine Cytological Staining Techniques: Theoretical Background and Practice. Macmillan International Higher Education. , Hampshire, UK. (1986).
- Karnovsky, M. A formaldehyde-glutaraldehyde fixative of high osmolality for use in electron microscopy. Journal of Cell Biology. 27 (2), 137-138 (1964).
- Hayat, M. Fixation for Electron Microscopy. , Academic Press. New York, USA. (1981).
- Roland, J. C., Vian, B. General preparation and staining of thin sections. Electron Microscopy of Plant Cells. 1, 675(1991).
- Gerrits, P. O., Horobin, R. W. Glycol methacrylate embedding for light microscopy: basic principles and trouble-shooting. Journal of Histotechnology. 19 (4), 297-311 (1996).
- Zhang, Z., Niu, L., Chen, X., Xu, X., Ru, Z. Improvement of plant cryosection. Frontiers in Biology. 7 (4), 374-377 (2012).
- BeneŠ, K. On the media improving freeze-sectioning of plant material. Biologia Plantarum. 15 (1), 50-56 (1973).
- Fischer, A. H., Jacobson, K. A., Rose, J., Zeller, R. Preparation of slides and coverslips for microscopy. Cold Spring Harbor Protocols. 2008 (5), (2008).
- Sakai, W. S. Simple method for differential staining of paraffin embedded plant material using toluidine blue O. Stain Technology. 48 (5), 247-249 (1973).
- O’Brien, T., Feder, N., McCully, M. E. Polychromatic staining of plant cell walls by toluidine blue O. Protoplasma. 59 (2), 368-373 (1964).
- Ventrella, M. C., Almeida, A. L., Nery, L. A., Coelho, V. P. deM. Métodos Histoquímicos Aplicados às Sementes. Universidade Federal de Viçosa. , Viçosa, Brazil. (2013).
- Pearse, A. G. E. Histochemistry, Theoretical and Applied. , J & A Churchill. London, UK. (1960).
- Andrade-Linares, D. R., Franken, P. Fungal endophytes in plant roots: taxonomy, colonization patterns, and functions. Symbiotic Endophytes. , Springer. Berlin. 311-334 (2013).
- Wymer, C. L., Beven, A. F., Boudonck, K., Lloyd, C. W. Confocal microscopy of plant cells. Confocal Microscopy Methods and Protocols. , Humana Press. Totowa. 103-130 (1999).
- Marques, J. P. R., Soares, M. K. M. Manual de Técnicas Aplicadas à Histopatologia Vegetal. FEALQ. , Piracicaba, Brazil. (2021).
- Navarro, B. L., Marques, J. P. R., Appezzato-da-Glória, B., Spósito, M. B. Histopathology of Phakopsora euvitis on Vitis vinifera. European Journal of Plant Pathology. 154 (4), 1185-1193 (2019).
- Marques, J. P. R., et al. Sugarcane cell wall-associated defense responses to infection by Sporisorium scitamineum. Frontiers in Plant Science. 9, 698(2018).
- Jeffree, C. E., Read, N. D. Ambient-and low-temperature scanning electron microscopy. Electron Microscopy of Plant Cells. , 313-413 (1991).
- Bozzola, J. J., Russell, L. D. Electron Microscopy: Principles and Techniques for Biologists. , Jones & Bartlett Learning. Sudbury, MA, USA. (1999).
- Murray, S. Basic transmission and scanning electron microscopy. Introduction to electron Microscopy for Biologists. , Academic Press. 3-18 (2008).
- Tanaka, M. Glossary of TEM terms. , Available from: https://www.jeol.co.jp/en/words/emterms/ (2021).
- Seaton, P. T., et al. Orchid seed and pollen: a toolkit for long-term storage, viability assessment and conservation. Orchid Propagation: From Laboratories to Greenhouses—Methods and Protocols. , Humana Press. New York, NY. 71-98 (2018).
- Otero, J. T., Ackerman, J. D., Bayman, P. Differences in mycorrhizal preferences between two tropical orchids. Molecular Ecology. 13 (8), 2393-2404 (2004).
- Koch, R. A., et al. Marasmioid rhizomorphs in bird nests: Species diversity, functional specificity, and new species from the tropics. Mycologia. 112 (6), 1086-1103 (2020).
- Webster, J., Weber, R. Introduction to Fungi. , Cambridge University Press. Cambridge, UK. (2007).
- Sisti, L. S., et al. The role of non-mycorrhizal fungi in germination of the mycoheterotrophic orchid Pogoniopsis schenckii Cogn. Frontiers in Plant Science. 10, 1589(2019).
- Martos, F., et al. Independent recruitment of saprotrophic fungi as mycorrhizal partners by tropical achlorophyllous orchids. New Phytologist. 184 (3), 668-681 (2009).
- Alves, M. F., et al. Reproductive development and genetic structure of the mycoheterotrophic orchid Pogoniopsis schenckii Cogn. BMC Plant Biology. 21 (1), 332(2021).
- Merckx, V. S. F. T. Mycoheterotrophy: an introduction. Mycoheterotrophy: The Biology of Plants Living on Fungi. , 1-17 (2013).
- Hall, J. L., Hawes, C. Electron Microscopy of Plant Cells. , Academic Press. Cambridge, UK. (1991).
访问受限。请登录或开始试用以查看此内容。
重印与许可
