本方案描述了从生物基质中提取非蛋白质氨基酸的方法 通过 三氯乙酸(TCA)蛋白沉淀及酸水解后,采用液相色谱-串联质谱法进行分析。
本文内容
摘要
摘要
非蛋白质氨基酸(NPAAs)是一类不参与遗传编码以翻译成蛋白质的氨基酸(AAs)。对NPAAs的分析可提供有关细胞摄取和/或功能、代谢途径以及潜在毒性的关键信息。β-甲氨基-L-丙氨酸(BMAA)是一种由多种藻类产生的神经毒性NPAA,与神经退行性疾病风险增加相关,因此引起了广泛的研究关注。氨基酸分析的提取方法多种多样,其中液相色谱-串联质谱法最为常用,该方法需先进行蛋白质沉淀,再对蛋白沉淀物进行酸水解。关于藻类中BMAA存在的研究结果存在矛盾,主要原因在于样本前处理/提取及分析方法未经验证。与其他大多数NPAAs类似,使用10%水溶液三氯乙酸(TCA)进行蛋白质沉淀,并用发烟盐酸(HCl)进行水解,是提取BMAA及其同分异构体氨基乙基甘氨酸(AEG)和2,4-二氨基丁酸(2,4-DAB)最合适的方法。本方案描述了一种经过验证的NPAA提取方法的具体步骤,该方法在科研和教学实验室中被广泛使用。
引言
氨基酸是一类化学化合物,至少含有一个氨基和一个羧基官能团。某些氨基酸还含有亚氨基,或除羧基以外的其他酸性官能团;另一些氨基酸的氨基则未连接在α-碳原子上1。目前已发现超过500种氨基酸2,其中22种被称为蛋白质氨基酸,用于核糖体蛋白质合成中的遗传编码3。这22种氨基酸可进一步分为必需氨基酸和非必需氨基酸。必需氨基酸对生物体正常功能至关重要,只能通过外部来源获取;非必需氨基酸则可在生物体内自行合成。将22种氨基酸划分为必需或非必需的分类因物种而异。其余所有氨基酸均为非蛋白质氨基酸(NPAAs),不参与蛋白质合成的编码过程。无论是蛋白质氨基酸还是非蛋白质氨基酸,均可在生物体内发挥信号传导作用,并作为代谢中间体4。由于其重要且多样的功能,氨基酸水平可反映生物体的生理状态、功能状况及代谢通路等信息。氨基酸进入多肽链主要有两种机制:核糖体蛋白质合成,利用上述22种氨基酸进行编码;以及非核糖体肽合成,该过程除使用蛋白质氨基酸外,还可利用部分NPAAs参与合成。某些NPAAs可模拟蛋白质氨基酸,可能导致其被错误地掺入肽链或蛋白质中。这种错误掺入会引起蛋白质错误折叠,进而产生有害效应5,例如非蛋白质氨基酸L-3,4-二羟基苯丙氨酸(L-DOPA)取代酪氨酸而被掺入,会对细胞功能和健康造成负面影响6,7。此外,NPAAs还可通过氨基酸残基的翻译后修饰(PTM)被引入蛋白质中。氨基酸残基可因多种原因发生修饰,包括改变肽或蛋白质的构象、稳定性及功能。当含有PTM的蛋白质或多肽发生水解时,这些被修饰的氨基酸残基即被释放为游离的NPAA形式8,9。
蓝藻、硅藻和甲藻产生的非蛋白质氨基酸β-甲氨基-L-丙氨酸(BMAA)10 是一种疑似神经毒素,被认为可能是肌萎缩侧索硬化/帕金森病-痴呆复合征(ALS-PDC)11,12、肌萎缩侧索硬化症以及阿尔茨海默病13等多种神经退行性疾病的重要致病因素。有研究提出,BMAA 会被错误地替代L-丝氨酸14或其他蛋白质氨基酸掺入多肽链中。BMAA 的错误掺入可能导致蛋白质错误折叠,从而在神经元中形成蛋白聚集体的沉积14。在过去十年中,人们对 BMAA 的关注显著增加。已发现来自淡水、海洋和半咸水环境的多种蓝藻均可产生 BMAA15,使其广泛分布于各类生态系统中16,17。此外,BMAA 已被证实可在食物链中发生生物放大作用,最终进入人类食物网18,19。鉴于 BMAA 可能带来的健康风险、目前对其毒性的认知不足以及毒性研究结果之间存在的不一致性,迫切需要持续推进相关研究,直至彻底明确 BMAA 的毒性机制或确认其对人体无害20,21。
生物样品中氨基酸的分析可分为四个主要步骤:样品制备、氨基酸衍生化、分离与检测,以及鉴定与定量。液相色谱-串联质谱法(LC-MS/MS)是首选的分析方法,因其能够实现对氨基酸的靶向性分离与可重复分析。
分析蓝藻及其他藻类样品的样品制备技术主要涉及提取游离态和蛋白质结合态氨基酸的方法。多年来,该类提取方法在基本流程上保持相对一致,通常包括通过脱溶剂使游离氨基酸与结合态氨基酸分离,随后进行蛋白质沉淀,并通过高温盐酸(HCl)水解释放结合态氨基酸22。该提取方式最初针对蛋白质氨基酸优化,后被用于非蛋白质氨基酸(NPAAs)的分析。然而,在同一种蓝藻中检测和定量BMAA及其异构体(图1)、氨基乙基甘氨酸(AEG)和2,4-二氨基丁酸(2,4-DAB)的研究结果在文献中存在不一致现象,可能的原因包括藻类生长条件不同和/或藻株差异导致BMAA产量不同甚至不产BMAA23。有观点认为,BMAA及其异构体检测与定量结果不一致更可能归因于未验证的实验方案、所用分析技术范围广泛以及已发表方法中实验细节描述不足16,24,从而导致实验室间数据不可重复。然而,Glover等25和Banack26近期已开发并验证了一种基于超高效液相色谱-串联质谱(UPLC-MS/MS)的分析技术,用于BMAA及其异构体的检测与定量,该方法符合国际分析化学家协会(AOAC)、美国药典(US Pharmacopeia)和美国食品药品监督管理局(FDA)对单实验室验证的要求。
这些验证实验主要关注BMAA及其异构体的分离与检测,未涉及样品制备方案中的不一致问题。Lage 等人27 比较了三种常用提取方法在蓝藻样品中定量BMAA及其异构体的性能 通过 LC-MS/MS:游离氨基酸的固相萃取(SPE)28,29一种涉及甲醇提取和丙酮沉淀的蛋白质沉淀方法30;以及最常用的BMAA提取方法,即用三氯乙酸(TCA)进行蛋白质沉淀31他们得出结论,三氯乙酸(TCA)蛋白沉淀法是最优方案,相较于其他提取方法,该方法在测试样品中获得了更高的BMAA浓度。该研究在蓝藻基质中验证了使用6-氨基喹啉基-N-羟基琥珀酰亚胺氨基甲酸酯(AQC)对BMAA进行衍生化的TCA提取法,为获得可靠且可重复的BMAA数据提供了 established 指导。TCA氨基酸提取是一种被广泛接受且常用的样品前处理技术,也可应用于其他基质。然而,需考虑氨基酸在水解过程中的稳定性,以防止其降解或氧化,这一问题可通过使用化学修饰剂和还原剂加以克服。32三氯乙酸(TCA)提取法被常规使用,并作为新进科研学生的基础培训内容。尽管该方案已有广泛报道,但通过可视化手段展示该方法的应用过程仍具有重要价值,有助于确保操作的正确性和一致性。
反相色谱法常用于分离氨基酸,但在分析前需要进行衍生化步骤。对诸如BMAA等氨基酸进行衍生化,有助于提高其在色谱柱上的保留能力,并可增强异构体之间的分辨效果。此外,衍生化还能增加分子质量,并改善质谱仪中的离子化效率。已有多种衍生化试剂被用于氨基酸的分析。 通过 LC-MS/MS,包括丙基氯甲酸酯(PCF)336-氨基喹啉基-N-羟基琥珀酰亚胺基氨基甲酸酯(AQC)27, 9-芴基甲氧羰酰氯(FMOC)34,以及丹磺酰氯(DC)35然而,目前唯一经过验证的分析BMAA的技术使用了PCF36 或 AQC24,26,37 作为其衍生化试剂。
本方案的重点是从蓝细菌基质中通过三氯乙酸(TCA)提取非蛋白质氨基酸(NPAAs)。该方法劳动密集型,但在学术界和工业界的研究实验室中被常规使用和讲授,相关文献可能细节不足;因此,本方案详细描述了以游离态和结合态β-N-甲氨基-L-丙氨酸(BMAA)作为模型氨基酸进行分析时,样品制备过程中所涉及的步骤与技术细节。
方案
本研究使用了蓝细菌物种 Merismopedia38。
1. 原始样品制备
- 从感兴趣的水体来源或蓝藻培养瓶中收集藻类浮渣,并放入50 mL离心管中38.
注意:样品必须在 −20 ℃ 冷冻保存。 °C,用于后续提取,并在进行下一步之前解冻。 - 将含有样品的离心管在3,500 x g 10 分钟,25 ˚C. 将上清液倾倒至废液容器中,并弃入生物废弃物。
注意:上清液可保留用于外泌体的后续分析。 - 用封口膜牢固地封住含有样品沉淀的离心管(参见 材料表)并使用尖头长镊子在膜上刺几个小孔。将离心管直立存放于 −80 °30 分钟,30 °C
- 开启冷冻干燥机,并在 0.1 mbar 和 −80 ℃ 条件下预平衡 °C(约30分钟)。
注意:参数(步骤 1.4)针对本研究使用的冷冻干燥机进行了优化(见 材料表)。根据实验室所用冷冻干燥机型号的标准操作程序进行操作,或在冷冻干燥机型号无法达到−80℃时设置尽可能低的温度 ˚C.- 将离心管垂直放入冻干机玻璃容器中,并置于 −80 °C冷冻5分钟以冷却容器。
- 从冷冻箱中取出玻璃容器,并安装橡胶盖。
- 确保冻干机橡胶阀出口的手柄通气至大气(向上指),并将玻璃容器牢固安装。
- 非常缓慢地将橡胶阀门出口的手柄转至朝下位置,使罐体暴露于真空环境中,并进行长达24小时的冷冻干燥,以确保所有液体完成升华。
- 松开罐中的真空时,将手柄转至向上指向的位置,取下玻璃容器,并取出冻干样品。
- 使用分析天平称取15–50 mg干燥样品颗粒,置于15 mL离心管中。
注意:样品可置于 −80 °若此时未进行进一步处理,应于 C 条件下储存。
2. 细胞裂解及游离非蛋白氨基酸的分离
- 使用微量移液器向样品管中加入 100 µL 浓度为 100 ng/mL 的 D5-2,4-DAB(参见材料表)标准品(可选)。
- 如果添加了 D5-2,4-DAB 标准品,则分别加入 300–600 µL 的 10% w/v 水溶液三氯乙酸(TCA,参见材料表)或 300–600 µL 的 11.7%–13.3% TCA。
注:选择足以完全覆盖沉淀物的水溶液 TCA 体积。 - 将样品管放入装有碎冰的容器中。
- 使用探头式超声破碎仪(参见材料表),在中高功率(70%)下按照以下步骤对样品进行 1 分钟的裂解。
警告:使用降噪耳罩,确保穿戴适当的个人防护装备。- 按照探头式超声破碎仪的安全操作规程进行准备,包括在门上放置“正在使用”标识、在通风橱内进行超声处理,并佩戴降噪耳罩。
- 打开超声破碎仪,设置以下参数:振幅 70%,时间 1 分钟。
- 将 70% 乙醇喷洒在无尘纸巾(参见材料表)上,擦拭探头表面。
- 将探头末端完全浸入样品中,然后按下开始按钮。
- 当探头式超声破碎仪停止后,将含有样品的离心管放回冰上静置 1 分钟。
- 为确保细胞充分裂解,重复步骤 2.4.3–2.4.5 一次。
- 将样品置于 4 °C 冰箱中 12–24 小时,以实现蛋白质沉淀。
- 在 8 °C 条件下,以 3,500 × g 离心 15 分钟,处理 10% 水溶液 TCA 样品。
- 使用微量移液器将上清液转移至一个标记为“游离组分”的 2 mL 管中。
- 向含有剩余样品沉淀的离心管中加入 400 µL 10% 水溶液 TCA,并通过涡旋振荡或移液器吸头将沉淀打散。
- 重复步骤 2.6–2.7,将上清液转移至同一个标记为“游离组分”的 2 mL 管中。
- 向含有剩余沉淀的离心管中加入 400 µL 10% TCA/丙酮溶液,并通过涡旋振荡或移液器吸头将沉淀打散。
- 在 8 °C 条件下,以 3,500 × g 离心 15 分钟,使用微量移液器将上清液转移至标记为“游离组分”的 2 mL 管中。
- 将开口的“游离组分”管放入离心浓缩仪(参见材料表)中,直至所有挥发性液体完全去除(至少 1 小时)。
- 样品中挥发性液体完全去除后,用密封膜严密封住管口,并用尖头长镊子在膜上刺几个小孔,然后将样品放入 −80 °C 超低温冰箱中。
- 通过重复步骤 1.4 中的所有操作,对“游离组分”样品进行冷冻干燥。
- 向“游离组分”管中加入 200 µL 20 mM 盐酸(HCl),重新溶解冻干样品,并将其储存于 −80 °C 超低温冰箱中。
注:“游离组分”样品现已准备好,可在步骤 4 中进行过滤。剩余沉淀物将在后续步骤中进一步处理,用于蛋白质组分分离。
3. 蛋白质结合态非蛋白氨基酸的分级分离
- 使用玻璃刻蚀器在玻璃样品瓶上标记样品信息以供识别。
注意:强酸可能导致墨水标签褪色,因此建议在玻璃器皿上刻蚀标签。 - 微量移液器 100 µ100 ng/mL 的 L 将 D5-2,4-DAB 标准品加入样品沉淀中(可选)。
- 微量移液器 400 µ将100%丙酮L加到样品沉淀上,使用涡旋振荡或微量移液器吸头将沉淀打散。
- 使用设置为1,000的1 mL微量移液器 µ将洗涤并重悬的沉淀转移至相应的玻璃螺口小瓶中。
注意:另取400 µ可向搅拌后的沉淀中加入100%丙酮L,以帮助将沉淀完全转移至玻璃安瓿瓶中。如有必要,可重复此步骤第三次。 - 8,000 x g 离心 g 5 分钟,25 ℃ ˚C,然后将液体倾倒至生物废弃物容器中。
- 将剩余的沉淀物放入离心蒸发仪中,直至完全去除液体并使沉淀物干燥(约1小时)。
- 在水解瓶底部加入1 mL 6 M HCl,以制备真空水解用瓶。
- 使用镊子小心地将装有干燥样品且已标记的螺口小瓶插入水解瓶中,确保其处于直立且稳定的位置。
注意:若样品数量少于水解瓶的容量,可使用空壳瓶帮助保持样品瓶直立。 - 将盖子连接到水解小瓶上,并按下盖子上的红色旋钮以关闭阀门。
- 打开真空泵,将真空管连接到水解小瓶瓶盖的顶部,并按下瓶盖上的绿色按钮以打开阀门。
- 让真空泵(参见 材料表)抽出小瓶中的空气,持续1分钟。
- 按下水解瓶盖上的红色旋钮以关闭小瓶,关闭真空泵,并拔下真空管。
- 将橡胶管连接至实验台上的氮气阀,稍微打开阀门。用拇指堵住管口并开始计数,直至气体因压力积聚而开始逸出。此计数时长即为下一步操作的时间基准。调节气体流速,使其达到合适的时间范围。
- 将橡胶管的另一端连接到水解小瓶盖的头部,然后立即按下盖子上的绿色按钮。按照步骤3.13确定的时间计数,随后迅速按下盖子上的红色按钮,并取下橡胶管。
- 重复步骤 3.10–3.14 两次,以确保玻璃水解小瓶中的空气被完全排除并充满氮气。
- 将水解小瓶放入预热至110℃的烘箱中 °C,16-18 小时
- 使用烤箱手套将玻璃水解瓶从烤箱中取出,并在通风橱内冷却10分钟。在通风橱内,面向远离自己的方向,按下绿色按钮以释放压力和气体。
- 使用镊子从水解小瓶中取出壳状小瓶。
- 通过微量移液将200 μL的溶液重新溶解水解后的样品沉淀 µ将20 mM HCl溶液1 L加入螺口小瓶中。通过涡旋振荡或使用移液器吸头确保沉淀完全重悬。
- 将含有重建样品沉淀的螺口小瓶在5,300 x g下离心2分钟 g 和25 ˚C.
4. 样品过滤
- 标记含有0.2 µm孔径膜过滤器的2 mL滤管(参见材料表),分别标注为“游离组分”和“蛋白组分”。
- 将步骤2.15(游离组分)和步骤3.20(蛋白组分)中复溶的样品转移至相应的滤管中。
- 将滤管置于离心机中,在5,000 x g 、25 ˚C条件下离心30分钟。
- 从滤管中取出滤膜并盖紧管盖。样品现可进行第5步的氨基酸衍生化。
注意:样品可置于−80 °C冰箱中保存,以备后续衍生化和分析。
5. 氨基酸衍生化
- 根据制造商说明,使用丙基氯甲酸酯(PCF)39 或6-氨基喹啉基-N-羟基琥珀酰亚胺基羰基(AQC)40 对样品进行衍生化处理(参见材料表)。
结果
提取方案的示意图如图2所示,作为简明参考指南。选用Violi等人的研究结果38来代表该提取方案在分析来自蓝藻的BMAA异构体时的阳性结果。从澳大利亚东部11个淡水采样点培养了19种单一蓝藻物种。采用相同方案,将BMAA异构体提取至游离态和蛋白结合态组分中,使用PCF进行衍生化,并通过LC-MS/MS进行分析。17种蓝藻分离株检测出BMAA阳性,所有19种均含有2,4-DAB异构体。阳性结果通过经过验证的LC-MS/MS方法确认,需在预期保留时间下至少观察到三个多重反应监测(MRM)跃迁,其中一个作为定量离子,两个作为定性离子。含有BMAA及其异构体的标准品的代表性MRM色谱图如图3所示,不同颜色线条对应各化合物。所有19个样品中BMAA及其异构体的存在情况与浓度汇总于表1,并按游离态和结合态组分分别列出。在中国台湾采集自澳大利亚新南威尔士州利德尔湖(Lake Liddell, NSW, Australia)的Merismopedia物种的游离组分中,三种异构体均呈阳性检出,其中BMAA浓度为68.38 µg/g干重(DW)± 2.25 µg/g DW,2,4-DAB浓度为1,223.98 µg/g DW ± 20.7 µg/g DW,AEG浓度为125.27 µg/g DW ± 4.19 µg/g DW。相应的色谱MRM图谱如图4所示。为说明样品中BMAA及其异构体的阴性结果,图中展示了从澳大利亚新南威尔士州沃卡水厂(Walka Water Works, NSW, Australia)采集的Microcystis flos-aquae物种结合组分的色谱图(图5)。尽管其结合组分中未检测到BMAA、2,4-DAB和AEG,但其游离组分中三种异构体均存在,浓度分别为79.86 µg/g DW ± 1.59 µg/g DW、1,156.15 µg/g DW ± 8.46 µg/g DW和433.83 µg/g DW ± 8.92 µg/g DW。
因此,通过使用本实验方案,Violi 等人38 证实了澳大利亚东部淡水蓝藻中存在BMAA异构体,并确定了哪些蓝藻具有产毒能力。
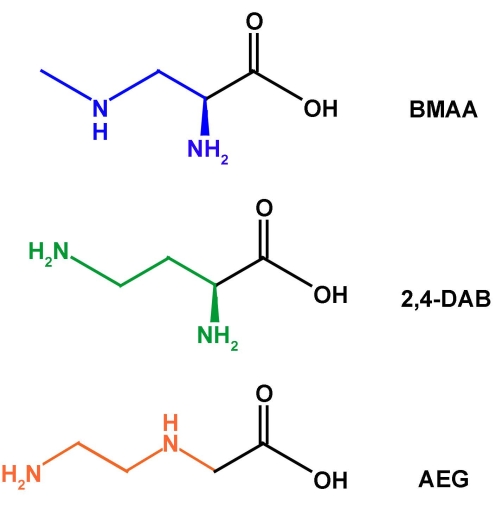
图 1:BMAA 及其异构体 2,4-DAB 和 AEG 的化学结构。 请点击此处查看此图的放大版本。
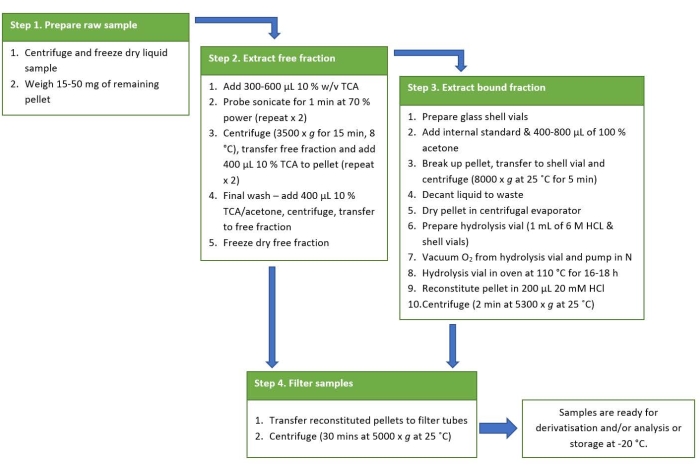
图 2:提取流程的汇总参考示意图。 请点击此处查看该图的高清版本。
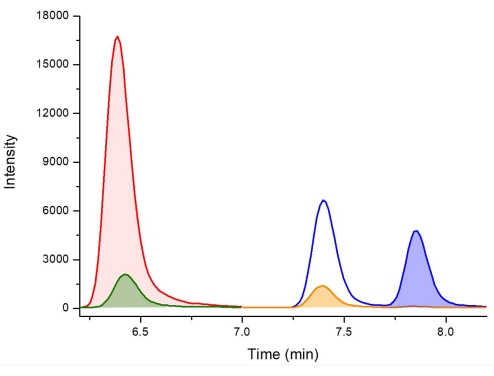
图3:含D5-2,4-DAB、2,4-DAB、BMAA和AEG的校准标准品的LC-MS/MS色谱图,通过保留时间进行异构体鉴定,图中高亮峰所示。 图注:D5-2,4-DAB 338.01 m/z > 278.10 m/z,保留时间6.4 min(红色);2,4-DAB 333.01 m/z > 273.10 m/z,保留时间6.4 min(绿色);AEG 333.01 m/z > 88.00 m/z,保留时间7.4 min(橙色);BMAA 333.01 m/z > 187.10 m/z,保留时间7.8 min(蓝色)。请点击此处查看此图的放大版本。
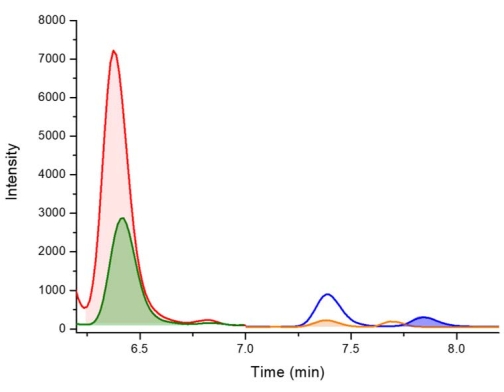
图4: 检测采自澳大利亚新南威尔士州利德尔湖的 Merismopedia 物种中 D5-2,4-DAB、2,4-DAB、BMAA 和 AEG 的 LC-MS/MS 色谱图,由高亮峰指示。 图例:D5-2,4-DAB 338.01 m/z > 278.10 m/z,保留时间 6.4 分钟(红色);2,4-DAB 333.01 m/z > 273.10 m/z,保留时间 6.4 分钟(绿色);AEG 333.01 m/z > 88.00 m/z,保留时间 7.4 分钟(橙色);BMAA 333.01 m/z > 187.10 m/z,保留时间 7.8 分钟(蓝色)。请点击此处查看该图的放大版本。
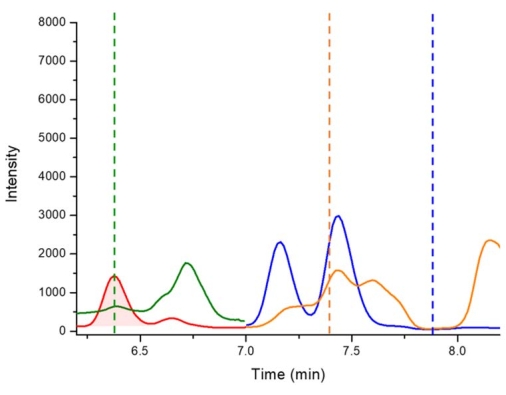
图5:来自澳大利亚新南威尔士州Walka水厂的水华微囊藻(Microcystis flos-aquae)结合组分中2,4-DAB、BMAA和AEG阴性对照的LC-MS/MS色谱图。说明:D5-2,4-DAB 338.01 m/z > 278.10 m/z(6.4分钟,红色 - 高亮峰),2,4-DAB 333.01 m/z > 273.10 m/z(6.4分钟,绿色),AEG 333.01 m/z > 88.00 m/z(7.4分钟,橙色),BMAA 333.01 m/z > 187.10 m/z(7.8分钟,蓝色)。虚线表示缺失的2,4-DAB、AEG和BMAA的保留时间。请点击此处查看该图的放大版本。
表1:蓝藻分离物中BMAA、AEG和2,4-DAB的浓度。 浓度以±平均值的标准误差表示(n = 3)。ND表示未检出。每种异构体检测到的最高浓度以绿色标出。该表格改编自Violi等人的研究38。请点击此处下载该表格。
讨论
本文所述的NPAAs分析提取方案适用于生物样品中任何氨基酸的分析。关于蓝藻菌株的分离与培养指南,可参考Violi等人研究所提出的方法38。该方案的第一步是将样品处理至可基于干重进行样品间归一化的状态。第二步为细胞裂解,以释放待测分析物,可采用多种技术实现,包括机械破碎/裂解(如本方案中描述的探头超声处理)、冻融循环、研磨和珠磨,以及非机械裂解方法,如酶解、去污剂和/或化学裂解。已知机械破碎法相较于非机械法具有优势,因其可在更大程度上实现样品裂解,同时保持细胞内化学键和蛋白质的完整性41,尽管具体样品基质可能决定最适的细胞裂解方法。
在提取氨基酸用于分析的本方案中,蛋白质沉淀是关键的第三步。三氯乙酸(TCA)是最常用的溶剂;然而,高氯酸、丙酮、甲基叔丁基醚(MTBE)、甲醇和/或乙腈8,42也已被使用,每种提取溶剂均旨在提取并沉淀不同的底物。本文所述模型用于从蓝细菌基质中提取非蛋白质氨基酸BMAA及其异构体,尽管已使用多种不同溶剂,但最常用的两种为水中10% TCA(水相)和丙酮中10% TCA。通常,使用TCA进行蛋白质沉淀常用于提取氨基酸,以分离游离氨基酸与蛋白结合氨基酸。此外,TCA提取法还可用于测定总蛋白含量,减少游离组分中的干扰物质,并在最小程度蛋白降解的情况下抑制蛋白酶活性43。游离组分的TCA提取首先通过冲洗去除可溶于有机溶剂的物质,使蛋白质及细胞壁残余等不溶性化合物留在沉淀中,随后使用强酸进行热酸水解提取蛋白结合氨基酸(结合组分)。
采用10%三氯乙酸(TCA)水溶液结合超声处理对游离组分进行分级,相较于其他有机溶剂44,可实现最充分的蛋白质沉淀,并获得最佳的氨基酸回收率42。一些研究选择将酸与有机溶剂联用(例如,丙酮中含10%-20% TCA43),以沉淀更多种类的分子,包括较小的肽段或生物分子,同时减少蛋白质降解并降低盐类等杂质含量43。10% TCA丙酮溶液的另一优势在于其在制备水解用沉淀物时干燥速度更快,有助于减少残留水分,防止氨基酸发生修饰。然而,与单独使用10% TCA丙酮溶液相比,10% TCA水溶液结合超声处理对游离氨基酸的提取效率更高44。此外,10% TCA水溶液沉淀法也存在局限性,例如干燥时间较长,无法沉淀所有蛋白质或小肽/生物分子,且根据目标分析物的不同(如蛋白质或氨基酸),可能需要添加助剂和还原剂以防止氧化和降解45,46。
本方案采用10%水相三氯乙酸(TCA)与10%丙酮相TCA相结合的方法,以增强蛋白质沉淀效果,确保小分子肽/生物分子也能被沉淀,缩短沉淀物干燥时间,并提高提取效率,从而充分利用两种溶剂的提取特性。然而,当10%丙酮相TCA的上清液与水相游离组分混合后,10%水相TCA与10%丙酮相TCA的联用可能导致游离组分中的小分子肽/生物分子发生沉淀。在此情况下,应将这些沉淀物转移至结合组分中进行水解处理。
该方案的后半部分涉及从蛋白质沉淀中释放氨基酸(即BMAA) 通过 在无氧环境中高温进行酸蒸气水解。该水解步骤主要的限制因素是其准备工作耗时且繁琐。由于需要过夜孵育,导致样品制备与分析无法实现快速和高效。此外,将沉淀物从离心管定量转移至安瓿瓶(步骤3.4)是一个困难的过程,需要操作者具备细致与耐心,以确保以干重为基准的归一化点准确无误。用户可能遇到的问题包括沉淀物转移不完全、湿的沉淀蛋白粘附在移液枪头或原离心管内壁,以及沉淀物中的固体颗粒堵塞移液枪头。为便于更顺利地转移沉淀物,一个实用建议是使用剪刀剪去移液枪头末端约0.3–0.5 mm,使较大的沉淀颗粒能够被吸入并释放至安瓿瓶中。该转移方法在所有氨基酸分析的蛋白质提取过程中均为常规操作。然而,仍需进一步研究改进方法,以提高将沉淀物定量转移至安瓿瓶的效率与准确性。
可采用两种水解技术将氨基酸从蛋白质结合状态中释放出来:液相水解和酸蒸气水解。液相水解是将6 M HCl加入样品中,随后在110 °C烘箱中孵育过夜,可作为本方案所述酸蒸气水解的替代方法。采用液相水解的提取技术可能需要进一步处理步骤,例如脱盐,尤其是当选择AQC衍生化时,因其标记过程需要碱性条件。40酸蒸气水解可避免脱盐步骤,并允许用户在过滤前对最终沉淀物进行复溶时自由选择衍生化方法。此外,无论采用何种水解方法,样品可能仍需进一步处理,例如固相萃取(SPE)以实现基质纯化和浓缩29,47,48,具体取决于衍生化方法的选择和/或分析方法(例如,反相液相色谱-串联质谱 vs. 亲水相互作用液相色谱 [HILIC] 串联质谱)37)。本方案中使用 20 mM HCl 重悬最终沉淀物,适用于采用 PCF 试剂进行衍生化处理48 通过 一种市售的氨基酸水解试剂盒39 (参见 材料表)。AQC 和 PCF 均可对样品中来源的全部氨基酸、蛋白质及非蛋白质成分进行衍生化,分析物的选择性则通过液相色谱-串联质谱法(LC-MS/MS)实现,结合保留时间匹配以及对定量离子对和定性离子对的多反应监测(MRM)进行精确筛选38.
目前的水解方案并未针对BMAA、2,4-DAB和AEG的释放进行优化,而是基于现有的蛋白质水解方法,主要针对22种蛋白质氨基酸设计32,其中水解时间超过18小时会导致某些氨基酸发生降解和修饰,影响LC-MS/MS分析,从而影响测得的浓度32。Beach等人49研究了不同水解时间(0.5–120小时)对BMAA及蛋白源性氨基酸分析的影响,以优化水解条件。他们发现,尽管在水解最初0.5小时内BMAA即迅速释放,但随着水解时间延长,BMAA含量持续增加,且未发生降解,甚至在水解5天后仍呈上升趋势49。目前对于结合态BMAA及其异构体的真实性质仍存在不同观点和疑问,一些研究认为BMAA并非共价结合50,51或错误掺入蛋白质中14,而是与蛋白质的结合仅为表面吸附52。然而,当前在分析"结合态" BMAA时的普遍共识是,必须采用经过验证且广泛接受的水解步骤,以断裂肽链/蛋白质,释放氨基酸,从而释放BMAA及其异构体。
Sedgwick 等人在一项研究中测定了20种蛋白质氨基酸的回收率。42 采用TCA提取法,回收率约为100%。对于藻类基质中的BMAA及其异构体,已有研究比较了不同提取溶剂对BMAA提取效率的影响,结果表明10% TCA对游离BMAA的提取效率最高27通过液相水解法提取的蛋白结合型BMAA的回收率已在Glover等人研究中确定。25 以及 Faassen 等人53,其中准确性通过加标回收率方法确定,BMAA 的平均回收率分别为 108.6% 和 70%。Faassen 等人描述了加标回收实验的操作步骤,并说明了加标时机在提取过程中的不同阶段会导致回收率的差异53Faassen 等人还测定了本文所述酸蒸气法的效率,提取前添加的 BMAA 异构体回收率为 83.6%,水解前添加的回收率为 68.6%24这些回收率、提取方法和分析方法随后由 Banack 进一步验证26,蓝藻基质中BMAA的回收率为94%–106%,相对标准偏差(%RSD)介于5.6%至20%之间,符合美国食品药品监督管理局(FDA)的准确性标准54建议各实验室在使用本方案前,首先建立自身的回收率和准确性参数。 通过 加标回收实验。Faassen 等人所提出的回收方法。53 和Glover等人25 可作为指导遵循。
除了过夜烘箱水解外,还可采用其他形式的水解技术以更快地提取目标分析物中的蛋白结合成分。例如,微波萃取仪可将水解时间从24小时显著缩短至仅10分钟55。氨基酸的微波水解与传统的热解方法基于相同的原理,需在无氧环境中使用手套箱来制备和组装微波反应容器,并加入6 M HCl。容器密封后,含样品的反应体系接受微波辐射。微波水解已成功用于从多种样品基质中提取氨基酸56,57,58;然而,该方法尚未针对BMAA的分析进行开发和验证。
总之,10% 水相 TCA 蛋白沉淀法是从蓝细菌基质中提取游离非蛋白氨基酸的最佳方法27,且热碱水解可实现对蛋白质结合态组分的可靠且可重复的提取。本方案用于从蓝细菌中提取NPAA BMAA及其异构体,已被验证并被广泛接受。未来进一步优化BMAA提取的研究方向将聚焦于水解步骤,该步骤需依据22种蛋白质氨基酸的特性进行。然而,本文所介绍的提取方案在分析BMAA及其异构体方面仍应被视为高效且有效。 通过 LC-MS/MS
披露
作者无任何利益冲突需要披露。
致谢
D.P.B.、K.J.R. 和 S.M.M. 由伊恩·波特基金会资助,J.P.V. 获得澳大利亚政府研究培训计划奖学金。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 mL 玻璃螺口小瓶 | SHIMADZU | REST-24663 | |
| 10% 三氯乙酸溶液 | 将100%(w/v)三氯乙酸(TCA)水溶液稀释至10% | ||
| 100% 三氯乙酸溶液 | 按照以下比例将TCA溶于水:2.2 g:1 mL(TCA:水)2O | ||
| 1000 µL 微量移液器 | Eppendorf/Sigma-Aldrich | Z683809 | |
| 13.3% 三氯乙酸溶液 | 将100%(w/v)的三氯乙酸(TCA)水溶液稀释至13.3% | ||
| 2 mL 离心管 | 默克 | BR780546-500EA | |
| 20 mM HCl | Chem-Supply Pty Ltd | 7647-01-0 | 由库存材料制成 |
| 20-200 µL 微量移液器 | Ependorf/Sigma-Aldrich | Z740441 | |
| 6 M HCl | Chem-Supply Pty Ltd | 7647-01-0 | 由库存材料制成 |
| 70% 乙醇 | Supelco | 1.11727 | 70:1 乙醇:水稀释液 |
| -80 °C 型冷冻机 | Martin CHRIST | 102142 | Alpha 2-4 Ldplus |
| AccQ-Tag Ultra 衍生化试剂盒 | 沃特斯 | 186003836 | |
| 丙酮 | Chem-Supply 公司 | 34967-2.5L | |
| 分析天平 | |||
| 离心浓缩仪 | 赛默飞世尔科技 | 13442549 | DNA120-115 SpeedVac 浓缩仪 |
| 离心 | 默克 | EP022620100-1EA | |
| D5-2,4-二氨基丁烷标准品 | CDN同位素 | D-7568 | |
| 干燥箱 | |||
| Ez:faastTM 氨基酸分析试剂盒 | Phenomenex | CEO-8492 | |
| Falcon管架 | |||
| Falcon 管 | MERCK | T2318-500EA | Greiner 离心管 |
| 过滤管 | Sigma-Aldrich | CLS8161-100EA | Corning Costar Spin-X 离心管滤器(孔径 0.22) μm) |
| 玻璃刻蚀器 | |||
| 水解小瓶 &和 盖子 | Eldex Laboratories/Waters | WAT007568 & WAT007569 | |
| 冰和容器 | |||
| 无尘纸巾 | Kimwipes/西格玛奥德里奇 | Z188956 | |
| Milli-Q 水 | 18.2 MΩ.cm | ||
| 带软管的氮气接头 | |||
| P1000 微量移液器 | MERCK | EP3123000063 | |
| P1000 移液器吸头 | MERCK | Z740127 | |
| P200 微量移液器 | 默克 | EP3123000055-1EA | |
| P200 移液器吸头 | MERCK | Z740125 | |
| Parafilm | MERCK | P7793 | 封口膜 |
| 个人防护装备——降噪耳机 | |||
| 个人防护装备——烤箱手套 | |||
| 探针式超声波破碎仪 | QSONICA 超声波破碎仪 | Q125 超声波破碎仪 | 请确保穿戴所有适当的个人防护装备(例如,降噪耳机) |
| 样品转移刮勺 | |||
| 三氯乙酸(TCA) | Sigma-Aldrich | T6399-1KG | |
| 镊子 | |||
| 带软管的真空泵 |
参考文献
- Larsen, P. O. Physical and Chemical Properties of Amino Acids. Amino Acids and Derivatives. Miflin, B. J. , Academic Press. Cambridge, MA. 225-269 (1980).
- Wagner, I., Musso, H. New naturally occurring amino acids. Angewandte International Edition in English. 22 (11), 816-828 (1983).
- Reeds, P. J. Dispensable and indispensable amino acids for humans. The Journal of Nutrition. 130 (7), 1835-1840 (2000).
- Bhagavan, N. V., Ha, C. -E. Amino Acids. Essentials of Medical Biochemistry (Second Edition). Bhagavan, N. V., Ha, C. -E. , Academic Press. Cambridge, MA. 21-29 (2015).
- Rubenstein, E. Misincorporation of the proline analog azetidine-2-carboxylic acid in the pathogenesis of multiple sclerosis: A hypothesis. Journal of Neuropathology & Experimental Neurology. 67 (11), 1035-1040 (2008).
- Chan, S., Dunlop, R., Rowe, A., Double, K., Rodgers, K. l-DOPA is incorporated into brain proteins of patients treated for Parkinson's disease, inducing toxicity in human neuroblastoma cells in vitro. Experimental Neurology. 238 (1), 29-37 (2012).
- Rodgers, K. J., Hume, P. M., Morris, J. G., Dean, R. T. Evidence for L-dopa incorporation into cell proteins in patients treated with levodopa. Journal of Neurochemistry. 98 (4), 1061-1067 (2006).
- Violi, J. P., Bishop, D. P., Padula, M. P., Steele, J. R., Rodgers, K. J. Considerations for amino acid analysis by liquid chromatography-tandem mass spectrometry: A tutorial review. TrAC Trends in Analytical Chemistry. 131, 116018(2020).
- Hashiguchi, A., Komatsu, S. Posttranslational Modifications and Plant-Environment Interaction. Methods in Enzymology., Volume 586. Shukla, A. K. , Academic Press. Cambridge, MA. 97-113 (2017).
- Berntzon, L., Ronnevi, L. O., Bergman, B., Eriksson, J. Detection of BMAA in the human central nervous system. Neuroscience. 292, 137-147 (2015).
- Cox, P. A., Banack, S. A., Murch, S. J. Biomagnification of cyanobacterial neurotoxins and neurodegenerative disease among the Chamorro people of Guam. Proceedings of the National Academy of Sciences of the United States of America. 100 (23), 13380-13383 (2003).
- Cox, P. A., et al. Cyanobacteria and BMAA exposure from desert dust: A possible link to sporadic ALS among Gulf War veterans. Amyotrophic Lateral Sclerosis. 10, 109-117 (2009).
- Pablo, J., et al. Cyanobacterial neurotoxin BMAA in ALS and Alzheimer's disease. Acta Neurologica Scandinavica. 120 (4), 216-225 (2009).
- Dunlop, R. A., Cox, P. A., Banack, S. A., Rodgers, K. J. The non-protein amino acid BMAA is misincorporated into human proteins in place of l-serine causing protein misfolding and aggregation. PLoS One. 8 (9), 75376(2013).
- Cox, P. A., et al. Diverse taxa of cyanobacteria produce β-N-methylamino-L-alanine, a neurotoxic amino acid. Proceedings of the National Academy of Sciences of the United States of America. 102 (14), 5074-5078 (2005).
- Faassen, E. J. Presence of the neurotoxin BMAA in aquatic ecosystems: What do we really know. Toxins. 6 (3), 1109-1138 (2014).
- Al-Sammak, M. A., Hoagland, K. D., Cassada, D., Snow, D. D. Co-occurrence of the cyanotoxins BMAA, DABA and anatoxin-a in Nebraska reservoirs, fish, and aquatic plants. Toxins. 6 (2), 488-508 (2014).
- Wang, C., et al. Food web biomagnification of the neurotoxin β-N-methylamino-L-alanine in a diatom-dominated marine ecosystem in China. Journal of Hazardous Materials. 404, 124217(2021).
- Banack, S. A., Johnson, H. E., Cheng, R., Cox, P. A. Production of the neurotoxin BMAA by a marine cyanobacterium). Marine Drugs. 5 (4), 180-196 (2007).
- Jiang, L., Johnston, E., Åberg, K. M., Nilsson, U., Ilag, L. L. Strategy for quantifying trace levels of BMAA in cyanobacteria by LC/MS/MS. Analytical and Bioanalytical Chemistry. 405 (4), 1283-1292 (2013).
- Jonasson, S., Eriksson, J., Berntzon, L., Rasmussen, U., Bergman, B. A novel cyanobacterial toxin (BMAA) with potential neurodegenerative effects. Plant Biotechnology. 25 (3), 227-232 (2008).
- Cohen, S. Analytical techniques for the detection of α-amino-β-methylaminopropionic acid. Analyst. 137 (9), 1991-2005 (2012).
- Main, B. J., Rodgers, K. J. Assessing the combined toxicity of BMAA and its isomers 2,4-DAB and AEG in vitro using human neuroblastoma cells. Neurotoxicity Research. 33 (1), 33-42 (2018).
- Faassen, E. J., Gillissen, F., Lürling, M. A comparative study on three analytical methods for the determination of the neurotoxin BMAA in cyanobacteria. PLoS One. 7 (5), 36667(2012).
- Glover, W. B., Baker, T. C., Murch, S. J., Brown, P. N. Determination of β-N-methylamino-L-alanine, N-(2-aminoethyl)glycine, and 2,4-diaminobutyric acid in food products containing cyanobacteria by ultra-performance liquid chromatography and tandem mass spectrometry: Single-laboratory validation. Journal of AOAC International. 98 (6), 1559-1565 (2015).
- Banack, S. A. Second laboratory validation of β-N-methylamino-L-alanine, N-(2aminoethyl)glycine, and 2,4-diaminobuytric acid by ultra-performance liquid chromatography and tandem mass spectrometry. Neurotoxicity Research. 39 (1), 107-116 (2021).
- Lage, S., et al. BMAA extraction of cyanobacteria samples: Which method to choose. Environmental Science and Pollution Research. 23 (1), 338-350 (2016).
- Jonasson, S., et al. Transfer of a cyanobacterial neurotoxin within a temperate aquatic ecosystem suggests pathways for human exposure. Proceedings of the National Academy of Sciences of the United States of America. 107 (20), 9252-9257 (2010).
- Spáčil, Z., et al. Analytical protocol for identification of BMAA and DAB in biological samples. Analyst. 135 (1), 127-132 (2010).
- Jiang, L., et al. Diatoms: A novel source for the neurotoxin BMAA in aquatic environments. PLOS One. 9 (1), 84578(2014).
- Murch, S. J., Cox, P. A., Banack, S. A., Steele, J. C., Sacks, O. W. Occurrence of β-methylamino-l-alanine (BMAA) in ALS/PDC patients from Guam. Acta Neurologica Scandinavica. 110 (4), 267-269 (2004).
- Davidson, I. Hydrolysis of Samples for Amino Acid Analysis. Protein Sequencing Protocols. Smith, B. J. , Humana Press. Totowa, NJ. 111-122 (2003).
- Esterhuizen-Londt, M., Downing, S., Downing, T. Improved sensitivity using liquid chromatography mass spectrometry (LC-MS) for detection of propyl chloroformate derivatised -N-methylamino-L-alanine (BMAA) in cyanobacteria. Water SA. 37 (2), 133-138 (2011).
- Kisby, G. E., Roy, D. N., Spencer, P. S. Determination of β-N-methylamino-l-alanine (BMAA) in plant (Cycas circinalis L.) and animal tissue by precolumn derivatization with 9-fluorenylmethyl chloroformate (FMOC) and reversed-phase high-performance liquid chromatography. Journal of Neuroscience Methods. 26 (1), 45-54 (1988).
- Lampinen Salomonsson, M., Hansson, A., Bondesson, U. Development and in-house validation of a method for quantification of BMAA in mussels using dansyl chloride derivatization and ultra performance liquid chromatography tandem mass spectrometry. Analytical Methods. 5 (18), 4865-4874 (2013).
- Main, B. J., et al. Detection of the suspected neurotoxin β-methylamino-l-alanine (BMAA) in cyanobacterial blooms from multiple water bodies in Eastern Australia. Harmful Algae. 74, 10-18 (2018).
- Combes, A., et al. Validation of the analytical procedure for the determination of the neurotoxin β-N-methylamino-l-alanine in complex environmental samples. Analytica Chimica Acta. 771, 42-49 (2013).
- Violi, J. P., Mitrovic, S. M., Colville, A., Main, B. J., Rodgers, K. J. Prevalence of β-methylamino-L-alanine (BMAA) and its isomers in freshwater cyanobacteria isolated from eastern Australia. Ecotoxicology and Environmental Safety. 172, 72-81 (2019).
- Phenomenex. EZ:faast For Amino Acid Analysis of Protein Hydroysates by LC-MS. User's Manual. , Available from: http://phx.phenomenex.com/lib/3882_L6_LC_MS.pdf (2005).
- AccQ-Tag Ultra Derivatization Kit Care and. Waters. , Available from: https://www.waters.com/waters/support.htm?lid=10008559 (2014).
- D'Hondt, E., et al. Cell Disruption Technologies. Microalgae-Based Biofuels and Bioproducts. Gonzalez-Fernandez, C., Munoz, R. , Woodhead Publishing. Sawston, Cambridge. 133-154 (2017).
- Sedgwick, G. W., Fenton, T. W., Thompson, J. R. Effect of protein precipitating agents on the recovery of plasma free amino acids. Canadian Journal of Animal Science. 71 (3), 953-957 (1991).
- Niu, L., et al. Modified TCA/acetone precipitation of plant proteins for proteomic analysis. PLOS One. 13 (12), 0202238(2018).
- Fic, E., Kedracka-Krok, S., Jankowska, U., Pirog, A., Dziedzicka-Wasylewska, M. Comparison of protein precipitation methods for various rat brain structures prior to proteomic analysis. Electrophoresis. 31 (21), 3573-3579 (2010).
- Koontz, L. TCA precipitation. Methods in Enzymology. 541, 3-10 (2014).
- Novák, P., Havlíček, V. Protein Extraction and Preparation. Proteomic Profiling and Analytical Chemistry (Second Edition). Ciborowski, P., Silberring, J. , Elsevier. 51-62 (2016).
- Li, A., et al. Elucidation of matrix effects and performance of solid-phase extraction for LC-MS/MS analysis of beta-N-methylamino-L-alanine (BMAA) and 2,4-diaminobutyric acid (DAB) neurotoxins in cyanobacteria. Analyst. 137 (5), 1210-1219 (2012).
- Baker, T. C., Tymm, F. J. M., Murch, S. J. Assessing environmental exposure to β-N-methylamino-l-alanine (BMAA) in complex sample matrices: A comparison of the three most popular LC-MS/MS methods. Neurotoxicity Research. 33 (1), 43-54 (2018).
- Beach, D. G., Kerrin, E. S., Giddings, S. D., Quilliam, M. A., McCarron, P. Differential mobility-mass spectrometry double spike isotope dilution study of release of β-methylaminoalanine and proteinogenic amino acids during biological sample hydrolysis. Scientific Reports. 8, 117(2018).
- Murch, S. J., Cox, P. A., Banack, S. A. A mechanism for slow release of biomagnified cyanobacterial neurotoxins and neurodegenerative disease in Guam. Proceedings of the National Academy of Sciences of the United States of America. 101 (33), 12228-12231 (2004).
- Banack, S. A., Murch, S. J., Cox, P. A. Neurotoxic flying foxes as dietary items for the Chamorro people, Marianas Islands. Journal of Ethnopharmacology. 106 (1), 97-104 (2006).
- van Onselen, R., Cook, N. A., Phelan, R. R., Downing, T. G. Bacteria do not incorporate β-N-methylamino-l-alanine into their proteins. Toxicon. 102, 55-61 (2015).
- Faassen, E. J., Gillissen, F., Zweers, H. A. J., Lürling, M. Determination of the neurotoxins BMAA (β-N-methylamino-L-alanine) and DAB (α-,γ-diaminobutyric acid) by LC-MSMS in Dutch urban waters with cyanobacterial blooms. Amyotrophic Lateral Sclerosis. 10, 79-84 (2009).
- Food and Drug Administration. Bioanalytical Method Validation. Guidance for Industry. U.S. U.S. Department of Health and Human Services, Food and Drug Administration, Center for Drug Evaluation and Research, Center for Veterinary Medicine. , (2018).
- Reichelt, M., Hummert, C., Luckas, B. Hydrolysis of microcystins and nodularin by microwave radiation. Chromatographia. 49 (11), 671-677 (1999).
- Marconi, E., Panfili, G., Bruschi, L., Vivanti, V., Pizzoferrato, L. Comparative study on microwave and conventional methods for protein hydrolysis in food. Amino Acids. 8 (2), 201-208 (1995).
- Chen, S. -T., Chiou, S. -H., Chu, Y. -H., Wang, K. -T. Rapid hydrolysis of proteins and peptides by means of microwave technology and its application to amino acid analysis. International Journal of Peptide and Protein Research. 30 (4), 572-576 (1987).
- Aviram, L. Y., McCooeye, M., Mester, Z. Determination of underivatized amino acids in microsamples of a yeast nutritional supplement by LC-MS following microwave assisted acid hydrolysis. Analytical Methods. 8 (22), 4497-4503 (2016).
重印与许可
