本方案描述了使用脉冲式SILAC对衰老细胞和非分裂细胞进行代谢标记、非靶向质谱分析以及蛋白质半衰期的简化计算的工作流程。
本文内容
摘要
摘要
越来越多的证据表明,中枢神经系统中衰老细胞的积累与阿尔茨海默病和帕金森病等神经退行性疾病密切相关。细胞衰老是一种永久性的细胞周期停滞状态,通常在细胞暴露于亚致死性应激条件下发生。然而,与其他非分裂细胞类似,衰老细胞仍具有代谢活性,并执行多种需要独特转录和翻译需求以及细胞内和分泌蛋白质组广泛变化的功能。了解蛋白质合成与降解速率在衰老过程中的变化,有助于揭示细胞衰老的潜在机制,并为由衰老细胞加剧的疾病提供潜在的治疗途径。本文介绍了一种利用细胞培养中氨基酸脉冲式稳定同位素标记(pSILAC)结合质谱技术,在蛋白质组水平上评估非分裂细胞中蛋白质半衰期的方法。pSILAC通过使用含稳定重同位素的氨基酸对细胞进行代谢标记。结合现代质谱技术,pSILAC能够对复杂混合物中数百至数千种蛋白质的周转率进行定量分析。在代谢标记后,可通过质谱检测到的肽段中重同位素的相对富集程度,确定蛋白质的周转动态。本实验方案描述了构建衰老成纤维细胞培养物以及类似地处于静息状态的成纤维细胞的方法,并采用一种简化的单时间点pSILAC标记时间进程设计,以最大程度覆盖预期的蛋白质周转速率范围。此外,本文还提供了一套用于分析pSILAC质谱数据的流程,以及利用电子表格进行蛋白质降解速率计算的用户友好型方法。该实验方案的应用不仅限于衰老细胞,还可推广至其他非分裂的培养细胞,例如神经元。
引言
衰老最初被定义为培养的原代细胞在达到复制性耗竭后表现出的一种无限期生长停滞状态1。此后研究发现,多种细胞损伤均可诱导衰老的发生,包括基因毒性、线粒体应激和癌基因应激等2。尽管衰老在生理上具有若干重要功能,例如肿瘤抑制和伤口愈合,但在衰老过程中衰老细胞的积累却与多种有害健康的影响相关3,包括多种神经退行性疾病4,5,6。细胞衰老可发生在多种脑细胞类型中,包括神经元7,8,9,10、星形胶质细胞11、小胶质细胞12和少突胶质细胞前体细胞13,并促进神经退行性变和认知功能障碍。淀粉样β寡聚体是阿尔茨海默病的标志性特征之一14,已被证实可加速神经元衰老13,15,16。帕金森病中也观察到衰老细胞增多的现象17,尤其与环境应激因素相关11,18。重要的是,在临床前模型中选择性清除衰老细胞可延长寿命,减轻多种与年龄相关的疾病3,5,12,并改善认知缺陷8,11,12,13。因此,衰老细胞已成为治疗多种年龄相关疾病极具前景的治疗靶点。
衰老细胞的许多有害效应是由衰老相关分泌表型(SASP)引起的,这是一种衰老细胞分泌的生物活性分子的复杂混合物,可导致局部炎症、血管生成、细胞外基质破坏以及周围组织中衰老状态的传播19,20,21。SASP 也代表了一种有趣的衰老生物学现象,因为它需要在细胞周期停滞状态下进行大量的转录和翻译活动。事实上,已有研究表明,衰老细胞的核糖体生物合成减少22,23,24,这本应降低蛋白质合成水平。然而,衰老细胞却能高效地翻译某些蛋白质,特别是 SASP 因子,并影响周围组织的代谢25。因此,人们迫切希望了解那些处于永久性细胞周期停滞的衰老细胞,是如何在持续维持蛋白质稳态的同时,又能高效表达 SASP 因子及其他特定蛋白质的。
本方法描述了如何利用质谱法和细胞培养中氨基酸脉冲式稳定同位素标记(pSILAC)技术,在蛋白质组范围内全局性地测定衰老细胞中蛋白质的半衰期。在传统的SILAC方法中,培养的细胞被完全代谢标记上重链和轻链的非放射性氨基酸同位素,用于后续蛋白质丰度的分析。该方法此前已被用于全面且定量地评估培养成纤维细胞SASP中的丰度变化26。在pSILAC中,细胞首先用轻链同位素进行预标记,随后施加重链同位素的脉冲标记,并在一个或多个时间点收集细胞。通过比较重链同位素相对于原有轻链同位素的掺入速率,可计算出蛋白质的相对周转速率。通常使用精氨酸和赖氨酸的同位素,因为胰蛋白酶会在这些残基处切割肽链,因此标准消化产生的所有肽段都可能含有重链标记。仅在是否含有重链赖氨酸或精氨酸上有所不同的肽段对在化学性质上完全相同,可通过质谱仪进行区分和定量。在质谱分析之后,可根据肽段鉴定结果中是否存在同位素标记,将肽段识别为新合成的或原有的。随后,通过将特定蛋白质的重链(13C-15N)与轻链(12C-14N)肽段比例拟合到指数增长或衰减的动力学模型中,即可确定蛋白质的周转速率27,28。pSILAC已被应用于多项蛋白质周转速率的比较研究29,30,31,32,目前是测定蛋白质半衰期最全面且高通量的方法。
本方案详细描述了在培养中平行制备衰老细胞与同样处于生长停滞状态的静息细胞,随后使用pSILAC进行代谢标记。然后收集细胞,裂解制备成匀浆,并进行质谱数据的采集与分析。通过质谱获得的数据,可采用一种简化的定量方法,利用单个时间点并结合电子表格中进行的半衰期计算,确定蛋白质的半衰期。利用该方法,能够以更全面且定量的方式测定蛋白质半衰期,相较于使用蛋白质合成或周转抑制剂的方案,其结果更接近于未受干扰的细胞生理状态。
方案
1. 静息细胞及通过暴露诱导衰老细胞的制备 电离辐射(IR)
注意:细胞衰老和静息状态可通过多种方法诱导,具体方法已在其他文献中详细描述33,34,35。用于诱导细胞衰老和静息状态的刺激因素可能取决于所研究的细胞类型及具体的生物学问题。本研究中使用的细胞为商业可获得的细胞。
- 从冻存管中解冻人二倍体 IMR-90 成纤维细胞(约 1 × 10⁶ 个细胞),将其接种于含 10% 胎牛血清(FBS)的 20 mL DMEM 培养基中(表 1),置于 150 mm 培养皿中。
- 在生理氧浓度条件下(3% O2、5% CO2、37 °C)培养细胞,并使用含 10% FBS 的培养基扩增细胞,直至获得足够数量的静止期和衰老期细胞重复样本(建议每种条件至少设置 3–5 个重复)。
注意:在生理氧浓度(3%)下培养原代人成纤维细胞最为理想,但其他细胞类型的适宜培养条件可能有所不同,应根据具体情况确定。 - 通过将增殖期细胞暴露于 15 戈瑞(Gy)电离辐射(IR)诱导细胞衰老。
注意:辐射暴露强度可能因细胞类型而异。本实验采用 15 Gy,但成纤维细胞也常使用 10 Gy 的辐射剂量;其他细胞(如单核细胞)可能仅需低至 5 Gy 的剂量。通常需通过经验确定剂量,权衡细胞存活率与衰老诱导效率。- 将处于 40%–60% 汇合度的细胞置于含 10% FBS 的培养基中进行 IR 处理。
- 辐射处理后,更换为新鲜的含 10% FBS 的培养基。
- 每 2 天更换一次培养基(20 mL,含 10% FBS),持续 8 天。
注意:选择较低汇合度进行辐射处理,是因为经 IR 处理的细胞在停止生长前仍会继续扩增。本实验中,在建立衰老状态期间未对细胞进行传代;尽管细胞汇合度逐渐升高,但在收获时仍表现出衰老细胞标志物。在成纤维细胞中,衰老表型通常在 7–10 天内形成。
- 通过将增殖期细胞的培养基更换为含 0.2% FBS 的培养基(血清饥饿)来制备静止期对照细胞(表 1)。
- 在衰老细胞接受辐射处理后的第 4 天之前,继续使用含 10% FBS 的培养基培养将用于静止期对照的细胞,必要时进行传代。
- 在辐射处理后的第 4 天,将静止期细胞的培养基更换为 20 mL 含 0.2% FBS 的培养基(表 1),继续培养 6 天,每 2 天更换一次培养基。
注意:即使在含 0.2% FBS 的培养基中,成纤维细胞仍会一定程度地生长,收获时可能已接近汇合。一般建议在静止期细胞的汇合度与衰老细胞培养物相近时进行收集。
2. 脉冲SILAC细胞标记及裂解液收集
- 将衰老细胞和静息细胞(共12个培养板)的培养基更换为SILAC轻标记培养基(表1),继续培养2天。
注意:由于13C和15N在自然界中丰度极低,该标记方法有助于降低背景噪音。在试剂受限的情况下,此步骤可省略,但会导致新合成蛋白质的水平被轻微高估。 - 更换为SILAC DMEM培养基(表1)进行代谢标记。
注意:SILAC DMEM培养基经过特殊配制,仅含有轻或重同位素标记的精氨酸和赖氨酸,用于代谢标记。在步骤2.2.1和2.2.2中,不得用标准DMEM培养基替代。- 对三个衰老细胞和三个静息细胞培养板,更换为30 mL SILAC轻标记培养基(表1),在不更换培养基的情况下继续培养3天。
- 至少对三个衰老细胞和三个静息细胞培养板,更换为30 mL SILAC重标记培养基(表1),在不更换培养基的情况下继续培养3天。
注意:在此阶段可选择立即收集将作为轻标记的细胞,而不进行额外3天的标记。对于单个时间点实验,建议将重标记和轻标记细胞的标记时间保持一致(如本方案所示),以尽量减少批次效应。
- 向每个培养皿中加入5 mL预热的胰蛋白酶试剂,37 °C孵育5分钟,使细胞脱离培养皿表面。
- 将脱离的细胞用与原培养相同的培养基(SILAC轻或重标记培养基)重悬,每份加入5 mL培养基,总体积为10 mL。
- 收集细胞用于裂解液提取及衰老标志物的验证。
- 将每份细胞悬液中的0.6 × 10⁶个细胞分装至含0.2% FBS的2 mL培养基中,接种于6孔板(共两个孔,分别用于SILAC轻标记和重标记培养的细胞),置于37 °C过夜孵育。
注意:这些培养板(步骤2.5.1)将用于检测衰老相关β-半乳糖苷酶(SA-βGal)活性(步骤3.1)。 - 将每份细胞悬液中的1 × 10⁶个细胞分装至微量离心管中,在台式离心机中以最大转速离心1分钟。弃去上清液,将沉淀用1 mL苯酚重悬;此时可按照苯酚供应商提供的说明书完全纯化RNA,或于-80 °C长期保存。
警告:苯酚具有腐蚀性,操作时必须在通风橱内佩戴手套和实验服。
注意:提取的RNA将用于通过逆转录(RT)后接实时定量PCR(RT-qPCR)分析检测编码SASP因子的mRNA (步骤3.2)。另一种可靠的衰老诱导检测方法是5-乙炔基-2′-脱氧尿苷(EdU)掺入实验,用于指示增殖细胞的存在。缺乏增殖信号可用于确认细胞处于静息或衰老状态。 - 将剩余细胞转移至冰上,在300 × g、4 °C条件下离心。
- 将每份细胞悬液中的0.6 × 10⁶个细胞分装至含0.2% FBS的2 mL培养基中,接种于6孔板(共两个孔,分别用于SILAC轻标记和重标记培养的细胞),置于37 °C过夜孵育。
- 弃去上清液,用1 mL预冷的PBS洗涤细胞两次,以去除培养基、胰蛋白酶以及培养基中胎牛血清带来的外源蛋白污染。
- 再次离心收集细胞,弃去上清液,随后进行细胞裂解。
- 将细胞沉淀重悬于150 µL新配制的含8 M尿素和50 mM碳酸氢铵的裂解缓冲液(表1)中,通过移液器反复吹打混匀。
- 在4 °C条件下,使用水浴超声仪对裂解液进行超声处理,总时长2.5分钟,采用30秒开/30秒关模式,中等功率。
- 将裂解液转移至预热至95 °C的金属加热块中,变性4分钟。
- 离心收集裂解液;此时裂解液可长期保存于-80 °C,或立即用于蛋白定量。
- 用裂解缓冲液将每份裂解液制备成30 µL的1:10稀释储备液。
- 使用BCA蛋白定量试剂盒测定蛋白浓度,标准曲线需用ddH2O稀释的1/10倍裂解缓冲液配制。此后裂解液可无限期保存于-80 °C。
3. 通过衰老相关β-半乳糖苷酶(SA-βGal)活性及衰老相关mRNA的RT-qPCR分析验证细胞衰老
注意:这些步骤的起始材料是在步骤 2.5 中收集的
- 从第2.5.1小步中设置的6孔板开始,使用衰老β-半乳糖苷酶染色试剂盒(Senescence β-Galactosidase Staining kit),按照制造商提供的操作说明检测细胞的SA-βGal活性。在明场下以彩色模式观察染色结果,方法如前所述36。
注意:通过比较衰老条件下与静息对照条件下SA-βGal阳性细胞(呈现可见蓝色)所占百分比来定量SA-βGal。为成功确认细胞衰老状态,SA-βGal阳性细胞比例应至少达到70%。静息对照细胞的SA-βGal阳性率应低于10%。 - 从酚相悬浮液(第2.5.2小步)中提取RNA,并通过RT-qPCR分析编码SASP因子(IL6、CXCL8、IL1B)、细胞周期标志物(CDKN2A/p16、CDKN1A/p21)以及其他衰老相关指标(LMNB1和PCNA表达降低)的mRNA水平是否升高。
注意:RNA不稳定,因此应使用无RNase的实验器材、佩戴新手套并在冰上操作,除非操作说明中另有说明。- 从酚相悬浮液开始,每1 mL酚相加入200 µL氯仿,于4 °C以12,000 × g离心15分钟。
- 小心移取水相,加入等体积的异丙醇和15 µg糖原共沉淀剂,然后在4 °C孵育10分钟以沉淀RNA。
- 孵育后,在4 °C以12,000 × g离心20分钟收集RNA沉淀,随后用与所用酚体积相等的75%乙醇洗涤。将RNA重悬于50 µL无核酸酶的去离子水中;RNA可无限期保存于-80 °C。
- 向RNA样品中加入38 µL无核酸酶的去离子水、10 µL 10× DNase反应缓冲液和2 µL DNase I,混匀。
注意:将第3.2.3小步中所有试剂按样本数量倍数配制共用混合液,以确保各样品间处理的一致性,这是最佳操作实践。 - 将经DNase I处理的RNA样品在37 °C孵育30分钟。
- 使用等体积的酚/氯仿/异戊醇(25:24:1)混合液,通过涡旋振荡并在台式离心机中以最大速度离心5分钟,去除样品中的DNase;RNA将存在于水相中。
- 重复第3.2.2和3.2.3小步操作以再次沉淀RNA。将RNA重悬于20 µL无核酸酶的去离子水中;RNA可无限期保存于-80 °C。
- 通过将0.5–1.0 µg纯化后的RNA与200 U逆转录酶、100 pMol随机引物以及含10 mM dNTP的1×反应缓冲液(由逆转录酶配套提供)共同孵育,生成cDNA;先在25 °C孵育10分钟,再在50 °C孵育30分钟,最后在85 °C灭活5分钟。
- 使用实时定量PCR(qPCR)分析来自静息对照细胞和衰老细胞的RT反应所得cDNA(第3.2.3小步),检测已知在衰老过程中表达升高(CDKN2A/p16、CDKN1A/p21、IL1B、IL6和CXCL8 mRNA)或降低(LMNB1和PCNA mRNA)的mRNA标志物水平,具体方法见其他文献描述。ACTB mRNA编码持家蛋白β-肌动蛋白(β-Actin),常用于校正上样量差异。所用引物列于表2。
注意:相对RT-qPCR分析依赖于目标引物对与参照引物对具有相同结合效率的假设。对于新设计的引物组合,应按其他文献所述方法验证该假设37。此外,参照基因在所比较的不同细胞类型之间应保持表达稳定,已有研究先前鉴定了适用于衰老细胞的多个潜在参照基因选项38。
4. 溶液中胰蛋白酶消化
注意:从此时起,必须使用质谱级的缓冲液、溶剂和化学试剂,以防止杂质在质谱分析过程中产生干扰。所有缓冲液均应由适用于液相色谱-串联质谱分析的试剂配制而成,包括水和乙腈。有关合适化学试剂和溶剂的列表,请参见材料表。
- 将每种蛋白质样品各50 µg分装至新离心管中,并用裂解缓冲液补足至相同体积。
- 向每个样品中加入DTT,使其终浓度为20 mM,以还原二硫键。
- 37 °C下振荡孵育样品30分钟,随后在室温(RT,约10分钟)冷却。
- 加入碘乙酰胺,使其终浓度为40 mM,以不可逆地烷基化上一步中还原产生的巯基。将样品置于室温避光孵育30分钟。
- 用含有50 mM碳酸氢铵的缓冲液将各样品稀释至尿素浓度低于1 M。通过移液少量样品至pH试纸检测pH是否约为8。
- 每50 µg起始蛋白质加入1 µg胰蛋白酶;若消化不同量的蛋白质,则按胰蛋白酶与蛋白质质量比1:50加入。例如,消化150 µg蛋白质时应加入3 µg胰蛋白酶。
- 37 °C下振荡孵育样品过夜,使蛋白质消化为肽段。
- 向每个样品中加入甲酸,使其终体积比为1%,以终止蛋白质消化。
注意:实验可在此处暂停。如需延迟后续操作,可将样品于-80 °C冷冻保存。
5. 使用固相萃取(SPE)进行样品净化
注意:本固相萃取方案需要使用固相萃取小柱和真空抽滤装置。在质谱分析之前,研究人员可根据需要选择其他等效的固相萃取(SPE)方案进行操作。
- 将固相萃取柱置于真空 manifold 上,每个样品使用一个萃取柱,以准备进行固相萃取(SPE)。
注:有关SPE方案中应使用的吸附剂用量,请参考生产商的指南。对于50 µg的肽样品,建议使用10 mg吸附剂的萃取柱。 - 通过向每个SPE萃取柱中加入800 µL的SPE洗脱缓冲液(表1),并使用真空抽吸使溶剂通过萃取柱,以活化萃取柱。
- 重复步骤5.2。
- 通过向每个萃取柱中加入800 µL的SPE洗涤缓冲液(表1),并使用真空抽吸使缓冲液通过萃取柱,以平衡萃取柱。
- 重复步骤5.4两次,共进行三次平衡。
- 将肽样品加载至SPE萃取柱中,并使用真空抽吸使样品通过萃取柱。
注:此时,肽已结合至萃取柱内的吸附剂上。 - 用SPE洗涤缓冲液洗涤每个萃取柱,并使用真空抽吸使缓冲液通过萃取柱。
- 重复步骤5.7两次,共进行三次洗涤。
- 在洗脱步骤之前,将收集管放置于真空 manifold 中每个萃取柱的正下方,仔细确保收集管与萃取柱对齐。
- 为洗脱肽,向每个萃取柱中加入800 µL的SPE洗脱缓冲液,并通过真空抽吸将肽洗脱至收集管中。
- 用400 µL的SPE洗脱缓冲液重复步骤5.10。
- 将肽样品从真空 manifold 上取下,并在真空浓缩仪中完全干燥(干燥约需3小时)。
注:实验可在此处暂停。如需延迟后续操作,可将样品在-80 °C下冷冻保存。
6. 数据依赖性采集(DDA)质谱分析
- 将肽样品用含有0.2%甲酸的水溶液缓冲液重悬,浓度为400 ng/µL。
- 为促进肽的重新溶解,将样品涡旋振荡5分钟,随后在水浴超声仪中进行超声处理5分钟。
- 在4 °C条件下,以15,000 × g 离心15分钟,沉淀不溶性物质。将上清液中的肽转移至质谱小瓶中。
- 按体积比1:30(iRT:样品)向每个样品中加入选定的索引保留时间(iRT)肽标准品。
- 使用液相色谱-串联质谱法(LC-MS/MS)对样品进行蛋白质组学分析。
- 采用质谱平台推荐的非靶向分析条件。示例分析参数如图3所示,配置用于Orbitrap质谱仪与纳米液相色谱系统在纳流模式下的联用分析。以下为示例操作流程。
- 将每个样品取1 µg(5 µL)上样至捕获柱(1 cm长 × 100 µm内径),并以10 µL/min流速用上样溶剂(表1)冲洗5分钟。
- 以400 nL/min的流速将样品加载至分析柱(50 cm长 × 100 µm内径)。
- 采用90分钟线性梯度洗脱肽段,流动相包括有机相(0.2%甲酸和99.8%乙腈)和无机相(0.2%甲酸溶于99.8%水),有机相比例从5%线性升至35%。
- 在数据依赖模式下采集质谱数据,连续循环进行MS1全扫描(分辨率60,000,AGC目标值3e6,最大累积时间100 ms,质量扫描范围400–1,600 m/z),随后进行20次数据依赖的MS2扫描(分辨率15,000,AGC目标值1e5,最大注入时间25 ms,隔离窗口宽度1.6 m/z),采用HCD碎裂方式(归一化碰撞能量为27%)。
- 完成所有样品的质谱采集后,将原始质谱文件导入蛋白质组学分析软件,用于肽段峰面积的鉴定与定量。
注:本实验中使用Mascot数据库搜索工具,结合UniProt人类蛋白质组数据库(经审核,蛋白质组ID:UP000005640)进行肽段和蛋白质的鉴定。Mascot中设置的搜索参数如下:- 定量方式:SILAC K+8 R+10 [MD];酶切酶:胰蛋白酶/p;固定修饰:羧氨甲基化(C)
- 可变修饰:乙酰化(蛋白质N端)、Gln->焦谷氨酸(N端Q)、甲硫氨酸氧化、Label:13C(6)15N(2)(K)、Label:13C(6)15N(4)(R)
- 肽段质量容差:10 ppm
- 碎片离子质量容差:0.08 Da
- 最大漏切位点数:2
- 未特别指定的参数均采用默认值
- 使用蛋白质组定量分析软件对重标和轻标肽段的峰面积进行定量。本实验采用免费开源的Skyline软件平台进行峰面积定量39,40。导出重标与轻标肽段的峰面积数据,用于估算蛋白质半衰期。
7. 蛋白质半衰期的计算
- 打开SILAC分析工作簿(表3),进入第一个名为1) 原始数据的工作表,将UniProt ID、基因名称、重链峰面积和轻链峰面积粘贴到指定的列中(SH = 衰老-重链,SL = 衰老-轻链,CH = 对照(静息)-重链,CL = 对照(静息)-轻链)。
- 打开第2至第4个工作表,确保UniProt ID列和基因名列与分析中鉴定出的蛋白质数量一致(本实验共鉴定出841种蛋白质)。其余各列将在拖动以覆盖所有鉴定出的蛋白质后自动填充数据。
- 打开第四个名为4) 分析的工作表,删除第G列和H列显示样本超出范围的行;保留标注为在范围内的行。第五个工作表中的火山图将自动更新生成。
结果
本方案描述了一种利用pSILAC技术并结合最少时间点,对衰老细胞与非分裂的静息对照细胞之间的蛋白质半衰期进行全局比较的方法。本方案详细说明了在培养中生成衰老细胞和静息细胞的过程,使用稳定同位素标记的精氨酸和赖氨酸对细胞进行为期3天的代谢标记,通过质谱技术定量重链与轻链肽段同位素的相对丰度,以及利用电子表格公式进行简单且易于操作的蛋白质半衰期计算(图1)。该方法具有高度灵活性,可适用于多种细胞类型和实验条件。
在本方案的衰老细胞制备过程中,采用两种方法验证细胞衰老状态:通过显微镜观察SA-βGal阳性细胞,以及利用RT-qPCR分析定量检测衰老标志物水平的升高。衰老标志物的检测结果应能清晰区分静止期细胞与衰老细胞,以确保对这两类细胞群体的比较具有有效性。在SA-βGal染色中,衰老细胞应呈现蓝色,而静止期对照细胞则无色或颜色极浅(图2A)。该检测可通过统计蓝色染色阳性细胞占总细胞数的百分比,并比较静止期对照细胞与衰老细胞之间的阳性率来进行定量分析。为保证结果可比性,两种细胞状态的检测应同时进行;由于SA-βGal活性依赖于染色液的pH值,不同实验间的检测结果可能存在较大差异,因此该方法应视为一种定性检测。
衰老标志物的RT-qPCR分析将在大多数衰老模型中显示编码SASP因子(IL6、CXCL8、IL1B)和细胞周期抑制因子(CDKN2A/p16、CDKN1A/p21)的mRNA水平显著升高。尽管根据细胞类型、培养条件和衰老诱导因素的不同,结果可能存在一定差异41,42,但大多数衰老细胞中IL6、CXCL8和CDKN1A/p21的mRNA水平较静息对照细胞升高五倍以上;相反,编码增殖标志物的LMNB1和PCNA的mRNA水平在衰老细胞中应显著降低或几乎检测不到,与静息细胞相比形成明显差异(图2B)。综上所述,SA-βGal阳性细胞占显著比例,并伴随一组衰老相关mRNA标志物的预期表达,足以证实实验中已成功诱导细胞衰老。
用于质谱分析的蛋白质样品处理包括溶液内消化(2天)和固相萃取(4-6小时)。为进行非靶向蛋白质组学分析,将所得肽段提交至液相色谱-串联质谱(LC-MS/MS)分析,并采用数据依赖性采集(DDA)模式。在Orbitrap仪器上,可通过质谱仪软件中的方法编辑器设定DDA方法。本研究中使用的质谱仪参数如图3A所示。液相色谱参数也可在方法编辑器中设定。本研究采用90分钟线性梯度洗脱,有机相(乙腈)比例逐渐升高(图3B)。成功采集后,总离子流(TIC)应在方法的线性梯度阶段显示出强烈的信号(图3C)。本方案描述了Orbitrap仪器上的一个示例流程,但蛋白质半衰期的计算可基于任何以DDA模式采集的数据进行,该模式在多种类型的仪器(例如Orbitrap和飞行时间质谱仪)及不同厂商的设备上均可实现。采集参数将根据所用仪器的类型和配置而有所不同,建议采用质谱平台推荐的设置。该方法同样适用于非DDA模式(如SRM、PRM、DIA),只要能够从原始数据文件中提取重标与轻标肽段的定量色谱峰面积,并将其输入电子表格公式即可。
使用多种可用的蛋白质组学数据库搜索工具之一对原始质谱文件进行搜索,以鉴定肽段和蛋白质。例如,本研究采用了 Mascot43 搜索引擎。为了获得用于定量重链和轻链肽段的色谱峰面积,需将数据库搜索结果导入具备色谱峰面积分析功能的蛋白质组学软件,例如 Skyline39,40。对肽段提取离子色谱图的检查(图 4)可揭示重链与轻链肽段信号的相对比例。在衰老细胞中,重链肽段信号相对于轻链肽段信号的比例较低,表明蛋白质周转速率较慢(图 4A);而重链肽段信号相对于轻链信号较高,则表明蛋白质周转速率较快(图 4B)。未标记样品应显示极少或无重链肽段信号。未标记样品中任何明显的重链肽段信号均被视为背景噪声,并将在最终计算中予以扣除。必须导出所有处理和标记条件下轻链与重链肽段的色谱峰面积定量结果,用于后续的蛋白质周转速率计算和统计分析。
通过使用单时间点分析,蛋白质半衰期的定量操作简便,可方便地在电子表格中完成。在表3中,计算了从质谱分析中鉴定出的695种蛋白质的半衰期。从各样品中每种蛋白质水平的重链与轻链同位素丰度开始(输入至1) 原始数据工作表),随后在名为2) 重链 | 重链+轻链比值的工作表中自动计算重同位素百分比(称为比值,R)。在此步骤中,通过从重标记样品的R值中减去未标记样品的R值,对静止期和衰老期三复孔的最终R值进行归一化处理。由于未标记样品不应含有外源添加的重同位素,因此用于消除背景信号。基于R值,使用以下公式计算kdeg(降解速率):
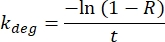
使用以下公式,针对静息对照组和衰老组的三个重复样本(工作表标题为3) 半衰期(天)),计算每种蛋白质的半衰期(H,单位:天):

然后在静息和衰老的三联样本之间对这些半衰期进行平均,从而为每种蛋白质生成一个静息状态和一个衰老状态的平均半衰期,并同时计算 p 值。接着对计算得到的半衰期进行筛选,剔除负值,这些负值出现在轻标记细胞的重信号(背景)高于重标记细胞的重信号时。经过此筛选步骤,从最初鉴定出的841种蛋白质中保留了707种具有有效半衰期的蛋白质,用于本文呈现的结果。
随后以衰老细胞与静息对照细胞的半衰期之比的 log2 值(log2FC)表示,并在火山图中绘制(图5)。例如,查看 5) Analysis 工作表 可知,凝血因子II凝血酶受体(F2R)蛋白在静息细胞中的半衰期为 0.51 天(B列),在衰老细胞中的半衰期为 1.07 天(C列),由此得到的 log2FC 约为 1.06(D列),p 值为 0.001。
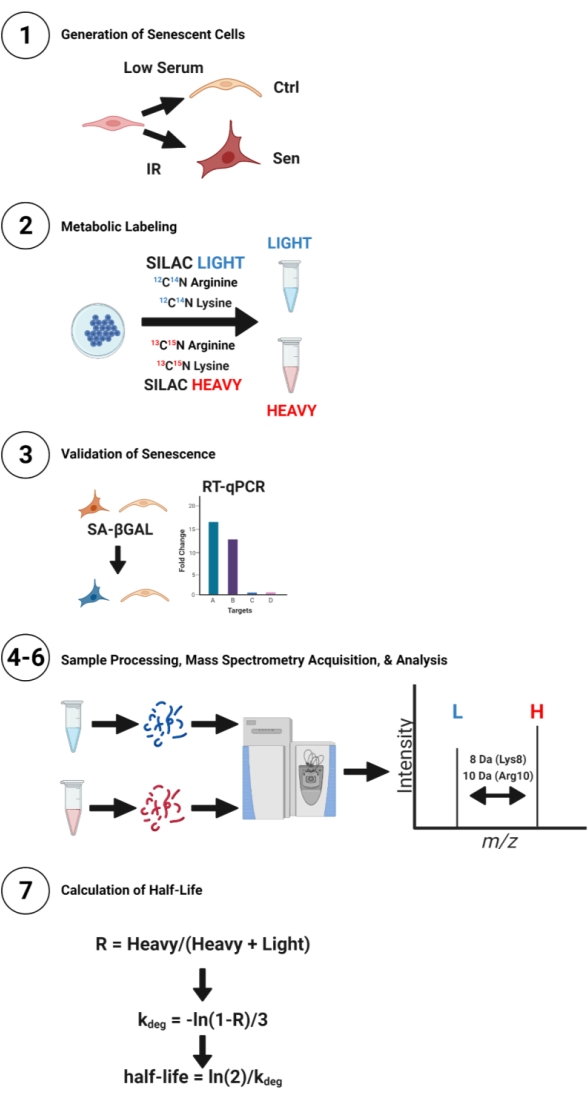
图1:用于衰老细胞与静息对照细胞的pSILAC实验流程示意图。 采用人IMR-90成纤维细胞制备静息状态(低血清诱导)或衰老状态(电离辐射诱导)的细胞培养物,用于比较蛋白质半衰期。随后,细胞在含同位素标记的精氨酸和赖氨酸的SILAC轻型或重型培养基中标记3天。从细胞中提取裂解液,进行消化、脱盐处理,并通过质谱分析。重链与轻链肽段同位素峰分别对应新合成的肽段和原有存在的肽段。蛋白质半衰期通过指数衰减公式进行计算。请点击此处查看该图的高清版本。
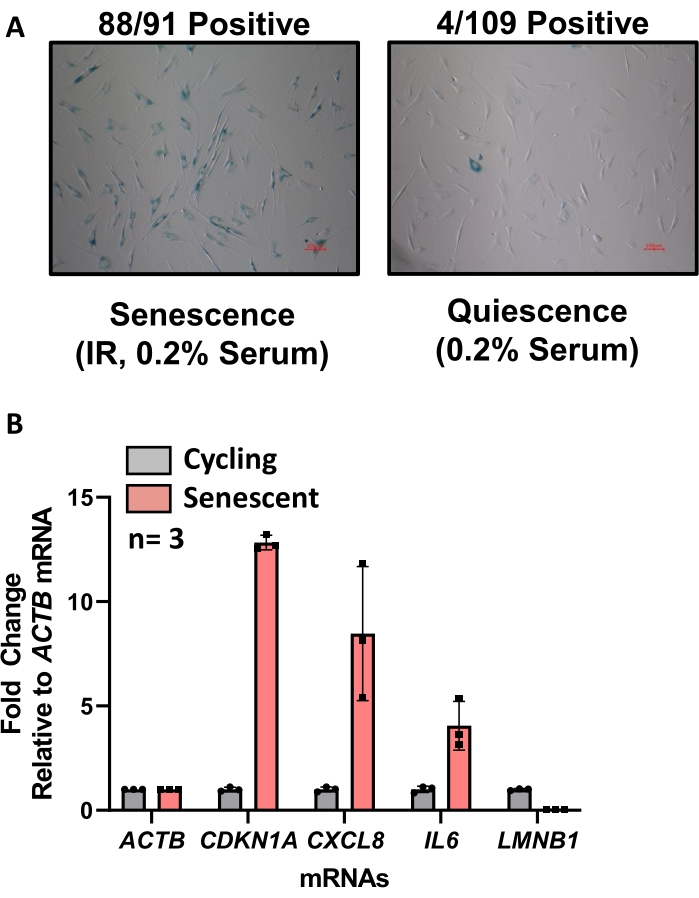
图2:通过SA-βGal染色和RT-qPCR分析验证衰老表型。(A)在收获时将衰老细胞和静息细胞重新接种至6孔板中,并使用SA-βGal染色试剂盒进行染色。细胞质内出现蓝色为衰老阳性。图像在明场下以10倍放大倍数采集,颜色成像,红色标尺表示尺寸。(B)RT-qPCR分析比较来自另一独立实验的衰老细胞(红色)与增殖细胞(灰色)。CDKN1A/p21、CXCL8 和 IL6 mRNA 水平的升高,以及 LMNB1 mRNA 水平的降低,均提示细胞处于衰老状态。请点击此处查看该图的放大版本。
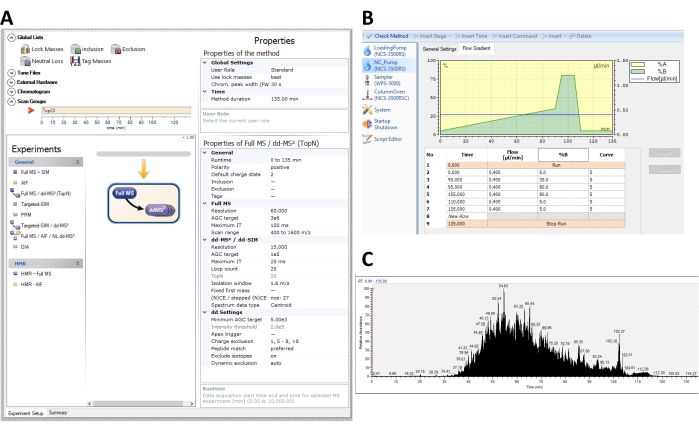
图3:在Q-Exactive HF轨道阱质谱仪上进行pSILAC培养物的数据依赖性采集(DDA)扫描和液相色谱梯度的代表性方法。(A)pSILAC实验中全细胞裂解液进行数据依赖性分析时,仪器软件中的推荐仪器设置。(B)液相色谱流速梯度方法设置示例。肽段通过90分钟的线性梯度洗脱,缓冲液B(0.2%甲酸和99.8%乙腈)比例从5%升至35%,随后用80%缓冲液B清洗10分钟,再用5%缓冲液B平衡25分钟。(C)采用指定设置获取的IMR-90成纤维细胞肽段质谱采集的代表性总离子流色谱图(TIC)。请点击此处查看该图的放大版本。
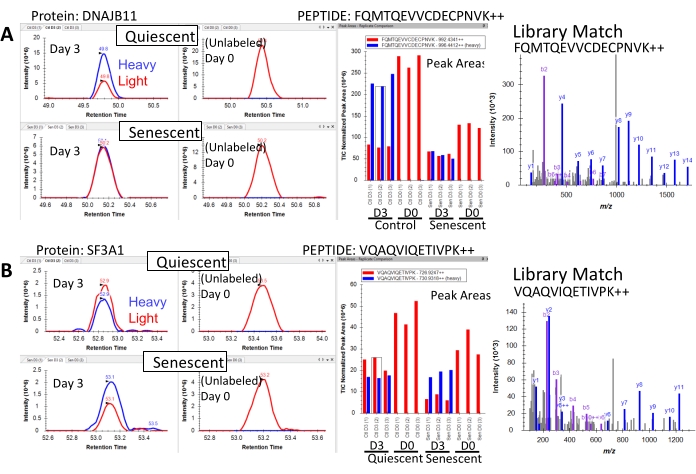
图4:衰老过程中周转率发生改变的肽段的代表性提取离子色谱图。(A)衰老细胞与非衰老细胞中来自热休克蛋白DnaJ同源物B亚家族成员11(DNAJB11)的肽段FQMTQEVVCDECPNVK++的色谱峰面积。经过3天的SILAC标记后,与静息状态(非衰老)细胞相比,衰老细胞对该肽段中重同位素的掺入量较低,表现为含重同位素肽段(蓝色)的峰面积相对于轻同位素肽段(红色)减小,表明该肽段在衰老细胞中的周转率降低。(B)衰老细胞与非衰老细胞中来自剪接因子3a亚基1(SF3A1)的肽段VQAQVIQETIVPK++的色谱峰面积。经过3天的SILAC标记后,与静息状态(非衰老)细胞相比,衰老细胞对该肽段中重同位素的掺入比例更高,表现为含重同位素肽段(蓝色)的峰面积相对于轻同位素肽段(红色)增大,表明该肽段在衰老细胞中的周转率升高。未标记(第0天)条件下,两种肽段均未检测到重同位素的掺入,符合预期。请点击此处查看该图的放大版本。
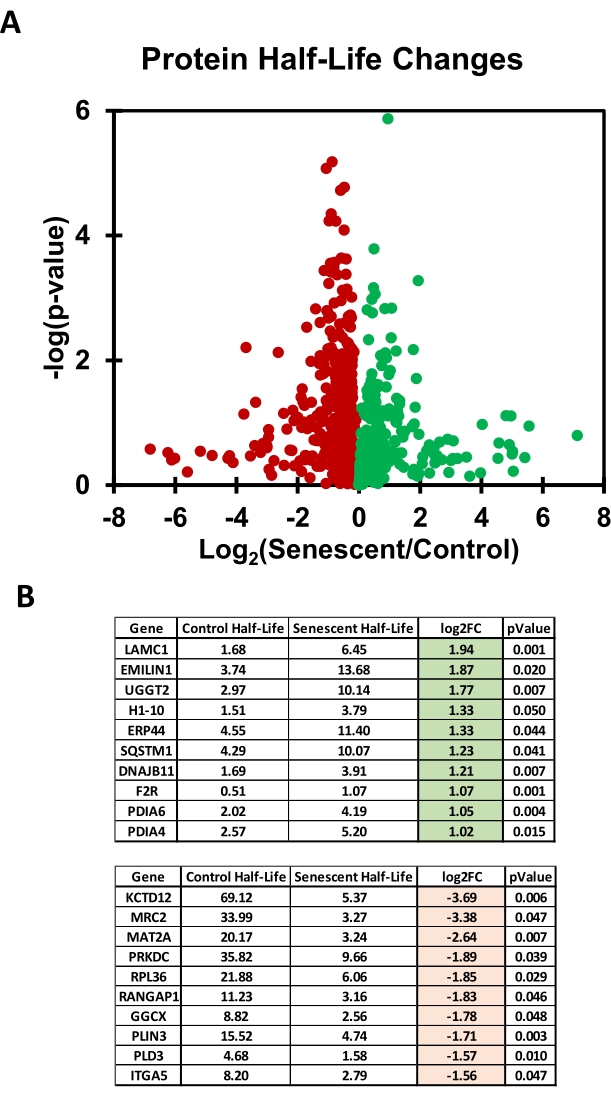
图5:通过pSILAC标记测定的衰老细胞与静息细胞中蛋白质半衰期的比较。(A)火山图显示了695种已鉴定蛋白质中每种蛋白质在衰老细胞与对照(静息)细胞之间的log2比值;本实验中,轻链和重链标记培养基均不含葡萄糖和酚红。(B)表格显示了在静息细胞相对于衰老细胞中半衰期增加或减少最显著的前10种蛋白质(分别为左、右)。请点击此处查看该图的高清版本。
表1:本实验方案中使用的培养基和缓冲液。 请点击此处下载该表格。
表2:本实验方案中使用的RT-qPCR引物。 请点击此处下载该表格。
表3:用于计算蛋白质半衰期、倍数变化和t检验的SILAC分析工作表。 请点击此处下载该表格。
讨论
pSILAC 是一种强大的技术,可实现对多种细胞条件下蛋白质周转率的全局定量。本文详细描述了使用 pSILAC 比较衰老细胞与静息细胞中全局蛋白质半衰期的方法,包括衰老细胞与静息细胞的制备、SILAC 标记与收集,以及最终通过 DDA 质谱进行分析的操作步骤。此外,还介绍了一种两步验证衰老表型的方法,即利用 SA-βGal 染色和针对一组编码衰老相关蛋白的 mRNA 进行 RT-qPCR 分析。除上述两种方法对衰老状态进行验证外,还可通过质谱分析后比较衰老细胞与静息细胞之间已知衰老标志物在蛋白质组水平上的变化,进行第三种验证。预期在衰老相关蛋白中表达升高的包括 p16、p21 和 BCL2 等,其他相关蛋白见其他文献报道。44,45在上述方案中,使用电离辐射诱导细胞衰老,使用血清饥饿法诱导细胞静息。对于细胞衰老的诱导,目前有多种可选方法,且这些方法之间存在显著异质性。41,42,46目前,尚无一种衰老检测方法被公认为 "大多数生理的"因此,衰老诱导剂的选择在很大程度上取决于实验的具体背景。然而,若实验旨在阐明关于细胞衰老的普遍现象,则建议至少使用两种不同的衰老诱导剂。本文不拟详述各类衰老研究范式,但常见的诱导衰老方法包括:引发DNA损伤(如电离辐射、阿霉素、复制性耗竭)、表达癌基因蛋白(如HRAS、BRAF)以及破坏线粒体功能。2.
除了衰老诱导剂的选择外,对照细胞的选择同样至关重要。根据定义,衰老细胞处于无限期的生长停滞状态,因此通常选择与其他生长停滞的细胞进行比较。对于pSILAC实验,一般更倾向于使用细胞周期阻滞的细胞,因为这些细胞不进行复制,从而更便于蛋白质半衰期的计算47。然而,由于培养的细胞中通常仍会残留部分分裂细胞,因此所采用的细胞周期阻滞方法应尽可能产生均一的反应,以最大限度地减少仍在增殖的细胞带来的误差。若要利用pSILAC计算处于周期性增殖细胞中的蛋白质降解速率,则需进行额外的计算,以校正蛋白质在子代细胞中被稀释的速率27。然而,静息状态的生长停滞本身也存在复杂性。细胞周期阻滞主要有两种通用方法:血清剥夺和接触抑制48。并非所有细胞都能通过接触抑制进入静息状态,尽管已有研究表明某些成纤维细胞在长时间培养数天后可表现出静息特征49。本研究采用血清剥夺法,因其在衰老细胞比较研究中更为常用,但需注意的是,为实现准确比较,衰老细胞也应处于类似的血清剥夺条件下。血清可激活mTOR复合物,因此血清剥夺除了引起细胞周期停滞外,还会在细胞内引发多种下游效应50。值得注意的是,已有研究显示,血清剥夺或mTOR抑制可导致衰老细胞的SASP(衰老相关分泌表型)减弱51,52。
在pSILAC实验中另一个需要考虑的重要问题是选择多少个时间点进行检测。本实验方案仅在一个时间点收集细胞(轻或重标记3天),这显著简化了后续分析过程。时间点的选择应根据实验目的来确定。对于全局性分析,3天时间预计能够捕获大部分蛋白质,但那些在3天内完全更新的短寿命蛋白质(轻链信号完全消失)在此时间点无法准确测定其半衰期。相反,在3天内更新极少的长寿命蛋白质也难以准确定量,通常表现为半衰期极长(可达数周),而这往往只是由于重链信号积累过少所致。由于在较短或较长的时间点上,重链与轻链肽段信号比值与新合成蛋白质百分比之间存在非线性关系,因此通过增加额外的标记时间点可提高半衰期定量的准确性。对于本实验方案中所采用的两种细胞状态之间的相对比较,近似的半衰期可能已足够;但若要提高定量精度,可增加更多时间点进行检测。
本方案描述了如何进行基于数据依赖性采集(DDA)的非靶向蛋白质周转分析。然而,蛋白质周转率的计算方法可普遍适用于任何能够获得重链与轻链肽段对相对丰度的采集策略。例如,基于二级质谱(MS2)的方法,如数据非依赖性采集(DIA/SWATH),也可成功用于周转率的计算53。此外,除本方案中所述的仪器和软件流程外,其他设备和分析流程也可用于执行DDA分析、蛋白质鉴定和蛋白质定量。当使用Skyline等蛋白质定量软件平台提取肽段峰面积时,建议在文档工作区中手动检查提取的离子色谱图,识别被错误积分的峰以及非定量峰,并相应地对文档进行整理。Skyline(skyline.ms)的在线平台提供了丰富的教程资源。
pSILAC 是目前在培养细胞中进行蛋白质半衰期全局定量的理想方法之一,因其具有优异的多重检测能力(蛋白质组覆盖度)和高通量优势。尽管 pSILAC 无法直接提供蛋白质合成或降解的速率,因为轻链与重链信号的变化是由多种因素共同作用的结果,但该方法在不同实验条件和不同细胞类型之间的比较中具有重要价值。低通量方法通常分为两类:1)使用环己酰亚胺处理细胞以阻断蛋白质合成,随后在加药后不同时间点收集细胞,监测蛋白质的衰减速率;或 2)使用蛋白质降解抑制剂处理细胞,并在加药后不同时间点取样,监测蛋白质的累积情况,从而推断其降解速率。这两种方法的局限性在于,此类处理不可避免地会引起细胞生理状态的显著改变。相比之下,pSILAC 无需对细胞进行显著干预,理论上对细胞生理状态无任何可检测的影响,因为同位素标记的氨基酸与其非同位素形式仅相差一个中子。因此,本文所描述的 pSILAC 方法为在非分裂细胞中全局测定最接近生理状态的蛋白质半衰期提供了一种简便的实验方案。
蛋白质转换的改变与衰老、衰老相关疾病、神经退行性疾病以及寿命密切相关54,55本方案描述了一种利用细胞培养中氨基酸的稳定同位素标记来检测衰老细胞中蛋白质 turnover 速率的方法,以探究这些关系。然而,已有多种类似方法可用于衰老和神经退行性病变相关研究。 体内 在小鼠等完整生物体中。事实上,这些研究强调了在年龄相关疾病背景下测量蛋白质周转率的重要性56,57,58,59.
在本研究中,核糖体蛋白和内质网驻留蛋白 分别表现为在衰老细胞中半衰期缩短和延长的两类蛋白质。尽管需要对稳态水平进行进一步分析才能得出明确结论,但这些结果进一步提示,衰老细胞可能通过缩短核糖体蛋白的半衰期来独特地调控翻译过程。未来,可应用稳定同位素标记技术研究细胞衰老与神经退行性疾病之间的关系 体内 在小鼠模型中应用将是对本方案所述同位素标记方法的有益拓展。
致谢
本工作由美国国立卫生研究院(National Institutes of Health, NIH)和衰老研究所(National Institute on Aging, NIA)院内研究计划(Intramural Research Program, IRP)资助。N.B. 得到长寿激励基金(Longevity Impetus Grants)以及膳食补充剂办公室(Office of Dietary Supplements, ODS)学者计划的支持。图1 使用 BioRender.com 创建。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乙腈(LC-MS级) | Grainger | AH015 | |
| 碳酸氢铵 | Millipore-Sigma | 9830 | |
| 抗生素-抗真菌剂(100倍浓度) | ThermoFisher | 15240062 | |
| BCA检测试剂盒 | ThermoFisher | 23227 | |
| 二硫苏糖醇(DTT) | Sigma | D9779 | |
| DMEM,高糖,含HEPES | ThermoFisher | 12430112 | |
| dNTP混合物 | ThermoFisher | R0191 | |
| 胎牛血清,经认证,热灭活 | ThermoFisher | 10082147 | |
| 甲酸 | Sigma | 27001 | |
| Gammacel 40 Exactor | Best Theratronics | 用于细胞的铯辐照仪 | |
| GlycoBlue | ThermoFisher | AM2238 | |
| 碘乙酰胺(IAA) | Sigma | I1149 | 避光保存 |
| IMR-90原代肺成纤维细胞 | ATCC | CCL-186 | |
| iRT试剂盒(索引保留时间) | Biognosys | Ki-3002-2 | 索引保留时间肽标准品 |
| 异丙醇 | ThermoFisher | 423835000 | |
| Mascot | Matrix Science | Mascot Daemon 2.8 | 蛋白质组学数据库搜索软件 |
| Maxima反转录酶(200 U/µL) | ThermoFisher | EP0742 | |
| MEM非必需氨基酸溶液(100倍浓度) | ThermoFisher | 11140050 | |
| Nano LC系统 | ThermoFisher | ULTIM3000RSLCNANO | |
| Oasis HLB固相萃取小柱 | Waters | 186000383 | |
| Orbitrap质谱仪 | ThermoFisher | Q Exactive HF Orbitrap | |
| 苯酚/氯仿/异戊醇(25:24:1),含100 mM EDTA,pH 8.0 | ThermoFisher | 327110025 | |
| 磷酸盐缓冲液(PBS) | ThermoFisher | 10010023 | |
| Pierce SILAC蛋白质定量试剂盒(胰蛋白酶)-DMEM | ThermoFisher | A33972 | |
| QuantStudio 6实时荧光定量PCR系统 | ThermoFisher | ||
| 随机六聚体引物 | ThermoFisher | SO142 | |
| 衰老相关β-半乳糖苷酶染色试剂盒 | Cell Signaling | 9860 | |
| Skyline | 华盛顿大学 | Skyline-Daily v21.2.1.424 | 免费开源的定量蛋白质组学软件。可访问www.skyline.ms获取 |
| 超声水浴仪 | Branson | CPX-952-516R | |
| TRIzol试剂 | ThermoFisher | 15596018 | 文中简称为苯酚;具有危害性 |
| TRYPle Express | ThermoFisher | 12605010 | |
| 胰蛋白酶(测序级) | Promega | V5113 | |
| TURBO DNase(2 U/µL) | ThermoFisher | AM2238 | |
| 尿素 | ThermoFisher | 29700 | |
| 水(LC-MS级) | Grainger | AH365 |
参考文献
- Hayflick, L. The cell biology of aging. Journal of Investigative Dermatology. 73 (1), 8-14 (1979).
- Gorgoulis, V., et al. Cellular senescence: Defining a path forward. Cell. 179 (4), 813-827 (2019).
- Borghesan, M., Hoogaars, W. M. H., Varela-Eirin, M., Talma, N., Demaria, M. A senescence-centric view of aging: Implications for longevity and disease. Trends in Cell Biology. 30 (10), 777-791 (2020).
- Martinez-Cue, C., Rueda, N. Cellular senescence in neurodegenerative diseases. Frontiers in Cellular Neuroscience. 14, 16(2020).
- Wissler Gerdes, E. O., et al. Cellular senescence in aging and age-related diseases: Implications for neurodegenerative diseases. International Review of Neurobiology. 155, 203-234 (2020).
- Baker, D. J., Petersen, R. C. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. Journal of Clinical Investigation. 128 (4), 1208-1216 (2018).
- Musi, N., et al. Tau protein aggregation is associated with cellular senescence in the brain. Aging Cell. 17 (6), 12840(2018).
- Ogrodnik, M., et al. Obesity-induced cellular senescence drives anxiety and impairs neurogenesis. Cell Metabolism. 29 (5), 1061-1077 (2019).
- Chow, H. M., et al. Age-related hyperinsulinemia leads to insulin resistance in neurons and cell-cycle-induced senescence. Nature Neuroscience. 22 (11), 1806-1819 (2019).
- Dehkordi, S. K., et al. Profiling senescent cells in human brains reveals neurons with CDKN2D/p19 and tau neuropathology. Nature Aging. 1, 1107-1116 (2021).
- Chinta, S. J., et al. Cellular senescence is induced by the environmental neurotoxin paraquat and contributes to neuropathology linked to Parkinson's disease. Cell Reports. 22 (4), 930-940 (2018).
- Bussian, T. J., et al. Clearance of senescent glial cells prevents tau-dependent pathology and cognitive decline. Nature. 562 (7728), 578-582 (2018).
- Zhang, P., et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nature Neuroscience. 22 (5), 719-728 (2019).
- Selkoe, D. J., Hardy, J. The amyloid hypothesis of Alzheimer's disease at 25 years. EMBO Molecular Medicine. 8 (6), 595-608 (2016).
- Wei, Z., et al. Amyloid beta protein aggravates neuronal senescence and cognitive deficits in 5xfad mouse model of Alzheimer's disease. Chinese Medical Journal (England). 129 (15), 1835-1844 (2016).
- He, N., et al. Amyloid-beta(1-42) oligomer accelerates senescence in adult hippocampal neural stem/progenitor cells via formylpeptide receptor 2. Cell Death & Disease. 4 (11), 924(2013).
- van Dijk, K. D., et al. Changes in endolysosomal enzyme activities in cerebrospinal fluid of patients with Parkinson's disease. Movement Disorders: Offical Journal of Movement Disorder Society. 28 (6), 747-754 (2013).
- Chinta, S. J., et al. Environmental stress, ageing and glial cell senescence: a novel mechanistic link to Parkinson's disease. Journal of Internal Medicine. 273 (5), 429-436 (2013).
- Coppe, J. P., et al. Senescence-associated secretory phenotypes reveal cell-nonautonomous functions of oncogenic RAS and the p53 tumor suppressor. PLoS Biology. 6 (12), 2853-2868 (2008).
- Coppe, J. P., Desprez, P. Y., Krtolica, A., Campisi, J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annual Review of Patholology. 5, 99-118 (2010).
- Acosta, J. C., et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nature Cell Biology. 15 (8), 978-990 (2013).
- Payea, M. J., Anerillas, C., Tharakan, R., Gorospe, M. Translational control during cellular senescence. Molecular and Cellular Biology. 41 (2), 00512(2021).
- Nishimura, K., et al. Perturbation of ribosome biogenesis drives cells into senescence through 5S RNP-mediated p53 activation. Cell Reports. 10 (8), 1310-1323 (2015).
- Lessard, F., et al. Senescence-associated ribosome biogenesis defects contributes to cell cycle arrest through the Rb pathway. Nature Cell Biology. 20 (7), 789-799 (2018).
- Xu, M., et al. Senolytics improve physical function and increase lifespan in old age. Nature Medicine. 24 (8), 1246-1256 (2018).
- Wiley, C. D., et al. SILAC Analysis reveals increased secretion of hemostasis-related factors by senescent cells. Cell Reports. 28 (13), 3329-3337 (2019).
- Schwanhausser, B., et al. Global quantification of mammalian gene expression control. Nature. 473 (7347), 337-342 (2011).
- Doherty, M. K., Hammond, D. E., Clague, M. J., Gaskell, S. J., Beynon, R. J. Turnover of the human proteome: determination of protein intracellular stability by dynamic SILAC. Journal of Proteome Research. 8 (1), 104-112 (2009).
- Riba, A., et al. Protein synthesis rates and ribosome occupancies reveal determinants of translation elongation rates. Proceedings of the National Academy of Sciences of the United States of America. 116 (30), 15023-15032 (2019).
- Mathieson, T., et al. Systematic analysis of protein turnover in primary cells. Nature Communications. 9 (1), 689(2018).
- Liu, T. Y., et al. Time-resolved proteomics extends ribosome profiling-based measurements of protein synthesis dynamics. Cell Systems. 4 (6), 636-644 (2017).
- Welle, K. A., et al. Time-resolved analysis of proteome dynamics by tandem mass tags and stable isotope labeling in cell culture (TMT-SILAC) hyperplexing. Molecular & Cellular Proteomics: MCP. 15 (12), 3551-3563 (2016).
- Neri, F., Basisty, N., Desprez, P. Y., Campisi, J., Schilling, B. Quantitative proteomic analysis of the senescence-associated secretory phenotype by data-independent acquisition. Current Protocols. 1 (2), 32(2021).
- Hernandez-Segura, A., Brandenburg, S., Demaria, M. Induction and validation of cellular senescence in primary human cells. Journal of Visualized Experiments: JoVE. (136), e57782(2018).
- Noren Hooten, N., Evans, M. K. Techniques to Induce and quantify cellular senescence. Journal of Visualized Experiments: JoVE. (123), e55533(2017).
- Debacq-Chainiaux, F., Erusalimsky, J. D., Campisi, J., Toussaint, O. Protocols to detect senescence-associated beta-galactosidase (SA-βgal) activity, a biomarker of senescent cells in culture and in vivo. Nature Protocols. 4 (12), 1798-1806 (2009).
- Livak, K. J., Schmittgen, T. D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 25 (4), 402-408 (2001).
- Hernandez-Segura, A., Rubingh, R., Demaria, M. Identification of stable senescence-associated reference genes. Aging Cell. 18 (2), 12911(2019).
- MacLean, B., et al. Skyline: an open source document editor for creating and analyzing targeted proteomics experiments. Bioinformatics. 26 (7), 966-968 (2010).
- Pino, L. K., et al. The Skyline ecosystem: Informatics for quantitative mass spectrometry proteomics. Mass Spectrometry Reviews. 39 (3), 229-244 (2020).
- Casella, G., et al. Transcriptome signature of cellular senescence. Nucleic Acids Research. 47 (14), 7294-7305 (2019).
- Basisty, N., et al. A proteomic atlas of senescence-associated secretomes for aging biomarker development. PLoS Biology. 18 (1), 3000599(2020).
- Perkins, D. N., Pappin, D. J., Creasy, D. M., Cottrell, J. S. Probability-based protein identification by searching sequence databases using mass spectrometry data. Electrophoresis. 20 (18), 3551-3567 (1999).
- Hernandez-Segura, A., Nehme, J., Demaria, M. Hallmarks of cellular senescence. Trends in Cell Biology. 28 (6), 436-453 (2018).
- Kohli, J., et al. Algorithmic assessment of cellular senescence in experimental and clinical specimens. Nature Protocols. 16 (5), 2471-2498 (2021).
- Hernandez-Segura, A., et al. Unmasking transcriptional heterogeneity in senescent cells. Current Biology: CB. 27 (17), 2652-2660 (2017).
- Swovick, K., et al. Interspecies differences in proteome turnover kinetics are correlated with life spans and energetic demands. Molecular & Cellular Proteomics: MCP. 20, 100041(2021).
- Marescal, O., Cheeseman, I. M. Cellular mechanisms and regulation of quiescence. Developmental Cell. 55 (3), 259-271 (2020).
- Lacorazza, H. D. Cellular Quiescence. , Springer, Humana Press. New York. (2018).
- Saxton, R. A., Sabatini, D. M. mTOR signaling in growth, metabolism, and disease. Cell. 168 (6), 960-976 (2017).
- Herranz, N., et al. mTOR regulates MAPKAPK2 translation to control the senescence-associated secretory phenotype. Nature Cell Biology. 17 (9), 1205-1217 (2015).
- Laberge, R. M., et al. MTOR regulates the pro-tumorigenic senescence-associated secretory phenotype by promoting IL1A translation. Nature Cell Biology. 17 (8), 1049-1061 (2015).
- Pino, L. K., Baeza, J., Lauman, R., Schilling, B., Garcia, B. A. Improved SILAC quantification with data-independent acquisition to investigate Bortezomib-induced protein degradation. Journal of Proteome Research. 20 (4), 1918-1927 (2021).
- Basisty, N., Meyer, J. G., Schilling, B. Protein turnover in aging and longevity. Proteomics. 18 (5-6), 1700108(2018).
- Basisty, N., Holtz, A., Schilling, B. Accumulation of "Old Proteins" and the critical need for MS-based protein turnover measurements in aging and longevity. Proteomics. 20 (5-6), 1800403(2020).
- Basisty, N., et al. Mitochondrial-targeted catalase is good for the old mouse proteome, but not for the young: 'reverse' antagonistic pleiotropy. Aging Cell. 15 (4), 634-645 (2016).
- Dai, D. F., et al. Altered proteome turnover and remodeling by short-term caloric restriction or rapamycin rejuvenate the aging heart. Aging Cell. 13 (3), 529-539 (2014).
- Karunadharma, P. P., et al. Subacute calorie restriction and rapamycin discordantly alter mouse liver proteome homeostasis and reverse aging effects. Aging Cell. 14 (4), 547-557 (2015).
- Basisty, N. B., et al. Stable isotope labeling reveals novel insights into ubiquitin-mediated protein aggregation with age, calorie restriction, and rapamycin treatment. The Journals of Gerontology. Series A, Biological Sciences and Medical Sciences. 73 (5), 561-570 (2018).
重印与许可
