本方案详细描述了从胎儿肠道组织建立类肠体(enteroid)这一三维肠道模型的过程。采用上皮生物标志物的免疫荧光成像对模型进行了表征。通过显微注射技术将细菌内毒素脂多糖(lipopolysaccharide)施加于上皮顶端,可诱导上皮通透性增加,其程度呈剂量依赖性,并通过荧光标记葡聚糖的渗漏情况进行测定。
本文内容
摘要
摘要
人源胎儿组织衍生的肠类器官正作为一种有前景的模型逐渐兴起 体外 用于研究早产儿肠道损伤的模型。类肠体具有极性,包含一个具有顶膜边界、紧密连接以及暴露于培养基的基底外侧层的管腔。肠道损伤的后果包括黏膜炎症和通透性增加。在脆弱的早产人类受试者中检测肠道通透性往往不可行。因此,一种 体外 需要一种源自胎儿组织的肠道模型,以研究早产儿的肠道损伤。类肠体(enteroids)可用于检测由紧密连接蛋白调控的上皮通透性变化。在类肠体中,肠干细胞可分化为所有类型的上皮细胞,并在由小鼠肉瘤细胞分泌的基底膜基质上形成三维结构。本文描述了从胎儿肠道组织建立类肠体的方法、利用免疫荧光成像对类肠体紧密连接蛋白进行表征的方法,以及检测上皮通透性的实验流程。由于以革兰氏阴性菌为主的菌群失调是肠道损伤的已知危险因素,本研究采用革兰氏阴性菌产生的内毒素——脂多糖(LPS),诱导类肠体产生通透性改变。将荧光素标记的葡聚糖微注射至类肠体腔内,测定连续时间点泄漏至培养基中的葡聚糖浓度,以量化细胞旁通透性的变化。实验结果表明,顶膜暴露于LPS可呈浓度依赖性地诱导上皮通透性增加。这些发现支持了以下假说:以革兰氏阴性菌为主的菌群失调参与了早产儿肠道损伤的发生机制。 关键词:类肠体,胎儿肠道组织,紧密连接蛋白,上皮通透性,脂多糖,LPS,菌群失调,早产儿,肠道损伤,免疫荧光成像,葡聚糖通透性实验
引言
早产儿暴露于频繁且长期的炎症环境中,这使其面临更高的肠道损伤风险,可能导致长期残疾或死亡1。该领域的研究面临挑战,主要由于难以在脆弱的早产儿身上开展实验。此外,缺乏合适的模型也阻碍了对早产儿肠道环境的全面研究2。现有的体外(in vitro)和体内(in vivo)模型均未能全面模拟人类早产儿的肠道环境。具体而言,单一的胎儿上皮细胞系可能无法形成紧密连接,而动物模型所表现出的炎症和免疫反应与人类早产儿存在差异。随着Wnt信号通路被发现是肠道隐窝干细胞增殖与分化的主要通路,以及新型Lgr5+组织干细胞的发现,来源于肠道组织的类器官(如小肠类器官和结肠类器官)被建立为体外(in vitro)模型3,4,5。利用该技术,可由完整的肠道组织或肠道活检样本构建并使用三维(3D)小肠类器官模型,以研究上皮细胞对肠道环境的响应6,7。
与在培养条件下生长的典型肠道细胞系不同,类肠体具有极性,其腔隙通过紧密连接蛋白相连8。这使得生长培养基可接触基底侧表面,同时可通过腔内显微注射来评估顶侧表面。此外,类肠体表现出与人体肠上皮相似的遗传、生理及免疫学特征9,10。来源于胎儿组织的类肠体可用于研究早产对上皮功能的影响。类肠体的独特特性可更紧密地模拟早产儿肠道微环境9。来源于组织的类肠体可用于检测紧密连接的完整性,既可采用单层形式,也可作为三维结构嵌入固化的基底膜蛋白混合物中。若需进行顶侧暴露,后者形式则需采用显微注射技术。在类肠体模型中测量上皮反应的方法包括通过RNA测序分析基因表达、通过酶联免疫吸附测定(ELISA)检测生物标志物,或采用高级成像技术。本文介绍的技术为利用荧光测定法测量总体通透性提供了另一种可行方案。
早产儿肠道损伤的发病机制是多因素的,其中包括肠道微生物群落的失衡。类肠体(enteroids)可为研究某些涉及上皮功能的早产儿肠道疾病(如坏死性小肠结肠炎)提供优良的模型11。类肠体表现出与人类胎儿肠道相似的特征10。在培养基中将类肠体基底外侧暴露于脂多糖(LPS)——一种由革兰氏阴性菌产生的内毒素——可诱导基因表达,从而导致炎症反应增强和肠道通透性增加7。本研究旨在评估在顶膜暴露于LPS等细菌产物后,上皮总体通透性的变化。研究结果可能有助于揭示微生物与上皮相互作用在肠道损伤发病机制中的作用。用于检测总体通透性的方法需要显微注射装置及相关操作技能。
方案
人体组织采集已获得华盛顿大学机构审查委员会(研究编号:STUDY380,临床研究编号:CR3603)的批准,并由出生缺陷研究实验室执行。出生缺陷研究实验室获得了尤妮斯·肯尼迪·施莱弗国家儿童健康与人类发育研究所资助的 NIH 项目(资助号:5R24HD000836)支持。样本来自知情同意的参与者,以去标识化形式发送,且不包含任何健康信息。小肠样本保存在冰冻的杜氏磷酸盐缓冲液(DPBS)中,并通过隔夜快递寄送至接收实验室。
1. 试剂准备
注意:试剂及货号列表请见材料表;除非另有说明,推荐体积均适用于6孔板。
- 通过将50 mg牛血清白蛋白(BSA)粉末溶解于50 mL磷酸盐缓冲液(PBS)中,并加入终浓度为100 µg/mL的广谱抗生素primocin,配制0.1%牛血清白蛋白(BSA)溶液,用于包被所有与组织或类肠体接触的塑料器皿和枪头。
- 进行BSA包被时,将未过滤的移液枪头放入50 mL锥形管中,加入足量BSA溶液以完全覆盖枪头;在培养皿表面加入1–2 mL BSA溶液覆盖其表面;或将15 mL锥形管用BSA溶液充满,在室温下孵育至少20–30分钟后再使用。
- 通过将50 mL DPBS与100 µg/mL primocin和50 µg/mL庆大霉素混合,配制DPBS 培养基。分别配制含或不含2.5 µg/mL两性霉素B的该培养基。
- 通过将2 mL类器官生长培养基、100 µg/mL primocin、10 µM Y27632和2.5 µM CHIR99021混合,配制类肠体生长培养基。每日新鲜配制,并在37 °C细胞培养箱中预热。
注意:Y27632的稀释倍数为1:250。对于CHIR99021,先将CHIR储存液以1:100比例稀释于预热的培养基中,再以1:40比例稀释于类肠体生长培养基中,以达到1:4000的最终稀释倍数。 - 通过向基础膜基质原液中加入10 µM Y27632和2.5 µM CHIR99021,配制基础膜基质混合液。为6孔板中的一个孔配制总量为285 µL、终蛋白浓度为8 mg/mL的基础膜基质混合液。
注意:基础膜基质需保持冰冻状态以维持其液态,温度升高时会凝固。原液的基础膜基质蛋白浓度决定了配制终浓度为8 mg/mL所需体积,计算公式如下:
体积1 × 浓度1 = 体积2 × 浓度2 - 通过将32%的PFA储存液以1:8比例用PBS稀释,配制4%多聚甲醛(PFA)溶液,并于室温保存。每孔类肠体固定需准备0.5 mL。
- 通过在PBS中加入5%山羊血清和0.5% Triton X-100,配制封闭缓冲液。每孔一抗孵育需准备1 mL,每孔二抗孵育需准备0.5 mL。
注意:应使用与二抗宿主物种相同的血清 - 按照各抗体生产商推荐的浓度,将一抗和二抗用封闭缓冲液稀释后备用。
- 通过将1 mg/mL储存液以1:200比例用PBS稀释,配制5 μg/mL DAPI染色液。每孔染色后的类肠体需准备0.5 mL。
- 通过将甘油以70%比例用PBS稀释,配制70%甘油溶液,并为每孔类肠体准备0.5 mL,用于将样本封片至显微镜载玻片上。
- 通过将25 mg/mL储存液以1:5比例用PBS稀释,配制5 mg/mL的FITC-葡聚糖(Fluorescein-Isothiocyanate)溶液。每例显微注射需准备20 μL。
- 通过将LPS和FITC-葡聚糖分别用PBS重悬,配制5 mg/mL LPS储存液。再将LPS和葡聚糖储存液用PBS分别稀释至0.1 mg/mL和0.5 mg/mL LPS,以及5 mg/mL FITC-葡聚糖。每例显微注射需准备20 μL。
- 通过将EGTA粉末溶于蒸馏水中配制0.2 M储存液,并用盐酸(HCl)调节pH至约8.0,配制乙二醇双(β-氨基乙基醚)四乙酸(EGTA)溶液。通过1:100稀释,用培养基配制2 mM的实验使用浓度。
2. 标本采集
- 样本收到后,须在标本采集后的24小时内完成上皮细胞的分离与接种。
3. 从完整样本中在基底膜基质内接种肠上皮细胞
注意:本实验步骤参考了密歇根大学转化组织建模实验室的改良方案12,13,14。使用富含高浓度Wnt因子的培养基可获得稳定的类肠体建立效果。一旦类肠体建立成功,继续使用含高浓度Wnt因子的相同培养基,促使类肠体形成球形结构,以便进行显微注射。
- 将肠段转移至含有冰冷的含两性霉素DPBS的60 mm × 15 mm培养皿中,冰上浸泡20分钟。在组织浸泡期间,识别小肠的不同区域(十二指肠、空肠或回肠),并用镊子和剪刀去除结缔组织和血管。根据需要使用23-25 G的小针头和3 mL注射器冲洗肠腔内容物,注意不要破坏上皮层。
- 使用解剖刀将肠段切成3-5 mm的小段,取1-2段(用于接种至6孔板中的一个孔)放入含有0.5-1 mL类器官生长培养基的35 mm × 15 mm培养皿中,置于冰上。
- 在10倍体视显微镜下,使用解剖显微剪和镊子将肠管纵向剪开。用镊子尖端轻轻刮取筋膜层上的上皮细胞,去除筋膜组织,并轻轻晃动培养皿以打散细胞团块。
- 使用剪去尖端的20 μL移液枪头,以5-10 μL为增量,将细胞和培养基转移至基底膜基质混合液中,最终配制成总体积为285 μL、基质蛋白浓度为8 mg/mL的溶液。在冰上使用剪去尖端的200 μL枪头缓慢吹打20次,使细胞与基底膜基质充分混匀。
- 将细胞-基底膜基质混合液以每条50 μL、共五条的形式滴加至预热的6孔板的一个孔中(将培养板置于温热的泡沫砖上)。将培养板放入37 °C、5% CO2的细胞培养箱中孵育10分钟,使基底膜基质聚合并凝固。
- 向已凝固的基底膜基质条所在孔中加入2 mL肠类器官生长培养基,放回细胞培养箱中继续培养。每日更换培养基以促进肠类器官生长,并每天在10倍倒置显微镜下观察肠干细胞的分化情况。
- 培养10-14天后,根据肠类器官的密度将其传代至12孔板或6孔板中的一个孔。当类器官开始旺盛生长后,改为每隔一天更换一次培养基,并以1:2的比例每5-7天传代一次。
- 在传代过程中去除未能分化为肠类器官的细胞以及基底膜基质层。如有需要,可将低代次的肠类器官冻存:使用含80%生长培养基、10%胎牛血清(FBS)和10%二甲基亚砜(DMSO)的冻存液制备冷冻储备样本。
4. 类器官的免疫荧光染色
注意:固定和染色过程需要3天。在本方案中,我们采用改良方案15对细胞核(DAPI)、上皮标志物(villin、CDX2)、溶菌酶、黏蛋白以及紧密连接蛋白(claudin 2、claudin 3、occludin、zonula occluden-1)进行了固定和染色。荧光图像由共聚焦显微镜拍摄。
- 固定
注意:此步骤通常与类肠体传代或冻存操作同时进行。- 将类肠体培养板置于冰上。吸除培养基,并用预冷的DPBS轻柔洗涤2次。
- 识别需固定和染色的类肠体。使用剪去尖端的200 μL吸头或1 µL接种环小心地将类肠体转移至12孔板中。若需使用不同抗体进行染色,应将类肠体分别置于不同的孔中。
- 尽可能使用200 μL吸头吸除液体,注意避免破坏类肠体。加入0.5 mL 4%多聚甲醛(PFA),室温孵育30分钟。期间可偶尔轻摇培养板,以促进类肠体从基底膜基质中脱离。
- 肉眼观察类肠体是否已从基底膜基质中脱离。小心吸除并弃去液体PFA,避免扰动类肠体。用PBS洗涤3次,以去除残留的PFA及基底膜基质。
注意:在体视显微镜下进行液体吸除有助于避免触碰类肠体。固定后的类肠体可在4 °C的PBS中保存最多1个月。
- 封闭
- 使用200 μL移液器小心吸除残留的PBS,避免破坏类肠体。每孔加入0.5 mL封闭缓冲液,室温孵育2小时。
- 使用200 μL移液器小心吸除并弃去封闭缓冲液,注意避免扰动类肠体。
- 抗体染色
- 在含有类肠体的各孔中加入500 µL封闭缓冲液稀释的一抗溶液。一抗中,溶菌酶(lysozyme)的稀释比例为1:100,CDX2的稀释比例为1:100,villin的稀释比例为1:50。4 °C孵育过夜。
- 次日,吸除抗体溶液,并用PBS洗涤3次,每次孵育10–15分钟。
- 针对二抗重复步骤4.3.1–4.3.2,二抗稀释比例为1:400。
- 每孔加入500 µL含5 µg/mL DAPI的PBS溶液,室温避光孵育15分钟。孵育结束后,用PBS洗涤3次,每次孵育10–15分钟。
- 封片
- 尽可能吸除PBS。用70%甘油洗涤染色后的类肠体1次。
- 使用1 µL接种环或剪去尖端的200 μL吸头将类肠体从孔板中取出,用70%甘油封片于玻璃载玻片上。
- 为保持类肠体的三维结构,需确保载玻片底部与盖玻片之间留有0.5–1 mm的间隙。可使用裁剪好的薄硅橡胶片或玻璃垫片置于载玻片与盖玻片之间以形成间隙。此时类肠体即可用于共聚焦显微镜成像。
5. 类器官显微注射的准备工作
注意:显微注射方案是根据 Hill 等人16的方案修改而成,以适应现有的资源和实验条件。部分准备工作需提前数天完成。
- 设置显微注射装置
- 根据实验目的,在生物安全柜内或洁净台面上设置显微注射装置,具体如下:配备一台体视显微镜用于观察,将带有X、Y、Z轴控制旋钮的显微操作器安装在显微镜旁的重型支架上,将微移液管夹持器安装在显微操作器臂上,用显微注射管路将微移液管夹持器连接至带有三通旋塞的注射器,再连接至气动泵,并将壁式气源连接至该泵(图1)。
- 实验使用前后,均需用70%乙醇对显微注射装置进行消毒。测试显微镜与显微操作器的摆放位置,确保符合所需的物理规格要求,包括调节各轴旋钮,以确认微移液管能够到达目标样本位置。
- 微移液管的制备
注意:请提前完成以下步骤。- 使用微移液管拉制仪将玻璃毛细管拉制成微移液管。
- 在体视显微镜下,将微移液管置于水平微移液管夹持器上(图2),聚焦于尖端,通过显微镜目镜观察,使用显微剪刀剪断尖端。每次实验应准备约10–15根尖端尺寸相近的微移液管。
- 通过吸取0.5–1 μL液体并记录排空该体积所需的泵送次数来测试尖端尺寸。测试多个不同尖端尺寸,以确定适合本实验的尺寸。合适的尖端尺寸每次泵送可释放约10–30 nL体积。
- 将剪切后的玻璃微移液管存放于洁净的盒子或管中,避免尖端受损。
注意:市面上可购买到预切好的微移液管。
- 肠类器官的制备
- 将含有大量较大且呈球形的肠类器官的培养板置于冰上。弃去旧的生长培养基,更换为新鲜培养基。
- 使用细胞刮轻轻将基底膜基质小滴从培养板上分离。在冰上左右轻轻摇晃凝胶小滴,以打碎基底膜基质,同时避免破坏肠类器官。
- 在体视显微镜下,使用剪切过的20 µL移液枪头挑选约10–15个球形肠类器官,加入基底膜基质中,配制成总体积为285 µL、蛋白浓度为8 mg/mL的混合液。
- 使用剪切过的200 µL枪头轻柔地上下吹打,使肠类器官均匀混合而不破裂。在圆形35 mm × 10 mm细胞培养培养皿或尺寸相近的培养皿中央接种五个50 µL的凝胶小滴。
- 将肠类器官凝胶小滴于37 °C孵育10分钟使其凝固,随后向培养皿中加入1 mL新鲜生长培养基。继续孵育肠类器官至少2–3天,以实现稳定生长,并使其达到适宜大小(0.5–1 µL)。
注意:应选用低壁且直径较小的培养皿,以便更易接近肠类器官,并减少生长培养基的使用体积。
- 葡聚糖-FITC及待测物质的显微注射
- 关闭通向气动泵的三通旋塞。用待注射物质(本实验中为含或不含LPS的葡聚糖-FITC)填充微移液管。
- 准备一个覆盖有透明薄膜的培养皿,在薄膜上滴加2–4个1 µL的待注射物质液滴。
- 使用显微操作器在体视显微镜观察下,将微移液管尖端移至液滴内部但位于薄膜上方。轻柔抽吸注射器,将待注射物质吸入微移液管中。
- 向微移液管中吸入2–4 µL待注射物质,并推动注射器排出尖端处的任何气泡。检查微移液管内的液体柱,确保无气泡存在。记录吸入微移液管内的注射物体积。
注意:由于含有葡聚糖-FITC,液体呈现绿色。 - 打开连接至气动泵的气源,提供约60 psi的气压。启动泵并设置泵送持续时间为10–15 ms。旋转注射器上的旋塞,使泵与微移液管之间的通路打开。
注意:较长的泵送时间可使每次泵送释放更多物质。建议在整个实验中使用相同的泵送时间和尖端尺寸相近的微移液管,以便估算注射体积。 - 从细胞培养孵箱中取出肠类器官,将培养皿放置于带盖容器内的温热泡沫砖上,以减少显微注射后对光的暴露。
- 将含有肠类器官的培养皿置于体视显微镜下,调节显微操作器旋钮,使微移液管尖端与水平面成约35°–45°角(图3)。此操作需提前练习掌握。
- 在显微镜下观察并绘制每个培养皿中肠类器官的分布图,制定计划,对每个培养皿中的约3–5个球形肠类器官进行注射。
- 当微移液管尖端接近液面时,通过显微镜目镜观察,推进尖端朝向目标肠类器官。
- 通过精确缓慢地调节Z轴旋钮推进微移液管尖端,刺穿肠类器官。当尖端穿过肠类器官表面时,其壁会先凹陷后回弹,此时应停止推进。
- 用一只脚轻踩泵踏板,向肠类器官内注入绿色的葡聚糖-FITC溶液,直至其轻微膨胀。记录泵送次数,用于计算泵送体积和葡聚糖浓度。
- 完成显微注射后,撤回微移液管尖端,移至下一个肠类器官。经过练习后,该过程可顺利进行。
- 若尖端断裂,应更换为另一根尖端尺寸相近的微移液管。为同一暴露组的所有肠类器官吸入足量的注射物质,并在更换不同注射物质时更换微移液管,以避免交叉污染。
- 将注射后的肠类器官培养皿加盖,避免光照。
- 葡聚糖-FITC的收集与测定
- 显微注射操作完成后,立即移除培养基。用新鲜生长培养基清洗两次,以去除残留的葡聚糖-FITC。加入新鲜培养基,并将此时记为显微注射后时间0点。
注意:此步骤可能需要第二人协助,以避免干扰显微注射过程。 - 在显微注射后1 h、2 h、4 h、6 h、8 h、10 h和12 h,分别从培养皿中收集200 µL培养基至不透光的0.5 mL微量离心管中,随后补充等体积的新鲜生长培养基。
注意:时间间隔可根据实验需求调整。若为基底侧暴露,更换的培养基应含有相同浓度的暴露物质。 - 将收集的培养基于4 °C保存,并在24小时内测定葡聚糖浓度。剩余培养基可于−80 °C保存,用于其他分析。在完成培养基收集后,如需进行RNA提取或成像,可收获肠类器官。
- 使用荧光酶标仪测定葡聚糖-FITC浓度。通过系列稀释构建每块酶标板的标准曲线,并拟合线性回归直线(见图4)。
- 对因更换不含葡聚糖的新鲜生长培养基而移除的含葡聚糖培养基体积进行吸光度校正,方法如下:从2 mL培养基中移除200 µL,相当于体积的10%。
2 h校正后吸光度 = (1 h吸光度 × 10%)+ 2 h实测吸光度
第一份校正后的培养基吸光度无需 校正。然后,利用标准曲线方程,根据校正后的吸光度值计算葡聚糖浓度。 - 为进行归一化处理,将每个培养皿的葡聚糖浓度除以该培养皿的总泵送次数,再乘以各培养皿中最大的总泵送次数。
注意:所有暴露处理均设三个重复(每种暴露条件三个培养皿,每皿3–5个显微注射的肠类器官)。使用Student's t检验比较不同暴露组之间的三重复平均值。
- 显微注射操作完成后,立即移除培养基。用新鲜生长培养基清洗两次,以去除残留的葡聚糖-FITC。加入新鲜培养基,并将此时记为显微注射后时间0点。
结果
我们采用密歇根大学转化组织建模实验室合作者提供的改良方案,从捐赠的胎儿回肠组织建立了类肠体细胞系12。经检测,该肠类器官细胞系为阴性 支原体 感染。类器官对villin、CDX2、溶菌酶、黏蛋白、claudin、occludin和闭合小带蛋白1(zonula-occluden 1)染色呈阳性。图5),证实其具有小肠上皮来源特征。在PBS中将4 kDa的葡聚糖-FITC(浓度为5 mg/mL)显微注射至类肠体中(图6)。测试暴露物为不同浓度的LPS(0.1 mg/mL和0.5 mg/mL),与葡聚糖-FITC混合后进行顶侧暴露。阳性对照采用2 mM EGTA,在葡聚糖显微注射后4小时加入培养基中。EGTA是一种钙螯合剂,可增加紧密连接的通透性。阴性对照仅在PBS中进行葡聚糖-FITC显微注射。对于基底侧暴露,连续收集培养基时更换的培养液含有相同浓度的暴露物(即2 mM EGTA)。结果显示,与阴性对照PBS相比,加入EGTA后培养基中葡聚糖浓度显著升高。顶侧暴露于LPS后约8小时开始,葡聚糖通透性升高,并呈浓度依赖性图7).

图1:显微注射装置示意图。 该装置包括一台体视显微镜、安装在重型钢板基座上的磁性支架中的显微操作器、连接至带有三通旋塞的注射器的微移液管持具,以及一个气动泵。墙壁供气系统提供气压,由泵调节以产生稳定的泵送体积。请点击此处查看该图的放大版本。
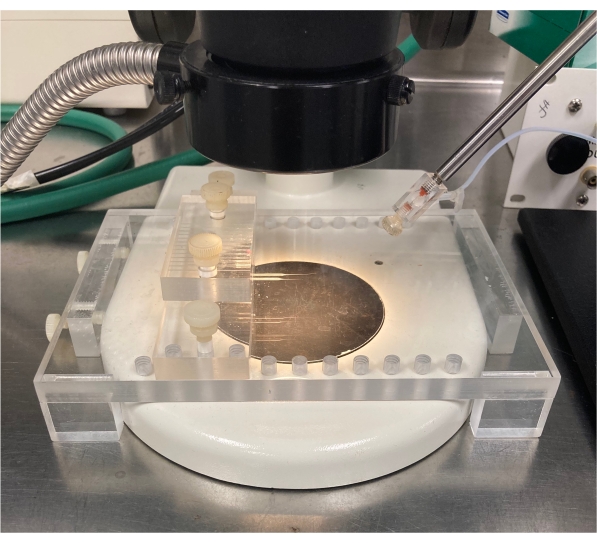
图 2:水平微电极夹持器。 该塑料平台用于在拉制玻璃毛细管后固定微电极,以便切割尖端。 请点击此处查看此图的放大版本。
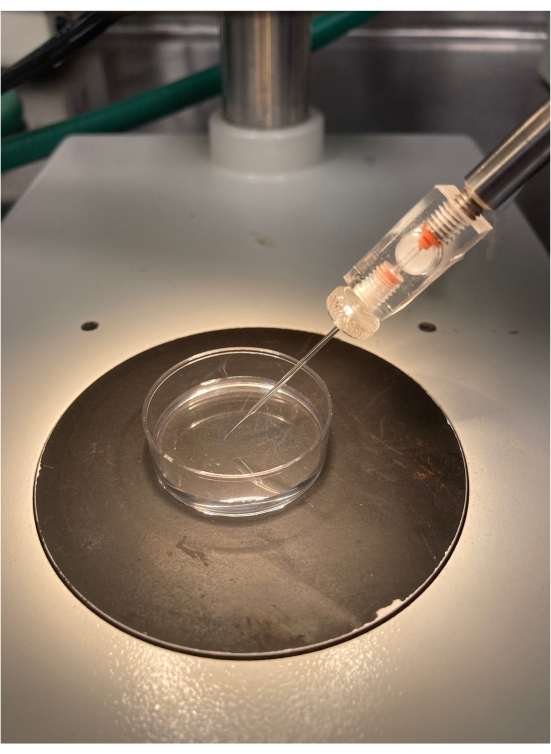
图 3:显微注射针的定位。 对位于培养皿中央的肠类器官进行注射时,35°–45°的角度最为理想。请点击此处查看该图的放大版本。
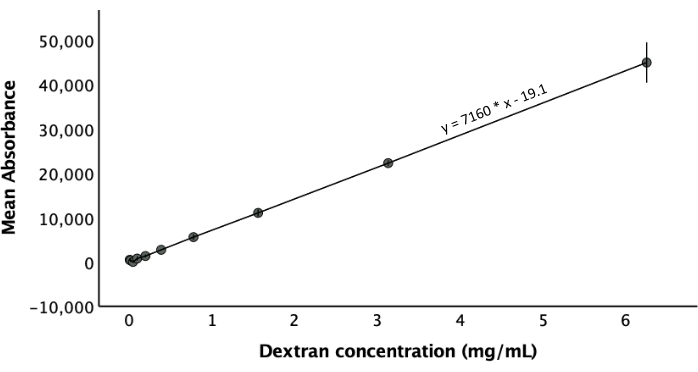
图4:葡聚糖标准曲线。 该曲线通过葡聚糖10个连续稀释浓度的荧光吸光度测定值(每个样本设两个重复)构建,并拟合线性回归直线以获得回归方程。误差线表示标准误(SEM)。请点击此处查看该图的放大版本。
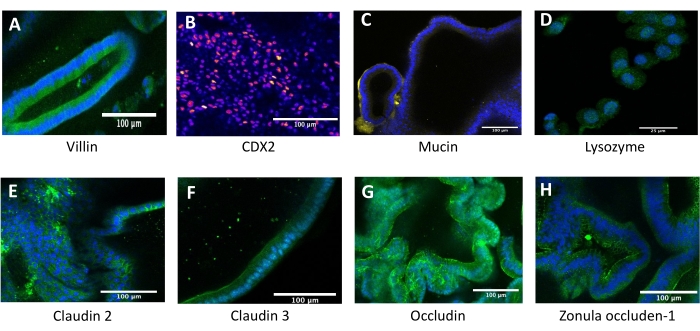
图5:类肠体的荧光生物标志物。 DAPI用于细胞核染色,呈蓝色。图中显示以下生物标志物:(A) villin,(B) CDX2,(C) lysozyme,(D) mucin,(E) claudin,(F) occludin,以及(G) zonula-occluden 1。 请点击此处查看该图的放大版本。
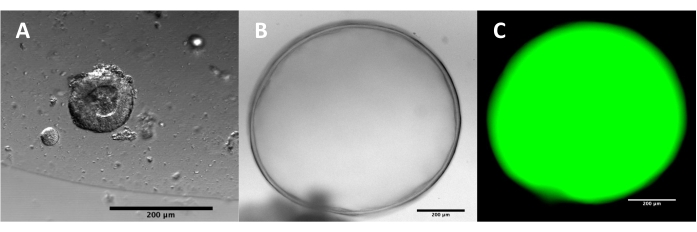
图6:不同发育阶段的肠类器官。(A)7–10天龄的肠类器官,体积较小且具有较厚的壁。(B)适合显微注射的肠类器官,体积较大,具有管腔和较薄的壁;以及(C)显微注射后2天,肠类器官内部的荧光标记葡聚糖-FITC。请点击此处查看该图的放大版本。
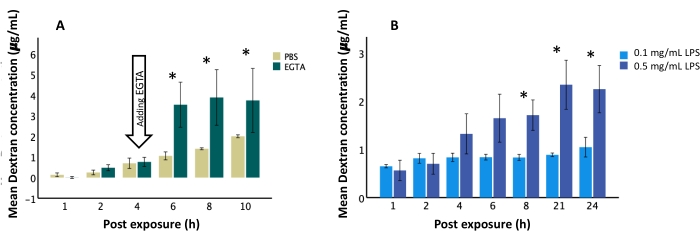
图7:显微注射后FITC标记葡聚糖的通透性。 (A)加入EGTA后,培养基中检测到的葡聚糖水平高于PBS处理组。(B)显微注射0.5 mg/mL LPS在注射后8小时开始引起比0.1 mg/mL LPS更显著的葡聚糖从类肠体腔向培养基的泄漏。*p值 < 0.05,误差线表示标准误(SEM),n = 3,采用Student t检验计算显著性差异。 请点击此处查看该图的放大版本。
讨论
本方案详细描述了从胎儿肠道组织建立类肠器官(enteroid)的方法,以及通过免疫荧光染色和上皮通透性检测对模型进行表征。采用显微注射技术,并通过连续测定培养基中渗漏的葡聚糖-FITC(dextran-FITC)浓度,来检测类肠器官的通透性。本方案的创新之处在于采用顶端暴露(apical exposure)方式,相较于在培养基中进行基底侧暴露(basolateral exposure),更接近人体肠道的生理状态7。在以往的研究中,Hill 等人采用连续成像并随时间计算荧光强度的方法16;Ares 等人则将上皮模型的基底侧膜暴露于脂多糖(LPS),随后比较细胞的基因表达模式7。相比之下,本研究采用待测试剂对顶端面进行暴露,然后通过连续测定培养基中渗漏葡聚糖的浓度,评估整体通透性的潜在变化。本方法还可通过收集细胞 mRNA,对培养基中上皮细胞产生的细胞因子进行连续比较分析,并检测基因表达。由于脂多糖(LPS)具有诱导通透性和炎症反应的能力,已被广泛用于动物及体外(in vitro)模型中肠道损伤的研究7,17。在本模型中测试 LPS 时,上皮通透性随暴露浓度的不同而出现差异。本方案可进一步拓展,用于研究其他疾病病理,方法包括使用不同的显微注射物质及不同的结果检测指标。
本方案的关键步骤包括:利用胎儿肠道组织建立肠类器官、肠类器官的表征鉴定以及显微注射技术。本研究的完整性依赖于准确的细胞取样。利用解剖学标志和血管结构有助于确保选择出小肠细胞。由于胎儿肠道干细胞具有强大的增殖与分化能力,因此无需进行复杂的分离步骤来从其他上皮细胞中纯化干细胞。在建立肠类器官后,通过蛋白和细胞标志物染色来确认模型特性的环节至关重要。在本方案中,使用villin和CDX2对肠细胞进行染色,使用溶菌酶(lysozyme)对潘氏细胞(Paneth cells)进行染色,使用黏液素(mucin)对杯状细胞进行染色,这些细胞均存在于小肠上皮内18,19,20。与仅表达单一细胞类型的传统单细胞系相比,肠类器官可由肠道前体干细胞分化形成所有类型的肠道细胞8。本方案中的染色部分可根据研究者感兴趣的特定细胞标志物进行调整。本方案可靠性的关键在于显微注射技术。可通过使用葡聚糖-FITC溶液测定每次泵注的液体体积,并在显微镜下观察针尖直径,以验证移液毛细管尖端的一致性。由于污染风险,同一根移液毛细管不得用于多次注射操作。此外,肠类器官的形态和生长状态可能受其培养基成分的影响。我们发现,相较于花椰菜状,呈球形的肠类器官更适合作为显微注射的模型。球形形态可能由培养基中较高的Wnt因子水平所诱导21。
该方案在很大程度上依赖操作者显微注射技术的熟练程度,以减少实验变异,尤其是在对时间敏感的测量中。为最大限度减少变异,应由同一位经验丰富的操作者采用一致的技术进行操作,使用相同来源的细胞以避免遗传差异,在相同的传代次数下进行实验以消除细胞成熟度偏差,并在相同类型的培养基中培养细胞以获得相似的细胞分化状态。培养基中的成分可能诱导干细胞在体外(in vitro)发生与体内(in vivo)环境不同的分化。例如,在体内(in vivo),溶菌酶直到妊娠第22至24周潘氏细胞形成并具备功能后才开始表达22。然而,我们在源自10周胎儿肠道的类肠体中已能检测到溶菌酶的表达。由于显微注射需要较高的技术要求,该方法可能限制单次实验中可测试的暴露条件数量。显微注射穿刺孔导致的葡聚糖泄漏可能影响通透性的评估结果。为消除此影响,建议在显微注射后立即进行三次洗涤,以去除操作过程中残留的葡聚糖。显微注射后4至6小时内,应每小时测定一次培养基中的葡聚糖浓度。若在注射后2至4小时内葡聚糖浓度出现显著上升,则该实验数据应从最终分析中剔除。
该方法具有多项优势。与基于transwell的类肠体衍生单层细胞相比,其成本更低,所需资源更少。此外,该方法还可拓展应用于其他暴露条件,例如活细菌或病毒,以研究肠道微生物与上皮层之间的初始相互作用。类肠体封闭的管腔可维持显微注射的活细菌稳定生长,且不会污染培养基13。与暴露于培养基和培养箱氧气环境的单层细胞不同,封闭的管腔是一个紧密且隔离的空间。这种封闭结构使得管腔与培养基之间无物质交换,且随着活菌的生长,管腔内的氧气含量随时间推移逐渐降低13。
与成人肠道干细胞或动物模型相比,使用胎儿肠道组织能更准确地再现早产儿的肠上皮结构7。此外,类肠体的极性使其能够进行顶膜和基底外侧的暴露与测量23。类肠体形成一个封闭的管腔,其氧浓度较低,更接近肠道内的实际氧浓度24。与技术上更复杂的方案相比16,本方法采用整体培养基测量,因而具有更高的可及性。实验表明,顶膜暴露于脂多糖(LPS)可诱导上皮渗漏,且具有浓度依赖性。由于该方法检测的是葡聚糖泄漏浓度的变化,因此适用于检测紧密连接的整体功能改变。对暴露后的类肠体进行信使RNA采集与测序,以及蛋白质印迹分析,可进一步补充对整体功能变化的评估。该模型在高度模拟早产环境的系统中研究肠上皮完整性,因此可用于深入理解早产儿肠道损伤及其他疾病病理机制。
披露
所有作者均声明不存在任何需要披露的利益冲突。
致谢
我们感谢华盛顿大学出生缺陷研究实验室的 Ian Glass 博士及工作人员分享胎儿组织。同时,我们还感谢密歇根大学转化组织建模实验室的 Michael Dame 博士和 Jason Spence 博士在整个过程中给予的无私支持与指导。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 两性霉素 250 μL/mL | Gibco | 15-290-026 | |
| 抗-CDX-2 [CDX2-88] 0.5 mL 浓缩液 小鼠 IgG 单克隆抗体 | Biogenex | MU392A-5UC | |
| 抗Claudin 2抗体(ab53032) | abcam | ab53032 | |
| 抗Claudin 3抗体(ab15102) | abcam | ab15102 | |
| 兔源抗LYZ抗体 | Millipore Sigma | HPA066182-100UL | |
| 抗黏蛋白2/MUC2抗体(F-2):sc-515032 | Santa Cruz | sc-515032 | |
| 抗Villin抗体,克隆号VIL1/4107R,0.5 mL 浓缩液,兔源IgG单克隆抗体 | Biogenex | NUA42-5UC | |
| 牛血清白蛋白(BSA) | Millipore Sigma | A8806 | |
| 细胞培养板,CytoOne 12 孔未经处理板 | USA Scientific 公司 | 50-754-1395 | |
| 细胞培养板,CytoOne 6孔未处理板 | USA Scientific 公司 | 50-754-1560 | |
| 配备15 mL离心管桶的离心机 | Eppendorf | 05-413-110 | |
| CHIR 99021 | Tocris Bioscience | 4423 | |
| 共聚焦显微镜 | 奥林巴斯 FV1200 | N/A | 或类似的显微镜 |
| 15 ml 锥形离心管 | Falcon | 05-527-90 | |
| 显微镜载玻片用盖玻片 | Fisher Scientific | 12-544-DP | |
| 一次性手术刀 | Mopec | 22-444-272 | |
| Dmidino-2-苯基吲哚(DAPI)溶液(1 mg/mL) | Fisher Scientific | 62248 | |
| 杜氏磷酸盐缓冲液(DPBS,1×) | Fisher Scientific | AAJ67802K2 | |
| 乙二醇双(β-氨基乙基醚-N,N,N′,N′四乙酸四钠盐(EGTA) | 默克生命科学 | E8145-10G | |
| 4 kDa 异硫氰酸荧光素葡聚糖(Dextran-FITC) | 默克生命科学 | 46944 | |
| 荧光微孔板读板仪 | 安捷伦 BioTek | Synergy HTX | |
| 庆大霉素 50 mg/mL | Gibco | 15-750-060 | |
| 玻璃毛细管,单通道硼硅酸盐,1×0.5 mm,6" (拉出前先对半剪断) | A-M 系统 | 626500 | |
| 山羊抗小鼠 IgG(H+L)高交叉吸附二抗,Alexa Fluor Plus 594 | Fisher Scientific | A32742 | |
| 山羊抗兔IgG(H+L)高交叉吸附二抗,Alexa Fluor Plus 488 | Fisher Scientific | A32731 | |
| 山羊血清 | Fisher Scientific | 16210064 | |
| ImageJ 软件 | 美国国立卫生研究院 | N/A | https://imagej.nih.gov/ij/download.html |
| IntestiCult 类器官生长培养基(人源) | 干细胞 技术 | 06010 | |
| 脂多糖来自 大肠杆菌 O111:B4 | Millipore Sigma | L4391-1MG | |
| 磁力架 | World Precision Instruments | M10 | |
| Matrigel 基底膜基质,不含 LDEV,10 mL | 康宁 | 354234 | 蛋白浓度 > 9 mg/mL 为宜 |
| 微型镊子 | Fisher Scientific | 13-820-078 | |
| 微型剪刀 | Fisher Scientific | 08-953-1B | |
| 显微操作仪 | World Precision Instruments | M3301 | |
| 微移液管拉制仪 | World Precision Instruments | SU-P1000 | 或类似设备 |
| 显微镜载玻片 | Fisher Scientific | 22-034486 | |
| 紧密连接蛋白occludin多克隆抗体 | Fisher Scientific | 71-1500 | |
| 32% 甲醛水溶液 | 电子 显微科学 | RT 15714 | |
| 培养皿,35×10 mm | Fisher Scientific | 150318 | |
| 培养皿,60×15 mm | Fisher Scientific | 12-565-94 | |
| 磷酸盐缓冲液(PBS) | Fisher Scientific | 10010031 | |
| PicoPump 脚踏开关 | World Precision Instruments | 3260 | |
| 移液器吸头,非滤芯式,1000 μL | Fisher Scientific | 21-402-47 | |
| 20 µL非滤芯移液器吸头 | Fisher Scientific | 21-402-41 | |
| 200 µL 吸头,无滤芯 | Fisher Scientific | 21-236-54 | |
| 气动PicoPump系统 | World Precision Instruments | SYS-PV820 | 或类似的皮升泵系统 |
| Primocin 50 mg/mL,10×1 ml 小瓶 | InvivoGen | ant-pm-1 | |
| 钢制底板 | 世界精密仪器公司 | 5052 | |
| 体视显微镜 | 蔡司 Stemi 350 | 或类似的显微镜 | |
| ThermoSafe PolarPack 泡沫砖 | Sonoco | 03-531-53 | |
| Triton X-100 | Millipore Sigma | T8787 | |
| 壁挂式空气供应 | N/A | N/A | |
| Y-27632 二盐酸盐 | Tocris Bioscience | 1254 | |
| ZO-1 多克隆抗体 | Fisher Scientific | 61-7300 |
参考文献
- Humberg, A., et al. Preterm birth and sustained inflammation: Consequences for the neonate. Seminars in Immunopathology. 42 (4), 451-468 (2020).
- Kim, J., Koo, B. K., Knoblich, J. A. Human organoids: Model systems for human biology and medicine. Nature Reviews Molecular Cell Biology. 21 (10), 571-584 (2020).
- Pinto, D., Gregorieff, A., Begthel, H., Clevers, H. Canonical Wnt signals are essential for homeostasis of the intestinal epithelium. Genes & Development. 17 (14), 1709-1713 (2003).
- Barker, N., et al. Identification of stem cells in small intestine and colon by marker gene Lgr5. Nature. 449 (7165), 1003-1007 (2007).
- Sato, T., et al. Single Lgr5 stem cells build crypt-villus structures in vitro without a mesenchymal niche. Nature. 459 (7244), 262-265 (2009).
- Mahe, M. M., Sundaram, N., Watson, C. L., Shroyer, N. F., Helmrath, M. A. Establishment of human epithelial enteroids and colonoids from whole tissue and biopsy. Journal of Visualized Experiments. (97), e52483(2015).
- Ares, G. J., Buonpane, C., Yuan, C., Wood, D., Hunter, C. J. A novel human epithelial enteroid model of necrotizing enterocolitis. Journal of Visualized Experiments. (146), e59194(2019).
- Stewart, C. J., Estes, M. K., Ramani, S. Establishing human intestinal enteroid/organoid lines from preterm infant and adult tissue. Methods in Molecular Biology. 2121, 185-198 (2020).
- Finkbeiner, S. R., et al. Transcriptome-wide analysis reveals hallmarks of human intestine development and maturation in vitro and in vivo. Stem Cell Reports. 4 (6), 1140-1155 (2015).
- Senger, S., et al. Human fetal-derived enterospheres provide insights on intestinal development and a novel model to study necrotizing enterocolitis (NEC). Cellular and Molecular Gastroenterology and Hepatology. 5 (4), 549-568 (2018).
- Alganabi, M., Lee, C., Bindi, E., Li, B., Pierro, A. Recent advances in understanding necrotizing enterocolitis. F1000 Research. 8, (2019).
- Dame, M. K., et al. Human colonic crypts in culture: Segregation of immunochemical markers in normal versus adenoma-derived. Laboratory Investigation. 94 (2), 222-234 (2014).
- Hill, D. R., et al. Bacterial colonization stimulates a complex physiological response in the immature human intestinal epithelium. eLife. 6, 29132(2017).
- Tsai, Y. H., et al. A method for cryogenic preservation of human biopsy specimens and subsequent organoid culture. Cellular and Molecular Gastroenterology and Hepatology. 6 (2), 218-222 (2018).
- Su, K., Asbrock, N., Chu, V., Hoffmann, S., Hewitt, P. In Vitro Differentiation of Human iPS Cells Into Colon Organoids in Serum-Free Cell Culture Conditions. Technology Networks. , https://www.technologynetworks.com/cell-science/white-papers/in-vitro-differentiation-of-human-ips-cells-into-colon-organoids-in-serum-free-cell-culture-328450 (2019).
- Hill, D. R., Huang, S., Tsai, Y. H., Spence, J. R., Young, V. B. Real-time measurement of epithelial barrier permeability in human intestinal organoids. Journal of Visualized Experiments. (130), e56960(2017).
- Schoultz, I., Keita, A. V. The Intestinal Barrier and Current Techniques for the Assessment of Gut Permeability. Cells. 9 (8), 1909(2020).
- Kumar, N., et al. The lineage-specific transcription factor CDX2 navigates dynamic chromatin to control distinct stages of intestine development. Development. 146 (5), (2019).
- Walker, R. W., Clemente, J. C., Peter, I., Loos, R. J. F. The prenatal gut microbiome: Are we colonized with bacteria in utero. Pediatric Obesity. 12, Suppl 1 3-17 (2017).
- Spence, J. R., et al. Directed differentiation of human pluripotent stem cells into intestinal tissue in vitro. Nature. 470 (7332), 105-109 (2011).
- Shin, W., et al. Spatiotemporal gradient and instability of Wnt induce heterogeneous growth and differentiation of human intestinal organoids. iScience. 23 (8), 101372(2020).
- Lueschow, S. R., McElroy, S. J. The Paneth cell: The curator and defender of the immature small intestine. Frontiers in Immunology. 11, 587(2020).
- In, J. G., Foulke-Abel, J., Clarke, E., Kovbasnjuk, O. Human colonoid monolayers to study interactions between pathogens, commensals, and host intestinal epithelium. Journal of Visualized Experiments. (146), e59357(2019).
- Dheer, R., Young, V. B. Stem-cell-derived models: Tools for studying role of microbiota in intestinal homeostasis and disease. Current Opinion in Gastroenterology. 37 (1), 15-22 (2021).
重印与许可
