Salmonella 可侵入并在肠上皮细胞内增殖,其增殖位置既包括 Salmonella 特异性液泡,也包括细胞质中(超增殖)。本文介绍了一种基于高通量荧光显微镜的实验方案,通过 ImageJ 进行两种互补的图像分析,可在单细胞分辨率下定量分析 Salmonella 的细胞内表型并进行评分。
本文内容
摘要
摘要
Salmonella 是一种肠道病原体,能够侵入肠上皮并在肠上皮细胞内复制,既可在 Salmonella 特异性液泡内复制,也可在胞质中自由复制(即胞质内超量复制)。这两种不同的细胞内复制表型导致不同的致病途径:胞质内超量复制可诱导炎性细胞死亡并促使细胞脱落至肠腔,而液泡内复制则介导跨上皮层穿透并引发系统性播散。为研究 Salmonella 在感染细胞内的行为,研究者已开发出多种显微成像工具,例如 pCHAR-Duo 荧光报告质粒,该质粒可通过 mCherry 与 GFP 的差异表达区分位于液泡内与胞质中的细菌。然而,目前细胞内表型的分析多依赖人工评分,这一过程耗时较长,限制了对大量样本和细胞的分析。为克服上述局限,本研究利用 ImageJ(一种免费的图像分析软件)开发了两种互补且自动化的图像分析方法。在高通量实验流程中,采用 96 孔板对上皮细胞进行携带 pCHAR-Duo 质粒的 Salmonella 感染,并使用自动化荧光显微镜进行成像。随后,应用两种图像分析方法,在不同精细程度上评估 Salmonella 在细胞内的行为。第一种方法用于测定总体细胞内细菌载量及胞质内超量复制的程度,其分析速度快,可对大量细胞和样本进行评分,适用于高通量筛选实验。第二种方法则进行单细胞分析,用于确定感染细胞的比例、Salmonella 的平均液泡内载量以及胞质内超量复制速率,从而更详细地揭示 Salmonella 在上皮细胞内的行为特征。这些实验流程可通过专门设计的 ImageJ 脚本实现,以自动批量分析 Salmonella 与肠上皮细胞相互作用的关键步骤。
引言
沙门氏菌 是欧盟报告中最常引起食源性疾病暴发的细菌性病原体1. 该病的主要病理表现为 沙门氏菌 感染表现为肠炎,这是病原体经摄入后在肠道内活动并引发局部炎症反应的结果2。然而, 沙门氏菌 也可扩散至肠外部位并引起全身性感染,尤其在免疫功能低下个体中。相互作用的类型取决于 沙门氏菌 肠道上皮影响感染的结局。一旦进入肠腔, 沙门氏菌 侵入并在肠上皮细胞内复制。在细胞内水平, 沙门氏菌 可表现出两种不同的复制表型,即细胞质内的超复制和液泡内的缓慢复制 沙门氏菌含液泡(SCVs)。细胞质中的超量复制会诱导炎症性宿主细胞死亡 沙门氏菌 向肠腔挤出3液泡内复制导致跨上皮侵入及系统性扩散4因此,入侵程度以及液泡内与细胞质内的复制情况会影响感染的进程。
属 沙门氏菌 具有高度多样性,包含数千种血清型,其宿主范围及致病能力各不相同。例如, S. 鼠伤寒沙门菌被定义为一种泛嗜性血清型,因其可感染多种不相关的宿主,是引起人类沙门菌病的主要病因之一。而相比之下, S德比(Derby)被认为是一种适应猪的血清型,因其主要从猪体内分离得到,但也位列引起人类感染的前五大血清型之一。1然而,关于细菌在上皮细胞内行为的知识基本上仅限于少数参考菌株的研究,因为 S. 鼠伤寒沙门氏菌 SL1344,不能代表自然界中广泛的自然多样性 沙门氏菌 致病性。表征不同菌株之间的相互作用 沙门氏菌 上皮细胞的相互作用将有助于理解它们不同的致病性。因此,开发了一种基于高通量荧光显微镜的实验方案,以快速且在很大程度上自动化的方式分析大量菌株的胞内行为。在本方案中,上皮细胞的感染在96孔成像板中进行,并使用自动化的荧光显微镜进行图像采集。pCHAR-Duo质粒用于观察入侵和复制表型 沙门氏菌 通过荧光显微镜观察上皮细胞内的情况5该质粒携带编码红色荧光报告蛋白mCherry的基因,该基因在所有转化的细菌细胞中组成型表达;同时还携带编码绿色荧光报告蛋白GFP的基因,其表达由真核细胞胞质中特异性存在的葡萄糖-6-磷酸激活,而葡萄糖-6-磷酸在SCV中不存在。因此,该质粒可通过mCherry和GFP报告蛋白的差异性表达,区分位于液泡内和胞质中的细菌。
显微镜图像中液泡内和胞质内的细菌通常通过手动评分进行定量6,但这种方法耗时较长,限制了分析的样本数量。因此,开发了两种互补的自动化图像分析方法——面积分析和单细胞分析,所用软件为免费提供的图像分析工具 ImageJ7。面积分析利用每个显微图像中上皮细胞、红色和绿色Salmonellae所占据的区域数据,来测量总体的胞内细菌载量以及胞质内超复制的程度。该方法适用于低倍镜下获取的图像,因此仅需少量图像即可对大量上皮细胞进行评分,从而缩短图像采集时间。单细胞分析则通过细胞分割技术,在单细胞分辨率水平上确定被感染细胞的比例、平均液泡内细菌载量,以及发生胞质内超复制的感染细胞所占比例。
本方案中,图像分析的全部步骤均详细描述为手动操作,但也可通过我们专门设计的 ImageJ 脚本实现自动化。这些脚本还支持批量分析,可自动处理多幅图像,从而加快方法的执行速度。
方案
1. 上皮细胞的感染 沙门氏菌 携带 pCHAR-Duo 报告质粒
注意:建议使用多通道移液器。
- 在使用前立即用胶原蛋白包被带有黑色壁和扁平玻璃底的96孔成像板。
- 在通风橱中,将冰醋酸(17.4 M)用无菌去离子水稀释,制备20 mM醋酸溶液。在无菌条件下,使用孔径为0.2 µm的注射器滤器过滤该溶液,并将溶液置于0–4 °C的冰架上5分钟。
- 将3 mg/mL的胶原蛋白储备液用预冷的20 mM醋酸溶液稀释至50 µg/mL。通过倒置混合10次,然后每孔加入30 µL胶原蛋白溶液(相当于5 µg胶原蛋白/cm2),并将溶液保持在0–4 °C的冰架上,以防止胶原蛋白凝胶化。
- 确保各孔底部完全被胶原蛋白覆盖,然后将培养板置于室温(RT)下的层流环境中静置1小时。
- 轻轻吸除溶液,并用30 µL磷酸盐缓冲液(PBS)洗涤三次。使用多通道100 µL或50 µL移液器,避免胶原蛋白脱落。
- 在感染前20–24小时,将INT407上皮细胞接种于胶原蛋白包被的成像板中进行培养。
- 常规在25 cm2培养瓶中使用含10%胎牛血清(FBS)的最低必需培养基进行INT407细胞培养,该培养基以下简称培养基(CM),并添加青霉素100 U/mL和链霉素100 µg/mL(Pen/Strep)。
- 用5 mL PBS清洗INT407培养瓶两次,然后在37 °C、5% CO2 湿润环境中,使用1 mL胰蛋白酶-EDTA溶液消化细胞3–5分钟(感染前20–24小时)。计数细胞,并用CM制备成3 × 10⁵ 个细胞/mL的细胞悬液。
- 在胶原蛋白包被的成像板中每孔加入100 µL细胞悬液,以达到100%汇合度。在37 °C、5% CO2湿润环境中孵育1小时以促进细胞贴壁。随后每孔加入100 µL CM,并在37 °C、5% CO2湿润环境中继续孵育20–24小时,直至进行感染(步骤1.4)。
注意:为了对细胞内细菌进行成像,Salmonella菌株被转化携带了由Dr. Olivia Steele-Mortimer惠赠的pCHAR-Duo报告质粒。本实验所用菌株的选择旨在代表本方案涵盖的表型多样性,并用于验证第4节中的图像分析。有关本研究中所用菌株的更多细节,请参见代表性结果部分。
- 制备携带pCHAR-Duo报告质粒的Salmonella菌株的静止期培养物。
- 用10 µL移液器吸头取少量Salmonella甘油保存菌种,接种至1 mL LB培养基(每升含10 g胰蛋白胨、5 g酵母提取物和10 g氯化钠)中,并添加100 µg/mL氨苄青霉素。
- 将接种物在37 °C静置培养20小时,直至进入生长静止期,此时菌液浓度约为~1 × 10⁹ 菌落形成单位(CFU)/mL8。
- 用Salmonella感染INT407上皮细胞。
注意:感染实验设三个重复。- 用200 µL PBS/孔轻轻洗涤INT407细胞。
- 将Salmonella过夜培养物用CM稀释,制备感染接种液,使每个上皮细胞对应的CFU数达到预定值,即感染复数(MOI)。本实验中采用MOI为100。
- 每孔接种200 µL,然后用透气密封膜封板,在37 °C、5% CO2湿润环境中孵育1小时。接种时刻定义为感染时间零点。
- 吸除接种液,用200 µL PBS/孔轻轻洗涤,然后每孔加入含100 µg/mL庆大霉素的CM 200 µL。用透气密封膜封板,于37 °C、5% CO2湿润环境中继续孵育1小时。
- 吸除含100 µg/mL庆大霉素的CM,用200 µL PBS/孔轻轻洗涤,然后每孔加入含10 µg/mL庆大霉素的CM 200 µL,用透气密封膜封板,于37 °C、5% CO2湿润环境中继续孵育8小时。
2. 样品固定与上皮细胞染色
注意:样品需避免直接暴露于光线下。体积数值针对96孔板的孔位给出。若使用不同规格的细胞培养板或其他支撑材料,需对体积进行优化。
- 感染后8小时,移除培养基(CM),并用200 µL/孔的PBS轻轻洗涤三次。将培养板倒置在吸水纸上以去除PBS;避免抽吸。
- 用每孔100 µL含4%多聚甲醛(PFA)的PBS溶液在室温下固定感染的单层细胞20分钟。移除4% PFA,再用每孔200 µL的PBS洗涤三次。培养板可在4 °C下最多保存16–24小时。随后进行下一步操作。
- 对上皮细胞进行染色。
注意:DAPI(4′,6-二脒基-2-苯基吲哚)DNA染色(步骤2.3.1)用于区域分析,仅对细胞核进行染色;高内涵筛选(HCS)染色(步骤2.3.2)用于单细胞分析,对整个上皮细胞进行染色。也可使用其他细胞染料,但需优化图像采集与分析条件。- 区域分析:每孔加入100 µL DAPI(PBS中300 nM溶液),室温避光孵育5分钟。
- 单细胞分析:每孔加入100 µL含0.1× Triton的PBS溶液,室温透化处理15分钟。用PBS洗涤三次后,每孔加入100 µL HCS染料(用PBS按1:2000稀释),室温避光孵育30分钟。
- 移除染色液,用每孔200 µL的PBS洗涤三次。每孔加入50 µL PBS,用于自动图像采集。
使用自动化荧光显微镜进行图像采集
注意:此处步骤3.1.1的区域分析采用低倍镜(10x/0.3 NA,1 µm/像素物镜),步骤3.1.2的单细胞分析采用高倍镜(40x/0.75 NA,0.255 µm/像素物镜)进行图像采集。也可使用其他放大倍数,但需对图像采集与分析进行优化。若所用显微镜支持,建议以拼接区域(Tile Regions, TRs)方式采集图像。 "嵌合体" 通过称为“图块”的连续视野来记录大范围样本区域。将自动对焦设置在TR的中心,而不是为每个图块单独设置,以减少自动对焦过程中对样本的曝光。
- 使用细胞染色通道(HCS染料的蓝色通道和DAPI核染色)的软件自动对焦功能确定参考z位置。在细胞染色通道(465 nm,细胞或细胞核)、pCHAR-Duo报告系统mCherry通道(610 nm,细胞内沙门菌)和GFP通道(509 nm,胞质内超复制沙门菌)中采集图像。
- 面积分析:图像 ≥104 细胞/技术重复(即建议每个技术重复包含至少三个重复,每个重复对应四个图块/孔),在10倍放大倍数下进行。
注意:单个z平面足以同时成像含有液泡的细胞和含有细胞质内超复制的细胞 沙门菌 在10倍放大倍数下。 - 单细胞分析:在40倍放大倍数下,每个技术重复(technical replicate)需成像至少1,000个细胞(建议每个技术重复包含至少两个技术重复,每个重复对应每孔16个视野)。需要采集多个z平面图像,以同时捕获含有液泡样结构的细胞和含有细胞质内超复制结构的细胞。 沙门菌定义最佳的z轴层厚(建议采用3.85 µm的z轴扫描范围,以0.55 µm为间隔获取8个z平面),用于成像感染了胞质内超复制型病原体的INT407细胞 沙门菌 (40倍物镜下)。每个z平面此后用n/8表示,其中n介于1(对应最底部的z平面)和8(对应最顶部的z平面)之间。
- 面积分析:图像 ≥104 细胞/技术重复(即建议每个技术重复包含至少三个重复,每个重复对应四个图块/孔),在10倍放大倍数下进行。
- 每次采集的输出均为一个名为 Acquisition.czi 的文件,其中包含所有视野、通道和 z 平面的图像。如果采集了 TR,则使用单个 Acquisition.czi 文件作为拼接方法的输入,将图块融合以获得每个 TR 的整体图像。
4. 使用 ImageJ 进行图像分析
注意:步骤 4.1 和步骤 4.2 是专门为上述实验与数据采集设计的。其他实验设置可能需要对分析进行优化。此处描述的是对单个 Acquisition.czi 文件的分析。如需批量分析,请参见作为补充文件提供的单细胞分析脚本和区域分析脚本(补充文件 1 和 补充文件 2)。脚本中及 ImageJ 命令中使用的标签在下文各节中以粗体显示。
- 面积分析
- 在 ImageJ 中打开名为 AcquisitionTitle 的 Acquisition.czi 文件: 文件 > 打开 > AcquisitionTitle.czi将打开一个显示所有通道的窗口。通道根据采集顺序标记为 c:1-3/3。其中,c:1/3 对应蓝色(DAPI),c:2/3 对应 mCherry(胞内) 沙门菌),以及 c:3/3 对 GFP(细胞质高复制) 沙门菌).
- 减少随机噪声,为步骤 4.1.6 和 4.1.7 中的面积测量做好图像准备。
- 复制 数据采集标题 使用窗口 图像 > 重复 > 好的 以获得 采集标题1 窗口
- 应用高斯模糊 采集标题1 通过 过程 > 过滤 > 高斯模糊. 保留默认设置 Sigma 值设为 2,然后单击 好的. A 工艺堆栈? 窗口将打开,点击 是 处理所有通道。
- 减去高斯滤波后的 采集标题1 来自原始文件 数据采集标题 由 过程 > 图像计算器:选择 数据采集标题 作为 图像1,选择操作 减去 在下拉列表中,然后选择 采集标题1 作为 图像2. 点击 好的. A 工艺堆栈? 窗口将打开。单击 是 处理所有三个图像(通道)以获得 采集结果标题 窗口
- 通过拆分通道 图像 > 颜色 > 拆分通道每个通道的图像现在均在单独的窗口中显示,窗口名称由ImageJ自动命名为C-ResultsOfAcquisitionTitle。其中,C1-ResultsOfAcquisitionTitle对应DAPI,C2-ResultsOfAcquisitionTitle对应mCherry(细胞内) 沙门菌)以及 C3-ResultsOfAcquisitionTitle 对 GFP(细胞质高复制) 沙门菌).
- 处理 C1-ResultsOfAcquisitionTitle 图像,以测量上皮细胞核所占的面积。
- 导航至 过程 > 平滑 将核仁(在核区域内呈现为孔状结构)进行均质化处理。
- 对 C1-ResultsOfAcquisitionTitle 图像进行阈值处理,以排除背景 图像 > 调节 > 阈值:检查 暗背景 在下拉列表中选择红色。设置 三角形 自动设定阈值,然后移动上方滑块,当细胞核呈现红色、背景呈现黑色时,设置最低阈值(本方案中设定阈值 = 100)。
注意:步骤 4.1.4.2、4.1.7、4.2.3.6.1 和 4.2.4.3 中所述的自动阈值仅为用户分别手动定义细胞核/上皮细胞和细菌的最适阈值提供参考。脚本中设定的手动阈值将覆盖自动阈值,并应用于整个批次分析。
- 选择测量方式ts 通过使用感兴趣的目标 分析 > 设置测量: 检查 阈值限制 仅对阈值化后的像素进行测量。检查 面积,对应于经阈值处理的像素所占据的总面积(即C1-ResultsOfAcquisitionTitle中的细胞核、细胞内) 沙门菌 C2-获取结果标题中的细胞质超复制 沙门菌 在 C3-采集结果标题中)。检查 显示标签 在结果表中记录每张图像的采集标题和通道。
- 使用以下方法测量细胞核所占面积 分析 > 测量测量结果将记录到自动打开的结果表格中。
- 处理 C2-ResultsOfAcquisitionTitle 和 C3-ResultsOfAcquisitionTitle,以测量总体细胞内所占面积 沙门菌 细胞质超复制 沙门菌,分别。执行步骤 4.1.4–4.1.6,但需进行部分修改:在步骤 4.1.4.1 中跳过平滑步骤,在步骤 4.1.4.2 中使用 Otsu 自动阈值法代替三角法(Triangle),作为设定最小阈值(上滑块)的参考依据,当 沙门菌 呈红色,背景呈黑色(建议阈值 = 200)。
- 使用以下方式保存结果表格 文件 > 另存为 > 所有文件.
- 在电子表格中打开结果表,以计算每个分析样本的面积比 数据采集标题 文件:
- 计算感染率:用细胞内总占据面积除以 沙门菌 (此处红色通道,C2-)除以上皮细胞核所占的面积(此处DAPI,C1-)。
- 计算超复制比率:将细胞质中超复制所占的面积除以总面积 沙门菌 (绿色通道,C3-)与总细胞内占据面积的比值 沙门菌 (红色通道,C2-)
- 单细胞分析
- 开放 Acquisition.czi 在 ImageJ 中以脚本中命名的 AcquisitionTitle 保存文件: 文件菜单 > 开放 > Acquisition.czi一个显示所有通道和所有z平面图像的窗口将打开。
- 拆分通道 图像 > 颜色 > 拆分通道通道现在显示在独立的窗口中,窗口由ImageJ自动命名为C-AcquisitionTitle。此处的 C1-数据采集标题 窗口对应于上皮细胞(蓝色), C2-数据采集标题 细胞内窗口 沙门菌 (mCherry),以及 C3-数据采集标题 细胞质高复制状态的窗口 沙门菌 通道(GFP)。每个C-AcquisitionTitle窗口包含所有获取的z平面。
- 处理 C1-采集标题 窗口,对应于上皮细胞,用于分割细胞。
- 选择用于细胞分割的z平面图像。选择 C1-采集标题 窗口并使用 图像 > 重复:写下所选z平面的编号(例如,输入1以选择z 1/8),写下 C1Z平面 在标题框中,取消勾选 复制堆栈,然后点击 好的 仅复制选定的 z 平面图像。此时将弹出一个名为 C1Z平面 选定的z平面图像将显示。
- 处理所获得的 C1Zplane 图像以增强图像对比度。打开 过程 > 增强对比度:调整饱和像素(即此处使用1%)并检查 标准化然后,单击 好的 应用对比度增强技术以获得对比度标准化的图像 C1Z平面 图像。
- 处理对比度归一化的 C1Z平面 图像以分割上皮细胞。使用 过程 > 查找最大值 打开 FindMaxima 菜单:首先,标记 预览点选择 设置 噪声耐受性 以便为每个上皮细胞仅分配一个最大值点。Flag 排除边缘最大值选择输出类型 分割的颗粒 并点击 好的 获得C1ZplaneSegmented,即一种新的类似二值掩膜的图像,显示每个分割出的颗粒对应于标记的最大值点。
注意: 寻找最大值 使用ImageJ算法对细胞进行分割。在整个图像中检测极大值点(像素强度峰值),这些点可能对应于细胞。设定噪声阈值(噪声容限),并分析极大值点周围的连续区域,生成类似二值掩膜的图像,每个极大值点定义一个分割出的颗粒,从而对应每一个细胞。 - 对 C1Z 平面分割后的图像进行处理,以创建已分割细胞的掩膜。使用 分析 > 分析颗粒:选择该选项 显示掩膜 和 边缘排除调整被分割颗粒的面积范围以包含在掩膜中,对应于 大小 参数,以排除错误分割的物体,例如细胞簇和细胞碎片。为了量化错误分割物体的面积,使用 棒状物 工具栏中的追踪工具:使用魔棒选择粒子,然后打开 分析 > 测量 测量错误对象的面积。设置 大小 间隔(建议范围 250-1700 像素)2)并点击 好的 以获得 C1Z平面分割掩膜 二值掩膜
- 默认情况下, C1Z平面分割掩膜 二值掩膜具有反相查找表。使用 LUT > 反转查找表 在工具栏中。
- 处理 MaskOfC1ZplaneSegmented 用于校正细胞分割的二值掩膜:
- 阈值对比度归一化 C1Zplane 步骤 4.2.3.2 中获得的图像。使用 图像 > 调节 > 阈值:检查 暗背景. 设置 默认 自动阈值设置。选择 红色 选项并调整最小阈值(上方滑块),直至细胞完全呈现红色而背景保持深色(本方案中应用的阈值 = 8,000)。然后点击 应用 将对比度归一化后的 C1Zplane 将图像转换为二值图像,其中细胞为白色,背景为黑色。
- 正确的细胞分割在 MaskOfC1ZplaneSegmented 二值掩膜。使用 过程 > 图像计算器选择 MaskOfC1ZplaneSegmented 作为 图像1,选择操作 与 在下拉列表中,然后选择经阈值化处理的对比度归一化图像 C1Zplane 作为 图像2. 点击 好的输出图像由 ImageJ 自动命名为“C1Zplane 分割的掩膜结果”。
- 将C1Z平面分割后的掩膜进行处理,以将每个分割的细胞标记为感兴趣区域(ROI)。使用 分析 > 分析颗粒调整 大小 如步骤 4.2.3.4 所述,然后选择该选项 显示无内容检查 添加到管理器 将所有颗粒(已分割的细胞)添加到ROI Manager工具中。同时,检查 排除边缘区域. 点击 好的。该 ROI 管理器菜单 将显示所有颗粒(已分割的细胞)的列表,这些颗粒被定义为感兴趣区域(ROIs),并以其相应的 y 和 x 坐标进行唯一标记。
- 将 ROI 数据保存为 ROI-细胞-采集标题.zip 通过 ROI 管理器菜单 通过点击 更多 > 保存. ROI-细胞-采集标题.zip 将在步骤 4.2.4.6 中打开,用于单细胞分析。
- 处理 C2-采集标题 窗口(此处为红色通道),对应于细胞内 沙门菌,以测定感染细胞的数量和细胞内空泡负荷。
- 从红色通道(C2-)中减去绿色通道(C3-),以去除细胞质中过度复制的沙门氏菌的离焦像素。
- 使用 过程 > 图像计算器选择 C2-采集标题 作为 图像1,选择操作 减去 在下拉列表中,然后选择 C3-数据采集标题 作为 图像2检查 新建窗口 并点击 好的.
- 对整个z-stack进行减法操作,方法是单击 是 在 工艺堆栈? 窗口。输出窗口命名为 C2获取结果 在脚本中。
- 过程 C2获取结果 以减少随机噪声。
- 复制 C2采集结果标题 通过点击窗口 图像菜单 > 重复检查 复制堆栈 并按压 好的 以获得 C2获取结果标题1 窗口。
- 应用高斯模糊到 C2获取结果标题1 窗口透过 过程 > 过滤 > 高斯模糊. 将Sigma值保留为2或自定义(例如,此处使用Sigma: 4)。点击 好的 并对整个 z 序列应用高斯模糊,方法是单击 是 在 工艺堆栈? 窗口。
- 减去高斯滤波后的结果 C2获取结果标题1 到 C2获取结果标题 通过点击 过程 > 图像计算器选择 C2采集结果 作为 图像1,选择操作 减去 在下拉列表中,然后选择 C2获取结果标题1 作为 图像2. 点击 好的. 通过点击对整个 z 序列应用减法运算 是 在 工艺堆栈? 窗口,以获取由 ImageJ 自动命名为“Results of Results of C2-AcquisitionTitle”的窗口。
- C2-采集标题结果的处理以进行分离 沙门菌 从背景中分离。使用 图像 > 调节 > 阈值:检查 暗背景 并设置 大津法 自动阈值。调整最小截断值(上部滑块),直到 沙门菌 呈现完全红色,背景变暗(本方案中应用的阈值 = 100)。点击 应用 以及 转换为二进制 窗口将打开:检查 黑色背景,然后点击 好的完整的z轴堆栈现在已转换为二值图像。
- 选择对应于液泡的中间Z平面 沙门菌 焦平面,来自步骤 4.2.4.3 中 C2-AcquisitionTitle 二值化窗口的结果 图像 > 堆叠 > 设置切片 并写下所选z平面的编号(例如,此处使用 z: 4/8)。点击 好的.
- 为每个 ROI(细胞)设置要记录的测量参数。使用 分析 > 设置测量:勾选“面积”,对应每个 ROI 的总面积。勾选 面积分数 和 阈值限制 仅记录由阈值化像素(细胞内)占据的面积比例 沙门菌每个 ROI 的情况。检查 显示标签 在结果表格中,使用图像标题、通道、z平面以及x-y坐标为每个ROI进行标注。
- 处理选定的细胞内z平面 沙门菌 记录标签、面积以及所占百分比面积 沙门菌 对于每个单个细胞(ROI):打开 ROI-细胞-采集标题.zip 文件,保存于步骤 4.2.3.8,通过 文件 > 打开 并点击 测量 在 ROI 管理器菜单输出为一个报告所选测量值的表格。
- 使用以下方式保存结果表格 文件 > 另存为 在结果窗口中。
- 开放 结果表 在电子表格中:标注面积以及细胞内所占面积百分比 沙门菌 每个ROI均标有相应的x和y坐标,用于唯一标识轮廓清晰的细胞。
- 测量显示%Area的感兴趣区域(ROI)中感染细胞的数量 > 0 被阈值化像素占据,对应于 沙门菌 (即此处的 %Area) > 0.2% 被视为识别感染细胞的阈值。随后,计算感染细胞占总细胞数的百分比。
- 测量液泡 负荷 沙门氏菌通过计算空泡占据的平均百分比面积来表示每个细胞的情况 沙门菌 所有感染细胞。
- 从红色通道(C2-)中减去绿色通道(C3-),以去除细胞质中过度复制的沙门氏菌的离焦像素。
- 处理绿色通道(C3-AcquisitionTitle),以测量显示细胞质高复制的细胞数量 沙门菌. 从步骤 4.2.4.2 到 4.2.4.9 继续操作,但需进行部分修改。
- 在上层z平面(此处z:7/8)进行操作,因为细胞在此处表现出细胞质内的过度复制 沙门菌 从单层中突出;因此,与未发生过度复制的细胞相比,它们处于不同的焦平面上 沙门菌.
- 通过计数细胞质内含有高复制性沙门氏菌(绿色)的细胞数量来评估,具体方法为对沙门氏菌占据面积百分比较高(例如 %Area)的细胞(ROIs)进行评分 > 20% 被视为识别出含有胞质内高复制沙门菌的细胞的阈值。随后,计算在步骤 4.2.4.9 中计数的所有感染细胞中,含有胞质内高复制沙门菌的细胞所占百分比。
结果
沙门菌菌株对上皮细胞的感染
本实验方案旨在分析细胞侵袭及胞质内复制(图1A)与液泡负荷(图1B的 沙门氏菌 在上皮细胞内。该方案通过以下三种方法进行了验证 沙门氏菌 菌株, S.鼠伤寒沙门氏菌SL1344参考菌株(S. Tm) S. Derby ER1175 野生型(S. 德比野生型(wt)及其同基因型突变体 S. Derby ER1175 缺失 sipA 基因S. 德比 ΔsipA). S. Derby ER1175 菌株分离自猪,属于 IZSLER 监测菌种保藏 collection 沙门氏菌 分离株。选择这些菌株是为了代表本方案所涵盖的表型多样性。特别是,这些菌株因其在上皮细胞内的侵袭或复制行为已知存在差异而被选中9;因此,它们是用于检验该方案是否能够定量区分细胞内差异的有价值对照 沙门氏菌 表型。特别是 S. Tm 和 S. 包括Derby野生型是因为我们先前已证明 S. Tm 的侵袭能力和细胞内复制效率高于 S. 德比野生型9 而 S. Derby ΔsipA 由于毒力效应因子 SipA 在超复制起始中起关键作用,因此将其作为超复制受损菌株加入10,11此前已有报道指出 S. 胞质内复制在入侵后4小时开始,随后胞质内虫体迅速大量复制,至8小时时充满上皮细胞11,12. 一致地,8小时的感染时长适用于观察和定量细胞质超复制表型 S. 德比 wt 和 S. Derby ΔsipA.
面积分析
步骤 4.1 中的面积分析提供了对上皮细胞被Salmonella定植的整体程度(感染比率)以及其超复制情况(超复制比率)的量化测量。在图2描述的面积分析工作流程中,首先降低随机噪声,然后将各通道图像分别拆分并独立处理。为每个通道设定阈值,以在面积测量中排除背景信号。随后,测量每个通道中经阈值处理的像素所占据的面积。面积分析的输出结果是一个表格,其中报告了每份采集文件中上皮细胞核(蓝色通道)、细胞内表达 mCherry 的Salmonellae(红色通道)以及细胞质中同时表达 GFP 和 mCherry 的超复制Salmonellae(绿色通道)所占据区域的扩展面积。感染比率通过将表达 mCherry 的Salmonellae所占据的面积除以上皮宿主细胞核所占据的面积来计算。对测试菌株的分析结果显示,如预期一致,S. Tm 的感染比率显著高于两种S. Derby 菌株(图3A)。因此,这些结果证明了面积分析在检测不同Salmonella菌株定植上皮细胞能力差异方面的有效性。Salmonella的超复制比率通过将表达 GFP 的Salmonellae所占据的面积除以细胞内表达 mCherry 的Salmonellae所占据的面积来测定。与 SipA 在介导超复制中的作用一致,与S. Derby wt 相比,S. Derby ΔsipA 菌株的超复制比率显著降低(图3B)。在S. Tm 与S. Derby wt 之间未观察到超复制水平的差异。总体而言,面积分析有效揭示了被测菌株之间不同的超复制水平。
单细胞分析
单细胞分析能够实现定量分析 沙门氏菌 以单细胞分辨率分析上皮细胞内入侵、液泡载荷与胞质复制情况。如步骤4.2所述,针对每个采集文件,蓝色、红色和绿色通道分别独立处理图 4)。具体而言,对应于上皮细胞的蓝色通道在步骤4.2.3中进行处理,以实现细胞分割。随后,将分割后的细胞添加至感兴趣区域(Region of Interest, ROI)管理器,生成一组ROI列表,每个ROI对应一个被唯一标记了y-x坐标的分割细胞。为去除表达GFP的超复制细胞中失焦的像素 沙门菌,绿色通道的像素被从红色通道的像素中减去。单细胞分析报告的输出表格为每个 ROI 提供了该 ROI 的面积及其被占据面积的百分比 沙门菌 仅表达 mCherry 组成型报告基因或表达 GFP 细胞质响应型报告基因。表达 mCherry 但不表达 GFP 的细胞区域占整个细胞区域的百分比 沙门菌 在步骤 4.2.4 中进行处理,以计算感染细胞的百分比和平均空泡载量(图 5A). 对液泡负载的分析表明 S. Derby 菌株产生的平均液泡负荷显著低于 S. Tm (图 5B)。相反,在感染细胞百分比方面仅观察到轻微且无显著性的降低 S. 德比菌株与……相比 S. Tm (图 5A)。GFP表达所占细胞面积的百分比 沙门菌 在步骤 4.2.5 中进行处理以获得超复制速率。两者之间未观察到差异 S. Tm 和 S. Derby 野生型,而 S. Derby ΔsipA 表现出显著的过度复制减少,与面积分析结果一致(图5C以及 SipA 在诱导超复制中的作用。
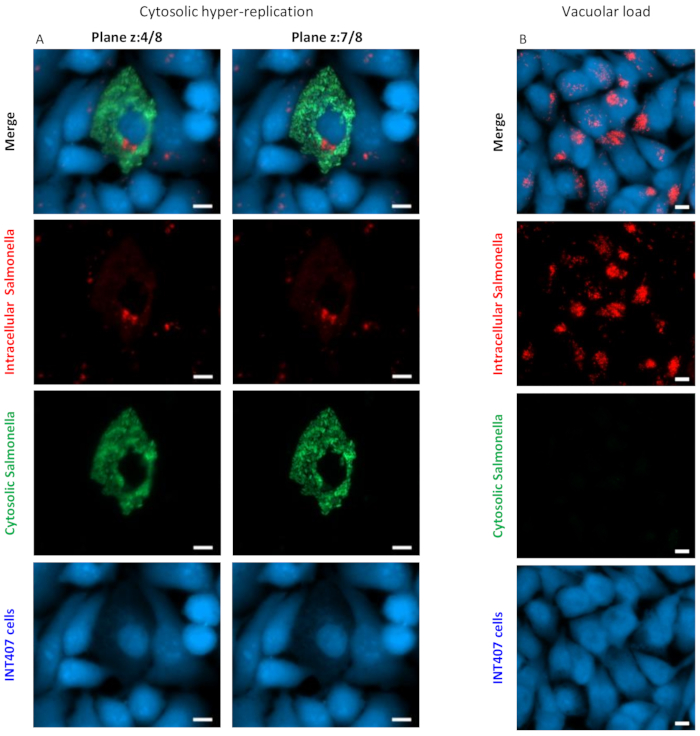
图1:沙门氏菌在细胞质中的超复制与液泡载荷。 展示了在高倍镜(40×)下获取的代表性图像:(A)Salmonella 的超复制现象,以及(B)液泡载荷情况。图B显示了含有超复制Salmonellae的细胞在不同焦平面的情况(z:7/8),与非超复制Salmonellae的细胞(z:4/8)相对比。白色比例尺为10 µm。请点击此处查看该图的放大版本。

图 2:区域分析的工作流程。 本图展示了一个代表性低倍率(10x)图像采集的区域分析流程,该图像来自感染了携带 pCHAR-Duo 质粒的 Salmonella(感染复数 MOI 100)8 小时的 INT407 细胞。首先,降低随机噪声,然后将通道拆分为 C1、C2 和 C3,并分别进行处理。为每个通道设定阈值,以排除测量区域中的背景信号。随后,分别测量各通道中经阈值处理后的像素所占据的面积——C1 中对应细胞核,C2 中对应所有细胞内的 Salmonellae,C3 中对应胞质内的 Salmonellae。此处分析的图像是通过拼接四幅 10x 放大倍率图像融合而成。白色比例尺为 100 µm。 请点击此处查看该图的放大版本。
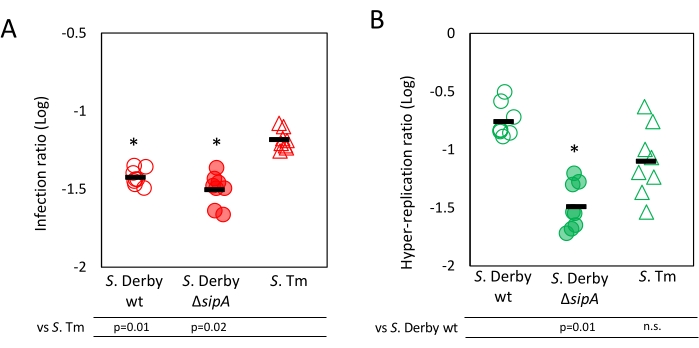
图3:面积分析结果。 展示了面积分析的结果。(A)感染比率通过计算表达mCherry的Salmonellae(C2通道)所占面积(代表所有细胞内细菌)与宿主细胞核(C1通道)所占面积的比值得到。(B)超复制比率通过计算仅在胞质中大量复制的GFP表达性Salmonellae(C3通道)所占面积与所有细胞内mCherry表达性Salmonellae所占面积的比值得到。每个点代表一个重复实验。分析共进行三个生物学重复,每个重复设置三个技术重复。黑色线条表示平均值。显著性通过双尾t检验计算,p值已标出。请点击此处查看该图的高清版本。
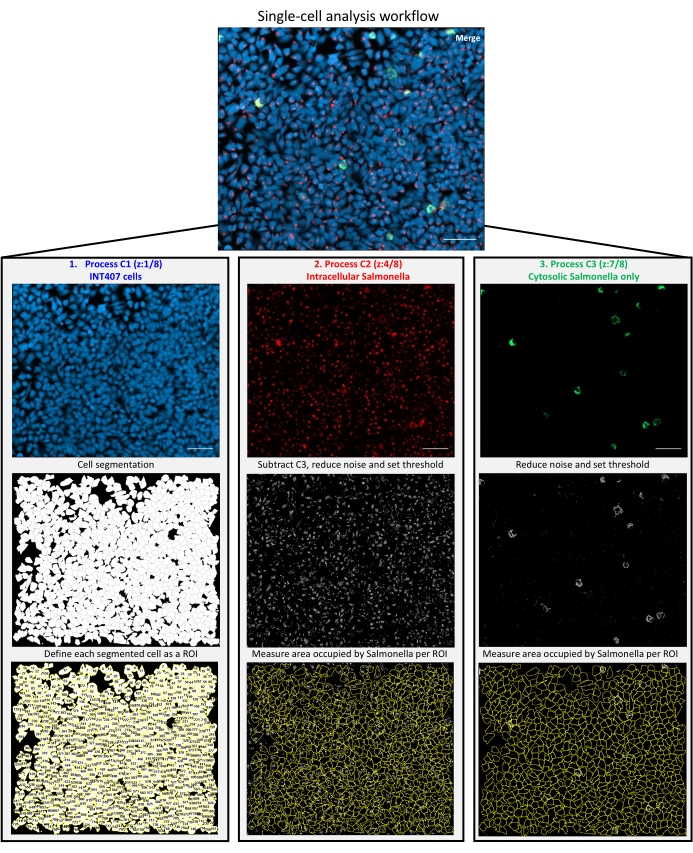
图 4:单细胞分析的工作流程。 图示为感染携带 pCHAR-Duo 质粒的 Salmonella(感染复数 MOI 100)8 小时的 INT407 细胞的一个代表性高倍成像(40x)采集结果的单细胞分析流程。首先,将各通道拆分为 C1、C2 和 C3 并分别进行处理。蓝色通道(C1)对应上皮细胞,经处理后实现细胞分割,并将每个分割出的细胞定义为一个区域(Region of Interest, ROI),以唯一的 y-x 坐标标记。红色通道(C2)通过减去绿色通道(C3)以去除失焦的胞质内过度复制的 Salmonellae,仅保留表达 mCherry 的囊泡内 Salmonellae,随后降低随机噪声,并设定阈值以排除背景干扰。最终,测量每个 ROI 内囊泡 Salmonellae 所占面积。绿色通道(C3)对应表达 GFP 的全部胞质内 Salmonellae,其处理方式类似。此处分析的图像是由 16 个图像拼接融合而成。白色比例尺为 100 µm。 请点击此处查看该图的放大版本。
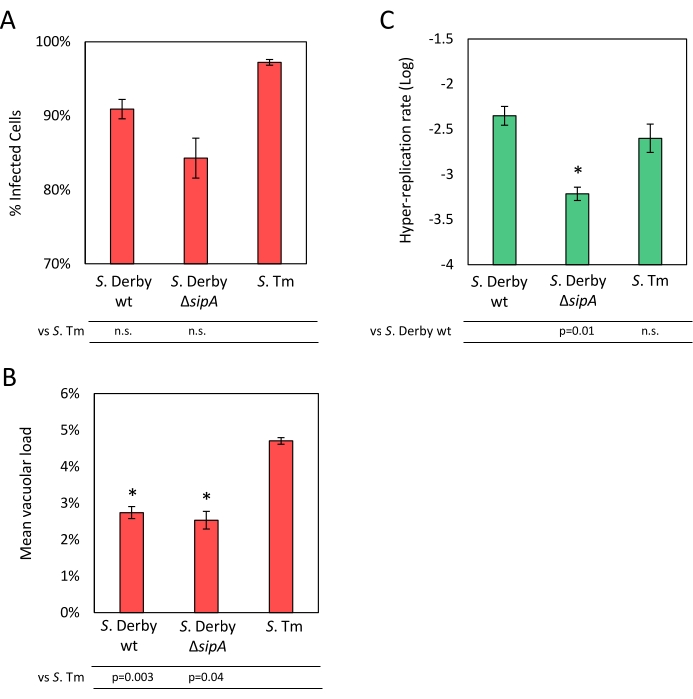
图5单细胞分析结果。 单细胞分析的结果如图所示。A仅表达mCherry的区域面积百分比所占的细胞数量除以细胞总数,得到感染细胞的百分比 沙门菌> 0.2 除以细胞总数。B平均液泡负荷通过计算仅表达mCherry的荧光信号所占的平均百分比面积获得 沙门菌 在感染的细胞中。C超复制率通过将GFP表达所占面积百分比的细胞数量除以细胞总数来计算 沙门菌感染细胞总数中占比≥20%。数据来自三至四次生物学重复实验,每组实验设三个复孔。误差线表示测量值的标准误。显著性检验采用双尾 t测试,以及 p 报告数值。 请点击此处查看此图的放大版本。
补充文件1:面积分析脚本。 请点击此处下载该文件。
补充文件 2:单细胞分析脚本。 请点击此处下载该文件。
讨论
Salmonella 定植肠上皮细胞的方式会影响感染结局。入侵后,胞质内大量复制会诱导肠道炎症3,而液泡内复制则可能导致系统性扩散4。Salmonella 菌株在侵袭和在肠上皮细胞内复制的能力方面存在差异9。事实上,Salmonella 是一个高度多样化的属,包含超过 2,500 种血清型,其致病能力各不相同。此外,Salmonella 是欧盟报告中最常见的食源性疾病暴发原因,表明其在人群中广泛传播1。因此,建立可靠且高通量的方法来定量分析 Salmonella 的胞内表型,对于评估大量 Salmonella 菌株间的毒力差异至关重要,并最终实现对该病原体进行准确且菌株特异性的风险评估具有重要意义。
本方案以快速且自动化的方式检测上皮细胞内Salmonella的行为。上皮细胞的感染在96孔成像微孔板中进行,并使用自动化荧光显微镜采集图像,使该方案适用于高通量应用。本方案利用pCHAR-Duo质粒,通过两种荧光报告基因的差异表达,区分位于液泡内和细胞质中的Salmonellae5。Salmonella的细胞内表型通常通过人工计分进行分析,该方法耗时较长,不适用于对大量菌株以及每种菌株对应的多个细胞培养样本进行分析,且易受操作者误差和不同操作者间差异的影响。为克服这些局限性,开发了两种互补且自动化的图像分析方法:面积分析和单细胞分析。使用免费软件ImageJ开发了这两种分析方法。为加快方案执行速度,还提供了用于批量分析多个图像采集文件且无需人工干预的ImageJ脚本作为补充文件。
面积分析旨在通过几个步骤,定量评估上皮细胞的整体定植情况(感染比率)以及Salmonellae的超复制水平(超复制比率),其原理是测量上皮细胞核以及表达mCherry或同时表达mCherry和GFP的Salmonellae所特异性占据的面积。 该面积分析适用于低倍镜下获取的图像,在同一z平面中,液泡内和超复制的Salmonellae均处于清晰对焦状态,且每个显微视野显示大量上皮细胞,从而减小了图像采集文件的大小和数量。面积分析可对大量样本进行自动化、快速且计算负担较轻的分析,因此适用于高通量实验,如筛选实验。
单细胞分析旨在以单细胞分辨率定量上皮细胞内 Salmonella 的表型,该分辨率通过细胞分割以及对细胞面积和被液泡内及胞质内高复制 Salmonellae 占据的面积百分比的测量获得。通过面积分析所表征的上皮细胞总体定植情况在此被分解为三个定量参数:感染细胞百分比、平均液泡载量和高复制率,从而能够评估并量化每种表型对总体定植的贡献,因此 补充了面积分析的结果。单细胞分析所提供的更详细信息是以较慢的图像采集与分析速度为代价的。事实上,为了实现单细胞分辨率,图像采集需在高倍放大下进行。这意味着需要多个 z 层面以使液泡内和胞质内的 Salmonellae 均处于焦平面内,同时每个样本需采集大量视野,以统计足够数量的上皮细胞,因此相较于面积分析,图像采集时间更长。此外,对多个大型采集文件的分析在计算上具有较高需求,因此需要配备合适的计算工作站(本研究使用了6核、32 GB内存的工作站)。因此,单细胞分析可在通量有限的条件下作为独立方法使用,或作为与面积分析联用的二级方法,以更深入地理解 Salmonella 在上皮细胞内的表型特征。
两种互补的分析方法通过使用进行了验证 STm, S. 德比 wt,以及 S. 德比 ΔsipA,选择这些是因为它们在上皮细胞内的行为在侵袭或复制方面已知存在差异9,10面积和单细胞分析的结果表明,该方案能够定量区分细胞内差异 沙门氏菌 表型,这些表型与受试菌株的特性一致。此外,这些结果表明,单细胞分析能够量化每种细胞内表型(入侵、液泡载荷)的贡献程度 并将胞质内复制对定植的总体贡献通过面积分析进行评分。
本方案在此用于研究不同沙门氏菌(Salmonella)菌株的体外致病性,但也可应用于其他研究,例如通过分析随机突变体来鉴定参与侵袭和/或在上皮细胞内复制的相关基因。此外,该方案可经调整用于分析沙门氏菌在除INT407细胞以外的其他细胞系中的行为。本方案还可作为开发类似方法的起点,用于研究其他胞内微生物与宿主细胞相互作用的过程。
披露
作者声明不存在任何竞争利益。
致谢
作者感谢 Olivia Steele-Mortimer 博士分享 pCHAR-Duo 质粒。本工作由意大利卫生部资助,项目编号为 PRC2019014 和 PRC2021004。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 96孔成像微孔板 | Eppendorf | 30741030 | 细胞培养与感染 |
| 氨苄青霉素 | Sigma-Aldrich | 59349 | 细菌培养 |
| Axio Observer 倒置显微镜 | ZEISS | 自动化荧光显微镜 | |
| Axiocam 305 Mono | ZEISS | 显微镜相机 | |
| 透气封膜 | Sigma-Aldrich | Z380059 | 感染检测 |
| Colibrì 5/7 | ZEISS | LED光源 | |
| 大鼠尾胶原I型 | Life Technologies | A1048301 | 胶原包被 |
| DAPI | Invitrogen | D3571 | 细胞染色 |
| 胎牛血清 | Gibco | 10099-141 | 细胞培养与感染 |
| 庆大霉素 | Sigma-Aldrich | G12664 | 感染检测 |
| 冰醋酸 | Carlo Erba | 401391 | 胶原包被 |
| HCS CellMask Blue | Invitrogen | H32720 | 细胞染色 |
| ImageJ | 美国国立卫生研究院与威斯康星大学光学与计算仪器实验室(LOCI, University of Wisconsin) | 图像处理软件 | |
| 最低必需培养基(Eagle改良) | Sigma-Aldrich | M5650-500ML | 细胞培养与感染 |
| 4% 多聚甲醛 | Invitrogen | FB002 | 细胞固定 |
| 氯化钾 | PanReac AppliChem | 131494.1211 | PBS配制 |
| 磷酸二氢钾 | Sigma-Aldrich | 60220 | PBS配制 |
| 氯化钠 | PanReac AppliChem | 131659.1214 | 细菌培养与PBS配制 |
| 磷酸氢二钠 | Sigma-Aldrich | 71640 | PBS配制 |
| 25 cm2 组织培养瓶,带插塞螺旋盖 | Euroclone | ET7025 | 细胞培养 |
| Triton X-100 | Biorad | 1610407 | 细胞染色 |
| 胰蛋白酶-EDTA(0.25%) | Gibco | 25200056 | 细胞培养与感染 |
| 胰蛋白胨 | Oxoid | LP0042B | 细菌培养 |
| 酵母提取物 | Biolife | 4122202 | 细菌培养 |
参考文献
- European Food Safety Authority & European Centre for Disease Prevention and Control. The European Union One Health 2020 Zoonoses Report. EFSA Journal. 19 (12), 6971(2021).
- Fattinger, S. A., Sellin, M. E., Hardt, W. D. Salmonella effector driven invasion of the gut epithelium: breaking in and setting the house on fire. Current Opinion in Microbiology. 64, 9-18 (2021).
- Knodler, L. A., et al. Dissemination of invasive Salmonella via bacterial-induced extrusion of mucosal epithelia. Proceedings of the National Academy of Sciences of the United States of America. 107 (41), 17733-17738 (2010).
- Fulde, M., et al. Salmonella SPI2 T3SS mediates transcytosis in polarized enterocytes in vivo. Cell Host & Microbe. , (2019).
- Cooper, K. G., Chong, A., Starr, T., Finn, C. E., Steele-Mortimer, O. Predictable, tunable protein production in Salmonella for studying host-pathogen interactions. Frontiers in Cellular and Infection Microbiology. 7, 475(2017).
- Klein, J. A., Grenz, J. R., Slauch, J. M., Knodler, L. A. Controlled activity of the Salmonella invasion-associated injectisome reveals its intracellular role in the cytosolic population. mBio. 8 (6), 01931(2017).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nature Methods. 9 (7), 671-675 (2012).
- Ibarra, J. A., et al. Induction of Salmonella pathogenicity island 1 under different growth conditions can affect Salmonella-host cell interactions in vitro. Microbiology. 156 (4), 1120-1133 (2010).
- Tambassi, M., et al. Mutation of hilD in a Salmonella Derby lineage linked to swine adaptation and reduced risk to human health. Scientific Reports. 10 (1), 21539(2020).
- Finn, C. E., Chong, A., Cooper, K. G., Starr, T., Steele-Mortimer, O. A second wave of Salmonella T3SS1 activity prolongs the lifespan of infected epithelial cells. PLoS Pathogens. 13 (4), 1006354(2017).
- Knodler, L. A., Nair, V., Steele-Mortimer, O. Quantitative assessment of cytosolic Salmonella in epithelial cells. PLoS One. 9 (1), 84681(2014).
- Chong, A., Starr, T., Finn, C. E., Steele-Mortimer, O. A role for the Salmonella Type III Secretion System 1 in bacterial adaptation to the cytosol of epithelial cells. Molecular Microbiology. 112 (4), 1270-1283 (2019).
重印与许可
