本方案描述了一种全面的方法,用于检测在两种刺激条件下caspase激活(caspase-1、caspase-3、caspase-7、caspase-8、caspase-9 和 caspase-11)的反应 体外 和 体内 (在小鼠中)通过感染、无菌性损伤和癌症模型,确定细胞死亡通路(如焦亡、凋亡、坏死性凋亡和PANoptosis)的启动机制。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
先天免疫在应对病原体和无菌性损伤时提供关键的第一道防御屏障。这一反应的关键机制之一是启动先天免疫相关的程序性细胞死亡(PCD),以清除受感染或受损的细胞并促进免疫反应的传播。然而,过度的PCD与炎症和病理变化相关。因此,理解PCD的激活与调控机制,是阐明先天免疫反应特征以及在多种疾病谱中发现新的治疗靶点的核心环节。
本方案提供了通过监测半胱天冬酶(caspase)来表征天然免疫程序性细胞死亡(PCD)活化的方法。半胱天冬酶是一类依赖半胱氨酸的蛋白酶,通常与多种程序性细胞死亡通路相关,包括 凋亡 、焦亡、坏死性凋亡和PANoptosis。早期研究将caspase-2、caspase-8、caspase-9和caspase-10归类为凋亡中的起始caspase,而将caspase-3、caspase-6和caspase-7归类为效应caspase;后续研究发现,炎症性caspase(包括caspase-1、caspase-4、caspase-5和caspase-11)可驱动焦亡。目前研究已知,caspase与其他天然免疫及 细胞死亡分子在既往定义的PCD通路之间存在广泛的交叉对话,这揭示了在天然免疫与PCD机制理解方面的一个关键知识空白, 并推动了PANoptosis的提出与界定。PANoptosis是一种独特的由PANoptosome复合物调控的天然免疫炎症性程序性细胞死亡通路,该复合物整合了来自其他细胞死亡通路的组分,包括caspase 等。
本文提供了评估细胞在不同刺激下caspase激活状态的方法。这些方法可用于表征体外(in vitro)和体内(in vivo)的程序性细胞死亡(PCD)通路,因为活化的caspase会发生蛋白水解性剪切,可通过使用合适的抗体和印迹条件进行Western印迹检测并加以可视化。我们已建立了一种实验方案和Western印迹工作流程,能够从同一细胞群体中同时评估多种caspase的激活情况,从而对PCD过程进行全面表征。该方法可广泛应用于发育、稳态、感染、炎症和癌症等研究领域,以评价健康和疾病状态下细胞生命活动中的PCD通路。
引言
先天免疫系统在感染过程中以及对无菌性刺激(如组织损伤和稳态失衡)的反应中,充当第一道防御屏障。细胞表面和细胞质中的先天免疫感受器可识别病原体相关分子模式(PAMPs)或损伤相关分子模式(DAMPs),从而触发炎症信号通路和细胞反应。先天免疫反应的关键过程之一是诱导细胞死亡,以清除受感染或受损的细胞,并进一步驱动先天性和适应性免疫反应。程序性细胞死亡(PCD)在不同物种间高度保守,凸显了其作为先天免疫机制在进化上的重要性。
所有细胞类型中均可激活多种天然免疫程序性细胞死亡(PCD)通路。Caspase 是一类高度保守的细胞内半胱氨酸依赖性蛋白酶家族,在多种 PCD 通路中发挥关键作用,包括传统上非炎症性的凋亡通路,以及焦亡、坏死性凋亡和 PANoptosis 等炎症性 PCD 通路1,2,3,4,5。目前已明确存在 11 种人类 caspase 和 10 种小鼠 caspase,此外还可能存在功能性的伪 caspase;大多数 caspase 以无活性的单体或二聚体前体形式组成性表达,需经切割才能激活6,7。Caspase 还含有对招募和形成多蛋白复合物至关重要的结构域,包括 caspase 激活和招募结构域(CARD),存在于 caspase-1、caspase-2、caspase-4、caspase-5、caspase-9 和 caspase-11 中;以及死亡效应结构域(DED),存在于 caspase-8 和 caspase-10 中。通过其蛋白水解活性以及形成多蛋白复合物的能力,caspase 在天然免疫 PCD 中发挥着关键驱动作用。
半胱天冬酶(caspases)在先天免疫程序性细胞死亡(PCD)中的作用最初是在细胞凋亡中被发现的,其中起始型半胱天冬酶(initiator caspases),包括caspase-2、caspase-8、caspase-9和caspase-10,可激活效应型半胱天冬酶(executioner caspases),即caspase-3、caspase-6和caspase-7,从而驱动细胞死亡8,9,10,11,12。起始型半胱天冬酶可通过多种信号级联途径被激活;外源性途径通过细胞外配体诱导的死亡受体信号激活caspase-8,而内源性途径则通过线粒体完整性破坏激活caspase-913。活化的起始型半胱天冬酶会切割效应型半胱天冬酶中连接其大亚基和小亚基的连接区,从而生成具有活性的形式。随后,效应型半胱天冬酶切割其底物,导致细胞解体,引发DNA降解、细胞膜出泡、细胞核碎裂以及凋亡小体的释放14,15。当与胞葬作用(efferocytosis)介导的濒死细胞及时清除相结合时,该过程通常以非裂解性和非炎症性的细胞死亡形式结束16。然而,若胞葬作用存在缺陷或缺乏吞噬细胞,则可导致凋亡细胞的积累,进而发生裂解性和炎症性细胞死亡17,18。
炎症性caspase,包括caspase-1(人和小鼠)、caspase-4和caspase-5(人)以及caspase-11(小鼠),已被发现可在一种称为细胞焦亡的炎症性固有免疫程序性细胞死亡(III-PCD)过程中被激活。caspase-1的激活与炎性小体的形成相关,炎性小体是由胞质固有免疫感受器、衔接蛋白分子(含CARD结构域的凋亡相关斑点样蛋白[ASC])和caspase-1组成的多蛋白复合物。该复合物的形成使caspase-1发生邻近诱导的自剪切,释放其活性形式,进而切割包括促炎细胞因子白细胞介素(IL)-1β和IL-18以及成孔分子gasdermin D(GSDMD)在内的靶底物。19,20,21,22,23Caspase-11、caspase-4 和 caspase-5 也可在感知病原体相关分子模式(如脂多糖,LPS)后,不依赖炎性小体的上游形成而直接激活 GSDMD19,20这些caspase在结合胞质LPS后发生二聚化,随后寡聚化并自我切割而被激活,从而引发非经典炎症小体的活化24,25,26 以细胞内在方式激活caspase-1,诱导IL-1β和IL-18成熟20这些促炎性细胞因子的成熟与释放使这些胱天蛋白酶具有如下特征 "此外,已发现凋亡相关的caspase-8定位于炎性小体,从而为凋亡与细胞焦亡过程之间提供了联系。 研究发现,凋亡相关的caspase-8在调控另一种程序性细胞死亡(PCD)形式中也具有关键作用 称为坏死性凋亡。caspase-8的缺失可导致受体相互作用丝氨酸-苏氨酸激酶3(RIPK3)介导的混合谱系激酶结构域样假激酶(MLKL)自发激活,从而驱动III型程序性细胞死亡(III-PCD)通路 坏死性凋亡27,28,29,30,31,32,33,34,35.
虽然半胱天冬酶(caspases)传统上被归类为 "凋亡的" 或 "炎症的" 根据它们所启动的细胞死亡类型,越来越多的证据表明,通过caspase介导的先天免疫程序性细胞死亡通路之间存在广泛的交互作用3,4例如,炎性小体中的炎性半胱天冬酶-1在其经典的激活位点切割凋亡相关的半胱天冬酶-734Caspase-1的激活还可能导致凋亡底物(如聚(ADP-核糖)聚合酶1(PARP1))的切割36在缺乏GSDMD的细胞中,caspase-1也可切割caspase-337,38此外,经典的凋亡性半胱天冬酶-3(caspase-3)可切割细胞焦亡相关蛋白GSDME,从而诱导程序性细胞死亡(PCD)17,18 并将GSDMD切割成非活性形式40此外,已观察到caspase-8被招募至炎症小体复合物39,40,41,42,43,44,45,而caspase-8是经典和非经典炎性小体激活的关键调节因子39在许多炎症条件下,caspase-8 与 caspase-1 也存在功能上的重叠与冗余,且在多种疾病谱中均可观察到一种以焦亡、凋亡和坏死性凋亡组分激活为特征的先天免疫程序性细胞死亡。39,46,47,48,49,50.
基于炎症性caspase与凋亡性caspase之间的这种串扰,先天免疫与程序性细胞死亡(PCD)机制理解中的一个关键空白被识别出来,从而促成了PANoptosis的发现。PANoptosis是一种独特的III型程序性细胞死亡(III-PCD)形式,可由病原体、病原体相关分子模式(PAMPs)、损伤相关分子模式(DAMPs)以及稳态失衡所激活,并由PANoptosome调控——PANoptosome是一类多功能的大分子复合物,能够整合其他细胞死亡通路的组分44,50,51,52,53,54,55。PANoptosis所产生的全部生物学效应无法单独由焦亡、凋亡或坏死性凋亡各自解释3,4,35,36,39,46,47,48,因为PANoptosis的特征是多种caspase的共同激活,包括caspase-1、caspase-11、caspase-8、caspase-9、caspase-3和/或caspase-7,具体激活的caspase种类取决于不同的生物学情境44,48,49,50,51,52,53,54,56,57,58,59,60,61,62。越来越多的研究表明,PANoptosis在感染性疾病和炎症性疾病中发挥重要作用,同时也与癌症及其治疗密切相关3,4,35,36,39,44,46,47,48,49,50,51,52,53,54,56
,57,58,59,60,61,62,63,64,65,66。
鉴于半胱天冬酶(caspases)在包括凋亡、细胞焦亡等多种细胞死亡通路中的关键作用, 坏死性凋亡(necroptosis)和PAN凋亡(PANoptosis),开发用于表征其活化并理解程序性细胞死亡(PCD)通路完整复杂性的技术至关重要。本方案详细描述了一种刺激细胞并检测随后半胱天冬酶(caspases)活化的方法。图1)。该方法利用半胱天冬酶(caspase)的蛋白水解切割过程(通常为其活化所必需)来对其进行研究。通过蛋白质印迹(western blotting),可确定蛋白质的大小,从而清晰地显示并区分无活性的前体caspase及其活化后被切割的形式。
该方案的主要优势在于:1)能够从单一内源性细胞群体中平行检测多种caspase的活化状态,从而更准确地确定程序性细胞死亡(PCD)的激活情况;2)采用了相对简单的实验技术,无需 extensive training 或昂贵仪器。以往的方案通常采用蛋白质印迹法(western blotting)、荧光报告系统或抗体染色来监测培养上清液、细胞和组织裂解物以及完整细胞中的caspase活化情况。 通过 显微镜技术,以及 体内67,68,69,70,71,但这些技术通常只能在样品中监测一种或两种半胱天冬酶。此外,尽管已有利用含有半胱天冬酶切割位点的合成肽底物——在被切割后可产生荧光——用于监测细胞或组织裂解液中的半胱天冬酶活化69,这些底物通常可被多种caspase切割,因此很难确定该系统中单个caspase的特异性激活。此外,使用Western印迹法而非荧光报告分子或其他基于标签的方法,可使研究人员直接利用内源性细胞,而无需构建携带报告基因的特定细胞系。使用内源性细胞具有多重优势,其中包括许多永生化细胞系缺乏关键的细胞死亡分子。72,73这可能会影响实验结果。此外,使用内源性细胞可评估多种细胞类型(如巨噬细胞、上皮细胞和内皮细胞),而非单一细胞谱系。Western blotting 也是一种相对简单且成本较低的技术,可在全球范围内的实验室中开展,无需大型昂贵设备或复杂的实验装置。
该方案在生物学领域具有广泛适用性,可用于研究半胱天冬酶(caspases)的细胞死亡依赖性和非依赖性功能,包括其支架作用以及其他炎症信号通路中的功能74。应用此方法可为研究不同疾病和状态下先天免疫程序性细胞死亡通路及炎症信号传导提供统一的策略,并可用于鉴定关键的调控过程和机制联系,从而为未来治疗策略的开发提供依据。
访问受限。请登录或开始试用以查看此内容。
方案
动物使用和操作程序已获得圣裘德儿童研究医院动物使用与护理委员会的批准。
1. 溶液的配制
- 制备L929条件培养基。
- 将1 × 10⁶个L929细胞(参见材料表)接种于含有50 mL L929培养基的182 cm2组织培养瓶中(培养基的配制方法见表1)。
- 将细胞置于37 °C、5% CO2的湿润培养箱中培养。
- 7天后收集上清液,并用0.45 µm滤器过滤。分装为每份50 mL(冻存的样品可在−80 °C保存长达1年)。
- 配制500 mL骨髓来源巨噬细胞(BMDM)培养基(表1)。
- 配制500 mL BMDM刺激培养基(表1)。
- 配制500 mL用于感染的培养基(表1)。
- 配制100 mL 1 M Tris缓冲液(表1)。
- 配制4×十二烷基硫酸钠(SDS)缓冲液(表1)。
- 配制1 mL 1 M 1,4-二硫苏糖醇(DTT,表1)。
- 配制40 mL caspase裂解缓冲液(表1)。
- 配制100 mL 1.5 M Tris缓冲液(表1)。
- 配制100 mL 10%(wt/vol)SDS溶液(表1)。
- 配制50 mL 2×放射免疫沉淀分析(RIPA)缓冲液(表1)。
- 配制5 mg/mL LPS溶液(表1)。
- 配制0.5 M ATP溶液(表1)。
- 配制蛋白质印迹(western blotting)相关溶液。
- 配制1 L 5×电泳缓冲液储备液(表1)。
- 配制1 L 10×转膜缓冲液储备液(表1)。
- 配制1 L 含Tween 20的Tris缓冲盐溶液(TBST,表1)。
- 配制100 mL 5%(wt/vol)脱脂牛奶封闭液(表1)。
- 配制一抗溶液。
- 配制10 mL caspase-1一抗溶液(表1)。
- 配制10 mL caspase-11一抗溶液(表1)。
- 配制10 mL caspase-3一抗溶液(表1)。
- 配制10 mL caspase-7一抗溶液(表1)。
- 配制10 mL caspase-8一抗溶液(表1)。
- 配制10 mL caspase-9一抗溶液(表1)。
- 配制10 mL HRP标记的β-actin一抗溶液(表1)。
- 配制二抗溶液。
- 配制10 mL抗兔二抗溶液(表1)。
- 配制10 mL抗鼠二抗溶液(表1)。
- 配制10 mL抗大鼠二抗溶液(表1)。
2. 分离骨髓来源巨噬细胞
注意:本实验方案可使用6至10周龄的野生型小鼠,其程序性细胞死亡(PCD)通路完整;也可使用PCD相关调控因子、效应分子或目标分子被敲除或修饰的突变型小鼠。
- 将小鼠置于 CO2 安乐死舱中,以每分钟置换 10%–30% 笼体积的气流速率持续 2–3 分钟。随后采用二次安乐死方法(如颈椎脱位)。在适用情况下,须遵守所有相关设施、机构及政府的具体指南和法规。
- 解剖小鼠以获取后肢骨骼。
- 将小鼠仰面固定,暴露腹部。用 70%(体积/体积)乙醇喷洒后肢和腹部进行消毒。
注意:乙醇易燃,请远离明火。 - 使用剪刀在腹部正中线做切口,并继续向腿部方向剪开,使股骨暴露。
- 抓住右侧后肢,将皮肤从身体向中线方向剥离。沿中线切断内收肌群,将腿部与身体分离;随后在髋关节与脊柱之间切断腿部。接着在踝关节远端切断足部,并通过撕去皮肤及使用略微张开的剪刀剥离小腿组织,去除骨骼上的多余组织。
- 将腿部置于浸有 70%(体积/体积)乙醇的毛巾上,分离胫骨和股骨。
- 分别用镊子夹住胫骨和股骨。轻轻将胫骨沿膝关节自然方向按压,使其在膝部断裂。
- 如有需要,使用镊子和解剖剪去除残留的悬垂组织。将胫骨保存备用,放置于乙醇浸湿的毛巾上。
- 以同样方式折断膝部,收集股骨。
- 对左后肢重复上述第 3 和第 4 步,将其从身体上分离并解剖出胫骨和股骨。
- 用 70%(体积/体积)乙醇喷洒骨骼。
- 将骨骼置于洁净的 70%(体积/体积)乙醇浸湿毛巾上,用手挤压骨骼的肉质部分,并用毛巾摩擦骨骼以去除多余组织。
- 将小鼠仰面固定,暴露腹部。用 70%(体积/体积)乙醇喷洒后肢和腹部进行消毒。
- 待两侧股骨和胫骨均清洁后,用 70%(体积/体积)乙醇喷洒全部四根骨骼。将骨骼收集至无菌培养皿中,并加入 10 mL BMDM 培养基,轻轻晃动培养皿进行冲洗。
- 用 10 mL 新鲜 BMDM 培养基填充一支 10 mL 注射器,并安装一根 25 G 针头。
- 用镊子夹取胫骨,以约 45° 角切断踝关节。
- 冲洗胫骨中的骨髓。
- 将胫骨持于 50 mL 离心管上方,使其细端朝下。从已填充的注射器中将培养基滴加至胫骨上。
- 将针头(初始动作需轻柔)插入骨髓顶端,注入培养基。
- 拔出针头后再次插入。通过短促、高压的推注方式注入培养基,并将针头逐步深入骨髓腔。
- 当培养基开始从骨骼底部流出时,继续以短促、高压的方式推注,彻底冲洗细胞。在此过程中观察骨骼颜色,当骨骼变为白色时,将其丢弃。
- 对两根胫骨均进行上述操作。
- 对股骨重复上述第 5 和第 6 步操作,在髋关节处进行切割(类似于胫骨在踝关节处的切割)。使用同一个 50 mL 离心管收集冲洗过程中流出的 BMDM 培养基和骨髓。
- 完成四根骨骼的冲洗后,使用装有 18 G 针头的 10 mL 注射器,将 50 mL 离心管中的骨髓与培养基反复抽吸 3 次,每次抽吸时冲洗管壁,以充分分散骨髓组织。
- 用 BMDM 培养基将 50 mL 离心管中的终体积调整至 30 mL,并确保细胞充分悬浮。
- 使用 70 µm 细胞滤网过滤 50 mL 离心管中的 BMDM 培养基。
- 将所得的细胞悬液(含骨髓前体细胞)接种至三个 150 mm 组织培养皿中,每皿加入 10 mL(或约 20 × 106 个细胞),再向每皿额外添加 10 mL BMDM 培养基。置于 37 °C 恒温湿润培养箱中孵育。
3. BMDM 的分化及实验用细胞的铺板
- 将接种的骨髓祖细胞在培养箱中孵育 37 °C 3天后,取出每皿,加入额外的5-8 mL BMDM培养基(表1)。放回培养箱继续培养 37 °C.
- 在初次铺板后的第5天,取出每皿细胞,加入5 mL BMDM培养基,然后放回培养箱中 37 °C.
- 第6天,取出每皿细胞,弃去培养基,随后加入10 mL 冷的(储存于 4 °C用 PBS 洗涤一次,弃去 10 mL 冷 PBS 洗涤液。然后,向每皿中加入 10 mL 新鲜的冷 PBS,将各培养皿置于冰上孵育 5 min。
- 使用细胞刮棒,轻轻将三个培养皿中的细胞刮下并收集至一个 50 mL 离心管中。在 270 × g 在 4 °C 5 分钟;然后,弃去上清液。
- 加入20 mL BMDM培养基,用移液器吹打重悬细胞沉淀,并进行细胞计数。
注意:预计每只小鼠可获得约 60 × 106-100 × 106 细胞 - 规划好12孔板中所需的布局 体外 细胞死亡/炎症刺激实验。计划接种 1 × 10⁶ 每孔细胞数。针对每次计划的刺激,至少设置三个生物学重复,并将一组孔用于收获于caspase裂解缓冲液中,另一组孔用于收获于RIPA缓冲液中。
- 接种 1 × 10⁶ 个细胞6 12 孔板中每孔加入 1 mL BMDM 培养基悬浮细胞。置于湿润培养箱中,37℃过夜培养。 37 °C 在进行细胞死亡/炎症评估之前,经过过夜孵育后,移除培养基,并加入1 mL温热(37 °C向每个孔中加入 PBS 以洗涤细胞。
- 移除 PBS 洗涤液,并加入 500 µL 含抗生素的BMDM刺激培养基(如进行非细菌刺激)或不含抗生素的BMDM刺激培养基(如进行细菌刺激)(表1孵育2小时,然后进入步骤4 体外 刺激/感染
4. 刺激或感染细胞
注意:本方案中涉及的试剂可能具有致病性,须在获得相关机构和政府主管部门批准后,在生物安全二级(BSL2)实验室中采取适当的预防措施进行操作。
- 使用感兴趣的刺激物激活BMDMs以诱导细胞死亡。
注意:本方案以甲型流感病毒(IAV)、单纯疱疹病毒1型(HSV1)、Francisella novicida 和LPS + ATP为例进行说明,但也可使用其他刺激物。- 示例刺激1:用IAV(A/Puerto Rico/8/34,H1N1 [PR8])感染(按Hoffmann等75的方法构建;通过MDCK细胞的蚀斑实验测定感染复数[MOI]所用的病毒滴度):
- 使用公式(1)和公式(2)计算在感染复数(MOI)为20个蚀斑形成单位(PFU)时所需的病毒感染体积:

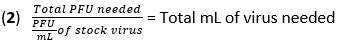
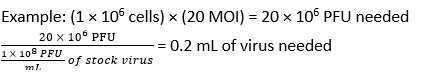
- 移除BMDMs中的培养基,用500 µL PBS洗涤细胞一次。每孔加入450 µL不含热灭活(HI)-FBS的高糖DMEM配制的IAV(20 MOI)。将培养板置于37 °C湿润培养箱中孵育1小时,以允许病毒吸附。
- 取出培养板,每孔加入50 µL HI-FBS。将培养板放回37 °C培养箱中,继续孵育至总时长为12小时。
- 使用公式(1)和公式(2)计算在感染复数(MOI)为20个蚀斑形成单位(PFU)时所需的病毒感染体积:
- 示例刺激2:用HSV1(HF株;按先前描述的方法培养44;通过Vero细胞的蚀斑实验测定MOI所用的病毒滴度)感染:
- 使用上述IAV感染部分第1步中的公式(1)和公式(2),计算在MOI为10 PFU时所需的病毒体积。
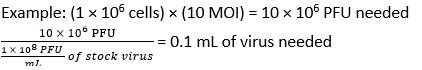
- 移除BMDMs中的培养基。每孔加入450 µL不含HI-FBS的高糖DMEM配制的HSV1(MOI 10)。将培养板置于37 °C湿润培养箱中孵育1小时,以允许病毒吸附。
- 取出培养板,每孔加入50 µL HI-FBS。将培养板放回37 °C培养箱中,继续孵育至总时长为12小时。
- 使用上述IAV感染部分第1步中的公式(1)和公式(2),计算在MOI为10 PFU时所需的病毒体积。
- 示例刺激3:用F. novicida(U112株;按先前描述的方法44在37 °C有氧条件下,于添加了0.2% L-半胱氨酸的BBL胰蛋白酶大豆肉汤中过夜培养。然后将细菌以1:10的比例在新鲜培养基中于37 °C再次传代培养4小时,之后以新鲜培养基为空白对照,在600 nm处测定光密度(OD)。OD值为1相当于每毫升含1 × 10⁹个菌落形成单位(CFU))感染:
- 使用公式(3)和公式(4)计算在MOI为50 CFU时所需的F. novicida体积:

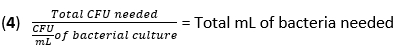
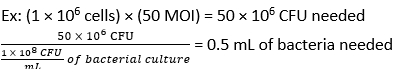
- 移除BMDMs中的培养基。每孔加入500 µL不含抗生素的BMDM刺激培养基配制的F. novicida(MOI 50)。将培养板置于37 °C湿润培养箱中孵育4小时,以允许细菌吸附。
- 用预热(37 °C)的PBS洗涤细胞三次,每孔加入含50 µg/mL庆大霉素的500 µL BMDM刺激培养基。将培养板放回37 °C培养箱中,过夜孵育(16小时)。
- 使用公式(3)和公式(4)计算在MOI为50 CFU时所需的F. novicida体积:
- 示例刺激4:用LPS + ATP刺激。
- 移除BMDMs中的培养基。每孔加入含100 ng/mL LPS和抗生素(表 1)的500 µL BMDM刺激培养基。将培养板置于37 °C湿润培养箱中孵育3.5小时。
- 每孔加入5 µL 0.5 M ATP储备溶液(表 1)。将培养板放回37 °C培养箱中,继续孵育30分钟。
- 示例刺激1:用IAV(A/Puerto Rico/8/34,H1N1 [PR8])感染(按Hoffmann等75的方法构建;通过MDCK细胞的蚀斑实验测定感染复数[MOI]所用的病毒滴度):
5. 收集合并的上清液和蛋白裂解物用于caspase蛋白免疫印迹分析
- 孵育 4 小时、12 小时或 16 小时后(具体时间取决于所使用的诱导剂),从孵育箱中取出培养板。
- 移除 150 µL 上清液;可弃去或保存用于其他上清液分析(例如酶联免疫吸附测定 [ELISA])。不要移除剩余的上清液。
- 通过将每孔 50 µL caspase 裂解缓冲液与 100 µL 4x SDS 缓冲液混合,制备蛋白收集液(表 1)。然后,向每孔中加入 150 µL 该混合液。
- 对于每孔,用移液器反复吹打混合液,以收集裂解的细胞和上清液。吹打时,同时用移液器吸头刮擦孔底,以充分裂解细胞。刮擦和吹打后,将蛋白裂解液收集至已标记的 1.5 mL 离心管中。
- 使用加热金属块将所有离心管在 100 °C 加热 12 分钟。
- 在室温下以 14,500 × g 离心 30 秒,使不溶性成分沉淀。
注意:此为暂停点——合并后的上清液与蛋白裂解液可立即使用,或在 −20 °C 保存最多 2 个月,或在 −80 °C 保存最多 6 个月,待使用时取出。
6. 收集用于caspase蛋白印迹的蛋白裂解液
- 孵育 4 小时、12 小时或 16 小时后(具体时间取决于所使用的诱导剂),从孵箱中取出培养板。吸除全部上清液;可将其弃去或保存用于其他上清液分析(例如 ELISA)。
- 通过将 2x RIPA 储存液(表 1)与等体积的去离子水混合,配制 1x RIPA 缓冲液。然后加入一片磷酸酶抑制剂片剂和一片蛋白酶抑制剂片剂,并使其充分溶解。向每个孔中加入 150 µL 1x RIPA 缓冲液和 50 µL 4x SDS。
- 对于每个孔,用移液器反复吹打混合液以收集裂解的细胞。吹打的同时,用移液器吸头轻轻刮擦孔底,以充分破坏细胞。刮擦和吹打完成后,将蛋白裂解液收集至已标记的 1.5 mL 离心管中。
- 使用金属加热块将所有离心管在 100 °C 下加热 12 分钟。
- 在室温下以 14,500 × g 离心 30 秒,沉淀不溶性组分。
注意:此为暂停点——蛋白裂解液可立即使用,也可在 −20 °C 或 −80 °C 下保存,待使用时取出。
7. 使用上述步骤收集的BMDM裂解物或组织匀浆物进行蛋白质印迹分析
注意:如果使用组织,可通过手动或电动组织匀浆器进行匀浆。Simpson76 提供的方案对组织匀浆过程有详细描述。
- 制备1x电泳缓冲液:将200 mL的5x电泳缓冲液原液(表1) 和 800 mL 去离子水。每次实验前现配该 1x 电泳缓冲液。
- 使用含有10个加样孔的12%(wt/vol)聚丙烯酰胺凝胶制备电泳装置。向电泳装置中加入1×电泳缓冲液。随后,取出凝胶梳子。
注意:为分析每个样本的caspase-1、caspase-11、caspase-3、caspase-7、caspase-8和caspase-9,需要六块凝胶。 - 对于caspase-1、caspase-3、caspase-7和caspase-8的蛋白印迹实验,需计划使用 30 µL 联合上清液和蛋白裂解液在caspase裂解缓冲液中的混合物,或组织匀浆液。对于caspase-11和caspase-9的免疫印迹实验,计划使用 20 µL RIPA缓冲液中的蛋白裂解液或组织匀浆。如果样品已保存在−20 °C 或 −80 °C先在冰上解冻。
- 所有样品均加热至 100 °C 5 分钟,然后在 14,500 × g 30 秒 4 °C 上样前。然后,缓慢上样 20 或 30 µL 将样品加入每个泳道中,避免样品溢出至其他泳道。若需同时检测全部六种caspase,请采用相同步骤将相应样品分别加入六块凝胶的各泳道中。
- 将电泳装置连接至电源。然后,以80 V电压运行20分钟以开始电泳,随后将电压调整至130 V,继续运行45–60分钟。
- 密切观察染料前沿,当染料前沿到达凝胶底部但尚未被推出凝胶时,关闭电源。
- 电泳进行的同时,通过将700 mL去离子水与100 mL 10x 转膜缓冲液储备液混合,配制1x 转膜缓冲液(表1),以及200 mL甲醇。每次使用前需新鲜配制1x溶液。
注意:甲醇易燃,配制转移缓冲液时需远离明火。 - 使用凝胶释放器从电泳装置中轻轻取出凝胶。
- 为每块凝胶设置一个转膜装置。
- 将PVDF膜在甲醇中浸泡1分钟以活化。
- 将两张滤纸、凝胶和 PVDF 膜在转移缓冲液中预先润湿 5 分钟。在此 5 分钟孵育期间,将 PVDF 膜和凝胶分别置于不同的容器中。
- 在半干式转膜系统上组装转移叠层。从底部铂阳极开始,依次放置一张滤纸、PVDF膜、凝胶,最后再放一张滤纸。轻轻滚压或按压以排除各层之间的气泡,然后合上系统的上盖。确保安全盖已固定到位后再进行后续操作。
- 连接电源,将电压设为 25 V,持续 45 分钟。
- 转膜完成后,拆开转膜装置,取出膜并放入方形培养皿(孵育托盘)中。
- 通过加入15 mL 5%(wt/vol)脱脂牛奶溶液进行膜封闭(表1在室温下,将膜置于摇床上以50 rpm至70 rpm孵育1小时。
注意:此处为暂停点——膜可在1 h后移除,或继续保存在封闭液中 4 °C 过夜。 - 孵育1小时或过夜后,移除封闭液。加入10 mL稀释的抗体溶液(抗caspase-1抗体、抗caspase-11抗体、抗caspase-3与抗cleaved caspase-3抗体混合液、抗caspase-7与抗cleaved caspase-7抗体混合液、抗caspase-8与抗cleaved caspase-8抗体混合液,或抗caspase-9抗体)表1)。置于摇床中,以50 rpm至70 rpm振荡,室温孵育2小时或 4 °C 过夜(16 h)。
- 收集抗体溶液(可重复使用最多3次或弃去),加入15 mL TBST进行洗涤(表1) 置于室温下,以50 rpm至70 rpm在摇床上孵育10分钟。弃去TBST。
- 按照第14步,用15 mL TBST重复洗涤,共3次。
- 加入10 mL稀释的HRP标记二抗溶液(针对使用caspase-3、caspase-7、caspase-8或caspase-9一抗孵育的印迹膜使用抗兔二抗;针对使用caspase-1一抗孵育的印迹膜使用抗鼠二抗;针对使用caspase-11一抗孵育的印迹膜使用抗鼠二抗)(表1在室温下以50 rpm至70 rpm的转速于摇床上孵育1小时。
- 移除抗体溶液,加入15 mL TBST,在室温下以50 rpm至70 rpm在摇床中孵育10分钟进行洗涤。弃去TBST。
- 按照第17步,用15 mL TBST重复洗涤共3次。
- 向膜中加入10 mL高灵敏度HRP底物。室温避光孵育1分钟。
- 将膜从底物上取下,立即使用化学发光成像仪进行成像,成像仪的下层位置需插入配件中的白色透射托盘。将膜置于成像仪中进行曝光。 自动曝光模式 (通常约为 ~1-2 分钟曝光时间).
- 使用caspase-9或caspase-11印迹的膜(即含有RIPA裂解液样品的膜),加入10 mL洗脱缓冲液,在室温下于摇床上以50 rpm至70 rpm振荡孵育5分钟。
- 弃去剥离缓冲液,加入 15 mL TBST,室温下于 50 rpm 至 70 rpm 摇床上孵育 10 分钟进行洗涤。弃去 TBST。
- 按照第22步,用15 mL TBST重复洗涤,共3次。
- 加入15 mL 5%(wt/vol)脱脂奶粉溶液进行膜封闭。将膜置于摇床上,室温下以50 rpm至70 rpm振荡孵育1小时。
注意:此处为暂停点——膜可在1小时后取出,或继续保存在封闭液中 4 °C 过夜。 - 孵育1小时或过夜后,移除封闭液。加入10 mL稀释后的抗β-actin(HRP标记)抗体溶液,置于摇床上,以50 rpm至70 rpm振荡,室温孵育1.5小时。
- 移除抗体溶液,加入15 mL TBST,在室温下以50 rpm至70 rpm在摇床中洗涤膜10分钟。弃去TBST。
- 按照第26步,用15 mL TBST重复洗涤,共3次。
- 向膜中加入10 mL标准灵敏度HRP底物。室温避光孵育1分钟。
- 直接进行成像,使用化学发光成像仪,并将配件白色透射托盘置于下方位置。利用该仪器曝光膜 自动曝光模式 (通常 <1 分钟曝光时间).
访问受限。请登录或开始试用以查看此内容。
结果
PAN凋亡已被发现可响应多种细菌、病毒和真菌感染以及其他炎性刺激,同时也存在于癌细胞中44,48,49,50,51,52,53,54,56,57,58,60,61<...
访问受限。请登录或开始试用以查看此内容。
讨论
监测caspase的切割与活化是了解天然免疫程序性细胞死亡(PCD)激活过程的最全面方法之一,该过程是天然免疫反应的重要组成部分。本文所述方案展示了一种策略,可用于监测流感病毒(IAV)、单纯疱疹病毒1型(HSV1)和F. novicida感染以及非感染性刺激物LPS联合ATP所诱导的caspase活化。然而,已有大量研究证明,多种其他刺激物也可诱导PCD,并适用于本方法44,48,49,50,51,52,53,54,56...
访问受限。请登录或开始试用以查看此内容。
披露
T.-D.K. 是辉瑞公司的顾问。
致谢
感谢Kanneganti实验室成员的评论和建议,并感谢J. Gullett博士提供的科学编辑支持。本实验室的工作由美国国立卫生研究院(NIH)资助,项目编号为AI101935、AI124346、AI160179、AR056296和CA253095(授予T.-D.K.),以及由美籍黎巴嫩裔和叙利亚裔慈善协会(American Lebanese Syrian Associated Charities)资助(授予T.-D.K.)。本内容仅由作者负责,不代表美国国立卫生研究院的官方观点。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.45 μm 滤膜 | Millipore | SCHVU05RE | |
| 10 mL 注射器 | BD Biosciences | 309604 | |
| 12% 聚丙烯酰胺凝胶(10 孔) | Bio-Rad | 4561043 | |
| 12 孔板 | Corning | 07-200-82 | |
| 18 G 针头 | BD Biosciences | 305195 | |
| 25 G 针头 | BD Biosciences | 305122 | |
| 50 mL 离心管 | Fisher Scientific | 50-809-218 | |
| 70 μm 细胞滤网 | Corning | 431751 | |
| 150 mm 组织培养皿 | Corning | 430597 | |
| 182 cm2 组织培养瓶 | Genesee Scientific | 25-211 | |
| 白色附件透析托盘 | Cytiva | 29-0834-18 | |
| 抗–胱天蛋白酶-1 抗体 | AdipoGen | AG-20B-0042-C100 | |
| 抗–胱天蛋白酶-11 抗体 | Novus Biologicals | NB120-10454 | |
| 抗–胱天蛋白酶-3 抗体 | Cell Signaling Technology | 9662 | |
| 抗–胱天蛋白酶-7 抗体 | Cell Signaling Technology | 9492 | |
| 抗–胱天蛋白酶-8 抗体 | Cell Signaling Technology | 4927 | |
| 抗–胱天蛋白酶-9 抗体 | Cell Signaling Technology | 9504 | |
| 抗–活化胱天蛋白酶-3 抗体 | Cell Signaling Technology | 9661 | |
| 抗–活化胱天蛋白酶-7 抗体 | Cell Signaling Technology | 9491 | |
| 抗–活化胱天蛋白酶-8 抗体 | Cell Signaling Technology | 8592 | |
| 抗小鼠 HRP 标记二抗 | Jackson ImmunoResearch Laboratories | 315-035-047 | |
| 抗兔 HRP 标记二抗 | Jackson ImmunoResearch Laboratories | 111-035-047 | |
| 抗大鼠 HRP 标记二抗 | Jackson ImmunoResearch Laboratories | 112-035-003 | |
| 抗–β-肌动蛋白抗体 (C4) HRP | Santa Cruz | sc-47778 HRP | |
| ATP | InvivoGen | tlrl-atpl | |
| BBL 胰蛋白酶大豆肉汤 | BD Biosciences | 211768 | |
| 珠浴器 | Chemglass Life Sciences | CLS-4598-009 | |
| Biophotometer D30 | Eppendorf | 6133000010 | |
| BME | Sigma | M6250 | |
| 溴酚蓝 | Sigma | BO126 | |
| 细胞刮刀 | CellTreat Scientific Products | 229315 | |
| 化学发光成像仪(Amersham 600) | Cytiva | 29083461 | |
| CO2 培养箱 | VetEquip | 901703 | |
| 比色皿 | Fisher Scientific | 14-955-129 | |
| 解剖剪刀 | Thermo Fisher Scientific | 221S | |
| DMEM | Thermo Fisher Scientific | 11995-073 | |
| DTT | Sigma | 43815 | |
| 电泳装置 | Bio-Rad | 1658004 | |
| 乙醇 | Pharmco | 111000200 | |
| 胎牛血清 | Biowest | S1620 | |
| 滤纸 | Bio-Rad | 1703965 | |
| 镊子 | Fisher Scientific | 22-327379 | |
| 新凶手弗朗西斯菌(U112 菌株) | BEI Resources | NR-13 | |
| 凝胶释放器 | Bio-Rad | 1653320 | |
| 庆大霉素 | Gibco | 15750060 | |
| 甘油 | Sigma | G7893 | |
| 甘氨酸 | Sigma | G8898 | |
| HCl | Sigma | H9892 | |
| 加热块 | Fisher Scientific | 23-043-160 | |
| 单纯疱疹病毒 1 型(HF 菌株) | ATCC | VR-260 | |
| 高糖 DMEM | Sigma | D6171 | |
| 人抗–胱天蛋白酶-1 抗体 | R&D Systems | MAB6215 | |
| 人抗–胱天蛋白酶-8 抗体 | Enzo | ALX-804-242 | |
| 加湿培养箱 | Thermo Fisher Scientific | 51026282 | |
| 图像分析软件 | ImageJ | v1.53a | |
| IMDM | Thermo Fisher Scientific | 12440-053 | |
| 甲型流感病毒(A/Puerto Rico/8/34,H1N1 [PR8]) | 根据 Hoffmann 等人方法构建 | ||
| L929 细胞 | ATCC | CCL-1 | 用于制备 L929 条件培养基的细胞系 |
| L-半胱氨酸 | Thermo Fisher Scientific | BP376-100 | |
| Luminata Forte Western HRP 底物 | Millipore | WBLUF0500 | 标准灵敏度 HRP 底物 |
| MDCK 细胞 | ATCC | CCL-34 | 用于测定 IAV 病毒滴度的细胞系 |
| 甲醇 | Sigma | 322415 | |
| 微量离心机 | Thermo Fisher Scientific | 75002401 | |
| 非必需氨基酸 | Gibco | 11140050 | |
| 脱脂奶粉 | Kroger | ||
| NP-40 溶液 | Sigma | 492016 | |
| PBS | Thermo Fisher Scientific | 10010023 | |
| 青霉素和链霉素 | Sigma | P4333 | |
| 培养皿 | Fisher Scientific | 07-202-011 | |
| PhosSTOP | Roche | PHOSS-RO | |
| 电源 | Bio-Rad | 164-5052 | |
| 蛋白酶抑制剂片剂 | Sigma | S8820 | |
| PVDF 膜 | Millipore | IPVH00010 | |
| 摇床 | Labnet | S2035-E | |
| SDS | Sigma | L3771 | |
| 氯化钠 | Sigma | S9888 | |
| 脱氧胆酸钠 | Sigma | 30970 | |
| 氢氧化钠 | Sigma | 72068 | |
| 丙酮酸钠 | Gibco | 11360-070 | |
| 方形培养皿 | Fisher Scientific | FB0875711A | |
| 洗脱缓冲液 | Thermo Fisher Scientific | 21059 | |
| Super Signal Femto HRP 底物 | Thermo Fisher Scientific | 34580 | 高灵敏度 HRP 底物 |
| 台式离心机 | Thermo Fisher Scientific | 75004524 | |
| Trans-Blot 半干转印系统 | Bio-Rad | 170-3940 | |
| Tris | Sigma | TRIS-RO | |
| Tween 20 | Sigma | P1379 | |
| 大肠杆菌 0111:B4 超纯脂多糖(LPS) | InvivoGen | tlrl-3pelps | |
| Vero 细胞 | ATCC | CCL-81 | 用于测定 HSV1 病毒滴度的细胞系 |
参考文献
- Alnemri, E. S., et al. Human ICE/CED-3 protease nomenclature. Cell. 87 (2), 171(1996).
- Man, S. M., Kanneganti, T. D. Converging roles of caspases in inflammasome activation, cell death and innate immunity. Nature Reviews Immunology. 16 (1), 7-21 (2016).
- Gullett, J. M., Tweedell, R. E., Kanneganti, T. D. It's all in the PAN: Crosstalk, plasticity, redundancies, switches, and interconnectedness encompassed by PANoptosis underlying the totality of cell death-associated biological effects. Cells. 11 (9), 1495(2022).
- Pandian, N., Kanneganti, T. D. PANoptosis: A unique innate immune inflammatory cell death modality. Journal of Immunology. 209 (9), 1625-1633 (2022).
- Galluzzi, L., et al. Molecular mechanisms of cell death recommendations of the Nomenclature Committee on Cell Death 2018. Cell Death & Differentiation. 25 (3), 486-541 (2018).
- Shi, Y. Caspase activation: Revisiting the induced proximity model. Cell. 117 (7), 855-858 (2004).
- Galluzzi, L., Lopez-Soto, A., Kumar, S., Kroemer, G. Caspases connect cell-death signaling to organismal homeostasis. Immunity. 44 (2), 221-231 (2016).
- Fernandes-Alnemri, T., Litwack, G., Alnemri, E. S. CPP32, a novel human apoptotic protein with homology to Caenorhabditis elegans cell death protein Ced-3 and mammalian interleukin-1 beta-converting enzyme. Journal of Biological Chemistry. 269 (49), 30761-30764 (1994).
- Tewari, M., et al. Yama/CPP32 beta, a mammalian homolog of CED-3, is a CrmA-inhibitable protease that cleaves the death substrate poly(ADP-ribose) polymerase. Cell. 81 (5), 801-809 (1995).
- Nicholson, D. W., et al. Identification and inhibition of the ICE/CED-3 protease necessary for mammalian apoptosis. Nature. 376 (6535), 37-43 (1995).
- Stennicke, H. R., et al. Pro-caspase-3 is a major physiologic target of caspase-8. Journal of Biological Chemistry. 273 (42), 27084-27090 (1998).
- Twiddy, D., Cohen, G. M., Macfarlane, M., Cain, K. Caspase-7 is directly activated by the approximately 700-kDa apoptosome complex and is released as a stable XIAP-caspase-7 approximately 200-kDa complex. Journal of Biological Chemistry. 281 (7), 3876-3888 (2006).
- Kesavardhana, S., Malireddi, R. K. S., Kanneganti, T. D. Caspases in cell death, inflammation, and pyroptosis. Annual Reviews of Immunology. 38, 567-595 (2020).
- Kerr, J. F., Wyllie, A. H., Currie, A. R. Apoptosis: a basic biological phenomenon with wide-ranging implications in tissue kinetics. British Journal of Cancer. 26 (4), 239-257 (1972).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: Controlled demolition at the cellular level. Nature Reviews Molecular Cell Biology. 9 (3), 231-241 (2008).
- Morioka, S., Maueröder, C., Ravichandran, K. S. Living on the edge: Efferocytosis at the interface of homeostasis and pathology. Immunity. 50 (5), 1149-1162 (2019).
- Wang, Y., et al. Chemotherapy drugs induce pyroptosis through caspase-3 cleavage of a gasdermin. Nature. 547 (7661), 99-103 (2017).
- Rogers, C., et al. Cleavage of DFNA5 by caspase-3 during apoptosis mediates progression to secondary necrotic/pyroptotic cell death. Nature Communications. 8, 14128(2017).
- Kayagaki, N., et al. Caspase-11 cleaves gasdermin D for non-canonical inflammasome signalling. Nature. 526 (7575), 666-671 (2015).
- Shi, J., Gao, W., Shao, F. Pyroptosis: Gasdermin-mediated programmed necrotic cell death. Trends in Biochemical Sciences. 42 (4), 245-254 (2017).
- Sborgi, L., et al. GSDMD membrane pore formation constitutes the mechanism of pyroptotic cell death. EMBO Journal. 35 (16), 1766-1778 (2016).
- Aglietti, R. A., et al. GsdmD p30 elicited by caspase-11 during pyroptosis forms pores in membranes. Proceedings of the National Academy of Sciences of the United States of America. 113 (28), 7858-7863 (2016).
- Hagar, J. A., Powell, D. A., Aachoui, Y., Ernst, R. K., Miao, E. A. Cytoplasmic LPS activates caspase-11: implications in TLR4-independent endotoxic shock. Science. 341 (6151), 1250-1253 (2013).
- Kayagaki, N., et al. Noncanonical inflammasome activation by intracellular LPS independent of TLR4. Science. 341 (6151), 1246-1249 (2013).
- Shi, J., et al. Inflammatory caspases are innate immune receptors for intracellular LPS. Nature. 514 (7521), 187-192 (2014).
- Lamkanfi, M., et al. Targeted peptidecentric proteomics reveals caspase-7 as a substrate of the caspase-1 inflammasomes. Molecular & Cellular Proteomics. 7 (12), 2350-2363 (2008).
- Kalai, M., et al. Tipping the balance between necrosis and apoptosis in human and murine cells treated with interferon and dsRNA. Cell Death & Differentiation. 9 (9), 981-994 (2002).
- Li, C., et al. Development of atopic dermatitis-like skin disease from the chronic loss of epidermal caspase-8. Proceedings of the National Academy of Sciences of the United States of America. 107 (51), 22249-22254 (2010).
- Kovalenko, A., et al. Caspase-8 deficiency in epidermal keratinocytes triggers an inflammatory skin disease. Journal of Experimental Medicine. 206 (10), 2161-2177 (2009).
- Kang, T. B., et al. Caspase-8 serves both apoptotic and nonapoptotic roles. Journal of Immunology. 173 (5), 2976-2984 (2004).
- Oberst, A., et al. Catalytic activity of the caspase-8-FLIP(L) complex inhibits RIPK3-dependent necrosis. Nature. 471 (7338), 363-367 (2011).
- Kaiser, W. J., et al. RIP3 mediates the embryonic lethality of caspase-8-deficient mice. Nature. 471 (7338), 368-372 (2011).
- Zhang, H., et al. Functional complementation between FADD and RIP1 in embryos and lymphocytes. Nature. 471 (7338), 373-376 (2011).
- Shi, J., et al. Cleavage of GSDMD by inflammatory caspases determines pyroptotic cell death. Nature. 526 (7575), 660-665 (2015).
- Hitomi, J., et al. Identification of a molecular signaling network that regulates a cellular necrotic cell death pathway. Cell. 135 (7), 1311-1323 (2008).
- Malireddi, R. K., Ippagunta, S., Lamkanfi, M., Kanneganti, T. D. Cutting edge: Proteolytic inactivation of poly(ADP-ribose) polymerase 1 by the Nlrp3 and Nlrc4 inflammasomes. Journal of Immunology. 185 (6), 3127-3130 (2010).
- Tsuchiya, K., et al. Caspase-1 initiates apoptosis in the absence of gasdermin D. Nature Communications. 10 (1), (2019).
- Taabazuing, C. Y., Okondo, M. C., Bachovchin, D. A. Pyroptosis and apoptosis pathways engage in bidirectional crosstalk in monocytes and macrophages. Cell Chemical Biology. 24 (4), 507-514 (2017).
- Gurung, P., et al. FADD and caspase-8 mediate priming and activation of the canonical and noncanonical Nlrp3 inflammasomes. Journal of Immunology. 192 (4), 1835-1846 (2014).
- Man, S. M., et al. Inflammasome activation causes dual recruitment of NLRC4 and NLRP3 to the same macromolecular complex. Proceedings of the National Academy of Sciences of the United States of America. 111 (20), 7403-7408 (2014).
- Man, S. M., et al. Salmonella infection induces recruitment of Caspase-8 to the inflammasome to modulate IL-1beta production. Journal of Immunology. 191 (10), 5239-5246 (2013).
- Van Opdenbosch, N., et al. Caspase-1 engagement and TLR-induced c-FLIP expression suppress ASC/caspase-8-dependent apoptosis by inflammasome sensors NLRP1b and NLRC4. Cell Reports. 21 (12), 3427-3444 (2017).
- Pierini, R., et al. AIM2/ASC triggers caspase-8-dependent apoptosis in Francisella-infected caspase-1-deficient macrophages. Cell Death & Differentiation. 19 (10), 1709-1721 (2012).
- Lee, S., et al. AIM2 forms a complex with pyrin and ZBP1 to drive PANoptosis and host defence. Nature. 597 (7876), 415-419 (2021).
- Sagulenko, V., et al. AIM2 and NLRP3 inflammasomes activate both apoptotic and pyroptotic death pathways via ASC. Cell Death & Differentiation. 20 (9), 1149-1160 (2013).
- Lukens, J. R., et al. Dietary modulation of the microbiome affects autoinflammatory disease. Nature. 516 (7530), 246-249 (2014).
- Gurung, P., Burton, A., Kanneganti, T. D. NLRP3 inflammasome plays a redundant role with caspase 8 to promote IL-1beta-mediated osteomyelitis. Proceedings of the National Academy of Sciences of the United States of America. 113 (16), 4452-4457 (2016).
- Kuriakose, T., et al. ZBP1/DAI is an innate sensor of influenza virus triggering the NLRP3 inflammasome and programmed cell death pathways. Science Immunology. 1 (2), (2016).
- Malireddi, R. K. S., et al. TAK1 restricts spontaneous NLRP3 activation and cell death to control myeloid proliferation. Journal of Experimental Medicine. 215 (4), 1023-1034 (2018).
- Malireddi, R. K. S., et al. Innate immune priming in the absence of TAK1 drives RIPK1 kinase activity-independent pyroptosis, apoptosis, necroptosis, and inflammatory disease. Journal of Experimental Medicine. 217 (3), (2020).
- Christgen, S., et al. Identification of the PANoptosome: A molecular platform triggering pyroptosis, apoptosis, and necroptosis (PANoptosis). Frontiers in Cellular and Infection Microbiology. 10, 237(2020).
- Malireddi, R. K. S., et al. RIPK1 distinctly regulates Yersinia-induced inflammatory cell death, PANoptosis. Immunohorizons. 4 (12), 789-796 (2020).
- Zheng, M., Karki, R., Vogel, P., Kanneganti, T. D. Caspase-6 is a key regulator of innate immunity, inflammasome activation, and host defense. Cell. 181 (3), 674-687 (2020).
- Karki, R., et al. ADAR1 restricts ZBP1-mediated immune response and PANoptosis to promote tumorigenesis. Cell Reports. 37 (3), 109858(2021).
- Wang, Y., et al. Single cell analysis of PANoptosome cell death complexes through an expansion microscopy method. Cellular and Molecular Life Sciences. 79 (10), 531(2022).
- Malireddi, R. K. S., et al. Inflammatory cell death, PANoptosis, mediated by cytokines in diverse cancer lineages inhibits tumor growth. Immunohorizons. 5 (7), 568-580 (2021).
- Kesavardhana, S., et al. The Zα2 domain of ZBP1 is a molecular switch regulating influenza-induced PANoptosis and perinatal lethality during development. Journal of Biological Chemistry. 295 (24), 8325-8330 (2020).
- Banoth, B., et al. ZBP1 promotes fungi-induced inflammasome activation and pyroptosis, apoptosis, and necroptosis (PANoptosis). Journal of Biological Chemistry. 295 (52), 18276-18283 (2020).
- Karki, R., et al. Interferon regulatory factor 1 regulates PANoptosis to prevent colorectal cancer. JCI Insight. 5 (12), 136720(2020).
- Zheng, M., et al. Impaired NLRP3 inflammasome activation/pyroptosis leads to robust inflammatory cell death via caspase-8/RIPK3 during coronavirus infection. Journal of Biological Chemistry. 295 (41), 14040-14052 (2020).
- Karki, R., et al. Synergism of TNF-α and IFN-γ triggers inflammatory cell death, tissue damage, and mortality in SARS-CoV-2 infection and cytokine shock syndromes. Cell. 184 (1), 149-168 (2021).
- Karki, R., et al. ZBP1-dependent inflammatory cell death, PANoptosis, and cytokine storm disrupt IFN therapeutic efficacy during coronavirus infection. Science Immunology. 7 (74), (2022).
- Jiang, W., Deng, Z., Dai, X., Zhao, W. PANoptosis: A new insight into oral infectious diseases. Frontiers in Immunology. 12, 789610(2021).
- Chi, D., et al. Real-time induction of macrophage apoptosis, pyroptosis, and necroptosis by Enterococcus faecalis OG1RF and two root canal isolated strains. Frontiers in Cellular and Infection Microbiology. 11, 720147(2021).
- Lin, J. F., et al. Phosphorylated NFS1 weakens oxaliplatin-based chemosensitivity of colorectal cancer by preventing PANoptosis. Signal Transduction and Targeted Therapy. 7 (1), 54(2022).
- Song, M., et al. Self-assembled polymeric nanocarrier-mediated co-delivery of metformin and doxorubicin for melanoma therapy. Drug Delivery. 28 (1), 594-606 (2021).
- Boucher, D., Chan, A., Ross, C., Schroder, K. Quantifying caspase-1 activity in murine macrophages. Methods in Molecular Biology. 1725, 163-176 (2018).
- Boucher, D., Duclos, C., Denault, J. B. General in vitro caspase assay procedures. Methods in Molecular Biology. 1133, 3-39 (2014).
- Kaushal, V., Herzog, C., Haun, R. S., Kaushal, G. P. Caspase protocols in mice. Methods in Molecular Biology. 1133, 141-154 (2014).
- Swacha, P., Gekara, N. O., Erttmann, S. F. Biochemical and microscopic analysis of inflammasome complex formation. Methods in Enzymology. 625, 287-298 (2019).
- Talley, S., et al. A caspase-1 biosensor to monitor the progression of inflammation in vivo. Journal of Immunology. 203 (9), 2497-2507 (2019).
- Pelegrin, P., Barroso-Gutierrez, C., Surprenant, A. P2X7 receptor differentially couples to distinct release pathways for IL-1beta in mouse macrophage. Journal of Immunology. 180 (11), 7147-7157 (2008).
- Yu, J. W., et al. Cryopyrin and pyrin activate caspase-1, but not NF-kappaB, via ASC oligomerization. Cell Death & Differentiation. 13 (2), 236-249 (2006).
- Henry, C. M., Martin, S. J. Caspase-8 acts in a non-enzymatic role as a scaffold for assembly of a pro-inflammatory "FADDosome" complex upon TRAIL stimulation. Molecular Cell. 65 (4), 715-729 (2017).
- Hoffmann, E., Neumann, G., Kawaoka, Y., Hobom, G., Webster, R. G. A DNA transfection system for generation of influenza A virus from eight plasmids. Proceedings of the National Academy of Sciences of the United States of America. 97 (11), 6108-6113 (2000).
- Simpson, R. J. Homogenization of mammalian tissue. Cold Spring Harbor Protocols. (7), (2010).
访问受限。请登录或开始试用以查看此内容。
重印与许可
