本方案描述了建立小鼠子宫内膜上皮类器官以进行基因表达和组织学分析的方法。
本文内容
摘要
摘要
子宫内膜组织衬于子宫内腔,受雌激素和孕激素的周期性调控。该组织由腔上皮和腺上皮、间质区室、血管网络以及复杂的免疫细胞群体组成。小鼠模型已成为研究子宫内膜的有力工具,揭示了调控胚胎着床、胎盘形成及癌症发生的关键机制。近年来发展的三维子宫内膜类器官培养技术,为解析子宫内膜生物学背后的信号通路提供了前沿模型。利用基因工程小鼠模型建立子宫内膜类器官,分析其转录组,并在单细胞分辨率下观察其形态,是研究子宫内膜疾病的重要手段。本文概述了从小鼠建立子宫内膜上皮三维培养的方法,并描述了定量基因表达及分析类器官组织学的技术。目标是提供一种可用于建立、培养并研究子宫内膜上皮类器官基因表达与形态特征的资源。
引言
子宫内膜——子宫腔内层的黏膜组织——是一种独特且高度动态的组织,在女性生殖健康中发挥着关键作用。在生殖生命周期中,子宫内膜可在卵巢激素雌激素和孕激素的协同调控下,经历数百次的增殖、分化与脱落循环。通过对基因工程小鼠的研究,科学家揭示了子宫内膜对激素反应的基本生物学机制,以及胚胎着床、基质细胞蜕膜化和妊娠过程的调控机制1. 体外 然而,由于在传统二维细胞培养中难以维持未转化的原代小鼠子宫内膜组织,相关研究一直受到限制2,3近年来,子宫内膜组织以三维类器官(organoid)形式进行培养的技术取得了新进展,为研究调控子宫内膜细胞再生与分化的生物学通路提供了全新机遇。目前已利用包埋于不同基质中的纯子宫内膜上皮细胞,建立了小鼠和人类的子宫内膜类器官体系。4,5,而人类子宫内膜已被培养成无支架的上皮/间质共培养体系6,7,以及最近开发的胶原包封上皮/间质类组装体8上皮类器官培养物的生长与再生潜能依赖于一组经经验确定的生长因子和小分子抑制剂的特定组合,该组合可最大程度地促进类器官的生长与再生4,5,9此外,子宫内膜类器官的冻存与复苏能力使得小鼠和人类的子宫内膜类器官可长期保存,以供未来研究使用。
基因工程小鼠揭示了调控早期妊娠和蜕膜化的复杂信号通路,并已被用作妊娠丢失、子宫内膜癌和子宫内膜异位症的研究模型。这些遗传学研究主要通过在雌性生殖组织中特异性表达的Cre重组酶,实现对loxP位点侧翼等位基因("floxed")进行细胞特异性敲除而完成。这类小鼠模型包括广泛使用的孕酮受体-cre10,其在子宫内膜上皮和间质组织中具有强效的重组酶活性;乳铁蛋白i-cre,可在成年小鼠中诱导子宫内膜上皮的基因重组11;以及Wnt7a-cre,可在苗勒氏管来源的组织中触发上皮特异性基因删除12。将基因工程小鼠模型的子宫内膜组织以三维类器官形式进行培养,为研究子宫内膜生物学特性提供了极佳平台,并有助于鉴定调控子宫内膜细胞更新与分化的生长因子及信号通路13,14。已有文献描述了小鼠子宫内膜组织的分离与培养方法,报道了采用多种酶解策略分离子宫上皮组织,进而用于培养子宫内膜上皮类器官4。尽管既往研究为子宫内膜上皮类器官的培养提供了重要的技术框架4,5,6,本文则提供了一种清晰、全面的方法,用于此类类器官的建立、维持、处理与分析。标准化这些技术对于推动女性生殖生物学领域的进步至关重要。本文报道了一种详细的实验方法,通过酶解与机械法联合纯化小鼠子宫内膜上皮组织,继而在凝胶基质支架中培养子宫内膜类器官。同时,我们还描述了对凝胶基质包埋的小鼠子宫内膜上皮类器官进行下游组织学与分子分析的技术方法。
方案
小鼠操作和实验研究均依照贝勒医学院机构动物照护与使用委员会(IACUC)批准的方案,并遵循美国国立卫生研究院(NIH)《实验动物照护与使用指南》所制定的规范进行。
1. 使用酶法和机械法从小鼠中分离子宫上皮组织
注意:本节描述了利用凝胶基质支架建立、传代、冻存和复苏小鼠子宫内膜上皮类器官所需的步骤。既往研究表明,从小鼠动情期阶段获取的组织建立的小鼠子宫内膜类器官培养效果最佳4,动情期可通过阴道涂片的细胞学检查确定15。所有实验均使用成年雌性野生型小鼠(6–8 周龄,C57BL/6J 与 129S5/SvEvBrd 杂交品系)。小鼠依据 IACUC 批准的操作指南,经异氟烷麻醉后行颈椎脱位法人道处死。小鼠处死后,应按照以下步骤进行操作。有关本实验方案所用材料和溶液的详细信息,请参见材料表。
- 将凝胶基质置于冰上解冻约1-2小时后再使用。
- 解剖小鼠时,使用剪刀在腹部中线处做一纵向切口,轻轻掀开皮肤以暴露下方的腹膜层。用镊子提起腹膜层,并用剪刀做横向切口以暴露腹腔内容物。
- 轻轻拨开腹部脂肪垫以定位子宫角。从宫颈连接处夹住子宫角,用剪刀沿肠系膜脂肪进行剪切分离。在完成小鼠子宫的解剖后,使用小剪刀彻底清除子宫角上的脂肪组织。
注意:细胞分离过程中需保持无菌,使用前对所有手术器械进行灭菌,用70%乙醇喷洒小鼠腹部,并在无菌细胞培养罩内进行解剖后的所有操作步骤。
- 轻轻拨开腹部脂肪垫以定位子宫角。从宫颈连接处夹住子宫角,用剪刀沿肠系膜脂肪进行剪切分离。在完成小鼠子宫的解剖后,使用小剪刀彻底清除子宫角上的脂肪组织。
- 将每侧子宫角切成若干小段,每段长约4-5 mm。
- 将来自一个子宫的所有子宫组织碎片放入含有0.5 mL 1%胰蛋白酶的24孔板的一个孔中。让酶溶液进入子宫腔,以实现子宫内膜上皮与下方间质的酶解分离。
- 将24孔板置于37 ˚C湿润的组织培养孵育箱中孵育约1小时。
- 孵育1小时后,将子宫组织碎片转移至含有1 mL杜氏磷酸盐缓冲液(DPBS)的35 mm组织培养皿中。
- 在解剖显微镜下,使用精细镊子和1 mL移液枪通过机械方法将子宫上皮从子宫管中分离。用镊子夹住一段子宫组织的一端,将移液枪头沿组织纵轴轻轻滑动,从子宫管的另一端挤出上皮。在解剖显微镜下观察从子宫组织中分离出的上皮片层。
- 使用1 mL移液器收集上皮细胞片,并轻柔地转移至1.5 mL离心管中。
- 对剩余的子宫组织片段重复上述步骤,将所有上皮细胞片转移至同一收集管中。
- 通过离心以375 × g的离心力在5分钟内沉淀解离的上皮细胞片 g.
- 小心吸去上清液,避免扰动细胞沉淀。
- 将细胞沉淀重悬于0.5 mL含2.5 mg/mL胶原酶和2 mg/mL DNase的溶液中,上下吹打约10次,或直至获得单细胞悬液。
- 加入0.5 mL DMEM/F12 + 10% 胎牛血清(FBS)+ 抗生素,375 × g离心5分钟 g.
注意:有关细胞培养中使用的广谱抗生素的更多信息,请参见 材料表. - 小心吸除上清液,将细胞重悬于 1 mL DMEM/F12 + 10% FBS + 抗生素中。在 375 × g 条件下离心 5 分钟。 g.
2. 间质组分的处理
注意:本部分概述了分离小鼠子宫内膜基质区室所需的实验方案。鉴于上皮/基质共培养实验日益受到关注,除能够生成类器官的上皮细胞外,对基质细胞群体进行处理也至关重要。
- 当所有上皮组织已通过酶解和机械方法从子宫碎片中分离后,剩余的管状结构即为"间质/子宫肌层"组分。将此组织收集至含有2.5 mg/mL胶原酶和2 mg/mL DNase的HBSS溶液中。
- 将间质/子宫肌层样本置于37 ˚C摇床中孵育15分钟。
- 孵育结束后,每只小鼠加入500 µL DMEM/F12 + 10% FBS + 抗生素,并通过40 µm细胞滤网过滤未解离的组织碎片。
- 以375 × g 离心5分钟,沉淀细胞。
- 小心吸除上清液,将细胞沉淀重悬于1 mL DMEM/F12 + 10% FBS + 抗生素中,然后逐滴加入含10 mL DMEM/F12 + 10% FBS + 抗生素的10 cm细胞培养皿中。将培养皿置于37 ˚C、湿润的细胞培养箱中孵育。
- 为建立小鼠子宫内膜上皮细胞与间质细胞的共培养体系,可参照人子宫内膜类器官所描述的方法,采用无支架或胶原基质系统6,8。
注意:尽管这些技术尚未在小鼠中正式发表,但可根据已发表的人子宫内膜方案进行适当调整。
3. 将子宫上皮包埋于凝胶基质中以建立类器官
注意:在准备使用前,应将凝胶基质保持在冰上。
- 移去上清液,将细胞沉淀重悬于体积为细胞沉淀20倍的凝胶基质中(例如,若细胞沉淀为20 µL,则加入400 µL凝胶基质重悬细胞)。轻轻重悬沉淀,避免产生气泡。
- 让凝胶基质/细胞悬液在室温下静置约10分钟。
- 当凝胶基质/细胞悬液变为半固体凝胶后,使用带有宽口200 µL吸头的P200微量移液器轻柔吸取25 µL凝胶基质/细胞悬液。在12孔板的每个孔中分别加入三个25 µL的液滴,置于37 ˚C、湿润的组织培养孵箱中孵育15分钟,使凝胶基质充分固化。
- 凝胶基质固化后,向每孔含有凝胶基质半球的孔中加入750 µL类器官培养基。在37 ˚C、湿润的组织培养孵育箱中孵育。
注意:类器官培养基配方见文末 材料表类器官通常在初始培养后4天内形成。
4. 雌二醇处理后子宫内膜类器官的基因表达分析
注意:本节描述了使用实时定量聚合酶链式反应(qPCR)对经雌二醇(E2;见表1)处理后的子宫内膜上皮类器官进行基因表达谱分析的方法。由于子宫内膜受卵巢激素E2的周期性调控,检测类器官对E2的反应性是评估其生理功能的重要指标。我们已从子宫内膜上皮类器官中获得了高质量的RNA,并制备了足量的mRNA,可用于qPCR和/或RNA测序进行基因表达谱分析。本节介绍如何收集类器官并对其进行处理,以用于后续的基因表达分析。所选的处理培养基反映了用于培养子宫内膜细胞的常用培养基。然而,应注意的是,该处理培养基可根据具体实验需求进行优化,如同在人子宫内膜三维培养物的激素处理中所进行的优化8,16,17。
- 按照上述方法培养子宫内膜类器官。
- 接种后第四天,移除类器官培养基,并替换为 750 µL 饥饿培养基。过夜孵育。
- 次日早晨,移除饥饿培养基,加入含载体或 10 nM E2 的处理培养基 750 µL。孵育 48 小时。
- 按照试剂盒制造商提供的说明书进行 RNA 提取。
5. 子宫内膜类器官的组织学分析
注意:对子宫内膜类器官的形态特征进行成像,对于评估生长因子、基因操作或小分子抑制剂的细胞效应至关重要。本节介绍用于固定、处理和成像子宫内膜上皮类器官的技术,包括组织学染色和抗体免疫荧光染色方法。
- 准备含有1 mL 4%多聚甲醛(溶于1× PBS)的1.5 mL微量离心管,置于冰上。
- 吸除含有类器官的12孔板各孔中的培养基。
- 使用剪去尖端的1 mL移液枪头,向每个孔中加入500 µL 4%多聚甲醛,并轻轻将凝胶基质圆顶从孔底脱离。
- 轻柔地将整个凝胶基质圆顶吸入移液枪头,并转移至1.5 mL微量离心管中。
- 将类器官置于4 ˚C旋转仪上过夜,进行固定。
- 次日早晨,以600 × g 离心5分钟,使类器官沉淀。用移液器小心吸除4%多聚甲醛溶液并弃去。用70%乙醇洗涤类器官两次。
- 最后一次洗涤后,将管中乙醇保留50–100 µL,其余弃去。将离心管暂置一旁。
- 将一管组织处理胶置于水浴中,微波加热约30秒以融化胶体。注意观察胶体状态,防止其沸腾溢出。
注意:组织处理胶融化后,若未过热沸腾,应迅速操作以包埋类器官。 - 转移足量的组织处理胶以完全覆盖模具表面(约250 µL)。
- 在组织处理胶仍处于熔融状态时,迅速将含有类器官的50 µL 70%乙醇溶液转移至模具中。确保类器官沉入或被推至模具底部区域。
- 将组织学模具置于盛有冰的容器上,使组织处理胶冷却并凝固。
- 待组织处理胶完全凝固后,小心将凝固的胶块转移至标本袋中,并记录类器官所在平面位置。
- 将标本袋放入组织学包埋盒中,采用常规组织固定与石蜡包埋的标准方法进行处理18。
- 固定并石蜡包埋后,使用切片机切成5 µm厚的切片19。随后按照下文所述步骤进行常规苏木精-伊红(H&E)染色或免疫染色。
6. 苏木精 & 伊红染色
- 脱蜡处理切片,步骤如下:二甲苯,2 次,每次 10 分钟;100% 乙醇,2 次,每次 3 分钟;80% 乙醇,3 分钟;60% 乙醇,3 分钟;dH2O,2 次,每次 3 分钟;苏木精染色 1 分钟;自来水冲洗(3 次,每次 5 秒);伊红染色 1 分钟。
- 脱水处理切片,步骤如下:60% 乙醇,3 分钟;80% 乙醇,3 分钟;95% 乙醇,3 分钟;100% 乙醇,2 次,每次 3 分钟;二甲苯,2 次,每次 15 分钟。
- 使用封片介质封片。
7. 免疫荧光染色
- 按照步骤 6.1 所述方法对切片进行脱蜡。
- 进行抗原修复
- 将载玻片浸入耐微波容器中的抗原修复液中。
- 高火微波加热 20 分钟,每 5 分钟暂停一次,以防止溶液沸腾溢出。
- 完成 20 分钟抗原修复后,将载玻片继续浸没于抗原修复缓冲液中,在冰上冷却 40 分钟。
- 用 1× TBST 洗涤载玻片 3 分钟。
- 用含 3% BSA 的 TBST 在室温下孵育 1 小时,以封闭非特异性结合位点。
- 一抗孵育
- 用含 3% BSA 的 TBST 稀释一抗(稀释比例为 1:50–1:1,000,具体取决于抗体)。
- 在湿盒中 4 °C 过夜孵育。
- 用 TBST 洗涤 3 次,每次 5 分钟。
- 二抗孵育
- 用含 3% BSA 的 TBST(1:250 稀释)或 5% 正常驴血清稀释二抗。
- 由于二抗偶联了荧光染料,需在避光条件下室温孵育 1 小时。
- 细胞核染色
- 将 4′,6-二脒基-2-苯基吲哚(DAPI)用 TBST 按 1:1,000 稀释。
- 室温孵育 5 分钟。
- 用 TBST 洗涤 2 次,每次 5 分钟。
- 封片
- 取一滴封片剂将盖玻片封固。
- 次日用指甲油密封盖玻片边缘。
结果
小鼠子宫内膜类器官的相差显微图像
我们按照所附方案(参见示意图)所述,从野生型小鼠子宫内膜上皮建立了类器官。 图 1)。在小鼠子宫内膜上皮经酶解离后,通过机械方法将上皮片层与子宫基质细胞分离,并进一步使用胶原酶解离以获得单细胞悬液。若操作正确,这种上皮与基质细胞分离方法应能确保样品中异型细胞(即相反细胞类型)的污染率不超过10%-15%(参见免疫荧光图像于 图 2)。随后,将上皮细胞沉淀重悬于凝胶基质中,在室温下使其凝胶化,并铺板至25 µ将组织培养板上的凝胶基质圆顶。待凝胶基质圆顶凝固后,覆盖以类器官培养基并允许其生长。我们通常观察到,子宫内膜上皮细胞在3-4天内组装形成类器官,如图所示。 图 3类器官在培养中维持,每3天更换一次培养基,每5-7天进行一次传代。
小鼠子宫内膜类器官的组织学与免疫荧光染色成像
为分析小鼠上皮类器官的形态,我们采用了利用标本处理胶封装细胞细针抽吸物的方法。20. 该方法能够维持子宫内膜类器官的形态,并将其包埋于基质中,以便进行后续处理,为石蜡包埋做准备。标本处理胶是一种改良琼脂,在临床病理学实验室中广泛用于细针穿刺样本的分析,并已被用于包埋阴道类器官。21,22标本处理凝胶/类器官混合物凝固后,即可采用通常用于分析组织的技术进行处理、染色和成像。 图 4AB我们展示了经苏木精-伊红染色的石蜡包埋子宫内膜类器官切片,其可清晰显示类器官的单层上皮结构及中空中心——即管腔。部分类器官的管腔内还可见分泌物,这表明这些类器官具备了腺上皮细胞的功能特性。我们还介绍了利用免疫染色技术观察类器官的方法。图 4C,切片后的子宫内膜类器官与细胞角蛋白8一抗(TROMA-1)及荧光团偶联的二抗(抗大鼠-594)共同孵育。随后使用DAPI进行细胞核显色,并通过荧光显微镜对载玻片进行成像。我们观察到类器官中的所有细胞均为细胞角蛋白8阳性且含有DAPI,这表明子宫内膜类器官的固定、包埋与处理过程兼容基于抗体的免疫染色技术。
RNA提取与基因表达分析
为测定子宫内膜类器官的基因表达反应,我们使来自野生型小鼠的子宫内膜类器官在首次传代后生长4天。在处理前夜,将子宫内膜类器官培养基更换为饥饿培养基。随后,将类器官在三重复孔(每孔含三个穹窿结构)中分别用载体(乙醇;溶液中体积与雌二醇所用体积相等)或10 nM雌二醇(E2)处理,总时长为48小时。48小时后,移除培养基,并对类器官进行RNA提取处理。约4 µ每孔的两个圆顶结构共可获得1 g RNA。 µ使用 g RNA 进行逆转录合成 cDNA。对编码脂质运载蛋白 2 的基因进行扩增。Lcn2,乳铁蛋白Ltf)以及孕激素受体(Pgr 采用实时定量PCR(图 5 与 表 1)23,24,25正如预期,我们观察到 Lcn2, Ltf以及 Pgr 经 10 nM E2 刺激后,上皮类器官中的表达量增加。图 5因此,这些结果表明,子宫内膜上皮类器官可成功用于检测响应雌二醇的基因表达变化。

图 1用于建立子宫内膜类器官的操作流程。 示意图概述了为(A) 建立并 (B) 传代小鼠子宫内膜上皮类器官。A) 方法包括通过酶解和机械分离从小鼠子宫中获取子宫内膜上皮,随后进行单细胞分散并将上皮细胞包埋于凝胶基质中。为获取用于酶解分离的子宫组织,需使用精细剪刀将卵巢和输卵管从子宫角切除,并沿横向将其切割为4-5段。 毫米大小的组织块,随后置于酶溶液中。酶解孵育后,在显微镜下使用镊子和移液器将子宫内膜上皮层从其下方的基质层机械分离。 "挤压" 从输卵管中分离出上皮组织。随后通过胶原酶短暂孵育,将上皮组织进一步消化为上皮细胞,并将其包埋于凝胶基质中。B) 子宫内膜类器官传代需要在冷培养基中进行机械解离,并通过离心使其从基质中释放,以生成较小的类器官片段。一旦类器官从基质中释放并经机械解离成较小片段后,即被重新包埋于基质中并进行再铺板。 请点击此处查看此图的放大版本。
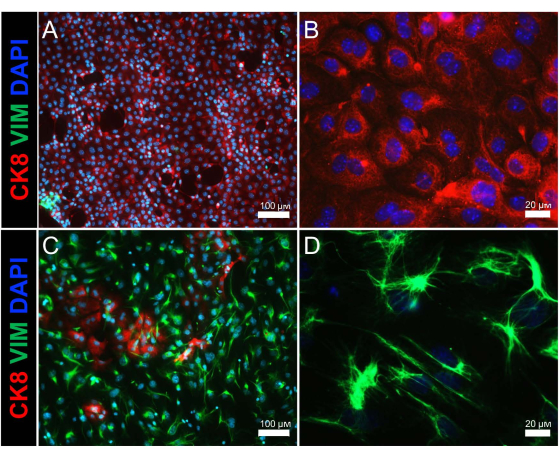
图 2分离子宫内膜上皮与基质细胞群的免疫染色。 免疫荧光图像显示(A,B) 上皮细胞与 (C,D) 经酶解和机械分离子宫后获得的基质细胞组分。细胞角蛋白8(上皮细胞标志物)呈红色,波形蛋白(基质细胞标志物)呈绿色,DAPI(细胞核标志物)呈蓝色。比例尺 = 100。 µmA,C), 20 µ米B,D)。缩写:CK8 = 细胞角蛋白8;VIM = 波形蛋白;DAPI = 4',6-二脒基-2-苯基吲哚',6-二脒基-2-苯基吲哚。 请点击此处查看此图的放大版本。
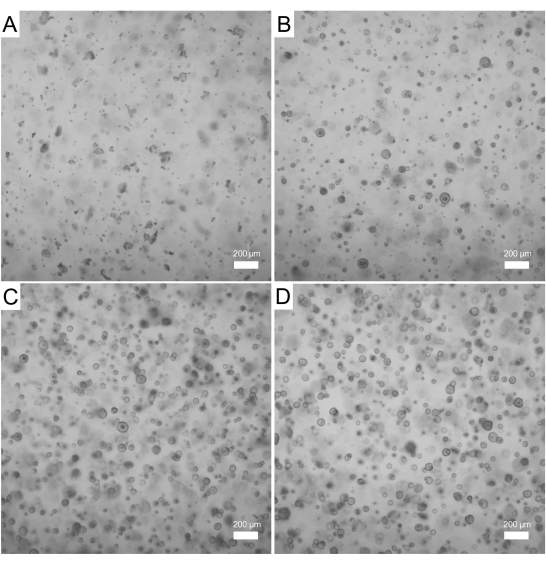
图 3野生型小鼠子宫内膜类器官在4天内的形成过程。 从野生型小鼠中分离出子宫内膜上皮组织,并用于构建类器官。A) 消化后即刻(第0天)包埋于凝胶基质中的上皮细胞的相差显微图像。B,C) 第1天可观察到少量小型类器官B) 及第 2 天 (C) 的培养物。D) 培养第3天可观察到较大且成熟的上皮类器官。图像使用5倍物镜拍摄;比例尺 = 200 µm. 缩写:WT = 野生型。 请点击此处查看此图的放大版本。

图 4子宫内膜类器官的组织学分析。 (A,B) 将 FFPE 子宫内膜上皮类器官切片并进行 H&E.C, D) 福尔马林固定石蜡包埋上皮类器官采用上皮细胞标志物细胞角蛋白8(红色)进行免疫染色。细胞核用DAPI(蓝色)染色。比例尺 = 200。 µmA), 100 µ米C), 50 µmB,D)。缩写:FFPE = 福尔马林固定石蜡包埋;H&E = 苏木精 & 嗜酸性粒细胞;CK8 = 细胞角蛋白8;DAPI = 4',6-二脒基-2-苯基吲哚。 请点击此处查看此图的放大版本。

图 5小鼠子宫内膜类器官的基因表达分析。 来自野生型小鼠的子宫内膜上皮类器官在类器官生长培养基中培养4天,随后在添加2%活性炭剥离胎牛血清的DMEM/F12培养基中,分别使用载体或10 nM雌二醇处理48小时。A,B) 野生型小鼠类器官经载体处理后获得的相差显微图像A) 或 10 nM E2 (B). (C-E) 对经载体或10 nM E2处理的子宫内膜上皮类器官进行实时定量PCR分析。E2调控基因脂质运载蛋白2(Lnc2)、乳铁蛋白(Ltf)、孕激素受体(Pgr)。柱状图表示平均值 ± 扫描电子显微镜,采用双尾 t-测试;*p < 0.033, **p < 0.002, ***p < 0.001。使用每种条件下 n = 3 只野生型小鼠来源的类器官重复实验。比例尺 = 200。 µmA,B)。缩写:WT = 野生型;E2 = 雌二醇;qPCR = 定量 PCR。 请点击此处查看此图的大尺寸版本。
| 引物序列 | 正向 (5'-3') | 反向引物 (5'-3') |
| 脂质运载蛋白 2 (Lcn2) | GCAGGTGGTACGTTGTGGG | CTCTTGTAGCTCATAGATGGTGC |
| 乳铁蛋白 (Lactoferrin)Ltf) | TGAGGCCCTTGGACTCTGT | ACCCACTTTTCTCATCTCGTTC |
| 孕酮Pgr) | CCCACAGGAGTTTGTCAAGCTC | TAACTTCAGACATCATTTCCGG |
| 甘油醛-3-磷酸脱氢酶Gapdh) | CAATGTGTCCGTCGTGGATCT | GCCTGCTTCACCACCTTCTT |
| PCR 反应混合物包含: |
| 2x SYBR Green |
| 0.5 µM 正向引物 |
| 0.5 µM Rev 引物 |
| cDNA |
| RNAse/DNAse-Free H2O |
| 循环仪条件: | |||
| 温度 | 时间 | 循环 | |
| 固定 | 95 °C | 10 分钟 | 1 |
| 变性 | 95 °C | 15 秒 | 40 |
| 延伸 | 60 °C | 60 秒 |
表1:引物序列与PCR条件。
讨论
本文描述了从小鼠子宫内膜建立子宫内膜上皮类器官的方法,以及常规用于其后续分析的实验方案。子宫内膜类器官是研究调控子宫内膜相关疾病(如子宫内膜异位症、子宫内膜癌和着床失败)机制的有力工具。2017年发表的几项里程碑式研究报道了从小鼠和人类上皮组织培养长期可传代且可再生的子宫内膜类器官的培养条件。4,5尽管类器官已被广泛用于研究其他系统中的生物学通路,但对子宫内膜组织的研究 体外 由于缺乏合适的模型来在培养条件下研究未转化的原代上皮组织,相关研究受到限制26利用通常用于培养其他器官组织(如肠道、肾脏和肺)类器官的条件,并将人和小鼠子宫内膜来源的子宫内膜类器官包埋于由凝胶基质组成的细胞外基质支架中,成功建立了子宫内膜类器官4自这些初步报道以来,科学界使用子宫内膜类器官研究子宫内膜生物学的现象已显著增加。
通过改进先前发表的小鼠子宫上皮分离方法27,28,本实验方案突出展示了直接将组织置于酶溶液中以分离小鼠子宫上皮的关键步骤,无需横切子宫或使用过滤方法。采用该方法,我们获得的上皮细胞纯度约为85%–90%,经细胞角蛋白8和波形蛋白免疫染色确认(图2)。本方案还详细说明了将分离的上皮细胞包埋于生长基质中,以实现类器官的生成、维持和传代的关键操作细节。 图4中的图像及我们尚未发表的研究结果表明,类器官培养物中存在黏蛋白和腺细胞(即FOXA2阳性细胞)29。 这些结果表明,本文所述方法可有效从小鼠子宫内膜中分离出腺上皮和腔面上皮细胞群体。
这些生长的关键限制因素 类器官培养中常使用商业基质(如Matrigel),这可能导致批次间的差异,并且该基质含有可影响类器官生长的生长因子。此外,尽管这些类器官包含纯化的子宫上皮组织,但近年来已有研究报道在子宫内膜类器官系统中引入其他类型的子宫内膜细胞(如免疫细胞、间质细胞)。8,30其他研究团队已证实,能够从小鼠子宫中分离出腔上皮细胞和腺上皮细胞,用于类器官培养。14.
该方法采用来自小型动物模型的组织,这类动物模型相对常见且大多数研究人员均可获得;而从大型动物模型或人类组织中生成子宫内膜类器官可能面临伦理或技术上的挑战,这些问题可通过使用诱导性多能干细胞(iPSC)技术加以克服。此类技术此前已有用于子宫内膜组织的报道31,生殖道的其他组织32 并已有效用于研究子宫内膜/胎盘相互作用 体外33. 因此,利用iPSCs作为人类及其他大型动物模型子宫内膜的基质细胞和上皮细胞来源,可为生成子宫内膜类器官提供一种可再生且易于获取的细胞来源。
尽管小鼠是研究着床过程的常用模型,但小鼠与人类在着床机制上存在重要的进化差异,需加以注意。例如,虽然间质性着床的特征是滋养层细胞通过腔上皮侵入下方间质,但小鼠与灵长类动物在侵袭过程的机制上有所不同34。在小鼠中,滋养层细胞穿过腔上皮的过程涉及细胞凋亡或胞葬作用(entosis)35,36,而在灵长类动物中,滋养层细胞则迁移至腔上皮细胞之间,进入下方间质34,35。
为子宫内膜类器官提供支持其自我组装和长期更新所必需的生长因子,对于获得能够模拟天然组织特性的子宫内膜类器官培养物至关重要。子宫内膜类器官培养基的复杂成分反映了多种信号通路共同调控上皮细胞特性的过程,这些信号可能来源于旁分泌和自分泌途径。子宫内膜的间质区由多种细胞类型组成,结构复杂,包括成纤维细胞样间质细胞、血管内皮细胞、巨噬细胞以及其他特化的免疫细胞,这些细胞会随着雌激素和孕激素水平的变化而持续发生动态改变37。
例如,类器官培养基中含有可激活类器官中 WNT/β-catenin 信号通路的因子,如 WNT3a 和 R-Spondin。小鼠研究表明,WNT 配体对子宫发育及腺体功能至关重要;因此,该信号通路的激活对于类器官的发育与维持至关重要38,39。R-Spondin 可增强 WNT 信号传导,是富含亮氨酸重复序列的 G 蛋白偶联受体(LGR5)的配体40。子宫内膜类器官培养还需要抑制转化生长因子 β(TGFβ)和骨形态发生蛋白(BMP)信号通路。例如,子宫内膜类器官培养基中含有 BMP 抑制剂 Noggin,这是一种可分泌的蛋白质,能够结合并失活 BMP2、BMP4 和 BMP741。药理学抑制剂 A83-01 也存在于子宫内膜类器官培养基中。A83-01 是一种小分子抑制剂,对受体 ALK4、ALK5 和 ALK7 具有高度特异性42。ALK4/5/7 是 TGFβ 信号家族的 I 型受体,可结合并传递由 TGFβ、激活素(activin)或节点蛋白(nodal)等配体引发的信号。BMP 信号对于肠道43和毛囊44等组织中干细胞的维持至关重要。抑制 TGFβ 信号通路有助于提高子宫内膜间充质干细胞的增殖能力及克隆形成效率45,这一过程通过重塑染色质中的关键区域实现46。因此,调控 BMP 和 TGFβ 这两条关键信号通路,对于维持具有自我更新能力的类器官培养体系是必要的。
尽管此处未展示,我们发现,在含有 ALK4/5/7 抑制剂 A83-01 的条件下长期培养小鼠类器官,经过三到四次连续传代后,上皮类器官会出现形态学改变(Kriseman 等,正在审稿中)。这些上皮类器官的形态学变化与 Boretto 等人4所描述的“"致密型"”上皮类器官相似,其特征是由于旁分泌的 WNT 配体分泌减少,导致更多类似分泌型的细胞发育。因此,TGFβ 与 WNT 信号通路很可能相互交汇,共同调控子宫内膜上皮类器官的再生与分化。
近期研究已利用人体组织构建出三维子宫内膜上皮/间质共培养体系7,8,16。其中一种共培养方法采用无支架系统,将子宫内膜上皮细胞和间质细胞混合后,在特定培养基中于无支架的培养孔内自组装形成三维结构。这些三维子宫内膜上皮/间质类器官不仅表达雌激素、孕激素和雄激素受体,还能真实再现对卵巢激素——雌激素和孕激素的响应6,7。另一种共培养方法由Rawlings等人在研究中使用,即将子宫内膜上皮类器官与间质细胞共同嵌入胶原基质中,并在改良的类器官培养基中进行培养8。这类上皮/间质共培养的类器官,又称类组装体(assembloids),可形成悬浮的三维体系,其间质细胞包绕在上皮样腺体结构周围。
大多数子宫内膜类器官在生长因子减少的凝胶基质中进行培养;然而,基质中活性化合物的存在可能会在类器官内引发非预期的细胞反应。为克服这一局限性,研究人员已建立在无凝胶基质支架中培养类器官的方法,例如使用3D打印的琼脂糖模具,使单个类器官得以自我组装6。其他研究团队则开发了合成水凝胶,作为子宫内膜类器官培养的三维基质47。这些类器官可组装成具有顶-基底极性的三维结构,也可与子宫内膜间质细胞结合,形成更复杂的类器官结构48。由于类器官能够以二维细胞培养无法实现的方式成功培养未转化的原代人和小鼠子宫内膜组织,因此毫无疑问,子宫内膜类器官将推动女性生殖健康领域的发展,并成为研究复发性妊娠丢失、子宫内膜异位症和子宫内膜癌等生殖系统病理状况的有力工具16,49,50。
披露
作者声明无利益冲突。
致谢
感谢Stephanie Pangas博士和Martin M. Matzuk博士(M.M.M.)对本文稿的审阅与修改。本研究由Eunice Kennedy Shriver儿童健康与人类发育国家研究所资助,基金编号为R00-HD096057(D.M.)、R01-HD105800(D.M.)、R01-HD032067(M.M.M.)和R01-HD110038(M.M.M.),以及美国国家癌症研究所P30癌症中心支持基金(NCI-CA125123)。Diana Monsivais博士 获得Burroughs Wellcome基金会颁发的下一代妊娠奖(Next Gen Pregnancy Award)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 类器官培养基配方 | |||
| 名称 | 公司 | 货号 | 终浓度 |
| Corning Matrigel 生长因子减少型(GFR)基底膜基质,*无LDEV | Corning | 354230 | 100% |
| 牛胰蛋白酶 | Sigma Aldrich | T1426-1G | 1% |
| Advanced DMEM/F12 | Life Technologies | 12634010 | 1X |
| N2 补充剂 | Life Technologies | 17502048 | 1X |
| B-27™ 补充剂(50X),不含维生素A | Life Technologies | 12587010 | 1X |
| Primocin | Invivogen | ant-pm-1 | 100 µg/mL |
| N-乙酰-L-半胱氨酸 | Sigma Aldrich | A9165-5G | 1.25 mM |
| L-谷氨酰胺 | Life Technologies | 25030024 | 2 mM |
| 烟酰胺 | Sigma Aldrich | N0636-100G | 10 nM |
| ALK-4、-5、-7 抑制剂 A83-01 | Tocris | 2939 | 500 nM |
| 重组人 EGF | Peprotech | AF-100-15 | 50 ng/mL |
| 重组人 Noggin | Peprotech | 120-10C | 100 ng/mL |
| 重组人 Rspondin-1 | Peprotech | 120-38 | 500 ng/mL |
| 重组人 FGF-10 | Peprotech | 100-26 | 100 ng/mL |
| 重组人 HGF | Peprotech | 100-39 | 50 ng/mL |
| WNT3a | R&D systems | 5036-WN | 200 ng/mL |
| 其他耗材与试剂 | |||
| 名称 | 公司 | 货号 | 终浓度 |
| 梭菌胶原酶 | Sigma Aldrich | C0130-1G | 5 mg/mL |
| 牛胰脱氧核糖核酸酶 I | Sigma Aldrich | DN25-100MG | 2 mg/mL |
| DPBS,无钙、无镁 | ThermoFisher | 14190-250 | 1X |
| HBSS,无钙、无镁 | ThermoFisher | 14170112 | 1X |
| Falcon 聚苯乙烯微孔板(24孔) | Fisher Scientific | #08-772-51 | |
| Falcon 聚苯乙烯微孔板(12孔) | Fisher Scientific | #0877229 | |
| Falcon 细胞筛,40 µm | Fisher Scientific | #08-771-1 | |
| Direct-zol RNA MiniPrep(50 µg) | Genesee Scientific | 11-331 | |
| Trizol 试剂 | Invitrogen | 15596026 | |
| DMEM/F-12,含 HEPES,无酚红 | ThermoFisher | 11039021 | |
| 胎牛血清,炭吸附处理 | Sigma Aldrich | F6765-500ML | 2% |
| 雌二醇(E2) | Sigma Aldrich | E1024-1G | 10 nM |
| 甲醛水溶液(16%),电镜级 | VWR | 15710 | 4% |
| Epredia 组织包埋盒(单槽) | Fisher Scientific | 1000961 | |
| Epredia 不锈钢包埋模具 | Fisher Scientific | 64-010-15 | |
| 乙醇,200 proof(100%) | Fisher Scientific | 22-032-601 | |
| Histoclear | Fisher Scientific | 50-899-90147 | |
| Permount 封片介质 | Fisher Scientific | 50-277-97 | |
| Epredia 尼龙活检袋 | Fisher Scientific | 6774010 | |
| HistoGel 组织处理凝胶 | VWR | 83009-992 | |
| 优质苏木精溶液 | VWR | 95057-844 | |
| 伊红Y(微黄色)溶液,优质 | VWR | 95057-848 | |
| TBS 缓冲液,20X,pH 7.4 | GenDEPORT | T8054 | 1X |
| TBST(10X),pH 7.4 | GenDEPORT | T8056 | 1X |
| 柠檬酸 | Sigma Aldrich | C0759-1KG | |
| 三水合柠檬酸钠 | Sigma Aldrich | S4641-500G | |
| Tween20 | Fisher Scientific | BP337-500 | |
| 牛血清白蛋白(BSA) | Sigma Aldrich | A2153-100G | 3% |
| DAPI 溶液(1 mg/mL) | ThermoFisher | 62248 | 1:1000 稀释 |
| VECTASHIELD 抗荧光淬灭封片剂 | Vector Labs | H-1000-10 | |
| 透明指甲油 | Fisher Scientific | NC1849418 | |
| Fisherbrand Superfrost Plus 显微镜载玻片 | Fisher Scientific | 22037246 | |
| VWR 显微盖玻片 | VWR | 48393-106 | |
| SuperScript VILO Master Mix | ThermoFisher | 11755050 | |
| SYBR Green PCR Master Mix | ThermoFisher | 4364346 | |
| Krt8 抗体(TROMA-I) | DSHB | TROMA-I | 1:50 稀释 |
| Vimentin 抗体 | Cell Signaling | 5741S | 1:200 稀释 |
| 驴抗大鼠 IgG(H+L)高交叉吸附二抗 Alexa Fluor 594 | ThermoFisher | A-21209 | 1:250 稀释 |
| 驴抗兔 IgG(H+L)高交叉吸附二抗 Alexa Fluor 488 | ThermoFisher | A-21206 | 1:250 稀释 |
| ZEISS Stemi 508 体视显微镜 | ZEISS | ||
| ZEISS Axio Vert.A1 倒置常规显微镜,带数码相机 | ZEISS | ||
| 引物序列 | 正向(5'-3') | 反向(5'-3') | _ |
| 脂质运载蛋白2(Lcn2) | GCAGGTGGTACGTTGTGGG | CTCTTGTAGCTCATAGATGGTGC | |
| 乳铁蛋白(Ltf) | TGAGGCCCTTGGACTCTGT | ACCCACTTTTCTCATCTCGTTC | |
| 孕酮受体(Pgr) | CCCACAGGAGTTTGTCAAGCTC | TAACTTCAGACATCATTTCCGG | |
| 甘油醛-3-磷酸脱氢酶(Gapdh) | CAATGTGTCCGTCGTGGATCT | GCCTGCTTCACCACCTTCTT |
参考文献
- Wang, H., Dey, S. K. Roadmap to embryo implantation: clues from mouse models. Nature Reviews Genetics. 7 (3), 185-199 (2006).
- Hibaoui, Y., Feki, A. Organoid models of human endometrial development and disease. Frontiers in Cell and Developmental Biology. 8, 84(2020).
- Rawlings, T. M., Makwana, K., Tryfonos, M., Lucas, E. S. Organoids to model the endometrium: implantation and beyond. Reproduction & Fertility. 2 (3), 85-101 (2021).
- Boretto, M., et al. Development of organoids from mouse and human endometrium showing endometrial epithelium physiology and long-term expandability. Development. 144 (10), 1775-1786 (2017).
- Turco, M. Y., et al. Long-term, hormone-responsive organoid cultures of human endometrium in a chemically defined medium. Nature Cell Biology. 19 (5), 568-577 (2017).
- Murphy, A. R., Wiwatpanit, T., Lu, Z., Davaadelger, B., Kim, J. J. Generation of multicellular human primary endometrial organoids. Journal of Visualized Experiments. (152), e60384(2019).
- Wiwatpanit, T., et al. Scaffold-free endometrial organoids respond to excess androgens associated with polycystic ovarian syndrome. The Journal of Clinical Endocrinology and Metabolism. 105 (3), 769-780 (2020).
- Rawlings, T. M., et al. Modelling the impact of decidual senescence on embryo implantation in human endometrial assembloids. Elife. 10, 69603(2021).
- Lou, L., Kong, S., Sun, Y., Zhang, Z., Wang, H. Human endometrial organoids: recent research progress and potential applications. Frontiers in Cell and Developmental Biology. 10, 844623(2022).
- Soyal, S. M., et al. Cre-mediated recombination in cell lineages that express the progesterone receptor. Genesis. 41 (2), 58-66 (2005).
- Daikoku, T., et al. Lactoferrin-iCre: a new mouse line to study uterine epithelial gene function. Endocrinology. 155 (7), 2718-2724 (2014).
- Winuthayanon, W., Hewitt, S. C., Orvis, G. D., Behringer, R. R., Korach, K. S. Uterine epithelial estrogen receptor alpha is dispensable for proliferation but essential for complete biological and biochemical responses. Proceedings of the National Academy of Sciences. 107 (45), 19272-19277 (2010).
- Seishima, R., et al. Neonatal Wnt-dependent Lgr5 positive stem cells are essential for uterine gland development. Nature Communications. 10 (1), 5378(2019).
- Syed, S. M., et al. Endometrial Axin2(+) cells drive epithelial homeostasis, regeneration, and cancer following oncogenic transformation. Cell Stem Cell. 26 (1), 64-80 (2020).
- Caligioni, C. S. Assessing reproductive status/stages in mice. Current Protocols in Neuroscience. , Appendix 4 Appendix 4I (2009).
- Fitzgerald, H. C., Schust, D. J., Spencer, T. E. In vitro models of the human endometrium: evolution and application for women's health. Biology of Reproduction. 104 (2), 282-293 (2021).
- Hewitt, S. C., et al. Progesterone signaling in endometrial epithelial organoids. Cells. 11 (11), 1760(2022).
- Sadeghipour, A., Babaheidarian, P. Making formalin-fixed, paraffin embedded blocks. Methods in Molecular Biology. 1897, 253-268 (2019).
- Qin, C., et al. The cutting and floating method for paraffin-embedded tissue for sectioning. Journal of Visualized Experiments. (139), e58288(2018).
- Rekhtman, N., et al. Novel modification of HistoGel-based cell block preparation method: improved sufficiency for molecular studies. Archives of Pathology & Laboratory Medicine. 142 (4), 529-535 (2018).
- Shidham, V. B. CellBlockistry: Chemistry and art of cell-block making - A detailed review of various historical options with recent advances. Cytojournal. 16, 12(2019).
- Ali, A., Syed, S. M., Tanwar, P. S. Protocol for in vitro establishment and long-term culture of mouse vaginal organoids. STAR Protocols. 1 (2), 100088(2020).
- Kurihara, I., et al. COUP-TFII mediates progesterone regulation of uterine implantation by controlling ER activity. PLoS Genet. 3 (6), 102(2007).
- McMaster, M. T., Teng, C. T., Dey, S. K., Andrews, G. K. Lactoferrin in the mouse uterus: analyses of the preimplantation period and regulation by ovarian steroids. Molecular Endocrinology. 6 (1), 101-111 (1992).
- Huang, H. L., Chu, S. T., Chen, Y. H. Ovarian steroids regulate 24p3 expression in mouse uterus during the natural estrous cycle and the preimplantation period. The Journal of Endocrinology. 162 (1), 11-19 (1999).
- Clevers, H. Modeling development and disease with organoids. Cell. 165 (7), 1586-1597 (2016).
- Bigsby, R. M., Cunha, G. R. Estrogen stimulation of deoxyribonucleic acid synthesis in uterine epithelial cells which lack estrogen receptors. Endocrinology. 119 (1), 390-396 (1986).
- Clementi, C., et al. Activin-like kinase 2 functions in peri-implantation uterine signaling in mice and humans. PLoS Genetics. 9 (11), 1003863(2013).
- Jeong, J. W., et al. Foxa2 is essential for mouse endometrial gland development and fertility. Biology of Reproduction. 83 (3), 396-403 (2010).
- Song, Y., et al. Endometriotic organoids: a novel in vitro model of endometriotic lesion development. bioRxiv. , (2022).
- Miyazaki, K., et al. Generation of progesterone-responsive endometrial stromal fibroblasts from human induced pluripotent stem cells: role of the WNT/CTNNB1 pathway. Stem Cell Reports. 11 (5), 1136-1155 (2018).
- Yoshimatsu, S., Kisu, I., Qian, E., Noce, T. A new horizon in reproductive research with pluripotent stem cells: successful in vitro gametogenesis in rodents, its application to large animals, and future in vitro reconstitution of reproductive organs such as "Uteroid" and "Oviductoid". Biology. 11 (7), 987(2022).
- Cheung, V. C., et al. Pluripotent stem cell-derived endometrial stromal fibroblasts in a cyclic, hormone-responsive, coculture model of human decidua. Cell Reports. 35 (7), 109138(2021).
- McGowen, M. R., Erez, O., Romero, R., Wildman, D. E. The evolution of embryo implantation. The International Journal of Development Biology. 58 (2-4), 155-161 (2014).
- Carson, D. D., et al. Embryo implantation. Developmental Biology. 223 (2), 217-237 (2000).
- Li, Y., Sun, X., Dey, S. K. Entosis allows timely elimination of the luminal epithelial barrier for embryo implantation. Cell Reports. 11 (3), 358-365 (2015).
- Jain, V., Chodankar, R. R., Maybin, J. A., Critchley, H. O. D. Uterine bleeding: how understanding endometrial physiology underpins menstrual health. Nature Reviews Endocrinology. 18 (5), 290-308 (2022).
- Hayashi, K., et al. Wnt genes in the mouse uterus: potential regulation of implantation. Biology of Reproduction. 80 (5), 989-1000 (2009).
- Dunlap, K. A., et al. Postnatal deletion of Wnt7a inhibits uterine gland morphogenesis and compromises adult fertility in mice. Biology of Reproduction. 85 (2), 386-396 (2011).
- Ter Steege, E. J., Bakker, E. R. M. The role of R-spondin proteins in cancer biology. Oncogene. 40 (47), 6469-6478 (2021).
- Brazil, D. P., Church, R. H., Surae, S., Godson, C., Martin, F. BMP signalling: agony and antagony in the family. Trends in Cell Biology. 25 (5), 249-264 (2015).
- Tojo, M., et al. The ALK-5 inhibitor A-83-01 inhibits Smad signaling and epithelial-to-mesenchymal transition by transforming growth factor-beta. Cancer Science. 96 (11), 791-800 (2005).
- Zhang, Y., Que, J. BMP signaling in development, stem cells, and diseases of the gastrointestinal tract. Annual Review of Physiology. 82, 251-273 (2020).
- Plikus, M. V., et al. Cyclic dermal BMP signalling regulates stem cell activation during hair regeneration. Nature. 451 (7176), 340-344 (2008).
- Gurung, S., Werkmeister, J. A., Gargett, C. E. Inhibition of transforming growth factor-β receptor signaling promotes culture expansion of undifferentiated human endometrial mesenchymal stem/stromal cells. Scientific Reports. 5, 15042(2015).
- Lucciola, R., et al. Impact of sustained transforming growth factor-β receptor inhibition on chromatin accessibility and gene expression in cultured human endometrial MSC. Frontiers in Cell and Developmental Biology. 8, 567610(2020).
- Hernandez-Gordillo, V., et al. Fully synthetic matrices for in vitro culture of primary human intestinal enteroids and endometrial organoids. Biomaterials. 254, 120125(2020).
- Gnecco, J. S., et al. Physiomimetic Models of Adenomyosis. Seminars in Reproductive Medicine. 38 (2-03), 179-196 (2020).
- Nikolakopoulou, K., Turco, M. Y. Investigation of infertility using endometrial organoids. Reproduction. 161 (5), 113-127 (2021).
- Kim, J. J. Preparing for implantation. Elife. 10, 73739(2021).
重印与许可
