本方案描述了通过化学致癌方法诱导生成并表征小鼠口腔-食管三维类器官的关键步骤,这些类器官代表了正常、癌前病变及鳞状细胞癌病灶。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
食管鳞状细胞癌(ESCC)在全球范围内高发,每年占所有食管癌病例的90%,是所有人类鳞状细胞癌中致死率最高的类型。尽管近年来在阐明伴随ESCC发生和发展的分子改变方面已取得一定进展,但患者的预后仍然较差。对这些分子改变进行功能注释是必要的下一步工作,而这需要能够准确模拟ESCC分子特征且易于进行低成本功能研究的模型。使用烟草烟雾模拟物4-硝基喹啉-1-氧化物(4NQO)处理的小鼠可稳定地形成ESCC及食管癌前病变。值得注意的是,4NQO诱导的病变也常出现在口腔(最常见于舌部)以及前胃,这些部位均具有复层鳞状上皮。然而,由于构建同基因型小鼠模型耗时且资源消耗大,这些小鼠难以被简便地用于功能假设的验证。本文中,我们通过建立源自4NQO处理小鼠的单细胞来源三维(3D)类器官模型,以在体外对小鼠ESCC或癌前病变细胞进行表征,从而克服了这一局限性。ex vivo培养的这些类器官能够再现ESCC和食管癌前病变的关键特征,可低成本、快速地用于构建同基因型模型,并可用于同系移植实验。我们展示了如何从正常、癌前病变及鳞状细胞癌(SCC)的小鼠食管组织中建立3D类器官,并对其进行维持和冷冻保存。这些多功能类器官的应用范围广泛,包括结合基因工程小鼠模型进行研究,通过流式细胞术或免疫组织化学进一步表征,利用CRISPR技术构建同基因型类器官细胞系,以及开展药物筛选或同系移植实验。我们相信,本实验方案中所展示技术的广泛应用将加速该领域的研究进展,以应对ESCC所带来的严重疾病负担。
引言
食管鳞状细胞癌(ESCC)是人类鳞状细胞癌中致死率最高的一种,这主要归因于其诊断时间较晚、对治疗具有耐药性以及易发生转移1,2。ESCC起源于食管腔面被覆的复层鳞状上皮。该鳞状上皮由基底层中的增殖性基底细胞和上基底层中的分化细胞组成。在生理条件下,基底细胞表达p63、Sox2以及细胞角蛋白K5和K14等标志物,而分化细胞则表达K4、K13和IVL。基底细胞本身具有异质性,其中包括以K153和CD734等标志物定义的潜在干细胞。在稳态状态下,基底细胞在上基底层中经历有丝分裂后的终末分化,而分化后的细胞则向上迁移并脱落至管腔,完成上皮更新。与起源细胞相似,ESCC表现出程度不一的鳞状细胞分化特征。ESCC常伴有多个病灶的组织学前驱病变,称为上皮内瘤变(IEN)或异型增生,其特征为存在不典型的基底样细胞。除了上皮的改变外,ESCC还表现出黏膜下区的组织重塑,在此过程中癌相关成纤维细胞(CAFs)被激活,并募集免疫/炎症细胞,从而促进肿瘤微环境的形成。
食管鳞状细胞癌(ESCC)的发病机制涉及遗传改变以及环境危险因素的暴露。关键的遗传损伤包括肿瘤抑制基因TP53和CDKN2A(p16INK4A)的失活,以及CCND1(细胞周期蛋白D1)和EGFR癌基因的激活,这些改变最终导致细胞周期检查点功能受损、异常增殖,并在暴露于环境致癌物引起的基因毒性应激条件下促进细胞存活。事实上,遗传改变与行为和环境危险因素密切相关,其中最常见的是吸烟和饮酒。烟草烟雾中含有乙醛等人类致癌物,而乙醛也是酒精的主要代谢产物。乙醛可诱导DNA加合物和DNA链间交联,导致DNA损伤、DNA突变累积以及染色体不稳定。在癌基因激活所致的过度有丝分裂刺激和异常增殖背景下,食管上皮细胞的恶性转化依赖于应对基因毒性应激的多种机制,包括抗氧化系统的激活、自噬以及上皮-间质转化(EMT)。有趣的是,这些细胞保护功能常在食管鳞癌干细胞(CSCs)中被激活,这类细胞以高表达CD44(CD44H)为特征,具有肿瘤起始、侵袭、转移及治疗抵抗的能力5,6,7。
食管鳞状细胞癌(ESCC)已在细胞培养和啮齿类动物模型中建立8,9。在过去三十年中,已开发出多种稳定的遗传工程小鼠ESCC模型。这些模型包括CCND1和EGFR转基因小鼠10,11,以及p53和p120Ctn基因敲除小鼠12,13。然而,单一的遗传改变通常不会导致ESCC快速发生。这一难题已通过使用能够模拟人类ESCC遗传损伤的食管致癌物得以解决14。例如,4-硝基喹啉-1-氧化物(4NQO)可加速CCND1转基因小鼠中ESCC的发展15。近年来,研究人员利用可进行细胞谱系示踪的小鼠模型,对食管上皮干细胞、前体细胞及其各自命运进行了研究3,4。此外,这些可进行细胞谱系示踪的小鼠模型还被用于探索ESCC的起源细胞,以及这些细胞如何通过传统组织学和基于组学的分子特征分析产生CD44H肿瘤干细胞7。
与这些小鼠模型相关的一个新兴领域是细胞培养技术的创新应用,即利用三维(3D)类器官系统体外培养并分析活体食管鳞状细胞癌(ESCC)及其前体细胞,在该系统中可重现原始组织的结构特征ex vivo7,8,9。这些3D类器官由从小鼠组织(包括原发性和转移性肿瘤,如淋巴结、肺和肝病变)分离得到的单细胞悬液快速培养而成。细胞被包埋于基底膜提取物(BME)中,并使用成分明确的无血清培养基进行培养。3D类器官可在7至10天内生长形成,所产生的球形结构可用于传代培养、冷冻保存,以及多种细胞特性与功能的检测分析,包括肿瘤干细胞(CSC)标志物、上皮-间质转化(EMT)、自噬、增殖、分化和凋亡性细胞死亡等。
这些方法可广泛应用于源自任何复层鳞状上皮组织的三维类器官培养,例如头颈部黏膜(口腔、舌、咽和喉)甚至前胃。头颈部黏膜与食管相延续,两者在组织结构、功能及疾病易感性方面具有相似性。头颈部鳞状细胞癌(HNSCC)和食管鳞状细胞癌(ESCC)均具有相似的基因突变以及与生活方式相关的环境风险因素,如烟草和酒精暴露。值得注意的是,使用烟草烟雾模拟物4NQO处理的小鼠可轻易同时发展出HNSCC和ESCC。鉴于下述方案在HNSCC建模中的便捷适用性,本文包含了从这些病变组织建立三维类器官培养的具体操作步骤。
本文提供了详细的实验方案,用于建立代表正常、癌前病变及食管鳞状细胞癌(ESCC)病变的小鼠食管三维类器官(MEOs),这些病变发生于经4NQO处理的小鼠。可使用多种小鼠品系,包括常见的实验室品系(如C57BL/6)以及可用于细胞谱系示踪和其他基因工程改造的小鼠品系。我们重点阐述了关键实验步骤,包括正常或病变小鼠食管上皮的分离、单细胞悬液的制备、三维类器官的培养与生长监测、传代、冷冻保存,以及后续分析的处理步骤,包括形态学观察及其他应用。
访问受限。请登录或开始试用以查看此内容。
方案
小鼠实验根据相关规定进行规划和操作,并经哥伦比亚大学机构动物护理和使用委员会审查批准,动物实验方案编号为#AABB1502。小鼠饲养在符合标准的动物护理设施中,该设施确保对小鼠的人道对待,为小鼠提供适当的兽医护理,并为实验室人员提供实验室安全培训。
1. 使用4NQO处理小鼠以诱导食管IEN和ESCC病变(时间考虑:最长28周)
注意:为了生成代表食管肿瘤性病变的MEO,小鼠将接受4NQO介导的化学致癌处理,具体方法如Tang等14先前所述。正常/非肿瘤性MEO则来源于未经处理的小鼠。
- 小鼠
- 每笼饲养 4 至 5 只小鼠,在开始实验前至少适应动物房环境 1 周。为降低年龄相关疾病导致 28 周完整实验提前终止的可能性,应选用 8 周龄至 16 周龄的小鼠开始实验。
注意:本实验方案使用体重约为20–30 g的C57BL/6小鼠。对于较短时间的实验,可使用较年长的小鼠。雄性或雌性小鼠均可使用。对照组(无处理,见第1.3.1节)小鼠需在年龄和性别上相匹配。
- 每笼饲养 4 至 5 只小鼠,在开始实验前至少适应动物房环境 1 周。为降低年龄相关疾病导致 28 周完整实验提前终止的可能性,应选用 8 周龄至 16 周龄的小鼠开始实验。
- 含4NQO饮用水的制备
- 配制1 mg/mL 4NQO储备液于乙二醇丙二醇中(材料列表)。在500 mL玻璃烧杯中,加入100 mg 4NQO和100 mL 99.9%丙二醇,用封口膜覆盖,于室温(RT)下以800 rpm转速磁力搅拌30分钟,充分混匀。储存于 4 °C.
- 将900 mL去离子灭菌水加入100 mL浓度为1 mg/mL的4NQO储备液中,置于2 L塑料量筒内,用封口膜覆盖后颠倒混匀。总体积为1 L的 100 µg/mL 4NQO 溶于10% 乙二醇丙醚中,可供配备500 mL饮水瓶的两笼小鼠使用。
警告:需要注意的是,4NQO 是一种可能致癌的合成化学致癌物。操作时应佩戴腈类手套和长袖实验服,并穿包趾鞋。建议佩戴适当的眼部防护装备、面部防护装备和头部覆盖物。对于废弃物处理,应根据环境健康与安全机构关于危险废物管理的指导原则,将 4NQO 置于贴有标签的容器中。
- 4NQO处理与监测
- 安装饮水瓶,并通过饮水给予4NQO 随意摄取 持续给予小鼠16周。使用10%(w/v)丙二醇作为溶剂(无处理)对照。
注意:可采用较短时间的4NQO处理以诱导IEN。 - 每周更换一次水。
- 每周将小鼠放入塑料容器中,置于天平上称重。
- 在16周4NQO处理期结束后,开始给予小鼠普通饮用水,进入4NQO处理后的观察期,持续最长12周(图1).
- 每天监测小鼠是否出现痛苦迹象(如活动能力受损、蜷缩姿态、行为退缩)、吞咽困难和脱水情况。此外,每周评估小鼠体重及食物和液体摄入量的变化。若小鼠体重较初始体重下降超过10%,应给予液体膳食补充剂喂养。
注意:对液体饮食补充剂无反应的体重减轻可能提示食管鳞状细胞癌(ESCC)的发生;体重减轻超过20%的小鼠应实施安乐死。重要的是,提前实施安乐死的小鼠仍可用于生成MEOs。需要注意的是,未经基因修饰的C57BL/6小鼠通常在4NQO处理后观察期结束前不会表现出明显的发病症状或可见的ESCC病灶。
- 安装饮水瓶,并通过饮水给予4NQO 随意摄取 持续给予小鼠16周。使用10%(w/v)丙二醇作为溶剂(无处理)对照。
- 动物准备
- 用 CO₂ 处死小鼠2 充满 CO 的腔室2 以每分钟置换30%–70%腔室体积的流速进行。通过颈椎脱位确认动物死亡。
- 用21 G针头将小鼠四肢和鼻部固定在解剖平台上,使其呈仰卧位。
- 用70%乙醇对小鼠腹侧表面进行消毒。
- 解剖(时间预估:0.5 小时)
- 捏住腹部中线的毛皮和皮肤,确保其与下方内脏分离,然后用手术剪从下腹部至下巴做一条头尾方向的腹侧正中切口。
- 从正中切口开始,使用手术剪向两侧肢体方向做放射状剪切,剥离皮肤瓣并展开。
- 为暴露颈段气管,使用解剖剪在正中线处剪开唾液腺。气管位于腺体深部。
- 为暴露胸段气管,需切除胸骨。
- 用镊子轻轻夹起并提起腹膜,沿肋骨 cage 用剪刀从头侧向尾侧及侧方剪开腹膜。
- 轻轻将肝脏从膈肌的尾侧表面拉开,用剪刀在胸骨切迹处的剑突背侧表面的膈肌上做一个小切口。这可使肺和心脏从脏层胸膜中释放出来。
- 将肋骨与胸腔内容物分离。将剪刀插入膈肌切口,向头侧解剖至颈环。解剖过程中应紧贴胸骨背侧表面进行,以避免损伤下方器官。确保解剖平面位于气管前方。
- 用剪刀剪断胸骨两侧的肋骨,移除胸骨,确保胸腔内容物完全暴露。
- 暴露腹段食管。用镊子夹住胃窦,轻轻向前抬起胃部。用剪刀将脾脏、胰腺和肠系膜从胃和食管上分离。
- 暴露胸段食管(图2).
- 轻轻提起甲状软骨后方的气管,用虹膜剪从气管背侧分离食管。
- 用虹膜剪在甲状软骨处剪断气管。
- 沿尾侧方向仔细解剖,将气管从食管其余部分剥离。
- 取出肺、心脏和胸腺 大规模 与气管一同取出。分离和切断主动脉与腔静脉时,注意避免损伤食管。
- 用剪刀在幽门处将胃分离。
- 用镊子夹住幽门,向头侧解剖,将食管与椎体分离。
- 在甲状软骨水平处切断食管,取下食管和胃 大规模 (图3).
- 在贲门处切断食管,分离胃和食管图4,上图,红线)
- 剥离食管外表面的任何筋膜。如需保留组织学样本(可选),可切除半段食管 用剪刀纵向切开,将剩余完整的食管置于冰上预冷的磷酸盐缓冲液中。
- 沿胃大弯切开胃部,并用 PBS 充分冲洗。分离前胃组织,用冷 PBS 冲洗。将前胃置于盛有冷 PBS 的冰上。
- 收获舌头时,取下鼻部的21 G针头,用镊子拉出舌头,尽可能完整地剪下。将舌头置于冰上预冷的PBS中。
2. 小鼠食管类器官(MEO)培养体系的建立
注意:本方案也可用于建立小鼠舌类器官培养体系,需在胰蛋白酶消化前增加一步将舌组织剪碎的操作。参见步骤 2.2.3 中的说明。
- 试剂的准备
注意:试剂列表见材料表。除另有说明外,所有储存液均应按照制造商的说明进行配制和储存。- 确保本方案中使用的基底膜基质(BME)单次使用分装物在使用前始终保存于−20 °C,使用当天在冰上或2–8 °C条件下解冻,并在不使用时始终保持在冰上。
- 将250 mg大豆胰蛋白酶抑制剂(STI)溶解于1,000 mL PBS中(终浓度为250 mg/mL),经0.22 µm滤器过滤除菌。分装为每管50 mL,于4 °C保存,最长可保存6个月。
- 配制小鼠类器官培养基(MOM):在高级DMEM/F12培养基中添加1 mM N-乙酰-L-半胱氨酸(NAC)、2% R-脊椎蛋白和Noggin条件培养基(RN CM)、1x N-2补充剂、1x B-27补充剂、10 mM HEPES、1x 抗生素-抗真菌素混合液、1x GlutaMAX补充剂,以及100 ng/mL小鼠表皮生长因子(mEGF)。每次配制500 mL MOM,分装为每管50 mL,于2–8 °C保存至使用前。使用前加入0.5 µg/mL两性霉素B和10 µM Y-27632。
- 使用前,将MOM、0.25%胰蛋白酶和大豆胰蛋白酶抑制剂(STI)在水浴或珠浴中预热至37 °C。
- 从小鼠解剖组织中分离角质形成细胞(耗时:约2小时)
- 将食管组织转移至含500 µL PBS配制的dispase溶液(总酶活性为2.5–5单位)中,在恒温混匀仪中37 °C、800 rpm条件下孵育10分钟。
- 将组织转移至培养皿中,用镊子小心剥离上皮层下方的肌肉层(图4)。
注意:此步骤也可由经验丰富的研究人员在dispase孵育前完成。 - 将上皮组织转移至含有500 µL 0.25%胰蛋白酶的微量离心管中,在恒温混匀仪中37 °C、800 rpm条件下孵育10分钟。
注意:若起始材料为舌组织,应在加入胰蛋白酶前用无菌手术刀将其切成约1–2 mm2大小的小块。 - 短暂离心5–10秒(2,000 x g),使组织沉淀。准备一个50 mL锥形管,并装配100 µm细胞筛网。使用宽口吸头以环形运动方式将组织/细胞悬液通过筛网过滤。
- 通过筛网加入3 mL STI,以环形运动方式冲洗。
- 用1 mL结核菌素注射器活塞底部摩擦筛网,促使细胞完全通过筛孔。
- 用3 mL PBS冲洗筛网3–5次,每次冲洗之间均用注射器活塞底部摩擦筛网。
- 将收集的细胞悬液在4 °C条件下以300 x g离心10分钟,使细胞沉淀。
- 弃去上清液,保留约1 mL液体于管中。
- 将沉淀重悬于剩余的1 mL液体中,并通过70 µm细胞筛网转移至新的50 mL锥形管中。
- 将管在4 °C条件下以300 x g离心10分钟,使细胞沉淀。
- 将沉淀重悬于100 µL MOM中;根据需要调整体积。采用台盼蓝排斥法进行自动细胞计数。
- 初始细胞悬液的接种(耗时:<1小时)
- 将24孔细胞培养板置于37 °C培养箱中预热。
- 每孔接种5,000个活细胞,总体积为50 µL,培养基为75%(v/v)BME/MOM。尽可能多设置接种孔,并根据下方示例计算额外准备一个孔所需的细胞量。
注意:将多余细胞以最大浓度1 x 10⁶ 个细胞/mL悬浮于冻存液(含10% DMSO的FBS)中进行冻存。将冻存管置于−80 °C冷冻容器中过夜,随后转移至液氮气相中长期保存。 - 在微量离心管中先用MOM对细胞进行适当稀释,接种前再用宽口吸头加入BME。
- 使用200 µL宽口吸头,缓慢将50 µL液滴加至孔中央,避免吸头接触孔底或孔壁(图5)。注意不要用力过猛排出液体,以免液滴变平。
- 将培养板置于37 °C、5% CO2、 95%相对湿度(RH)的培养箱中孵育30分钟,使BME凝固。
- 每孔小心加入500 µL MOM,补充0.5 µg/mL两性霉素B和10 µM Y-27632。
注意:在初始原代培养期间,所有MOM中均需添加两性霉素B。Y-27632仅在每次传代当天(第0天)添加。 - 在第3–4天更换MOM,之后每2–3天更换一次,直至准备传代。
- 在第7–10天对类器官进行成像,并通过将形成的类器官数量除以初始接种细胞数来计算类器官形成率(OFR)。
示例计算:
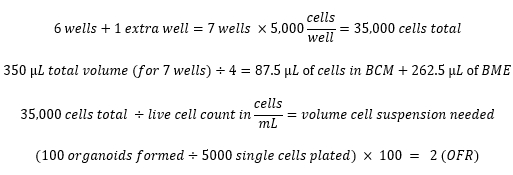
- 小鼠食管类器官(MEOs)的传代与冻存(耗时:<1.5小时)
- 将BME解冻并保持在冰上。使用前将MOM、0.05%胰蛋白酶和STI在水浴或珠浴中预热至37 °C。将24孔细胞培养板置于37 °C培养箱中预热。
- 使用宽口移液吸头,收集BME凝胶穹顶中的类器官及其上清液。通过反复吹打破坏BME结构。
注意:将含有相同样本的多个孔合并至同一微量离心管中。 - 短暂离心10–15秒(2,000 x g),使类器官沉淀,弃去上清液。
- 轻轻吹打使沉淀松散,将沉淀重悬于500 µL 0.05%胰蛋白酶中。
- 将管置于恒温混匀仪中,37 °C、800 rpm条件下孵育10分钟。
- 加入600 µL STI以终止胰蛋白酶消化反应。
- 将管在4 °C条件下以300 x g离心5分钟,使细胞沉淀。
- 弃去上清液,将细胞沉淀重悬于100 µL MOM中。采用台盼蓝排斥法进行自动细胞计数。
注意:体积可根据需要调整。 - 每孔接种2,000–5,000个活细胞,总体积为50 µL,培养基为75%(v/v)BME/MOM。尽可能多设置接种孔,并根据前述示例计算额外准备一个孔所需的细胞量。
注意:将多余细胞以最大浓度1 x 10⁶ 个细胞/mL悬浮于冻存液(含10% DMSO的FBS)中进行冻存。将冻存管置于−80 °C冷冻容器中过夜,随后转移至液氮气相中长期保存。 - 在微量离心管中先用MOM对细胞进行适当稀释,接种前再用宽口吸头加入BME。
- 使用200 µL宽口吸头,缓慢将50 µL液滴加至孔中央,避免吸头接触孔底或孔壁。注意不要用力过猛排出液体,以免液滴变平。
- 将培养板置于37 °C、5% CO2、95% RH培养箱中孵育30分钟。
- 每孔小心加入500 µL MOM,补充10 µM Y-27632。
注意:Y-27632仅在传代当天(第0天)添加,换液期间无需添加。此后不再需要添加两性霉素B。 - 在第3–4天更换MOM,之后每2–3天更换一次,直至准备再次传代。
- 在第7–10天对类器官进行成像,并测定OFR。
- 小鼠食管类器官(MEOs)的解冻与复苏(耗时:<1小时)
- 将BME解冻并保持在冰上。将24孔细胞培养板置于37 °C培养箱中预热。
- 在15 mL锥形管中准备10 mL冷或室温的MOM或PBS。
- 将冻存管在37 °C水浴或珠浴中解冻约30秒至1分钟,直至仅剩微小冰晶。
- 使用预先润湿的移液吸头,缓慢将细胞悬液逐滴转移至含有MOM或PBS的管中。
- 将管在4 °C条件下以300 x g离心5分钟,使细胞沉淀。
- 弃去上清液,将细胞沉淀重悬于100 µL MOM中;根据需要调整体积。采用台盼蓝排斥法进行自动细胞计数。
- 每孔接种5,000–10,000个活细胞,总体积为50 µL,培养基为75%(v/v)BME/MOM。尽可能多设置接种孔,并根据前述示例计算额外准备一个孔所需的细胞量。
- 继续执行小鼠食管类器官(MEO)传代与冻存方案中的后续步骤(见步骤2.4.11)。
3. 类器官石蜡包埋前的准备(时间预估:<1 小时 [另加 1.5 小时试剂准备时间])
- 使用宽口移液器吸头,每管收集三个孔的类器官至微量离心管中。收集基底膜基质(BME)凝胶滴中的类器官及其上清液,并通过反复吹打破坏BME结构。
- 在2,000 × g 条件下短暂离心10–15秒,使类器官沉淀。移除并弃去上清液。
- 轻轻吹打使沉淀松散,将沉淀重悬于300 µL的4%多聚甲醛(PFA)中。
- 在4 °C条件下固定类器官过夜。
- 在2,000 × g 条件下短暂离心10–15秒,使类器官沉淀。尽可能移除并弃去PFA溶液。
- 轻轻吹打使沉淀松散,将沉淀重悬于500 µL的PBS中。
注意:固定后的类器官可在4 °C保存最多2周,之后再进行下一步操作。 - 配制50 mL的琼脂凝胶储备液(2%琼脂加2.5%明胶)。
注意:由于需要孵育时间并进行高压灭菌处理,请提前配制琼脂凝胶储备液。- 在150 mL可高压灭菌的玻璃烧杯中,将1 g Bacto-琼脂和1.25 g明胶溶于50 mL水中。
- 轻轻摇动悬浮液,在室温下静置30–60分钟。
- 在121 °C条件下高压灭菌20分钟。
- 稍冷却后,将5 mL分装至15 mL锥形管中。
- 在室温下保存,最长可达6个月。
- 将微量离心管架倒置,并在其表面覆盖一层封口膜,制备包埋面。标记相应的类器官编号(ID)。
- 在300 × g 条件下离心5分钟,使类器官沉淀。移除并弃去上清液。
- 同时,将含有琼脂凝胶的15 mL锥形管放入盛有100 mL水的150 mL玻璃烧杯中,置于微波炉中以最高功率加热1–2分钟,直至水开始沸腾且琼脂凝胶完全液化。
警告:微波加热前务必松开含有琼脂凝胶的锥形管盖子。 - 将含有类器官沉淀的微量离心管部分浸入温水中,注意避免水进入管内。
- 沿管壁小心加入50 µL液态琼脂,覆盖类器官沉淀。
- 在不扰动沉淀的前提下(切勿重悬,保持沉淀完整),将含琼脂凝胶的沉淀小心转移至包埋面上的封口膜上。
- 重复步骤3.12和步骤3.13,再加入50 µL液态琼脂凝胶,以收集残留的类器官沉淀,并小心添加至同一凝胶滴中。
- 将含有类器官沉淀的凝胶滴在4 °C条件下孵育45分钟。
- 使用镊子小心地将含有类器官沉淀的凝胶滴转移至已标记的病理学包埋盒中。
- 将包埋盒置于4 °C、70%乙醇中保存,最长可达1个月。
- 按照常规组织学处理流程进行石蜡包埋,制备石蜡块。
访问受限。请登录或开始试用以查看此内容。
结果
本方案描述了根据特定处理方案,从经4NQO处理的小鼠的正常食管组织或食管鳞状细胞癌(ESCC)肿瘤组织中生成小鼠食管类器官(MEO)的过程。该处理方案包括:通过饮用水给予4NQO持续16周,随后进行10至12周的观察期。图 1随后对小鼠实施安乐死,以获取舌或食管组织进行解剖。图 2 以及 图 3我们介绍一种从完整食管中分离上皮层的方法。图 4) 用于后续的单细胞分离。食管来源的上皮细胞初始接种密度为每孔5,000个细胞,置于50 µ含有细胞与基底膜基质及成分明确的无血清细胞培养基的 L 液滴图 5) 并使其在平均7-10天内形成类器官。可通过相差/明场成像和组织病理学进行形态学分析,进一步表征小鼠食管、舌及前胃类器官。图 6)。类器官的自我更新能力可通过测定传代时的类器官形...
访问受限。请登录或开始试用以查看此内容。
讨论
在本文所述的实验方案中,MEO 的生成与分析包含若干关键步骤和注意事项。为确保 MEO 实验的可重复性与严谨性,生物学重复和技术重复均至关重要。对于生物学重复,每个实验条件通常需要使用两到三只独立的 ESCC 小鼠模型即可满足要求。然而,合适的生物学重复数量可能因具体研究中待检测的参数而异。例如,目前尚不清楚在经 4NQO 处理但无肉眼可见病灶或组织学上无 IEN 和 ESCC 病变的小鼠中,肿瘤性类器官最早可在何时以及以多高频率被检测到。尽管 4NQO 可在多种小鼠品系中诱导食管病变14,但目前 MEO 仅从 C57BL/6 小鼠中成功建立。在携带基因工程化遗传改变(如 Trp53 缺失和 cyclin D1 过表达)的小鼠中,ESCC 的发生与发展进程会加快7,14,15。在这些小鼠中,肿瘤性 MEO 可能在 4NQO 处理期间或之后比野生型 C57BL/6 小...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
我们感谢共享资源中心(流式细胞术、分子病理学和共聚焦显微镜) &感谢哥伦比亚大学赫伯特·欧文综合癌症中心(Herbert Irving Comprehensive Cancer Center)专业显微技术平台(Specialized Microscopy)提供的技术支持。感谢 Alan Diehl 博士、Adam J. Bass 博士、Kwok-Kin Wong 博士(美国国家癌症研究所 P01 食管癌发生机制项目)以及 Rustgi 和 Nakagawa 实验室成员的有益讨论。本研究获得以下美国国立卫生研究院(NIH)资助项目的支持:P01CA098101(H.N. 和 A.K.R.)、R01DK114436(H.N.)、R01AA026297(H.N.)、L30CA264714(S.F.)、DE031112-01(F.M.H.)、KL2TR001874(F.M.H.)、3R01CA255298-01S1(J.G.)、2L30DK126621-02
(J.G.)R01CA266978(C.L.)、R01DK132251(C.L.)、R01DE031873(C.L.)、P30DK132710(C.M. 和 H.N.)以及 P30CA013696(A.K.R.)。H.N. 和 C.L. 获得了哥伦比亚大学赫伯特·欧文综合癌症中心多PI试点项目奖。H.N. 获得了范可尼贫血研究基金会奖。F.M.H. 获得了马克癌症研究基金会奖(20-60-51-MOME)以及美国癌症研究协会奖。J.G. 获得了美国胃肠病学会(AGA)奖项。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.05% 胰蛋白酶-EDTA | Thermo Fisher Scientific | 25-300-120 | |
| 0.25% 胰蛋白酶-EDTA | Thermo Fisher Scientific | 25-200-114 | |
| 0.4% 台盼蓝 | Thermo Fisher Scientific | T10282 | |
| 1 mL 无针结核菌素注射器 | BD | 309659 | |
| 1.5 mL 微量离心管 | Thermo Fisher Scientific | 05-408-129 | |
| 100 µm 细胞筛 | Thermo Fisher Scientific | 22363549 | |
| 15 mL 锥形管 | Thermo Fisher Scientific | 14-959-53A | |
| 200 µL 宽口微量移液器吸头 | Thermo Fisher Scientific | 212361A | |
| 21 G 针头 | BD | 305167 | |
| 24 孔板 | Thermo Fisher Scientific | 12-556-006 | |
| 4-硝基喹啉-1-氧化物(4NQO) | 东京化成工业 | NO250 | |
| 50 mL 锥形管 | Thermo Fisher Scientific | 12-565-270 | |
| 6 孔板 | Thermo Fisher Scientific | 12556004 | |
| 70 µm 细胞筛 | Thermo Fisher Scientific | 22363548 | |
| 99.9% 乙二醇丙二醇 | SK picglobal | ||
| 高级 DMEM/F12 | Thermo Fisher Scientific | 12634028 | |
| 两性霉素 B | Gibco, Thermo Fisher Scientific | 15290018 | 储存浓度 250 µg/mL,终浓度 0.5 µg/mL |
| 抗生素-抗真菌剂 | Thermo Fisher Scientific | 15240062 | 储存浓度 100x,终浓度 1x |
| B-27 添加剂 | Thermo Fisher Scientific | 17504044 | 储存浓度 50x,终浓度 1x |
| 细菌琼脂 | BD | 214010 | |
| CO2 培养箱,例如 Heracell 150i | Thermo Fisher Scientific | 51026406 | 或同类产品 |
| Countess II FL 全自动细胞计数仪 | Thermo Fisher Scientific | AMQAX1000 | 或同类产品 |
| 冻存管 | Thermo Fisher Scientific | 03-337-7D | |
| DietGel 76A | Clear H2O | 72-07-5022 | |
| 二甲基亚砜(DMSO) | MilliporeSigma | D4540 | |
| 中性蛋白酶 | Corning | 354235 | 储存浓度 50 U/mL,终浓度 2.5–5 U/mL |
| 解剖剪刀 | VWR | 25870-002 | |
| 杜氏磷酸盐缓冲液(PBS) | Thermo Fisher Scientific | 14190250 | 储存浓度 1x |
| 胎牛血清(FBS) | HyClone | SH30071.03 | |
| 镊子 | VWR | 82027-386 | |
| 冻存容器 | Corning | 432002 | 或同类产品 |
| 明胶 | Thermo Fisher Scientific | G7-500 | |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | 储存浓度 100x,终浓度 1x |
| HEPES | Thermo Fisher Scientific | 15630080 | 储存浓度 1 M,终浓度 10 mM |
| 加热板/搅拌器 | Corning | PC-420D | 或同类产品 |
| Lab Armor 珠浴(或水浴) | VWR | 89409-222 | 或同类产品 |
| 实验室天平 | Ohaus | 71142841 | 或同类产品 |
| Matrigel 基底膜提取物(BME) | Corning | 354234 | |
| 微量离心机 Minispin | Eppendorf | 22620100 | 或同类产品 |
| 微量离心管架 | Southern Labware | 0061 | |
| N-2 添加剂 | Thermo Fisher Scientific | 17502048 | 储存浓度 100x,终浓度 1x |
| N-乙酰半胱氨酸(NAC) | Sigma-Aldrich | A9165 | 储存浓度 0.5 M,终浓度 1 mM |
| Parafilm M 封口膜 | Thermo Fisher Scientific | S37440 | |
| 多聚甲醛(PFA) | MilliporeSigma | 158127-500G | |
| 病理学包埋盒 | Thermo Fisher Scientific | 22-272416 | |
| 相差显微镜 | Nikon | 或同类产品 | |
| 重组小鼠表皮生长因子(mEGF) | Peprotech | 315-09-1mg | 储存浓度 500 ng/µL,终浓度 100 ng/mL |
| 表达 R-Spondin1 和 Noggin 的 RN 细胞条件培养基(RN CM) | N/A | N/A | 可通过类器官与细胞培养核心申请获得,终浓度 2% |
| Sorval ST 16R 离心机 | Thermo Fisher Scientific | 75004380 | 或同类产品 |
| 大豆胰蛋白酶抑制剂(STI) | MilliporeSigma | T9128 | 储存浓度 250 µg/mL |
| ThermoMixer C | Thermo Fisher Scientific | 14-285-562 PM | 或同类产品 |
| Y-27632 | Selleck Chemicals | S1049 | 储存浓度 10 mM,终浓度 10 µM |
参考文献
- Rustgi, A. K., El-Serag, H. B. Esophageal carcinoma. The New England Journal of Medicine. 371 (26), 2499-2509 (2014).
- Dotto, G. P., Rustgi, A. K. Squamous cell cancers: A unified perspective on biology and genetics. Cancer Cell. 29 (5), 622-637 (2016).
- Giroux, V., et al. Long-lived keratin 15+ esophageal progenitor cells contribute to homeostasis and regeneration. The Journal of Clinical Investigation. 127 (6), 2378-2391 (2017).
- DeWard, A. D., Cramer, J., Lagasse, E. Cellular heterogeneity in the mouse esophagus implicates the presence of a nonquiescent epithelial stem cell population. Cell Reports. 9 (2), 701-711 (2014).
- Kinugasa, H., et al. Mitochondrial SOD2 regulates epithelial-mesenchymal transition and cell populations defined by differential CD44 expression. Oncogene. 34 (41), 5229-5239 (2015).
- Whelan, K. A., et al. Autophagy supports generation of cells with high CD44 expression via modulation of oxidative stress and Parkin-mediated mitochondrial clearance. Oncogene. 36 (34), 4843-4858 (2017).
- Natsuizaka, M., et al. Interplay between Notch1 and Notch3 promotes EMT and tumor initiation in squamous cell carcinoma. Nature Communications. 8 (1), 1758(2017).
- Whelan, K. A., Muir, A. B., Nakagawa, H. Esophageal 3D culture systems as modeling tools in esophageal epithelial pathobiology and personalized medicine. Cellular and Molecular Gastroenterology and Hepatology. 5 (4), 461-478 (2018).
- Sachdeva, U. M., et al. Understanding the cellular origin and progression of esophageal cancer using esophageal organoids. Cancer Letters. 509, 39-52 (2021).
- Nakagawa, H., et al. The targeting of the cyclin D1 oncogene by an Epstein-Barr virus promoter in transgenic mice causes dysplasia in the tongue, esophagus and forestomach. Oncogene. 14 (10), 1185-1190 (1997).
- Andl, C. D., et al. Epidermal growth factor receptor mediates increased cell proliferation, migration, and aggregation in esophageal keratinocytes in vitro and in vivo. The Journal of Biological Chemistry. 278 (3), 1824-1830 (2003).
- Opitz, O. G., et al. A mouse model of human oral-esophageal cancer. The Journal of Clinical Investigation. 110 (6), 761-769 (2002).
- Stairs, D. B., et al. Deletion of p120-catenin results in a tumor microenvironment with inflammation and cancer that establishes it as a tumor suppressor gene. Cancer Cell. 19 (4), 470-483 (2011).
- Tang, X. -H., Knudsen, B., Bemis, D., Tickoo, S., Gudas, L. J. Oral cavity and esophageal carcinogenesis modeled in carcinogen-treated mice. Clinical Cancer Research. 10, 301-313 (2004).
- Fong, L. Y. Y., Mancini, R., Nakagawa, H., Rustgi, A. K., Huebner, K. Combined cyclin D1 overexpression and zinc deficiency disrupts cell cycle and accelerates mouse forestomach carcinogenesis. Cancer Research. 63 (14), 4244-4252 (2003).
- Zheng, B., et al. A new murine esophageal organoid culture method and organoid-based model of esophageal squamous cell neoplasia. iScience. 24 (12), 103440(2021).
- Hisha, H., et al. Establishment of a novel lingual organoid culture system: generation of organoids having mature keratinized epithelium from adult epithelial stem cells. Scientific Reports. 3, 3224(2013).
- Kalabis, J., et al. Isolation and characterization of mouse and human esophageal epithelial cells in 3D organotypic culture. Nature Protocols. 7 (2), 235-246 (2012).
- Nguyen, N., et al. TGF-β1 alters esophageal epithelial barrier function by attenuation of claudin-7 in eosinophilic esophagitis. Mucosal Immunology. 11 (2), 415-426 (2018).
- Sherrill, J. D., et al. Analysis and expansion of the eosinophilic esophagitis transcriptome by RNA sequencing. Genes and Immunity. 15 (6), 361-369 (2014).
- Ruffner, M. A., et al. Toll-like receptor 2 stimulation augments esophageal barrier integrity. Allergy. 74 (12), 2449-2460 (2019).
- Kabir, M. F., et al. Single cell transcriptomic analysis reveals cellular diversity of murine esophageal epithelium. Nature Communications. 13 (1), 1-15 (2022).
- Shimonosono, M., et al. Alcohol metabolism enriches squamous cell carcinoma cancer stem cells that survive oxidative stress via autophagy. Biomolecules. 11 (10), 1479(2021).
- Flashner, S., Yan, K. S., Nakagawa, H. 3D organoids: An untapped platform for studying host-microbiome interactions in esophageal cancers. Microorganisms. 9 (11), 2182(2021).
- Liu, K., et al. Sox2 cooperates with inflammation-mediated stat3 activation in the malignant transformation of foregut basal progenitor cells. Cell Stem Cell. 12 (3), 304-315 (2013).
访问受限。请登录或开始试用以查看此内容。
重印与许可
